本研究では、NHANESデータとトランスクリプトーム解析を用いて、食事によるビタミンB12摂取量と糖尿病性腎臓病との関連を調査しました。ビタミンB12の摂取量が多いほど糖尿病性腎臓病の発症リスクが低いことが示され、仮説生成の候補としてP2RY14が特定されました。
この記事について
サマリー
要約
糖尿病性腎症(DKD)は糖尿病の主要な合併症であるが、ビタミンB12の摂取量とDKDとの関連は依然として不明である。本横断研究では、2011年から2018年の米国国民健康栄養調査(NHANES)の参加者8,218人を対象とした。多変数ロジスティック回帰分析の結果、ビタミンB12摂取量が最も高い四分位群の参加者は、最も低い四分位群の参加者よりもDKDの発症オッズが低いことが示された(オッズ比 (OR): 0.70; 95%信頼区間 (CI): 0.50–0.97)。制限付き三次スプライン分析により、ビタミンB12摂取量とDKDとの間に有意な非線形関連があることが示された。トランスクリプトーム解析により493個の差分発現遺伝子(DEG)が特定され、そのうち20個がコバラミン関連遺伝子と重複していた。P2RY14はDKDにおいて有意にアップレギュレートされており、GSE30528、GSE30529、およびGSE142025において予備的な識別能を示した。機能濃縮分析により、P2RY14と細胞外マトリックス–受容体相互作用、焦点接着、および腎臓の発達との関連が示唆された。探索的な分子ドッキングにより、MC-1とP2RY14の間の潜在的な結合モードが予測され、Vinaスコアは−6.0 kcal/molであった。総じて、これらの知見はビタミンB12摂取量とDKDとの関連を支持し、さらなる調査のための仮説生成候補としてP2RY14を特定するものである。
概要
糖尿病(DM)は、インスリン分泌の絶対的または相対的な欠乏、および/またはインスリン活性の低下によって生じる、慢性的な高血糖を特徴とする代謝疾患です。世界中で約5億3,700万人が罹患しています1。過去30年間で、DMの世界的な有病率は約4倍に増加しており、成人の約11人に1人が診断され、そのうち90%が2型糖尿病(T2DM)に罹患しています2。T2DMはしばしば、心血管疾患、脳卒中、腎症、神経障害、および網膜症を含む、数多くの微小血管および大血管合併症を引き起こします3。これらの合併症は、障害率の上昇、クオリティ・オブ・ライフの低下、および平均余命の短縮に大きく寄与しています4,5。特に懸念されるのが、糖尿病患者の約20%に発症する、糖尿病の一般的な微小血管合併症である糖尿病性腎臓病(DKD)です6。DKDは、持続的な蛋白尿と糸球体濾過量(GFR)の漸次的な低下を特徴とします。放置された場合、DKDは最終的に末期腎不全(ESKD)に至る可能性があり、腎機能が著しく損なわれるため、生存には透析や腎移植が必要となります7,8。さらに、DKD患者は早期段階であっても心血管疾患を発症するリスクが高く、この併存疾患は死亡リスクの増加に関連しており、医療制度に大きな負担をかけています9,10,11。したがって、DKDの進行に寄与する要因を徹底的に調査することが極めて重要です。これらの要因をより深く理解することは、臨床現場においてDKDの発症および進行の両方を防ぐための効果的な治療戦略を考案する上で不可欠です。
水溶性ビタミンのグループであるビタミンB群は、細胞の代謝と恒常性において重要な役割を果たしており、生理的バランスの維持、抗酸化防御、および赤血球の合成に関与している。12ビタミンBの主な供給源は食事による摂取である。これらのビタミンは水溶性であるため、通常、人体内に蓄積することが困難である。12過剰なビタミンBは容易に尿中に排泄されますが、個々の吸収、利用、および代謝は大きく異なる場合があります。13ビタミンB欠乏症は細胞機能および免疫系を著しく損なう可能性があり、高ホモシステイン血症に関連した炎症を引き起こします。14ビタミンB欠乏などの要因は、腎機能低下および腎組織病理に関連する炎症および酸化ストレスプロセスに影響を及ぼすことで、慢性腎臓病(CKD)の進行に寄与している可能性があります。15B群ビタミンの中で、ビタミンB12コバラミンとしても知られるビタミンB12は、代謝、特にDNA合成、メチル化、およびミトコンドリア代謝において重要な役割を果たす必須の水溶性ビタミンである。15CKD(慢性腎臓病)および末期腎不全の患者では、アシドーシス、全身性炎症、ホルモン不均衡を含むさまざまな代謝変動が、併存疾患や多剤併用療法とともに栄養不良を引き起こし、その結果としてビタミンB12 欠乏16多くの研究により、血清ビタミンB濃度の低さと……の間の相関関係が立証されています。12 濃度、および肥満(BMIの上昇)、インスリン抵抗性、2型糖尿病(T2DM)、脂質異常症、心血管疾患などの条件17逆に、ビタミンBの過剰摂取に関連する潜在的な毒性が12 CKD患者における病態を悪化させる可能性がある18さらに、最近の研究では、ビタミンBの高濃度であるほど12 血液透析を受ける患者における全死因死亡率の上昇と関連している19しかしながら、ビタミンBとの関係は12 摂取量と糖尿病性腎症(DKD)の発症との関係については、これまで包括的な調査が行われていない。さらに、ビタミンB12に関連する生物学的プロセスをDKDに結びつける可能性のある分子的な特徴についても、十分に特性解析されていない。したがって、集団ベースの疫学的エビデンスとトランスクリプトームデータを統合することは、観察された関連性に寄与する候補分子特徴を特定し、その後の実験的検証に向けたターゲットの優先順位を決定するための相補的な戦略となり得る。
現在の知見が不足していることから、我々はNHANESデータベースのデータを用い、広範な潜在的交絡因子を調整した上で、ビタミンB12の摂取量とDKDとの関連を調査する横断的研究を実施しました。同時に、DKDのトランスクリプトームデータセットを解析して発現変動遺伝子を特定し、次いでそれらをビタミンB12関連遺伝子と交差させることで、DKDに関連する可能性のある候補分子をスクリーニングしました。この統合的なアプローチにより、ビタミンB12とDKDとの関連についてさらなる知見が得られる可能性があります。
プロトコル
本研究は、一般に公開されており匿名化されたNHANESデータの二次解析であり、新たな被験者の募集、介入、または個人特定情報の収集は行わなかった。したがって、本解析において追加のインフォームドコンセントは不要であった。
研究集団および参加者の選定
米国国民健康栄養調査(NHANES)では、米国の人口から全国的に代表性のある健康および栄養データを収集するために、複雑な多段階確率サンプリング設計を用いています。
4つのNHANESサイクル(2011–2012年、2013–2014年、2015–2016年、2017–2018年)における39,156人の参加者のデータを当初の検討対象とした。以下の基準のいずれかに該当する参加者は除外した:(1) 年齢 < 18歳;(2) 食事性ビタミンBの欠乏12 摂取データ;(3) 自己申告による糖尿病既往歴、糖化ヘモグロビン(HbA1c)、または空腹時血糖値(FPG)を含む、糖尿病評価に必要な情報の不足;または (4) 尿中アルブミン/クレアチニン比(ACR)または推算糸球体濾過量(eGFR)を含む、腎疾患評価に必要な情報の不足(図1)。これらの除外後、本解析に必要な完全なデータを有する参加者8,218名が組み入れられた。
DM、CKD、およびDKDの定義
米国糖尿病学会(ADA)が定めた基準および先行研究に基づき、以下のいずれかに該当する場合を糖尿病(DM)と診断した:(1) 既往診断がある、(2) 空腹時血糖(FPG)値が7.0 mmol/L以上である、(3) HbA1c値が6.5%以上である、または (4) 自己申告によるインスリンまたは抗糖尿病薬の使用がある。慢性腎臓病(CKD)は、20,21 ACRが30 mg/g以上、またはeGFRが(eGFR = 175 × (血清クレアチニン値 mg/dL)-1.154 × (年齢[歳])-0.203 x (女性の場合は0.742) x (黒人の場合は1.21) < 60 mL/min/1.73 m²2DKDは、DMとCKDの両方が認められることと定義した。20DMおよびCKDの両方の基準を満たした参加者はDKD群に分類し、両方の基準を同時に満たさなかった参加者は非DKD群に分類した。したがって、非DKD群には、DMはあるがCKDはない参加者、CKDはあるがDMはない参加者、およびDMとCKDのいずれも認められない参加者が含まれた。
共変量
本研究では、ビタミンBとの関連性に影響を及ぼし得る共変量を検討した。12 およびDKD。人口統計学的変数には、年齢、性別、人種/民族、教育歴、貧困所得比(PIR)、婚姻状況、アルコール摂取量、喫煙習慣、BMI、身体活動(PA)、ならびに高血圧および高脂血症の有無が含まれた。18歳以上の参加者が本解析の対象となり、若年・中年成人(18~ < (60歳未満)および高齢者(60歳以上)に分類した。性別は男性または女性として分けた。民族分類は、メキシコ系アメリカ人、その他のヒスパニック、非ヒスパニック系白人、非ヒスパニック系黒人、およびその他/多民族とした。学歴は、高校中退、高校卒業、大学卒業以上の3つのレベルに分けた。PIR(公的扶助所得比)は、以下の3つのカテゴリーに分類した: < 1.5、1.5–3.49、および ≥ 3.521配偶者の有無は、既婚/パートナーと同居、未婚、または死別/離婚のいずれかで表記した。喫煙状況は、現在喫煙者(毎日喫煙および間欠的喫煙)、元喫煙者(過去に喫煙歴があり、 > 生涯で100本以上のタバコを吸ったが現在は吸っていない人)、および非喫煙者(喫煙経験がない人) < 生涯に100本以上のタバコを喫煙した)。飲酒状況は、重度飲酒(女性: > 1日3杯まで(男性): > 1日4杯)、中程度の飲酒(女性:1日2杯、男性:1日3杯)、軽度の飲酒(女性: < 1日あたり2杯;男性: < 1日あたり3杯の飲料)22BMIは次のように割り当てられた: < 25 kg/m2, 25–29.9 kg/m²2、および 30 kg/m² 以上2PAレベルは、低(< 600 MET-min/週)、中強度(600から < 3,000 MET-min/week)、および高強度(≥ 3,000 MET-min/week)とした。高脂血症は、以下の基準(いずれかに該当)によって確認した:(1) 総コレステロール(TC)値 ≥ 200 mg/dL、(2) 総トリグリセリド(TG)値 ≥ 150 mg/dL、(3) 男性:高密度リポ蛋白(HDL)値 < 40 mg/dL;女性:HDL値 < 50 mg/dL;(4) 低密度リポタンパク質(LDL)値が130 mg/dL以上;または (5) 脂質低下薬の使用。
さらに、尿中アルブミン・クレアチニン比(ACR)、血清尿酸値(μmol/L)、eGFR(mL/min/1.73m2)、血清クレアチニン(Scr)、血中尿素窒素(BUN)、血清TC、TG、血清アラニンアミノトランスフェラーゼ(ALT)、血清アスパラギン酸アミノトランスフェラーゼ(AST)などの生化学的指標、およびエネルギー摂取量(kcal)、たんぱく質(g)、炭水化物(g)、総脂質(g)、ナトリウム(mg)、カリウム(mg)などの食事摂取量についても検討した。
独立変数
食事によるビタミンB12摂取量を主要な曝露変数として使用した。栄養摂取データは、食品および飲料からの1日あたりの栄養摂取量をまとめたNHANESのTotal Nutrient Intakeファイルから取得した。サプリメントからのビタミンB12摂取量は除外した。2日分ともに有効な食事想起データがある参加者のみを対象とし、2日間の想起日の平均ビタミンB12摂取量を算出し、μg/dayとして表した。得られた食事によるビタミンB12摂取量は、主要な多変量解析のために四分位数(Q1–Q4)に分類した。
データソースおよび遺伝子セットの収集
DKDの発現データセットGSE30528およびGSE30529をGene Expression Omnibus (GEO) データベースから取得した。いずれのデータセットもGPL571プラットフォームを用いて作成された。GSE30528は9つのDKD糸球体サンプルと13つの正常対照糸球体サンプルで構成され、GSE30529は10つのDKD尿細管サンプルと12つの正常対照尿細管サンプルで構成されていた。両方のマイクロアレイデータセットについて、RMA正規化およびlog2変換された発現データをGEOから直接取得した。プローブ識別子はGPL571プラットフォームのアノテーションファイルに従って遺伝子シンボルにマッピングした。複数のプローブが同一の遺伝子にマッピングされた場合は、その平均発現値を遺伝子レベルの発現量として使用した。
候補遺伝子の検証のため、RNA-seqデータセットであるGSE142025をさらに含めた。TPM発現データはGEOから取得し、その後の解析前にlog2変換を行った。遺伝子アノテーションはhg19リファレンスゲノムアノテーションを用いて実施した。各データセットは独立して解析され、異なるデータセットの発現マトリックスを直接統合しなかったため、データセット間のバッチ効果補正は適用しなかった。
2026年3月13日にGeneCardsデータベースから、キーワード「COBALAMIN」を用いて、コバラミン(ビタミンB12)関連遺伝子を計716個抽出した。関連スコアによるカットオフや追加のフィルタリング基準は適用せず、抽出された716個の全遺伝子をビタミンB12関連遺伝子セットとして保持した。
発現変動解析および機能濃縮解析
DKDサンプルと正常サンプルの間の発現変動解析は、Rパッケージの「limma」(バージョン 3.56.2)23を用いて行い、|log2FC| > 1 かつ偽発見率(FDR) < 0.05 を基準に発現変動遺伝子(DEG)を特定した。ビタミンB12代謝に関連する候補遺伝子を特定するため、Rパッケージのggvenn(バージョン 0.1.19)を用いて、特定したDEGとGeneCardsデータベースから得られたビタミンB12関連遺伝子セットとの積集合解析を行った。重複する遺伝子をベン図で可視化し、以降の解析の候補遺伝子として保持した。次に、Rパッケージの「clusterProfiler」(バージョン 4.8.3)24を用いて、遺伝子オントロジー(GO)用語(生物学的プロセス、分子機能、細胞成分)および京都遺伝子・ゲノム百科事典(KEGG)パスウェイを対象に、DEGの機能濃縮解析を実施した。補正後p-valueが < 0.05 の濃縮用語を統計的に有意とみなした。
遺伝子セット富集分析 (GSEA)
GSE30528データセットにおいて、サンプルは以下のように分類されました。 P2RY14高レベルの、および P2RY14中央値に基づいた低値群 P2RY14 発現レベル。次いで、2群間で発現変動解析を行い、得られたlogFC値に基づいてすべての遺伝子を降順に並べた。その後、clusterProfiler Rパッケージ(バージョン4.8.3)を用いてGSEAを実施した。24GOおよびKEGGの遺伝子セットは、MSigDBデータベース(バージョンv2025.1.Hs)のmsigdbrパッケージを用いて取得した。調整p値に基づき濃縮された遺伝子セットは < 0.05未満を統計的に有意であると見なした。
タンパク質-タンパク質相互作用(PPI)ネットワーク
タンパク質の機能的関連性およびPPIネットワークの解析には、STRINGデータベース(バージョン11.0)(https://string-db.org/)25を用い、生物種としてHomo sapiensを選択し、最小相互作用信頼度スコアを0.4に設定した。得られたPPIネットワークはCytoscape26を用いて可視化した。さらに、同一の重複する20個の候補遺伝子をGeneMANIAオンラインプラットフォームに投入し、機能的関連性をさらに詳細に特性化した。GeneMANIAでは、生物種にHomo sapiensを選択し、その他のパラメータをデフォルトに設定した上で、遺伝子の共発現、物理的相互作用、遺伝学的相互作用、共有タンパク質ドメイン、およびパスウェイ情報を包含する複数のエビデンスを統合した。
薬物標的スクリーニング
P2RY14に関連する潜在的な化合物を特定するため、GeneCardsデータベースから薬物標的情報を取得し、5つの候補化合物を得た。これらの候補をその後DGIdbデータベースで相互参照した。その結果、両方のデータベースでMC-1(DrugBank ID: DB05315; PubChem CID: 1051)が特定されたため、以降の探索的な分子ドッキング解析の対象として選択した。
分子ドッキング解析
MC-1と[対象物]との間の潜在的な結合様式を探索するために P2RY14、分子ドッキングは、空腔検出とAutoDock Vinaドッキングエンジンを統合したCB-Dock2オンラインプラットフォームを用いて実施した。MC-1(PubChem CID: 1051)の三次元構造はPubChemから取得し、予測された三次元モデルの P2RY14 AlphaFold Protein Structure Database(AF-Q15391-F1-model_v4)から取得した。平均pLDDTスコアは P2RY14 モデルは87.12であり、予測された結合ポケット領域の局所pLDDTスコアは > 90であり、局所的に予測された構造の信頼度が高いことを示している。キャビティガイドによるブラインドドッキング戦略が採用された。候補となる結合キャビティを全域にわたって探索した。 P2RY14 構造を解析し、予測体積が最大の5つの空隙を評価した。生理学的条件(pH約7.4)におけるプロトン化状態を近似するため、レセプターおよびリガンドの調製時に水素原子を付加した。レセプターは剛体として扱い、リガンドは回転可能な結合を許容するフレキシブルな構造として扱った。ドッキングシミュレーションを独立して8回実施した。Vinaスコアが最も低いポーズを、代表的な予測結合モードとして選択した。得られたレセプター・リガンド複合体をDiscovery Studio(バージョン4.5)を用いて可視化し、解析した。
統計解析
NHANESの複雑な多段階層化確率抽出法によるサンプリング設計に基づき、すべてのNHANESベースの解析には、適切な調査ウェイト、層、および一次抽出単位(PSU)を組み込んだ。ビタミンB12 摂取量は2日間の食事思い出し法から算出され、2日間の食事サンプルウェイト(WTDR2D)が使用された。統合された4つのNHANESサイクル(2011~2018年)について、8年間の食事サンプルウェイトはWTDR2D/4として算出され、層化およびクラスター化を考慮するためにSDMVSTRAおよびSDMVPSUが組み込まれた。連続変数は平均値として表記された。 ± 標準偏差(SD)、およびカテゴリー変数は件数とパーセンテージとして表記した。群間差は、重み付きt検定および重み付きカイ二乗検定を用いて評価した。ビタミンBと[の]関連性を評価するために、多変量ロジスティック回帰分析を用いた。12 摂取量とDKD。モデル1は未調整、モデル2は年齢、性別、人種/民族、配偶者の有無、および教育到達度で調整、モデル3は総エネルギー摂取量およびその他の食事共変量を含むすべての共変量で調整した。すべての回帰分析には、WTDR2D/4、SDMVSTRA、およびSDMVPSUを組み込んだ。ビタミンB12 摂取量の四分位数(Q1–Q4)を主要な曝露因子とし、連続的なビタミンB12 摂取量は、補完的な曝露要因としても分析されました。年齢、性別、BMI、eGFR、ACR、高血圧、および高脂血症に基づいたサブグループ解析を実施しました。潜在的な非線形性を評価するため、完全調整後のモデル3を用いて制限立方スプライン(RCS)分析を行いました。ノットは、ビタミンBの第5、35、65、および95パーセンタイル点に4か所設置しました。12 摂取、~を伴う 3.24 μg/day グラフ表示の参照値として使用した。この参照値は、その後の探索的ブレイクポイント分析から導出されたものであり、臨床的に推奨される摂取量として解釈したものではない。RCS分析にはWTDR2D/4、SDMVSTRA、およびSDMVPSUも組み込み、非線形性はWald検定を用いて評価した。有意な非線形性が検出された場合は、再帰的探索手順と最小赤池情報量基準(AIC)を組み合わせて潜在的なブレイクポイントを特定し、続いて3セグメントの区分回帰分析を行った。感度分析は、ノット数を3および5とした別のRCS仕様を用いて実施した。27ROC曲線分析を行い、〜の識別能を予備的に評価した。 P2RY14、AUCについては95%信頼区間を報告した。A p値 < 0.05を統計的有意水準とした。すべての統計解析はRソフトウェア(バージョン4.4.1)を用いて行った。
結果
ベースライン特性
NHANES 2011–2018の参加者計8,218人が含まれ、そのうち623人がDKDあり、7,595人がNon-DKDに分類された。DKD群とNon-DKD群の間で、年齢、性別、人種/民族、配偶者の有無、教育歴、PIR、BMI、血圧、高血圧、アルコール摂取量、喫煙状況、ビタミンB12摂取量、および食事摂取量に有意な差が認められた(すべて p < 0.05)。また、ACR、eGFR、Scr、BUN、TC、およびTGにおいても有意な差が認められた(表1)。
ビタミンB12摂取量の四分位グループ間で、教育歴、高血圧、DKDの状態、およびエネルギー摂取量に有意な差が認められました。対照的に、年齢、婚姻状況、BMI、血圧、アルコール摂取量、eGFR、ACR、血清尿酸値、Scr、またはTGについては、四分位グループ間で有意な差は認められませんでした(表2)。
ビタミンB12とDKDの関連性
ビタミンB12の摂取量を四分位数(Q1~Q4)に分類し、多変数ロジスティック回帰分析の結果を表3に示す。完全調整後のモデル3において、ビタミンB12摂取量が最も多い群(Q4)は、最も少ない群(Q1)と比較してDKDのオッズが有意に低かった(OR = 0.70, 95% CI: 0.50–0.97, p = 0.034)。一方、Q2(OR = 1.14, 95% CI: 0.85–1.53, p = 0.386)およびQ3(OR = 0.94, 95% CI: 0.69–1.28, p = 0.684)では有意な関連は見られなかった。さらに、完全調整モデルにおける線形トレンドは統計的有意性に達しなかったが(トレンドのp = 0.086)、関連性の全体的な方向性は逆相関であった。これらの結果は、高いビタミンB12摂取量、特に最高四分位数においてDKDのオッズ低下と関連していることを示唆しているが、ビタミンB12摂取量とDKDの間に安定した線形の用量反応関係があることは支持されなかった。
ビタミンB12とDKDとの関連に関するサブグループ解析
ビタミンB12摂取量とDKDとの関連が、参加者の異なる特性間で一貫しているかを確認するために、サブグループ解析を行った。モデル1において、ビタミンB12摂取量が最も高い四分位群(Q4)の参加者は、男性および女性の両方のサブグループにおいて、Q1の参加者よりもDKDの発症オッズが有意に低かった(p < 0.05; 表4)。ACRサブグループ間での関連性は、より不均一であった。ACR < 30 mg/gの参加者では、一部の中間的なビタミンB12摂取量四分位群で有意な関連が認められたが、より高いACRレベルで層別化した後は、その傾向は弱まった。eGFRサブグループ間では、有意な関連は認められなかった。
ビタミンB12とDKDの非線形関係
完全調整後のRCS分析により、ビタミンBと[後続の語句が欠落していますが、文脈から「の間の」となります]との間に有意な非線形関連が認められた。12 摂取および糖尿病性腎症(DKD)図 2, p (非線形性のp値 = 0.037)。RCSモデルでは、ビタミンBの第5、35、65、95パーセンタイルに配置された4つのノットを使用した。12 吸気分布、および 3.24 μg/day 参照値として使用した。その後のブレイクポイント解析により、データ駆動型のブレイクポイントが2箇所、〜で特定された。 3.24 μg/day (95% CI: 2.86–3.62)および 8.36 μg/day (95% CI: 7.52–9.20)、ビタミンBを分画し12 3つの範囲に分けて摂取量を確認します。ビタミンBについて12 摂取量 < 3.24 μg/day、DKDとの有意な関連は認められなかった(OR = 1.07、 p = 0.575)。3.24–の範囲内では8.36 μg/day、ビタミンB12 摂取量はDKDと逆相関していた(OR = 0.87, p = 0.025)。摂取のための > 8.36 μg/day、有意な関連は認められなかった(OR = 1.00、 p = 0.995) (表 5)。これらの知見は非線形のパターンと一致しており、中程度の摂取範囲においてのみ有意な逆相関が観察された。これらの知見の堅牢性を評価するため、ノット数を3および5とした代替的な制限付き3次スプライン(RCS)仕様を用いて感度分析を行った。その結果、同様の全体的な相関パターンが観察され、どちらのノット仕様においてもモデル1〜3で統計的に有意な全体的な相関が認められた。さらに、5ノットのモデルでは、非線形関係がより強く支持された(補足図1).
DKDにおけるビタミンB12関連候補遺伝子の同定
GSE30528データセットにおいて、DKDサンプルと正常サンプルの間で493個のDEGを同定し、そのうち126個の発現上昇遺伝子と367個の発現低下遺伝子が含まれていた(|log₂FC| > 1, FDR < 0.05; Figure 3A,B, Supplementary Table 1)。KEGGパスウェイ解析により、これらのDEGが細胞外マトリックス(ECM)受容体相互作用、焦点接着、インテグリンシグナリング、およびアクチン細胞骨格の調節パスウェイに有意に濃縮していることが明らかになった(Figure 3C, Supplementary Table 2)。さらにGO濃縮解析により、DEGが主にコラーゲン含有ECM、糸球体形成、焦点接着、およびネフロン形成に関連していることが示された(Figure 3D, Supplementary Table 2)。
DEGとビタミンB12関連遺伝子セットの積集合解析により、20個の重複する候補遺伝子が特定されました(図 3E)。続いて、これらの遺伝子を用いてSTRINGデータベースによるPPIネットワークを構築し、相互作用を最小信頼スコア0.4でフィルタリングしました。得られたネットワークは11個のノードと20個のエッジで構成されており、それぞれタンパク質とその相互作用を表しています(図 3F)。20個の候補遺伝子間の関係性は、GeneMANIAを用いてさらに可視化されました(図 3G)。
DKDにおけるビタミンB12関連遺伝子の候補としてのP2RY14の探索的特性解析
ビタミンB12の摂取量とDKDの状態との間に観察された関連に基づき、次にトランスクリプトーム解析を用いて、DKDの病態に関与する主要なビタミンB12関連遺伝子の特定を試みた。重複する20個の候補遺伝子のうち、異なるDKDデータセット間での発現パターンをさらに比較した。GSE30528およびGSE30529データセットにおいて、P2RY14の発現は正常コントロールと比較してDKDサンプルで有意に上昇していた(Figure 4A,B)。P2RY14はGタンパク質共役受容体をコードしており、免疫細胞の走化性、細胞骨格の再編成、炎症反応、および酸化ストレスに関与していることが報告されている28,29。しかし、DKDにおけるその役割はまだ直接的に調査されていない。独立した複数のDKDデータセットで一貫して発現が上昇していることと、潜在的な生物学的関連性を考慮し、その後の検証および機能解析の優先順位としてP2RY14を選定した。続いて、P2RY14の識別能を予備的に評価するためにROC曲線解析を行った。発見データセットであるGSE30528ではAUCが0.923(95% CI: 0.807–1.000)であり、予備的な外部検証データセットであるGSE30529ではAUCが0.883(95% CI: 0.744–1.000)であった。さらに追加の検証データセットであるGSE142025では、AUCは0.663(95% CI: 0.478–0.847)であり、識別能は限定的であることが示された(Figure 4C–E)。総合すると、これらの知見はP2RY14が潜在的な識別価値を持つことの予備的な証拠となるが、その診断能については、より大規模な独立コホートでのさらなる検証が必要である。
〜に関連する生物学的機能およびパスウェイを探索するために P2RY14 DKDにおける発現に関し、GSE30528のサンプルを以下のように分けた。 P2RY14高および P2RY14- の中央値に基づき、低発現群と高発現群に分けた P2RY142群間で発現変動解析を実施した。次いで、P2RY14の発現に関連する生物学的機能およびパスウェイを特性付けるため、GOおよびKEGGの濃縮解析を行った。GO濃縮解析の結果、 P2RY14 コラーゲン含有細胞外マトリックス(ECM)、糸球体の発達、ECM構造構成成分、および腎臓の発達に関連していた(図4F,補足表3)。さらにKEGG解析により、〜が関与していることが示唆された P2RY14 細胞外マトリックス(ECM)受容体相互作用、焦点接着、および補体および凝固カスケードにおいて(図4G,付随表3).
さらに、GSEAにより、NF-κBシグナル伝達経路およびTNFシグナル伝達経路が、~において有意に濃縮されていた。 P2RY14高 群であり、高いことが示唆される P2RY14 発現は、DKDにおける炎症性シグナル伝達に関連している可能性がある(図4H, 補足表3).
MC-1とP2RY14の探索的分子ドッキング
GeneCardsおよびDGIdbのスクリーニングを通じて、P2RY14に関連する5つの候補化合物が同定され、探索的な分子ドッキング解析のためにMC-1が選択された(図 5A)。MC-1をリガンド、P2RY14を受容体として用いたドッキング解析により、P2RY14の候補ポケット内におけるMC-1の潜在的な結合ポーズが予測され、Vinaスコアは−6.0 kcal/molであった。予測されたポーズでは、Tyr、Lys、Asn、Asp、およびGlu残基との相互作用と、7つの水素結合の形成が関与していた(図 5B–D)。
データ可用性に関する声明
本研究で使用したデータは公開されています。2011年から2018年の調査サイクルによるNHANESデータは、米国国立保健統計センター(National Center for Health Statistics)から入手可能です。トランスクリプトームデータセットGSE30528、GSE142025、およびGSE30529は、Gene Expression Omnibus (GEO) データベースで公開されています。本研究で作成した処理済みの発現変動解析、機能濃縮解析、およびGSEAの結果は、補足資料に提供されています。
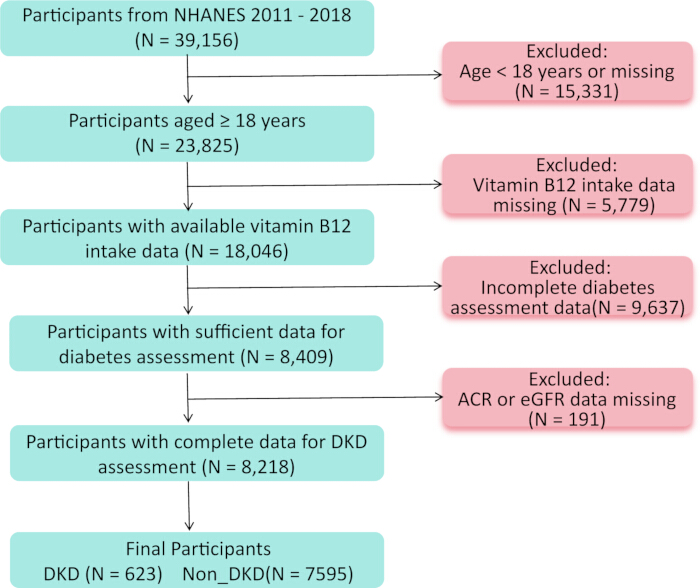
図1: NHANES分析における参加者選定のフローチャート。 2011~2018年のNHANESサイクルから参加者に適用された連続的な除外基準と、分析に含まれた最終的な研究集団をフローチャートで示している。こちらのリンクをクリックして、この図の拡大版を表示してください。
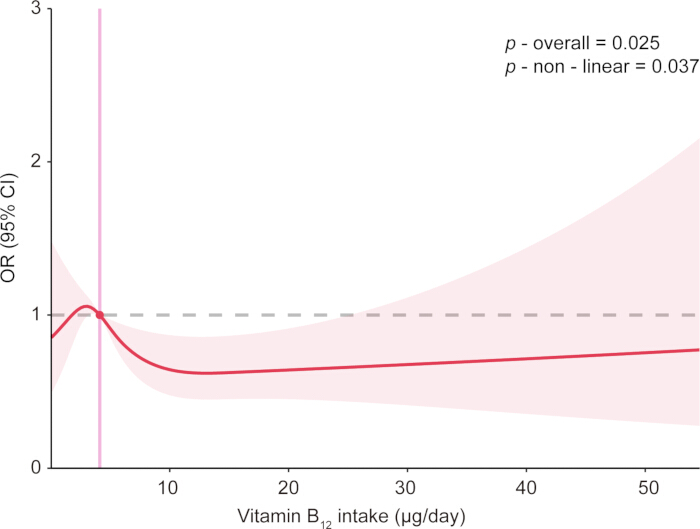
図2ビタミンBとの非線形相関12 制限立方スプラインモデルを用いた、摂取量と糖尿病性腎臓病(DKD)の関連。 実線は、食事からのビタミンB摂取量におけるDKDの推定オッズ比を表している。12 摂取量を示し、網掛け部分は95%信頼区間を表す。モデルは、モデル3に含まれる共変量を用いて調整された。 この図の拡大版を表示するには、ここをクリックしてください。
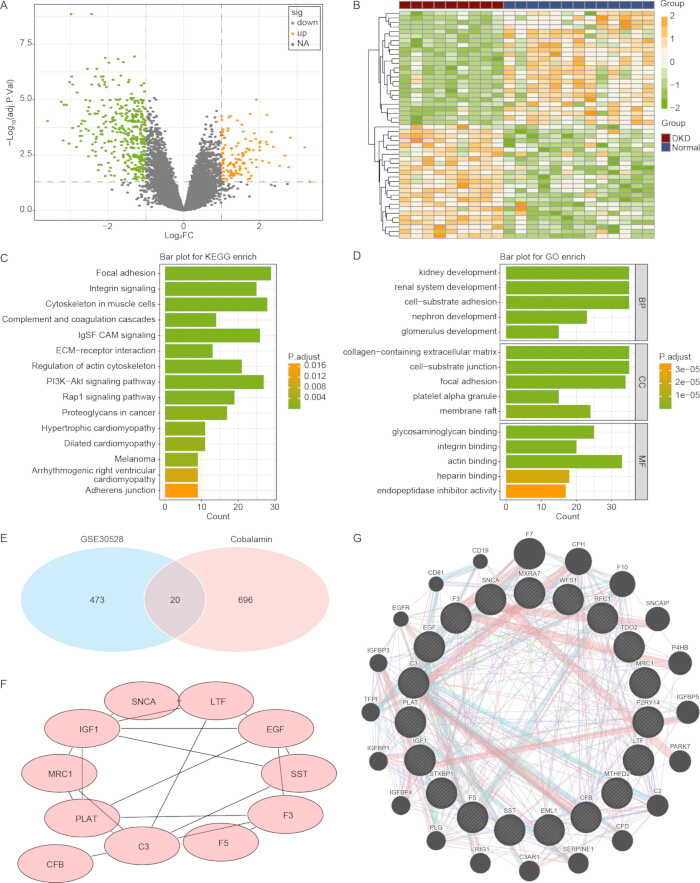
図3: DKDにおけるビタミンB12関連候補遺伝子の同定。(A,B) GSE30528データセットにおける糖尿病性腎症 (DKD) 試料と正常試料間のDEGの発現プロファイルを示すボルケーノプロットおよびヒートマップ。 (C,D) DEGの上位15個の濃縮KEGGパスウェイおよびGO用語。 (E) DEGとビタミンB12関連遺伝子のクロス解析。 (F) タンパク質間相互作用 (PPI) ネットワーク。 (G) 20個のビタミンB12関連遺伝子のGeneMANIAネットワーク。 ここをクリックして、この図の拡大版を表示してください。
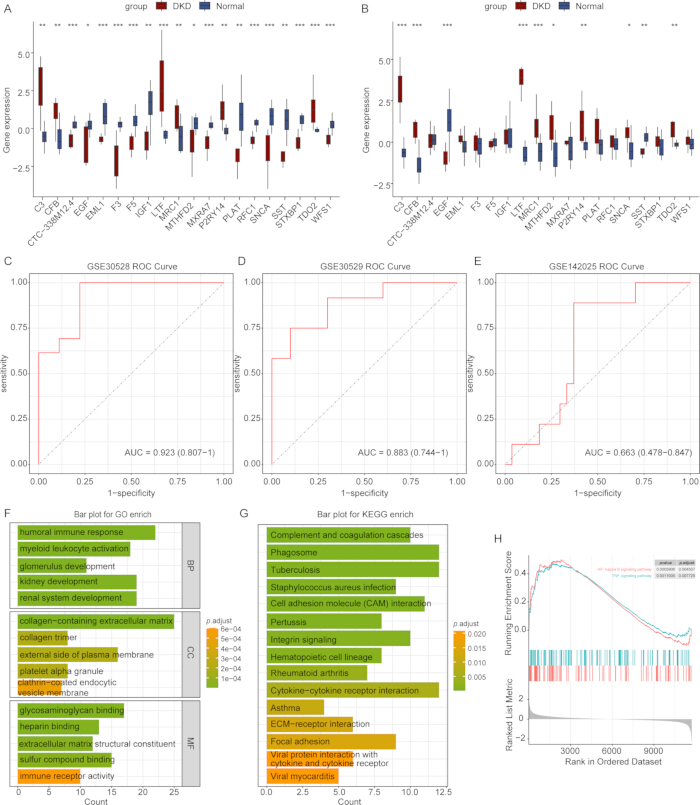
図4~の探索的特性評価 P2RY14 ビタミンB候補として12DKDにおける~関連遺伝子。 (A, B) GSE30528およびGSE30529データセットにおける、糖尿病性腎症(DKD)検体および正常対照群での重複候補遺伝子の発現レベルを示すボックスプロット。C–E)の受信者動作特性(ROC)曲線解析 P2RY14 それぞれGSE30528、GSE30529、およびGSE142025のデータセットにおいて。F) ジーンオントロジー(GO)濃縮分析 (G) Kyoto Encyclopedia of Genes and Genomes (KEGG) パスウェイ濃縮解析。 (HP2RY14高発現群およびP2RY14低発現群のGSEA(遺伝子セット濃縮解析)。NF-κBシグナルの濃縮が示されている。κGSE30528におけるBおよびTNFシグナル伝達経路。 この図の拡大版を表示するには、ここをクリックしてください。
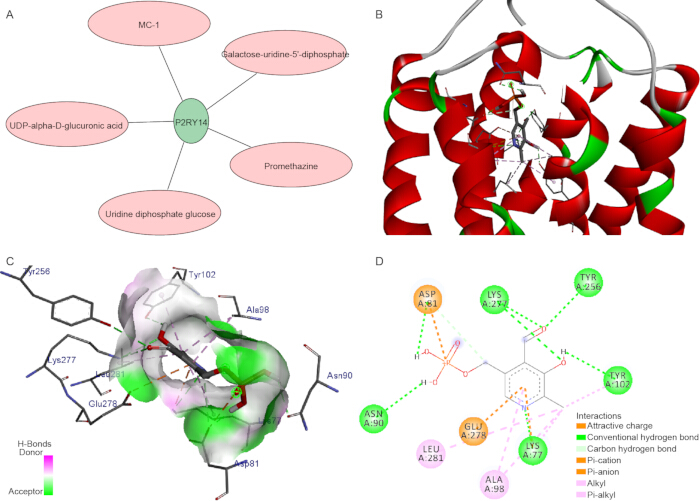
図5の薬物標的スクリーニングおよび探索的分子ドッキング解析 P2RY14. (A)の薬物標的相互作用ネットワーク P2RY14-関連薬。(B–DMC-1の分子ドッキング解析 P2RY14 タンパク質 こちらの図を拡大して表示するには、ここをクリックしてください。
表1:研究集団の基本特性。DKDの状態別の参加者の人口統計学的、臨床的、生化学的、および食事特性を示す。連続変数およびカテゴリ変数は、調査加重分析を用いて要約されている。こちらのリンクから本表をダウンロードしてください。
表2:ビタミンB12摂取量の四分位数別の参加者の基本特性。研究集団の人口統計学的、臨床的、生化学的、および食事特性を、食事によるビタミンB12摂取量の四分位数に分けて提示しています。こちらのリンクをクリックして、この表をダウンロードしてください。
表3:米国成人におけるビタミンB12摂取量とDKDステータスの関連食事によるビタミンB12摂取量とDKDステータスの関連についてのオッズ比(OR)および95%信頼区間(CI)を、段階的に調整したロジスティック回帰モデルで示している。なお、ビタミンB12摂取量の最小四分位(Q1)を対照群とした。こちらのリンクをクリックして本表をダウンロードしてください。
表4:サブグループ解析におけるビタミンB12摂取量とDKDステータスの関連。ビタミンB12摂取量の四分位数に基づき、年齢、性別、BMI、eGFR、ACR、高血圧、高脂血症のサブグループで層別化し、指定されたモデルで調整したDKDのオッズ比(OR)および95%信頼区間(CI)を示す。こちらのリンクから本表をダウンロードしてください。
表 5:ビタミン B12 摂取量と DKD との関連に関する3セグメント区分線形回帰分析。データに基づいた 3.24 および 8.36 μg/day の2つのブレークポイントによって定義された3つの摂取量範囲における、食事性ビタミン B12 摂取量と DKD との関連を示す。こちらをクリックして本表をダウンロードしてください。
補完図1:制限立方スプラインモデルを用いた、食事からのビタミンB12摂取量とDKDとの関連における感度分析。 (A–C) ノット数を3としたモデル。 (D–F) ノット数を5としたモデル。実線は推定ORを示し、網掛け部分は95% CI、破線はOR = 1を示す。各パネルに、全体的な関連性と非線形性のp値が示されている。こちらをクリックしてファイルをダウンロードしてください。
付録表1:GSE30528データセットにおける糖尿病性腎症(DKD)サンプルと正常サンプルの間の発現変動遺伝子。|log₂FC| > 1 かつ FDR < 0.05 で特定された遺伝子の発現変動結果を、候補遺伝子スクリーニングに使用したコバラミン関連遺伝子セットと共に提示している。こちらをクリックしてファイルをダウンロードしてください。
補足表 2:DKDにおける変動遺伝子の機能濃縮解析。GSE30528データセットで同定された変動遺伝子に関するGene Ontology (GO)およびKyoto Encyclopedia of Genes and Genomes (KEGG)の濃縮解析結果を示す。こちらをクリックしてファイルをダウンロードしてください。
補足表 3:GSE30528データセットにおけるP2RY14に関連する機能濃縮および遺伝子セット濃縮解析の結果。P2RY14に関連する生物学的機能およびパスウェイを特徴付けるために用いたGO、KEGG、およびGSEAの結果を示す。こちらのリンクからファイルをダウンロードしてください。
ディスカッション
米国成人8,218人を対象としたこの全国代表的な横断的解析において、ビタミンB12の摂取量が多いことはDKDの発症オッズの低さと関連していましたが、その関連性は単純な線形用量反応パターンには従いませんでした。ビタミンB12の摂取量が多い参加者は、教育水準が高く、高血圧およびDKDの有病率が低く、エネルギー摂取量が多い傾向にありました。これらの差異は、ビタミンB12の摂取がより広範な人口統計学的、健康的、および食事上の特性を伴っている可能性を示唆しており、観察された関連性を解釈する際にはこれらを考慮する必要があります。全体として、本研究の結果は、ビタミンB12の摂取量とDKDの状態との間の関連性を支持するものです。
四分位数に基づく解析の結果、Q4の参加者はQ1の参加者よりもDKDの発症オッズが有意に低かった一方で、Q2およびQ3では有意な関連は認められませんでした。四分位数間の線形トレンドも統計的に有意ではなく(トレンドのp = 0.086)、この関連が単純な線形の用量反応パターンに従っていない可能性が示唆されました。この結果と一致して、RCS解析では有意な非線形関連が示されました(非線形性のp = 0.037)。その後のブレークポイント解析により、データに基づく2つのブレークポイントが 3.24 および 8.36 μg/day に特定されました。有意な負の相関は 3.24–8.36 μg/day の中間範囲内でのみ観察され、この範囲より低い場合および高い場合には有意な関連は認められませんでした。重要な点として、これらのブレークポイントは本データセットから導出されたものであり、臨床的に確立された閾値ではなく、探索的な統計値として扱うべきです。したがって、外部での検証なしに、3.24–8.36 μg/day の区間を最適または推奨される摂取範囲として解釈すべきではありません。全体として、これらの知見は、ビタミンB12摂取量とDKDとの間に、安定した線形の用量反応関係ではなく、非線形な関連が存在する可能性を支持しています。
ビタミンは、多くの代謝プロセスに関与する必須微量栄養素であり、心代謝の健康との関連が報告されています30,31。また、先行研究では、いくつかのビタミンが糖尿病およびその合併症に関連している可能性が示唆されています。例えば、ビタミンB6の状態は糖尿病および糖尿病性合併症と逆相関しており31、一方で、DKDおよび糖尿病性腎症においてビタミンDレベルの変化が報告されています32,33。これらの知見は、糖尿病に関連する代謝異常および腎機能異常における微量栄養素の状態の潜在的な重要性を強調しており、ビタミンB12の摂取量とDKDとの関係をさらに調査する根拠となります。
ビタミンB12の状態または摂取量と糖尿病に関連するアウトカムとの関係について、疫学研究では一貫性のない結果が報告されています。最近のNHANESの分析では、糖尿病の罹患期間と血清ビタミンB12レベルとの間に正の相関があることが報告されました34。対照的に、ウガンダで実施された研究では、T2DM患者における腎疾患の進行に伴い、ビタミンB12の摂取量が低下し、ホモシステイン濃度が上昇することが分かりました35。さらにWuらは、糖尿病および糖尿病性腎症の患者に葉酸とビタミンB12を併用投与したところ、血清ホモシステインおよびマロンジアルデヒドレベルが低下し、一酸化窒素およびスーパーオキシドディスムターゼ活性が上昇し、尿中微量アルブミン排泄量が減少したことを報告しています36。また、他の研究でもT2DM患者においてビタミンB12欠乏症が比較的高い頻度で認められることが報告されています37,38,39,40,41。ビタミンB12の状態が糖尿病合併症に関与している可能性と一致して、本研究では、食事性ビタミンB12摂取量が多いほど、DKDの発症リスクが低いことが示されました。
ビタミンB12摂取量とDKDの間に観察された逆相関は、ホモシステイン代謝、酸化ストレス調節、炎症反応、および細胞エネルギー代謝におけるビタミンB12の役割を考慮すると、生物学的に妥当である可能性があります42,43。また、ビタミンB12欠乏は代謝異常とも関連しており、過剰な葉酸摂取とビタミンB12欠乏が組み合わさった不均衡が、糖代謝の悪化およびT2DMに寄与している可能性があります44,45。これらの観察結果は、代謝機能の健康維持において、適切かつバランスの取れた微量栄養素の摂取を維持することの重要性を強調しています。このような背景と一致して、本研究では、食事からのビタミンB12摂取量が多いほど、DKDの発症リスクが低いことが明らかになりました。今後、糖尿病患者におけるビタミンB12摂取量と腎機能の用量反応関係を明確にし、本研究で観察された摂取範囲を独立した集団で検証し、この集団においてビタミンB12サプリメントの投与が臨床的に有用であるかどうかを判断するためのさらなる研究が必要です。
トランスクリプトーム解析により、DKDに関連する候補遺伝子としてP2RY14がさらに特定されました。P2RY14はGSE30528およびGSE30529において比較的高いAUC値を示しましたが、GSE142025における識別能はより緩やかなものでした。サンプルサイズが限られているため、これらの知見は予備的なものと見なすべきであり、より大規模な独立したコホートでの検証が必要です。さらに、機能濃縮解析により、P2RY14が細胞外マトリックス(ECM)の構築、局在接着、および腎臓の発達に関連している可能性が示唆されており、DKDにおける潜在的な役割についてのさらなる研究を支持しています。
より広範には、集団ベースの栄養疫学とトランスクリプトーム解析を統合することで、食事曝露と疾患関連の分子特性を結びつける補完的な枠組みが提供されます。このようなアプローチは、栄養疫学およびDKD研究における仮説生成を促進し、その後の実験的検証に向けた候補分子ターゲットの優先順位付けに寄与する可能性があります。ただし、これらの知見は探索的なままであり、臨床的、診断的、または治療的な有用性を確立するものではありません。
本研究の主な限界は、Non-DKD群の組成が不均一であることであり、この群にはCKDを伴わないDM患者のみならず、異なるDMおよびCKDの状態にある参加者が含まれていました。そのため、糖尿病の状態、腎機能、および全身状態における残留差が、観察された関連性に影響を与えた可能性があります。さらに、横断的研究デザインであるため、時間的な関係や因果関係を推論することはできません。したがって、疫学的知見はDKDの状態に関連する集団レベルの関連性として解釈されるべきであり、今後は糖尿病患者に焦点を当てた前向き研究が必要です。また、食事によるビタミンB12摂取量は2回の24時間食事回想法から推定されており、日々の食事の変動や思い出し誤差の影響を受ける可能性があるため、習慣的な長期のビタミンB12摂取量を完全に反映していない可能性があります。これにより、ある程度の曝露測定誤差が生じた可能性があります。トランスクリプトーム解析および分子ドッキング解析におけるいくつかの限界についても認める必要があります。NHANESとGEOのデータは独立した集団から得られたものであり、ビタミンB12によるP2RY14の直接的な調節は実験的に評価されていません。DKD関連のDEGとコバラミン関連遺伝子の重複は探索的な候補スクリーニングに用いられましたが、それがランダムな期待値を上回って濃縮されているかは正式に検証されていません。したがって、P2RY14は仮説を生成するための候補として見なされるべきであり、その生物学的妥当性についてはさらなる検証が必要です。加えて、MC-1とP2RY14の予測された相互作用は分子ドッキングのみに基づいており、探索的なものと考えるべきです。これらの予測された関係をさらに評価するためには、ビタミンB12介入、P2RY14の機能解析、および表面プラズモン共鳴やマイクロスケール熱泳動法などの直接結合または受容体機能アッセイを組み込んだ今後の研究が必要です。
結論
結論として、本研究はビタミンB12の摂取量とDKDの状態との関連性を支持しており、ビタミンB12の摂取量が多いほどDKDのオッズが低くなり、潜在的な非線形関係があることが示されました。さらに、トランスクリプトーム解析により、DKDに関連する仮説生成候補としてP2RY14が同定され、探索的な分子ドッキングにより、P2RY14とMC-1の間の潜在的な結合 様式が予測されました。これらの知見は、ビタミンB12摂取量とDKDの関係、およびP2RY14の潜在的な生物学的関連性をさらに調査するための基礎となるものです。
開示事項
著者に宣言すべき利益相反はありません。
著者貢献:
A.Z.が原稿の本文を執筆した。G.Z.およびJ.D.が図表を作成した。J.L.が原稿を校閲および 編集した。すべての著者が原稿を校閲した。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Affymetrix Human Genome U133A 2.0 アレイ | Affymetrix; NCBI GEOにより索引付け済み | プラットフォーム: GPL571 プラットフォーム名: Affymetrix Human Genome OpenAccess I プラットフォームの概要: このプラットフォームは、Affymetrix社によって開発されたHuman Genome OpenAccess Iマイクロアレイであり、ヒトゲノムの広範な解析を目的として設計されています。このアレイは、遺伝子発現プロファイリングに使用される標準的なプローブセットを含んでおり、多様な組織や細胞の状態における転写産物の定量的な測定を可能にします。 | GPL571 (HG-U133A_2) |
| AlphaFold | Google DeepMind / EMBL-EBI | https://alphafold.ebi.ac.uk/ | / |
| AutoDock | オルソン研究室、スクリプス研究所 | https://autodock.scripps.edu/ | バージョン 4.2.6 (AutoDock 4.2.6) |
| 自己調節(オートレグ) | Rパッケージ | バージョン 0.3.3 (autoReg) | |
| CB-dock2 | / | http://183.56.231.194:8001/cb-dock2/index.php | CB-dock2 |
| clusterProfiler | Bioconductor; Yu et al. | バージョン 4.8.3 (PMID: 22455463) | |
| Cytoscape | Cytoscape コンソーシアム | https://cytoscape.org/ | バージョン 3.7.2 (PMID: 14597658) |
| DGldb | / | https://dgib.org/ | DGldb |
| GeneMANIA | GeneMANIAチーム | http://genemania.org/ | GeneMANIA |
| Gene Expression Omnibus (GEO) | 米国国立医学図書館、国立生物工学情報センター (NCBI) | https://www.ncbi.nlm.nih.gov/geo/ | 遺伝子発現オムニバス(Gene Expression Omnibus) |
| GSE30528 | NCBI GEO | **GEO データセット GSE30528** **タイトル:** ヒト肺扁桃における正常および嚢胞性線維症(CF)組織の遺伝子発現プロファイル **概要:** 本研究では、正常対照群および嚢胞性線維症(CF)患者の肺扁桃組織を用いて、マイクロアレイに基づく遺伝子発現解析を実施した。これにより、CFにおける炎症反応、粘液分泌の異常、および免疫応答に関連する遺伝子発現の変化を明らかにすることを目的としている。 **サンプル:** - 正常肺組織(対照群) - 嚢胞性線維症(CF)肺組織 **プラットフォーム:** GPL570 [HG-U133_PN_HGPUArray] Affymetrix Human Genome U133 Plus 2.0 Array **キーワード:** 嚢胞性線維症, 肺扁桃, 遺伝子発現プロファイル, マイクロアレイ解析, 炎症, 呼吸器疾患 | 公開GEOシリーズ (GSE30528; BioProject PRJNA154757) |
| GSE30529 | NCBI GEO | **サンプル名:** GSE30529 **タイトル:** 妊娠期の胎盤におけるp53シグナル伝達経路の解析 **要約:** 本研究では、p53シグナル伝達経路が正常なヒト胎盤の発達および機能にどのように寄与しているかを調査した。p53およびその下流標的遺伝子の発現レベルを、妊娠期間の異なる段階にある胎盤組織において解析した。また、p53の活性化が胎盤の細胞死および細胞周期制御に及ぼす影響を評価した。 **キーワード:** 胎盤, p53, シグナル伝達, 遺伝子発現, 妊娠, アポトーシス **プラットフォーム:** GPL570 [HG-AFFY-U133_C-GPL_570] **サンプル詳細:** - **組織:** 胎盤(Placenta) - **種:** *Homo sapiens* - **実験条件:** 正常妊娠における異なる妊娠週数のサンプリング | 公開GEOシリーズ (GSE30529) |
| GeneCards – ヒト遺伝子データベース | ワイツマン科学研究所 / LifeMap Sciences | https://www.genecards.org/ | GeneCards |
| GSEA / MSigDB | / | https://www.gsea-msigdb.org/gsea/index.jsp | v2025.1.Hs (GSEA / MSigDB) |
| ジーンオントロジー (GO) | ジーンオントロジーコンソーシアム | https://geneontology.org/ | GO |
| 京都遺伝子ゲノム百科事典 (KEGG) | Kanehisa Laboratories | https://www.kegg.jp/ | KEGG |
| limma | Bioconductor; Ritchie et al. | バージョン 3.56.2 (PMID: 25605792) | |
| 国民健康栄養調査(NHANES) | アメリカ疾病予防管理センター(CDC)国立衛生統計センター(NCHS) | http://www.cdc.gov/nchs/nhanes/index.htm | 2011–2018年(2011年から4サイクル)–2012; 2013–2014; 2015–2016; 2017–2018) |
| nhanesA | Rパッケージ | バージョン 1.0 (nhanesA) | |
| pROC | Rパッケージ | バージョン 1.18.5 (pROC) | |
| PubChem | NCBI、米国国立医学図書館 | https://pubchem.ncbi.nlm.nih.gov/ | PubChem |
| 二乗平均平方根 | Rパッケージ | バージョン 8.1-0 (rms) | |
| Rソフトウェア | R Foundation for Statistical Computing | https://www.r-project.org/ | バージョン 4.4.1 |
| 分節化された | Rパッケージ | バージョン 2.1-4(セグメント化) | |
| 提供されたテキストがありません。翻訳する英文をご提示ください。 | STRINGコンソーシアム | https://string-db.org/ | バージョン 11.0 (PMID: 30476243) |
| 調査 | Rパッケージ | バージョン 4.4-8 (survey; svydesign(); svyglm()) | |
| 表1 | Rパッケージ | tableone; svyCreateTableOne() |
参考文献
- Forst T, et al. New strategies to improve clinical outcomes for diabetic kidney disease. BMC Med. 2022;20(1):337.
- Zheng Y, Ley SH, Hu FB. Global aetiology and epidemiology of type 2 diabetes mellitus and its complications. Nat Rev Endocrinol. 2018;14(2):88-98.
- Zhang Y, Sun X, Icli B, Feinberg MW. Emerging Roles for MicroRNAs in Diabetic Microvascular Disease: Novel Targets for Therapy. Endocr Rev. 2017;38(2):145-68.
- Lyssenko V, Vaag A. Genetics of diabetes-associated microvascular complications. Diabetologia. 2023;66(9):1601-13.
- Valencia WM, Florez H. How to prevent the microvascular complications of type 2 diabetes beyond glucose control. BMJ. 2017;356:i6505.
- Hung PH, Hsu YC, Chen TH, Lin CL. Recent Advances in Diabetic Kidney Diseases: From Kidney Injury to Kidney Fibrosis. Int J Mol Sci. 2021;22(21).
- McGrath K, Edi R. Diabetic Kidney Disease: Diagnosis, Treatment, and Prevention. Am Fam Physician. 2019;99(12):751-9.
- Lin YC, Chang YH, Yang SY, Wu KD, Chu TS. Update of pathophysiology and management of diabetic kidney disease. J Formos Med Assoc. 2018;117(8):662-75.
- Sabanayagam C, et al. Association of Diabetic Retinopathy and Diabetic Kidney Disease With All-Cause and Cardiovascular Mortality in a Multiethnic Asian Population. JAMA Netw Open. 2019;2(3):e191540.
- Saran R, et al. US Renal Data System 2018 Annual Data Report: Epidemiology of Kidney Disease in the United States. Am J Kidney Dis. 2019;73(3 Suppl 1):A7-A8.
- Miller RG, et al. Contemporary Estimate of Total Mortality and Cardiovascular Disease Risk in Young Adults With Type 1 Diabetes: The Pittsburgh Epidemiology of Diabetes Complications Study. Diabetes Care. 2016;39(12):2296-303.
- Lyon P, Strippoli V, Fang B, Cimmino L. B Vitamins and One-Carbon Metabolism: Implications in Human Health and Disease. Nutrients. 2020;12(9).
- Chazot C, Steiber AL, Kopple JD. Chapter 26 - Vitamin metabolism and requirements in chronic kidney disease and kidney failure. In: Kopple JD, Massry SG, Kalantar-Zadeh K, Fouque D, editors. Nutritional Management of Renal Disease (Fourth Edition): Academic Press; 2022. p. 413-65.
- Shakoor H, et al. Be well: A potential role for vitamin B in COVID-19. Maturitas. 2021;144:108-11.
- Green R, et al. Vitamin B(12) deficiency. Nat Rev Dis Primers. 2017;3:17040.
- Capelli I, et al. Folic Acid and Vitamin B12 Administration in CKD, Why Not Nutrients. 2019;11(2).
- Bamonti-Catena F, et al. Folate measurements in patients on regular hemodialysis treatment. Am J Kidney Dis. 1999;33(3):492-7.
- Andres E, Serraj K, Zhu J, Vermorken AJ. The pathophysiology of elevated vitamin B12 in clinical practice. QJM. 2013;106(6):505-15.
- Soohoo M, et al. Association of serum vitamin B12 and folate with mortality in incident hemodialysis patients. Nephrol Dial Transplant. 2017;32(6):1024-32.
- Zhang H, Liu N, Dang H. Association of the Controlling Nutritional Status (CONUT) score with all-cause and cause-specific mortality in patients with diabetic kidney disease: evidence from the NHANES 2009-2018. BMJ Open. 2024;14(4):e079992.
- Rahman HH, Niemann D, Munson-McGee SH. Association of albumin to creatinine ratio with urinary arsenic and metal exposure: evidence from NHANES 2015-2016. Int Urol Nephrol. 2022;54(6):1343-53.
- Phillips JA. Dietary Guidelines for Americans, 2020-2025. Workplace Health Saf. 2021;69(8):395.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. Omics : a journal of integrative biology. 2012;16(5):284-7.
- Szklarczyk D, et al. STRING v11: protein-protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 2019;47(D1):D607-D13.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome research. 2003;13(11):2498-504.
- Zhao L, et al. Non-linear association between composite dietary antioxidant index and depression. Front Public Health. 2022;10:988727.
- da Silva Ebone R, Doleski PH, Jantsch MH, da Silveira RP, Leal DBR. P2Y14 receptor activation and neutrophil signaling: linking inflammation to systemic pathophysiology. Purinergic Signal. 2026;22(1):5.
- Lazarowski ER, Harden TK. UDP-Sugars as Extracellular Signaling Molecules: Cellular and Physiologic Consequences of P2Y14 Receptor Activation. Mol Pharmacol. 2015;88(1):151-60.
- Survase S, Bajaj I, Singhal R. Biotechnological Production of Vitamins. Food Technology and Biotechnology. 2006;44.
- Mascolo E, Verni F. Vitamin B6 and Diabetes: Relationship and Molecular Mechanisms. Int J Mol Sci. 2020;21(10).
- Delrue C, Speeckaert R, Delanghe JR, Speeckaert MM. The Role of Vitamin D in Diabetic Nephropathy: A Translational Approach. Int J Mol Sci. 2022;23(2).
- Wang H, et al. In vitro and in vivo inhibition of mTOR by 1,25-dihydroxyvitamin D(3) to improve early diabetic nephropathy via the DDIT4/TSC2/mTOR pathway. Endocrine. 2016;54(2):348-59.
- Raizada N, Jyotsna VP, Sreenivas V, Tandon N. Serum Vitamin B12 Levels in Type 2 Diabetes Patients on Metformin Compared to those Never on Metformin: A Cross-sectional Study. Indian J Endocrinol Metab. 2017;21(3):424-8.
- Kibirige D, Mwebaze R. Vitamin B12 deficiency among patients with diabetes mellitus: is routine screening and supplementation justified J Diabetes Metab Disord. 2013;12(1):17.
- Wu HHL, Wang AY. Vitamin B12 and chronic kidney disease. Vitam Horm. 2022;119:325-53.
- Kumthekar AA, Gidwani HV, Kumthekar AB. Metformin associated B12 deficiency. J Assoc Physicians India. 2012;60:58-60.
- Nervo M, et al. Vitamin B12 in metformin-treated diabetic patients: a cross-sectional study in Brazil. Rev Assoc Med Bras (1992). 2011;57(1):46-9.
- Bell DS. Metformin-induced vitamin B12 deficiency presenting as a peripheral neuropathy. South Med J. 2010;103(3):265-7.
- Pflipsen MC, et al. The prevalence of vitamin B(12) deficiency in patients with type 2 diabetes: a cross-sectional study. J Am Board Fam Med. 2009;22(5):528-34.
- Liu KW, Dai LK, Jean W. Metformin-related vitamin B12 deficiency. Age Ageing. 2006;35(2):200-1.
- Halczuk K, Kazmierczak-Baranska J, Karwowski BT, Karmanska A, Cieslak M. Vitamin B12-Multifaceted In Vivo Functions and In Vitro Applications. Nutrients. 2023;15(12).
- Mohan A, Kumar R, Kumar V, Yadav M. Homocysteine, Vitamin B12 and Folate Level: Possible Risk Factors in the Progression of Chronic Heart and Kidney Disorders. Curr Cardiol Rev. 2023;19(4):e090223213539.
- Krishnaveni GV, Veena SR, Karat SC, Yajnik CS, Fall CH. Association between maternal folate concentrations during pregnancy and insulin resistance in Indian children. Diabetologia. 2014;57(1):110-21.
- Yajnik CS, et al. Vitamin B12 and folate concentrations during pregnancy and insulin resistance in the offspring: the Pune Maternal Nutrition Study. Diabetologia. 2008;51(1):29-38.