本研究では、Transwell共培養と3D腫瘍スフェロイドを組み合わせた簡便な多細胞in vitro血液腫瘍関門(BTB)モデルを構築し、乳がんの脳転移の研究および標的治療法のスクリーニングに有用な生理学的プラットフォームを提供します。
方法論記事
乳がんの脳転移における簡略化された多細胞in vitro血液腫瘍関門モデル構築のための細胞培養インサートを用いたプロトコール
* These authors contributed equally
この記事について
サマリー
要約
乳がん脳転移(BCBM)に対する有効な治療法は依然として限られており、その主な要因は、血液腫瘍関門(BTB)が中枢神経系内の転移病変への多くの化学療法剤や標的薬剤の浸入を制限しているためである。この複雑な微小環境の特定の特徴をin vitroでモデル化するため、本研究では、簡略化した多細胞三次元BTBモデルを構築するための標準化されたプロトコルを提示する。本手法は3つの主要なステップで構成される。まず、孔径0.4 μmのセルカルチャーインサートを用いて、血液脳関門(BBB)コンパートメントを構築する。多孔質膜の基底側にヒト脳微小血管内皮細胞(HBMECs)を播種し、その1日後に、頂端側にヒトアストロサイト(HA)および ヒトミクログリアHMC3細胞(HMC3)を播種する。乳がん細胞の例としてSK-BR-3細胞を用い、吊り滴法で培養することで、3日間の培養後に均一で規則的な形状の3D腫瘍スフェロイドを形成させる。その後、スフェロイドを基底膜マトリックスでコーティングした多孔質膜の頂端側へ転移させる。これにより、共培養中に物理的な分離を維持しつつ、関門細胞と腫瘍スフェロイド間の化学的な相互作用を可能にする。本プラットフォームは、実験タイムラインの精密な制御を可能にし、内皮関門の完全性と細胞間透過性の評価を可能にすると同時に、腫瘍周囲の反応性応答と一致するアストロサイトの形態学的およびマーカーの変化を再現する。
概要
脳転移は、乳がんや肺がんを含む様々な悪性固形がんの後期における一般的な合併症である1,2。その予後は極めて不良であり、治療法は限られている1,2。健康な中枢神経系において、血液脳関門(BBB)は、主に密に結合した脳微小血管内皮細胞によって形成される高度に分化した動的な界面であり、その完全性と機能は、血管基底膜およびペリサイト、アストロサイト、ニューロン、ミクログリア、オリゴデンドロサイト系細胞、ならびに神経血管ユニット(NVU)の他の構成要素との協調的な相互作用によって維持されている3。内皮細胞間のタイトジャンクションと周辺のグリア細胞の助けにより、外来物質の中枢神経系への侵入が厳格に制限されている4。乳がん細胞が脳に転移して定着すると、脳転移病変が拡大し、局所的な低酸素状態が増加し、炎症シグナルが強まり、神経血管ユニット(NVU)が再構築され、次第に血液腫瘍関門(BTB)が形成される5。BTBの局所的な透過性はBBBよりも高いものの、分子サイズによる透過性の違いや血流灌流の不均一性が相まって、脳腫瘍への薬物蓄積は不十分となる6。したがって、BTBの生物学的特性を理解し、この関門を通過できるデリバリー戦略を開発することが、神経腫瘍学における重要な優先課題となっている。
現在まで、血液脳関門(BTB)の特性および形質転換メカニズムは部分的にしか記述されておらず、乳がん脳転移(BCBM)に対する効果的な薬剤の選択肢は臨床現場において依然として限られています。課題の一つは、脳転移由来の臨床サンプルの入手が困難であること、ならびに既存のBTBモデルの入手可能性が低く、機能的な特性評価が不十分であることです。In vivo動物モデル、特にマウスモデル7,8は、BTB研究において広く利用され続けています。しかし、これらのモデルには、種差、低スループット、標準化および再現性の困難さなどの限界があり、メカニズムの研究や薬剤開発の妨げとなる可能性があります9,10。加えて、現在のin vitro BTBモデルでは、一般的にセルカルチャーインサートシステムやマイクロ流体チップを用いて、腫瘍細胞とバリア関連細胞を共培養する方法が用いられています。
既存のモデルは腫瘍の三次元構造を欠いていることが多く、そのため、細胞密度勾配、低酸素・壊死領域、制限された分子拡散、不均一な細胞分布など、脳転移に関連する空間的特徴の再現には限界があります11,12。明確な三次元腫瘍成分を導入するため、我々はシンプルで再現性が高く、スクリーニングへの適用が可能なスフェロイドモデルを採用しました。これに基づき、簡略化した多細胞ヒトin vitro BBBコンパートメントを開発し、それを腫瘍スフェロイドと統合することで、脳転移微小環境の特定の構造的および細胞的特徴を捉えた簡略化BTBモデル(図1A)を構築しました。このモデルは操作が容易で、バリア機能の定量的な測定をサポートし、腫瘍に関連するアストロサイトおよびミクログリア集団の空間的変化の可視化を可能にします。
本プロトコルでは、細胞の調製と播種から、腫瘍スフェロイドの生成、基底膜マトリックスのオーバーレイ、対応するコントロールの調製、およびスフェロイドの移送に至るまでの重要な手順を詳細に説明し、この簡略化されたBTBモデルを構築するための標準化されたワークフローを提供します。
プロトコル
本研究はヘルシンキ宣言の原則に準拠して実施され、大連医科大学第二附属病院の倫理委員会によって承認されました(承認番号:JW2026-019-01)。患者に関するすべてのデータは、解析前に匿名化されました。本プロトコルで使用した研究ツールは、材料表に記載されています。
1. 血液脳関門 (BBB) モデルの作製
- 一般要件
- すべての操作は、滅菌済みのラミナーフローキャビネット内で行い、無菌操作を厳守すること。
- 孔径0.4 µm、有効膜面積1.12 cm2のPETメンブレンを備えた12ウェル細胞培養インサートを使用する。
- コラーゲンタイプIコーティング
- 各培養フラスコまたはディッシュに1–2 mLのコラーゲンタイプIコーティング溶液を加え、底面に均一に広げる。
- 各細胞培養インサートの頂端側(apical side)に200 µL、基底側(basal side)に800 µLのコーティング溶液を加える。プレートを穏やかに揺らし、メンブレンの下に気泡が入らないようにしながら、メンブレン全体に溶液を接触させる。
- コーティングした容器およびインサートを37 °C、5% CO₂条件下で1時間インキュベートする。コーティング溶液を除去し、PBSで2回洗浄する。
- コーティング済みのフラスコ、ディッシュ、および細胞培養インサートは37 °C、5% CO₂条件下で維持し、3日以内に使用すること。使用直前にPBSで1回すすぐ。
- 細胞培養前に、HBMECおよびHAの培養容器をコラーゲンタイプIでコーティングする。HMC3-RFP細胞にはコラーゲンタイプIコーティングは不要である。
- コラーゲンタイプIコーティング溶液の調製
- 氷酢酸60 µLを超純水50 mLに溶解し、4 °Cで冷却する。
注意:氷酢酸は腐食性がある。手袋、白衣、保護メガネを含む適切な個人用保護具を着用し、化学薬品用ドラフトチャンバー内で取り扱うこと。酢酸廃棄物は、施設の化学廃棄物処理手順に従って廃棄すること。 - 溶液を0.22 µmのシリンジフィルターでろ過し、コラーゲンタイプI(9.45 mg/mL)を500 µL加えて十分に混合し、使用時まで4 °Cで保存する。
- 氷酢酸60 µLを超純水50 mLに溶解し、4 °Cで冷却する。
- 細胞の調製
- HBMEC、HA、およびHMC3-RFP細胞を、使用前にコンフルエンシーが80%–90%になるまで培養する。
注意:ヒト由来の細胞株およびヒト組織関連材料は、潜在的なバイオハザードとして取り扱うこと。施設のバイオセーフティー手順に従い、適切な個人用保護具を着用すること。汚染された培養材料はバイオハザード廃棄物として廃棄すること。
- HBMEC、HA、およびHMC3-RFP細胞を、使用前にコンフルエンシーが80%–90%になるまで培養する。
- 0日目のHBMECの播種
- リコンビナントトリプシン様プロテアーゼ(1×)を用いてHBMECを剥離し、細胞を遠心分離した後、ペレットを再懸濁して単一細胞懸濁液を得る。
- 細胞密度を測定し、細胞培養インサート1つあたり120 µL中に1.5 × 10⁵ 個のHBMECが含まれるように懸濁液を調整する。
- プレートを反転させ、多孔質メンブレンの基底側にHBMEC懸濁液120 µLを分注する。播種時に気泡が形成されないように注意する(図1B)。
- ウェルに蓋をし、12ウェルプレートを反転させた状態で6時間インキュベートする。
- プレートを正立に戻し、上部チャンバーに200 µL、下部チャンバーに800 µLのECM完全培養培地をそれぞれ加え、インキュベーションを継続する。
- 1日目のHAおよびHMC3-RFP細胞の播種
- HA細胞はリコンビナントトリプシン様プロテアーゼ(1×)で、HMC3-RFP細胞は0.25% trypsin-EDTAで剥離する。2種類の細胞をそれぞれ遠心分離し、再懸濁する。
- 細胞密度を測定し、細胞培養インサート1つあたりに対して、HA細胞2.0 × 10⁵ 個とHMC3-RFP細胞4.0 × 10³ 個を混合する。
- 混合した細胞を遠心分離し、上澄みを除去して、混合完全培地(AM完全培地:MEM完全培地 = 5:1)200 µLでペレットを再懸濁する。気泡が入らないように注意しながら、200 µLの懸濁液を上部チャンバーに均一に加える(図1B)。
- 下部チャンバーにECM完全培養培地800 µLを加え、プレートを正立させた状態でインキュベーターに入れ、毎日培地を交換する。
2. 3次元腫瘍スフェロイドの調製
- SK-BR-3細胞の調製
- スフェロイド形成に進む前に、SK-BR-3細胞をコンフルエンスが80%–90%になるまで培養する。
- 0.25% trypsin-EDTAでSK-BR-3細胞を剥離し、遠心分離した後、ペレットを再懸濁して単一細胞懸濁液を得る。
- 細胞密度を測定し、30 µLのドロップ1つあたり2 × 10⁴ 個の細胞が含まれるように懸濁液を調整する。
- 吊り滴法の形成
- 10 cmの細胞培養ディッシュを逆さまにし、細胞懸濁液を30 µLずつディッシュの蓋の上に分注する。蓋1枚につき約20滴を配置する。
- ディッシュの底部を被せ、組み立てたディッシュを速やかに反転させる(図1B)。液滴が蓋から垂れたり、形状が崩れたりした場合は、再度ドロップを調製する。
- スフェロイドの培養
- ディッシュに5 mLのPBSを加え、インキュベーターに入れる。培養開始から2日間はディッシュを動かさない。
- 長期培養の場合、2日ごとに各ドロップに10 µLの完全培地を加える。
- ピペットチップを用いて、各ドロップの端から培地を添加し、腫瘍スフェロイドに接触しないようにする。
3. 簡略化血液腫瘍関門(BTB)モデルの作製
- 材料の準備
- 必要な細胞培養容器および細胞培養インサート(PETメンブレン、孔径 0.4 µm)をコラーゲンタイプIでコーティングし、使用までインキュベーターで保持する。
- 200 µL ピペットチップの先端をハサミで切断し、修正したチップをオートクレーブで滅菌する。
- モデルの構築
- 0–1日目:前述の手順に従い、BBBモデルを構築し、腫瘍スフェロイドを調製する。
- 2日目:基底膜マトリックスを氷上で融解させる。両方のチャンバーから培地を除去し、PBSで洗浄する。
- 下部チャンバーに ECM 完全培地 800 µL を、上部チャンバーに融解した基底膜マトリックス 30 µL を添加する。基底膜マトリックスを多孔質メンブレン上に均一に広げる。
- プレートを 37 °C で 20 分間インキュベートした後、混合完全培地(AM:MEM = 5:1) 200 µL を上部チャンバーの側壁に沿ってゆっくりと添加する。プレートをインキュベーターに戻す(図 1B)。
- 基底膜マトリックスは氷上に保持し、迅速に操作する。基底膜マトリックスを吸引する際は、あらかじめ冷却したピペットチップを使用する。
- スフェロイド非含有/基底膜マトリックスの一致コントロール
- BTB条件と同じ基底膜マトリックス量(30 µL)、培地組成、洗浄手順、インキュベーション時間、および日々の培地交換スケジュールを用いてコントロールインサートを調製するが、3日目の腫瘍スフェロイドの移送は省略する。これにより、一致コントロールは、基底膜マトリックスへの曝露や取り扱いではなく、腫瘍スフェロイドの有無のみがBTB条件と異なることになる。
- 3日目の腫瘍スフェロイドの移送
- 正立顕微鏡下で腫瘍スフェロイドを観察し、形状が整っており、コンパクトなスフェロイドが形成されていることを確認する。
- 切断済みピペットチップを用いて腫瘍スフェロイドを 1.5 mL マイクロ遠心チューブに吸引し、PBSで2回洗浄する。スフェロイドが崩壊しないよう、優しく扱う。
- 下部チャンバーの培地を交換し、上部チャンバーから培地を除去する。
- 切断済みピペットチップを用いて、各上部チャンバーに腫瘍スフェロイドを5個ずつ移送する。
- 上部チャンバーに混合完全培養培地(AM:MEM = 5:1) 200 µL を添加し、プレートを軽く揺らしてスフェロイド同士が接触または融合するのを防ぐ(図 1B)。
- プレートをインキュベーターで保持し、毎日培地を交換する。
- サンプルの回収
- 7日目に、以降の実験のためにサンプルを回収する。または、実験の要件に応じて回収時間を調整する。
4. 経内皮電気抵抗(TEER)の測定
- 電極の調製
- TEERメーターをフル充電し、箸型電極を75%エタノールに15分間浸してください。
注意: エタノールは可燃性です。75%エタノールは、裸火、火花、およびその他の点火源から遠ざけ、施設内の化学物質安全手順に従って取り扱ってください。 - バイオセーフティキャビネットを30分間紫外線照射し、滅菌を行う。電極を直接紫外線照射しないこと。
- 電極をエタノールから取り出し、PBS中で15分間平衡化した後、無菌条件下で乾燥させる。
- TEERメーターをフル充電し、箸型電極を75%エタノールに15分間浸してください。
- 細胞培養インサートの平衡化
- 細胞培養インサートが入った12ウェルプレートをインキュベーターから取り出し、測定前に室温で15分間静置する。
- 抵抗測定
- 以下のものを用いて、細胞を含まないブランクのセルカルチャーインサートを調製する 200 µL および 800 µL それぞれ、上室および下室に同一の完全培地を充填する。
- 多孔性メンブレンやウェル底面に触れないよう、箸状電極を細胞培養インサートの縁に沿って静かに挿入します。
- 電極をPBSで洗浄し、乾燥させる。同一の手順で細胞を含む各インサートを測定し、抵抗値をRとして記録する。₍測定済み₎.
- TEER計算
- 次の公式を用いて、経内皮電気抵抗(TEER)値を算出してください。13:
TEER(経上皮電気抵抗)Ω·cm²) = (R(測定した) − R((入力がありません。翻訳するテキストをご提供ください。)) × S (1.1) - R(測定した) 細胞層を含む多孔性膜の電気抵抗は(Ω); R((入力が空です。翻訳するテキストを提供してください。)) セルフリー多孔質膜の両端における抵抗は(Ω); また、Sは有効膜面積(cm²)です。2)。本研究で使用した有効膜面積は1.12 cm²である。2.
- 次の公式を用いて、経内皮電気抵抗(TEER)値を算出してください。13:
5. FITC-デキストラン細胞間透過性アッセイ(アピカル側からバザール側方向)
- FITC-dextranの調製
- 実験前に2 mg/mLのFITC-dextran(4 kDa)作動溶液を調製し、遮光して保存する。
- アッセイ方向の解釈
- HBMECはメンブレンの基底面に接着しており、アストロサイト、ミクログリア、および腫瘍スフェロイドは頂端コンパートメントに位置するため、本アッセイは頂端から基底方向へのパラセルラーバリア完全性の読み出しとして解釈する。
注意: 全身曝露を模倣することを目的とした研究では、FITC-dextranまたは被験化合物を下層(基底面)の内皮細胞側コンパートメントに導入し、個別にバリデーションされたサンプリングスキームおよびPapp算出法を用いて、上層(頂端面)コンパートメントからサンプルを回収すること。
- HBMECはメンブレンの基底面に接着しており、アストロサイト、ミクログリア、および腫瘍スフェロイドは頂端コンパートメントに位置するため、本アッセイは頂端から基底方向へのパラセルラーバリア完全性の読み出しとして解釈する。
- 洗浄および平衡化
- 両方のチャンバーからすべての培地を除去する。あらかじめ温めておいたグルコースフリーDMEM基礎培地を、上層チャンバーに400 µL、下層チャンバーに1 mLそれぞれ加え、穏やかに1回洗浄した後、培地を捨てる。
- 新鮮な温めたグルコースフリーDMEM基礎培地を、上層チャンバーに400 µL、下層チャンバーに1 mLそれぞれ加える。37 °C、5% CO₂条件下で15分間平衡化し、その後すべての液体を吸引除去する。
- 透過性の測定
- 頂端側に2 mg/mL FITC-dextran作動溶液を200 µL、下層チャンバーにグルコースフリーDMEM基礎培地を800 µL加える。37 °C、5% CO₂条件下、暗所にて30分間インキュベートする。
- 30分後、各実験用インサートの下層チャンバーから100 µLの培地を回収する。各インサートから3つの分注量を黒色の96ウェルプレートに移し、遮光して保存する。
- FITC-dextran標準曲線の作成
- 0、0.5、1.0、および1.5 mg/mLのFITC-dextran標準溶液を調製する。各標準溶液100 µLを黒色96ウェルプレートに3連で加え、プレートを遮光する。
- 蛍光測定およびPappの算出
- 多機能マイクロプレートリーダーを用い、励起波長492 nm、蛍光波長520 nmで蛍光強度を測定する。データを記録し、以下の式14を用いて見かけの透過係数(Papp)を算出する。
- まず、FITC-dextran標準溶液の濃度(C)を対応する蛍光強度(A)に対して線形近似し、標準曲線を作成する:
A = kC + b (1.2) - ここで、kは標準曲線の傾き、bは切片を表す。
- 次に、時刻tで測定したサンプルの蛍光強度(At)を標準曲線式に代入し、時刻tにおける基底側のFITC-dextran濃度(Ca)を求める。その後、Caを以下の式に代入してPapp (cm/s)を算出する:
- Papp = (Ca × Va)/(t × S × C0) (1.3)
- ここで、Vaは基底側の全量(mL)、tは透過時間(s)、Sは多孔質メンブレンの有効面積(cm2)、C₀は頂端側の初期濃度である。
6. 免疫蛍光染色
- 固定、洗浄、および透過処理
- 細胞培養インサートからすべての培地を除去し、PBSで2回洗浄した後、残液をすべて吸引する。
- 上室に200 µL、下室に800 µLの4% パラホルムアルデヒドをそれぞれ加え、4 °Cで一晩固定する。
注意:パラホルムアルデヒドは有害であるため、手袋、白衣、および保護メガネを着用し、認定された化学ドラフトチャンバー内で取り扱うこと。パラホルムアルデヒドの廃棄物は分別して回収し、施設の有害廃棄物処理手順に従って廃棄すること。 - パラホルムアルデヒドを除去し、上室に200 µL、下室に800 µLのPBSをそれぞれ加える。シェーカーを用いて、5分間ずつ3回洗浄する。
- 上室に200 µL、下室に800 µLの0.5% 非イオン性界面活性剤をそれぞれ加え、室温で10分間透過処理を行う。
- 非イオン性界面活性剤溶液を除去し、PBSで5分間ずつ3回洗浄する。
- メンブレンの切り出しおよびブロッキング
- 細胞培養インサートを細胞培養ディッシュの蓋の上に反転させ、メスを用いて縁に沿って多孔質メンブレンを慎重に切り出し、24ウェルプレートに移す。
- 各メンブレンを覆うようにPBSで調製した3% BSAを200 µL加え、室温で90分間ブロッキングを行う。必要に応じて、メンブレンを小さく切り分けて個別に染色する。
- 一次抗体反応
- 一次抗体を標準的な抗体希釈液で希釈し、各メンブレンを完全に覆うのに十分な量の溶液を加える。
- 蒸発を抑えるため、周囲の空ウェルに超純水を加え、サンプルを4 °Cで一晩インキュベートする。特定の一次抗体を用いないサンプルを陰性対照として使用する。
- 翌日、一次抗体溶液を除去し、シェーカーを用いて1 mLのPBSで10分間ずつ3回メンブレンを洗浄する。
- 二次抗体およびDAPI染色
- 遮光条件下で二次抗体を蛍光抗体希釈液で希釈し、メンブレンを完全に覆い、室温で90分間インキュベートする。遮光しながら、PBSで10分間ずつ3回洗浄する。
- メンブレンを覆うように調製済みDAPI染色液を加え、室温で15分間インキュベートする。遮光しながら、PBSで10分間ずつ3回洗浄する。
- 透明化、封入、およびイメージング
- メンブレンを覆うのに適した量の3D細胞培養透明化試薬を加え、遮光条件下、室温で15分間インキュベートする。
- 眼科用ピンセットを用いてメンブレンをガラススライドに転写し、抗退色封入剤を加え、遮光条件下でサンプルを封入する。共焦点レーザー走査顕微鏡を用いてサンプルを観察し、撮像する。
7. 統計学的報告
- 機能的比較において、n = 3は条件あたりの3つの独立した生物学的反復を意味し、各生物学的反復を実験単位として扱った。全3つの生物学的反復の個々のデータ点を表示している。データは平均値 ± SDで提示する。2つの独立した群の比較には、2方向の対比されないStudent's t-testを用い、正確なt値およびp値を算出した。
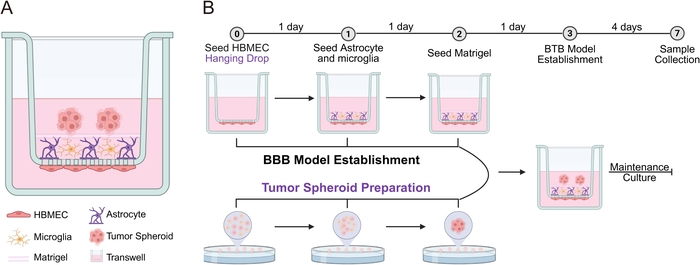
図 1: BTBモデルの模式図および構築ワークフロー。(A) 多孔性セルカルチャーインサート膜の基底側にHBMECsを播種し、頂端側にはHA細胞およびHMC3-RFP細胞を配置した。腫瘍スフェロイドとバリア細胞コンパートメントを分離するために、基底膜マトリックスの層を使用した。対応するスフェロイドなしのコントロールでは、同様の基底膜マトリックスのオーバーレイと操作を行ったが、腫瘍スフェロイドは除外した。(B) 上部の丸囲みの数字は、対応する培養日数を示す。BBBの構築と腫瘍スフェロイドの調製は同時に行った。セルカルチャーインサートの上面に基底膜マトリックスの層を添加した後、カットオフピペットチップを用いて腫瘍スフェロイドを上部チャンバーに移行させた。その後、サンプル回収まで最大1週間、BTBモデルを培養維持した。通常、後続の実験に向けて7日目にサンプルを回収することができる。こちらのリンクをクリックして、この図の拡大版を表示してください。
結果
同じ量の基底膜マトリックスを重ね塗りした、ペアのスフェロイドを含まないBBBコントロールにおいて、HMC3-RFP信号は比較的広範にわたり頂側の細胞層に分布していた(図2)。BTB条件下では、終点画像においてHMC3-RFP信号は主に腫瘍スフェロイドによって覆われていない領域に認められ、スフェロイド直下および隣接する近接領域では信号が減少していた(図2)。これらのデータは、腫瘍スフェロイドの存在とHMC3-RFP細胞の終点分布との間に空間的な関連があることを示している。スフェロイド導入前のHMC3-RFPの基礎的分布および細胞の長期的追跡評価が行われていなかったため、本データからは、ミクログリアの能動的な移動、反発、または腫瘍駆動性排除が成立しない。
アストロサイトは、BTB条件下においてもマーカーのシグナルおよび形態に差異を示した(図2)。マッチしたスフェロイド非存在/ Basement membrane matrix コントロールと比較して、代表的な画像から、周囲および遠位領域の両方でより強いGFAP蛍光が示された。スフェロイド縁辺部のアストロサイトは、細胞体が肥大し、太く伸びたプロセスを有し、プロセスがスフェロイドの縁に向かって配向していた(図2)。これらの終点的特徴は反応性星状細胞様表現型と一致するが、それら単独では特定の反応性星状細胞増生プログラムやその基盤となるメカニズムを明確に示すものではない。形態学的に類似した腫瘍周囲星状細胞構造は、ヒト乳がんの脳転移組織切片においても観察されており、免疫蛍光染色により腫瘍周囲反応性星状細胞増生と一致する所見が示された。図3A)。AQP4関連アストロサイトの特徴をさらに明確にするために、AQP4免疫蛍光染色を、対応するスフェロイドを含まないBBBモデルおよびBTBモデルにおける遠位部とスフェロイド周囲領域で行った(図3B)。BBBモデル、BTBモデルの遠位領域、および腫瘍スフェロイドに隣接するperi-spheroid領域の代表的な画像を、それぞれ1段目、2段目、3段目に示している(図3B)。BTBモデル内では、スフェロイド周囲の星状膠細胞は遠隔部位の星状膠細胞と比較して形態学的差異を示した。総合すると、GFAP/AQP4および形態学的観察結果は、本モデルにおける腫瘍スフェロイド関連星状膠細胞の再構築を支持している。患者組織との類似性は、本モデルがヒトの腫瘍周囲性星状細胞増生を完全に再現しているという証拠というよりは、表現型の類似性として解釈されるべきである。
腫瘍スフェロイド関連の内皮細胞接合部構造の変化を評価するため、簡素化されたBBBおよびBTBモデルにおいて、基底膜マトリックスを同量添加したスフェロイド非含有およびスフェロイド含有の対応する条件下で、基底HBMEC層におけるタイトジャンクション蛋白質ZO-1の免疫蛍光染色を実施した。共焦点イメージングは、腫瘍スフェロイドに対応する領域に焦点を当てて行った(図4A)。対応する球状体を含まない対照群では、HBMEC間のZO-1信号は比較的連続的で直線状に分布しており、細胞間境界が明瞭であった。BTB条件下では、腫瘍球状体に対応する領域におけるZO-1蛍光が希薄になり、局所的な破断や不連続性が認められた(図4A)。これらの終点画像は、密着結合の構造が局所的に失われていることと一致している。しかし、BTB特異的な分子マーカーや機構解明のための攪乱実験を追加で行わない限り、本データではBTBの特異的な再構築と、非特異的な腫瘍関連性の内皮損傷またはバリア障害との区別は不可能である。
機能的レベルでは、第7日目に、スフェロイド非含有/ Basement membrane matrix コントロール群とスフェロイド含有BTB条件群において、TEER測定およびFITC-デキストラン透過性アッセイを同時に実施した(図4B)。3回の独立した生物学的反復からの個々の値を散布図のプロットとして示している。 図4B、要約データは平均値として示す ± SD。BTB条件におけるTEER値(106.0) ± 9.5255 Ω·cm2、n = 3の独立した生物学的反復)は、対応するコントロール(168.0)よりも低かった ± 5.1325 Ω·cm2、n = 3の独立した生物学的反復)。一貫して、アピカルからベーシャル方向へのFITCデキストランアッセイで測定された見かけの透過係数(Papp)は、BTB条件においてより高値を示した(5.851 ± 1.2080 × 10⁻3 cm/s、n = 3の独立した生物学的反復)は、対応するコントロール(2.656 ± 1.0937 × 10⁻3 cm/s、n = 3の独立した生物学的反復)。両側非対応Student’s t検定により統計的に有意な差が示された[TEER:t(4) = 9.920、 p = 0.0006;Papp:t(4) = 3.395、 p = 0.0274] (図4B)。この実験条件において、電気抵抗の一致した低下とFITCデキストラン透過性の増加は、腫瘍スフェロイドの存在下でバリアの完全性が低下していることを示している。これらの測定値だけでは、BBBからBTBへのリモデリング機構の特定はできない。また、頂側から基底側へのFITCデキストラン透過性アッセイは、生理的な血液から腫瘍への薬物送達実験と解釈すべきではない。
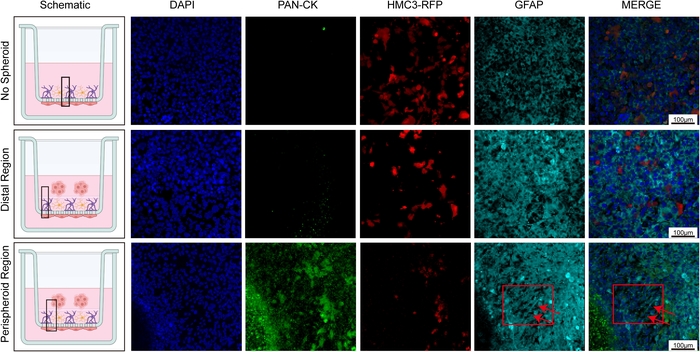
図2:BTBモデルにおける免疫蛍光染色。 対応する球状体を含まないBBB対照モデルおよびBTBモデルの、基底膜マトリックスを同量添加した頂端細胞層におけるPan-CKおよびGFAP染色の代表的免疫蛍光画像。HMC3-RFPの信号も併せて示している。第1列には模式図を示し、黒色の四角は共焦点顕微鏡観察領域を示す。第1行は球状体を含まない対応する対照(球状体なし)を、第2行はBTBモデルにおける腫瘍球状体から離れた領域(遠位領域)を、第3行はBTBモデルにおける腫瘍球状体に隣接する領域(周囲球状体領域)を示している。矢印は反応性形態を示す星状細胞の形態的特徴を示す領域を指している。細胞核はDAPI(青)でコントラスト染色し、腫瘍細胞は全細胞角蛋白(Pan-CK;緑)で標識し、RFP発現マイクログリアは赤色、GFAP染色はシアンで示している。スケールバー=100 µm. この図の拡大版をご覧になるには、ここをクリックしてください。
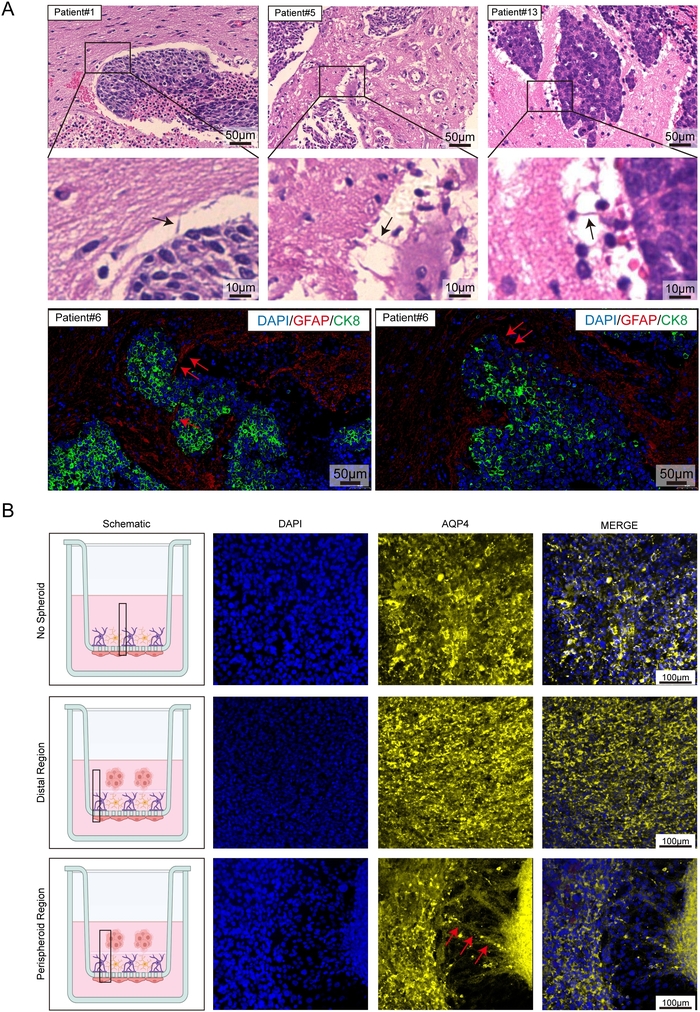
図3:免疫蛍光染色により、BTBモデルにおける腫瘍周囲反応性星状細胞膠腫症に一致する形態学的特徴が示された。(A) 乳がん脳転移を有する患者からの脳組織切片をH&E染色。腫瘍組織と脳実質または血管との境界領域に存在する星状膠細胞の構造は、周腫瘍性反応性星状膠細胞増生と一致する形態学的特徴を示した。黒色の矢印は代表的な領域を示す。免疫蛍光染色でも、反応性形態を示す星状膠細胞の特徴が確認された。赤色の矢印はその代表的な領域を強調している。スケールバー:50 µm(Hのための)&第1行のE染色画像、10 µm(Hのための)&2行目のE染色画像、および50 µ第3行の免疫蛍光画像のスケールバーは m。 (B) AQP4の免疫蛍光染色を、対応するスフェロイド非存在BBBモデルおよびBTBモデルの遠位部およびスフェロイド周囲領域に対して行った。1段目はBBBモデルの代表的画像、2段目はBTBモデルの遠位領域の代表的画像、3段目は腫瘍スフェロイドに隣接するスフェロイド周囲領域の代表的画像を示している。矢印はスフェロイド周囲領域における星状膠細胞の形態学的変化を示している。核はDAPIで青色に、AQP4は黄色に染色されている。スケールバー=100 µm. この図の拡大版をご覧になるには、ここをクリックしてください。
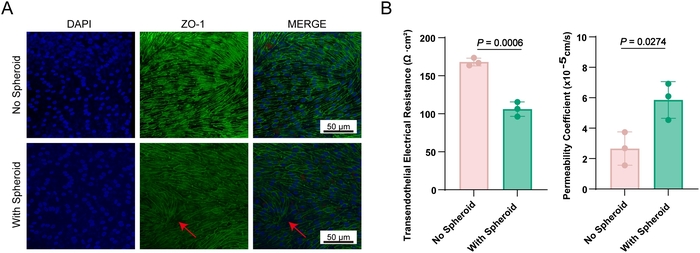
図4BTBモデルの機能的特性評価。(A) BBBおよびBTBモデルの基底内皮細胞層におけるZO-1の免疫蛍光染色。これらのモデルは、等量の基底膜マトリックスで被覆されている。第1列には模式図を示しており、黒色の枠で囲んだ部分が共焦点顕微鏡観察の対象領域である。第1行は腫瘍スフェロイドを共培養していないBBBモデル(No Spheroid)の基底細胞層の代表的画像、第2行は腫瘍スフェロイドを共培養したBTBモデル(With Spheroid)の基底細胞層の代表的画像を示している。赤色の矢印は、ZO-1の蛍光が希薄で局所的に不連続な領域を示している。核はDAPIで青色に染色され、ZO-1は緑色で表示されている。スケールバー=50 µm. (B) TEER値および対応する無胚状体BBB対照(No Spheroid)およびBTB条件(With Spheroid)におけるFITC-デキストラン(4 kDa)の見かけの透過係数(Papp)。いずれの条件も同量の基底膜マトリックスを上層に重ねたものである。条件あたりn = 3の独立した生物学的反復。3つの生物学的反復それぞれの個別データ点を示しており、要約データは平均値として提示している ± SD。FITC-デキストランのPapp値は、頂端側から基底側への方向で測定した。 この図の拡大版をご覧になるには、ここをクリックしてください。
ディスカッション
従来の2次元腫瘍細胞培養では再現できない空間的構成と拡散制限を導入するため、スフェロイドモデルを用いた。その簡便さと再現性により、スクリーニング目的のワークフローへの適用も可能である。このスフェロイドを、脳微小血管内皮細胞、アストロサイト、およびミクログリアを含む3種の細胞で構成されるヒトバリア区画と組み合わせることで、簡略化した多細胞ヒトin vitro BTBモデルを構築した。本システムは操作が容易で、マルチウェル培養および定量的なバリア測定(図1)に適合しており、免疫蛍光染色による細胞形態と空間分布の可視化が可能である。観察されたGFAP/AQP4に関連するアストロサイトの変化、および乳がん脳転移組織における腫瘍周囲アストロサイトとの形態的類似性は、本モデルが特定の腫瘍・グリア・内皮細胞間相互作用の研究において有用であることを示唆している5。ただし、これらの知見はヒトの完全なBTBと同等であることを立証するものではない。
腫瘍スフェロイドの作製には吊り滴法を用い、これをヒト脳微小血管内皮細胞、ヒトアストロサイト、およびヒトミクログリアと共培養することで、簡略化された多細胞ヒトin vitro BTBプラットフォームを構築した。試験した条件下において、腫瘍スフェロイドはTEERの低下、頂端側から基底側へのFITC-dextran透過性の亢進、ZO-1の組織化の変化、およびアストロサイトマーカーや形態の変化に関連していた。TEERおよび透過性の測定は、in vitroバリアシステムにおけるバリア機能の完全性を評価するための確立された手法である13,14。これらの知見は、この定義されたシステム内において、腫瘍スフェロイドに関連したバリア機能障害およびグリアのリモデリングが起こることを示している。しかし、このBTBプラットフォームでは、完全なBBBからBTBへの転換や、能動的なミクログリアの遊走、あるいはBTBリモデリングの具体的な分子メカニズムまでは構築されていない。したがって、本プラットフォームは、仮説の生成や腫瘍・グリア・内皮細胞間相互作用の制御研究に適した扱いやすい実験モデルとして捉えるのが最適であり、全身性の薬物送達をモデル化する場合は、方向性を適切に設定した輸送アッセイが必要となる。
この簡略化されたモデルには、いくつかの重要な限界があります。第一に、完全な神経血管ユニットや脳腫瘍微小環境が含まれていない点です。ペリサイト、ニューロン、生理学的に完全な基底膜/細胞外マトリックス、および循環免疫細胞が存在しません。ペリサイトは神経血管およびバリア機能の重要な調節因子ですが15,16,17、ヒト一次ペリサイトの入手可能性が限られており、バッチ間のばらつきがあるため、標準化されたヒトin vitroモデルへの組み込みは依然として困難です。したがって、本モデルは完全なヒトBTBとしてではなく、簡略化された実験プラットフォームとして記述されるべきです。第二に、本研究では単一の乳がん細胞株としてSK-BR-3を使用している点です。そのため、観察された表現型をBCBM生物学全体に一般化することはできません。一般化可能性および患者への関連性を確立するためには、追加の乳がんサブタイプ、脳親和性モデル、および患者由来のBCBMスフェロイドまたはオルガノイドを用いた検証が重要となります。第三に、現在のHMC3-RFPデータはエンドポイントでの観察であり、空間的なパターンが能動的な遊走、生存率の差、または既存の分布によるものであるかを解決できていない点です。これらの可能性を区別するには、縦断的な生細胞イメージングが必要となります。第四に、ZO-1、TEER、およびFITC-dextranのデータはバリア機能の低下を裏付けるものですが、BTB特異的なリモデリングと非特異的な内皮細胞損傷を区別できていないため、さらなる分子生物学的な特性解析とメカニズム的コントロールが必要です。第五に、この構成ではHBMECsが膜の基底面に播種されているため、報告された頂端側から基底側へのFITC-dextranアッセイは、生理学的な血液から腫瘍への輸送アッセイではなく、バリア整合性の読み取り値である点です。全身投与研究では、トレーサーまたは薬剤を下層の基底側内皮細胞区画に導入し、上層の頂端側腫瘍区画への輸送を検証する必要があります。最後に、現在の機能測定は、条件ごとに3つの独立した生物学的反復に基づいている点です。この設計は生物学的反復と技術的反復を区別していますが、独立した生物学的反復の数を増やすことで、再現性の評価をさらに強化できると考えられます。ペリサイトや患者由来の材料を含むこれらの改良を組み込むことで、本プラットフォームの生理学的およびトランスレーショナルな関連性を段階的に高めることができるでしょう。
開示事項
著者らに開示すべき利益相反はありません。
謝辞
本研究は、遼寧省教育改革プロジェクト(JG24DB110)、大連市生命健康指導計画プロジェクト(2025ZDJH01PT101)、大連医科大学第二附属病院1+Xプログラム(2024LCJSYL07)、および中国科学院大連化学物理研究所と大連医科大学の合同基金(DMU-&DICP UN202509)の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 0.25% Trypsin-EDTA (1×) (HMC3-RFP細胞の剥離用) | NCM Biotech | C100C1 | 細胞調製時にHMC3-RFP細胞を剥離させるために使用する。 |
| 1.5 mL 遠心チューブ | Jet Biofil | CFT001015 | 腫瘍スフェロイドの回収、洗浄、およびハンドリングに使用する。 |
| 12ウェル細胞培養プレート | Jet Biofil | TCP011012 | BBB/BTBモデル構築時に12ウェル細胞培養インサートを保持するために使用する。 |
| 3D細胞培養透明化試薬 | Thermo Fisher | V11326 | 封入および共焦点イメージングの前に、染色した細胞培養膜を透明化させるために使用する。 |
| Alexa Fluor 488標識抗ウサギ二次抗体 | Proteintech | RGAR002 | ウサギ一次抗体の免疫蛍光検出に使用する蛍光二次抗体。 |
| Alexa Fluor 647標識抗マウス二次抗体 | Proteintech | RGAM005 | マウス一次抗体の免疫蛍光検出に使用する蛍光二次抗体。 |
| 抗体希釈液 | Solarbio | A1800 | 免疫蛍光染色のための一次抗体の希釈に使用する。 |
| 退色防止封入剤 | Solarbio | S2100 | 染色した膜の封入およびイメージング中の蛍光退色抑制に使用する。 |
| アストロサイト成長サプリメント (AGS) | ScienCell | 1852 | ヒトアストロサイトの培養に使用するサプリメント。 |
| アストロサイト培地 (AM) | ScienCell | 1801 | ヒトアストロサイトの培養、および混合上部チャンバー培地の成分として使用する培養培地。 |
| 細胞培養ディッシュ | Servicebio | CCD-100 | 日常的な細胞培養およびハンギングドロップ法による腫瘍スフェロイド調製に使用する。 |
| コラーゲン Type I | Corning | 354249 | 細胞播種前に培養容器および細胞培養インサートをコーティングするために使用する。 |
| カバーグラス | Citotest | 10212450C | 封入および顕微鏡試料調製に使用する。 |
| DAPI染色溶液 | Servicebio | G1012-10ML | 免疫蛍光染色時の核対比染色に使用する。 |
| DMEM 基本培地 (1×) | Gibco | C11995500BT | FITC-デキストラン透過性アッセイの基礎培地として使用する。 |
| 血管内皮細胞成長サプリメント (ECGS) | ScienCell | 1052 | ヒト脳微小血管内皮細胞の培養に使用するサプリメント。 |
| 血管内皮細胞培地 (ECM) | ScienCell | 1001 | HBMECの培養およびBBB/BTBモデルの下部チャンバーに使用する培養培地。 |
| 胎児牛血清 (FBS) | Gibco | A5669701 | 完全細胞培養培地に使用する血清サプリメント。 |
| FITC標識デキストラン (MW 4,000) | Beyotime | ST2930-50mg | パラセルラー透過性の評価およびPappの算出に使用する蛍光トレーサー。 |
| 蛍光抗体希釈液 | Solarbio | A1840 | 免疫蛍光染色のための蛍光二次抗体の希釈に使用する。 |
| 氷酢酸 | Sigma | 27225 | コラーゲン Type I コーティング溶液の調製に使用する。 |
| HA | Human astrocyte | NA | 腫瘍関連の形態学的およびマーカー反応を評価するためのアストロサイト成分 |
| HBMEC | Human brain microvascular endothelial cells | NA | BBB/BTB内皮バリア成分 |
| HMC3-RFP | RFP-labeled human microglial cell line HMC3 | NA | 蛍光トラッキングのためのミクログリア成分 |
| Matrigel | Corning | 354230 | 腫瘍スフェロイドをバリア細胞コンパートメントから分離させるためのオーバーレイとして使用する基底膜マトリックス。 |
| MEM (NEAA含有) 完全培地 (10) | Procell System | PM150410B | 混合上部チャンバー培養培地の成分として使用する培地。 |
| 顕微鏡スライドグラス | Citotest | 188105 | 共焦点イメージングのために、切り出した染色膜を封入するために使用する。 |
| マウス抗ヒト GFAP 抗体 | EMD Millipore | MAB360-25μL | 免疫蛍光法によりアストロサイト中のGFAPを検出するために使用する一次抗体。 |
| パラホルムアルデヒド | Servicebio | G1101-500ML | 免疫蛍光染色の前に細胞を固定するために使用する。 |
| PBS リン酸緩衝生理食塩水 粉末 | Servicebio | G0002-2L | プロトコル全体の洗浄、平衡化、および調製ステップに使用する。 |
| ペニシリン-ストレプトマイシン溶液 (P/S) | Servicebio | G4003-100ML | 完全細胞培養培地に使用する抗生物質サプリメント。 |
| ピペット | Eppendorf | 3123000250 | 細胞培養およびアッセイ手順全体のリキッドハンドリングに使用する。 |
| ピペットチップ | MWM Bio | 800201 | 日常的なリキッドハンドリングに使用する。腫瘍スフェロイドの移送には、切断加工したチップを使用する。 |
| ウサギ抗ヒト PAN-CK ポリクローナル抗体 | MedChemExpress | HY-P81164 | 免疫蛍光法により腫瘍細胞を同定するために使用する一次抗体。 |
| ウサギ抗ヒト ZO-1 抗体 | Proteintech | 21773-1-AP | 免疫蛍光法により内皮タイトジャンクションの構築状態を評価するために使用する一次抗体。 |
| SK-BR-3 | Human breast cancer cell line | NA | BTB構築用の腫瘍スフェロイド成分 |
| 組織培養プレートインサート (0.4 μm, PET膜), 12ウェルプレート用 | Jet Biofil | TCS016012 | BBB/BTB共培養モデルを構築するために使用する多孔性細胞培養インサート。 |
| 経上皮電気抵抗 (TEER) 測定計 | Millicell | ERS-2 | バリア整合性の読み取り値として、細胞培養インサート間の電気抵抗を測定するために使用する。 |
| TrypLE Express (1×) (HBMECおよびHA細胞の剥離用) | Gibco | 12605-010 | 細胞調製時にHBMECおよびHA細胞を剥離させるために使用する。 |
参考文献
- Park M, et al. Breast cancer metastasis: mechanisms and therapeutic implications. Int J Mol Sci. 2022;23(12):6806. doi:10.3390/ijms23126806.
- Wang R, et al. The clinicopathological features and survival outcomes of patients with different metastatic sites in stage IV breast cancer. BMC Cancer. 2019;19(1):1091. doi:10.1186/s12885-019-6311-z.
- McConnell HL, Mishra A. Cells of the blood-brain barrier: an overview of the neurovascular unit in health and disease. Methods Mol Biol. 2022;2492:3–24.
- Dong X. Current strategies for brain drug delivery. Theranostics. 2018;8(6):1481–1493.
- Gril B, et al. Reactive astrocytic S1P3 signaling modulates the blood-tumor barrier in brain metastases. Nat Commun. 2018;9(1):2705. doi:10.1038/s41467-018-05030-w.
- Pitz MW, Desai A, Grossman SA, Blakeley JO. Tissue concentration of systemically administered antineoplastic agents in human brain tumors. J Neurooncol. 2011;104(3):629–638.
- Adkins CE, et al. Characterization of passive permeability at the blood-tumor barrier in five preclinical models of brain metastases of breast cancer. Clin Exp Metastasis. 2016;33(4):373–383.
- Lockman PR, et al. Heterogeneous blood-tumor barrier permeability determines drug efficacy in experimental brain metastases of breast cancer. Clin Cancer Res. 2010;16(23):5664–5678.
- Song H-T, et al. Rat model of metastatic breast cancer monitored by MRI at 3 tesla and bioluminescence imaging with histological correlation. J Transl Med. 2009;7:88. doi:10.1186/1479-5876-7-88.
- Miarka L, Valiente M. Animal models of brain metastasis. Neurooncol Adv. 2021;3(Suppl 5):v144–v156.
- Kim J-H, et al. Inflammatory mammary carcinoma with metastasis to the brain and distant organs in a spayed Shih Tzu dog. J Vet Diagn Invest. 2011;23(5):1079–1082.
- Wiese DA, Thaiwong T, Yuzbasiyan-Gurkan V, Kiupel M. Feline mammary basal-like adenocarcinomas: a potential model for human triple-negative breast cancer (TNBC) with basal-like subtype. BMC Cancer. 2013;13:403. doi:10.1186/1471-2407-13-403.
- Srinivasan B, et al. TEER measurement techniques for in vitro barrier model systems. J Lab Autom. 2015;20(2):107–126.
- Harding IC, et al. Developing a transwell millifluidic device for studying blood-brain barrier endothelium. Lab Chip. 2022;22(23):4603–4620.
- Liu X, et al. The role of neurovascular unit damage in the occurrence and development of Alzheimer’s disease. Rev Neurosci. 2019;30(5):477–484.
- Nikolakopoulou AM, et al. Pericyte loss leads to circulatory failure and pleiotrophin depletion causing neuron loss. Nat Neurosci. 2019;22(7):1089–1098.
- Bell RD, et al. Pericytes control key neurovascular functions and neuronal phenotype in the adult brain and during brain aging. Neuron. 2010;68(3):409–427.
再版と許可
この記事は公開されました
動画は近日公開