本研究は、C3H/HeJマウスを用いた円形脱毛症モデルおよびH2O2で誘発したヒト初代表皮メラノサイト損傷モデルにおいて、アミグダリンが持つ抗酸化作用および抗炎症作用の根底にある潜在的な分子メカニズムを解明することを目的としています。
研究記事
アミグダリンはFOXO3aシグナル伝達を調節し、マウスにおける酸化ストレスを抑制して円形脱毛症を改善させる
* These authors contributed equally
この記事について
サマリー
要約
本論文では、円形脱毛症(AA)に対するアミグダリン(AMG)の治療効果のメカニズムを探索することを目的とする。 AMGの肝腎毒性を調べるために、ヘマトキシリン・エオジン染色を用いた。C3H/HeJマウスのAAモデルを確立した後、H2O2損傷したヒト初代表皮メラノサイト(HPEMs)を用い、AMG介入後の活性酸素種(ROS)量、およびforkhead box O3A(FOXO3a)タンパク質と遺伝子のレベルをモニタリングした。生化学キットまたは 酵素結合免疫吸着測定法 スーパーオキシドディスムターゼ(SOD)、カタラーゼ(CAT)、グルタチオンペルオキシダーゼ4(GPX-4)、マロンジアルデヒド(MDA)、インターロイキン-15(IL-15)、インターフェロンガンマ(IFN-γ)、およびインターロイキン-6 (IL-6)。MHC I、IL-15、FOXO3a、SOD、CAT、GPX-4、IFN-γのレベルを評価するために、ウェスタンブロット法を実施した。γ、IL-6、およびIL-15。ChIP-PCRを行い、FOXO3aにおけるSOD、CAT、およびGPX-4のプロモーターへのAMGの濃縮を評価した。同時に、FOXO3a発現量の低いHPEMにおけるROS、アポトーシス、ならびにFOXO3a、SOD、CAT、およびGPX-4のタンパク質レベルおよび遺伝子レベルを調査した。 AMGは肝臓および腎臓に対する潜在的な毒性はなく、皮膚におけるMHC IおよびIL-15タンパク質の発現、ならびに血清IL-15を減少させることができる。AMGは皮膚におけるFOXO3aタンパク質および遺伝子の発現、ならびにSOD、CAT、GPX-4のレベルを向上させる一方で、ROSおよびMDAレベルを減少させることができる。AMGはMHC I、IFN-γ、IL-6、およびIL-15、MDA、HPEMにおけるアポトーシスおよびROS産生を抑制し、SOD、CAT、およびGPX-4の含有量を増加させる。重要な点として、AMGはFOXO3a、SOD、CAT、およびGPX-4の遺伝子およびタンパク質の発現をアップレギュレートし、SOD、CAT、およびGPX-4のプロモーターにおけるFOXO3aを濃縮させることができる。 これらのデータは、AMGがFOXO3aの発現を促進し、酸化ストレスおよび炎症反応を抑制することで、C3H/HeJマウスにおけるAAを改善できることを示唆している。
概要
円形脱毛症(AA)は、突然の発症と非瘢痕性の脱毛を特徴とする自己免疫疾患であり、世界的な有病率は約2~3%で、中国では3,000万人以上の患者が存在します1。疫学的データによれば、本疾患はあらゆる年齢層に見られますが、若年成人の有病率が高く、患者の約60%が20歳までに初発し、男女比はほぼ等しいことが示されています1,2。世界的に、AAの年間発症率は約0.2~0.3%であり、そのうち40%が単一部位のAA、35%が多発性AA、5%が全頭脱毛症、2%が汎脱毛症です3,4,5。合併症に関しては、約30%の患者に爪の陥凹や縦条などの損傷が見られ、甲状腺疾患や白斑などの自己免疫疾患との併発率は一般人口で観察されるレベルを上回っています6,7。悪影響の観点からは、AAは外見に影響を与えるだけでなく、抑うつや不安などの心理的問題を引き起こしやすく、新規発症患者の約70%が発症前3か月以内に重大なストレスイベントを経験しています8,9。長期にわたり未治療である場合、全頭脱毛症や汎脱毛症へと進行し、社会機能やクオリティ・オブ・ライフに深刻な影響を及ぼす可能性があります10。
現在、西洋医学におけるAAの治療には、主に外用薬、経口薬、物理療法、および毛髪移植の組み合わせが用いられている11,12。外用治療には主にミノキシジル溶液やコルチコステロイド(フルチカゾンプロピオン酸エステルクリームなど)が含まれ、これらは毛包を刺激し、局所の免疫反応を抑制することで発毛を促進するが、長期使用は皮膚萎縮などの副作用を招く可能性がある13,14。進行性の疾患を持つ患者に対しては、経口免疫抑制剤(プレドニゾンやシクロスポリンなど)が全身性の免疫反応を効果的に調節できるが、肝機能および腎機能の定期的なモニタリングが必要となる12,15。物理療法では、ナローバンド中波紫外線照射や低出力レーザー治療が微小循環を改善して発毛を補助するが、複数回の治療が必要であり、その効果には個人差がある16,17。難治性の症例に対しては、毛髪移植手術により健康な毛包を脱毛部位に移植することが可能だが、移植失敗のリスクがあり、薬剤による維持管理が必要となる18。西洋医学的治療の利点は、特に早期の限局性AAにおいて、即効性があり標準化されている点にある19。しかし、欠点として、ホルモン剤によるリバウンドが起こりやすいこと、免疫抑制剤による副作用が顕著であること、また全脱毛・汎汎性脱毛症の患者に対する有効性が限定的であることが挙げられる20,21。加えて、治療サイクルが長く(通常3~6か月)、費用が高額であること(例えば、JAK阻害剤や生物学的製剤の年間費用は100,000元を超える)も、広範な適用を制限する要因となっている19,22。上述の数多くの理由から、著者らは新たな標的薬を探索することが急務であると考えている。
酸化ストレスは、AAの病原性メカニズムに大きく寄与しています。メラノサイトの色素合成過程において、大量の過酸化水素(H2O2)が生成されます23,24。通常の状態では、これは抗酸化酵素(スーパーオキシドディスムターゼ(SOD)やカタラーゼ(CAT)など)によって除去されます25。しかし、AA患者では抗酸化酵素の活性が低下していることが多く、その結果、酸化生成物が蓄積してDNA損傷や細胞アポトーシスが引き起こされます26,27。この酸化ストレス状態はさらに炎症反応を活性化し、前炎症性メディエーター(TNF-αやIFN-γなど)を放出させ、酸化ストレスと炎症の悪循環を形成します28。この炎症反応はTリンパ球を介して毛包を攻撃し、毛包を休止期へと移行させ、脱毛を引き起こします29。臨床試験では、AA患者に他の自己免疫疾患(甲状腺疾患など)が併発していることが多いことが分かっており30、全身性の免疫調節不全が重要な誘因となっていることが示唆されています。加えて、酸化ストレスと炎症が共同して毛包細胞のアポトーシスを促進し、アポトーシスシグナルの異常が毛包の再生能力をさらに損なうため、発毛が妨げられます31。したがって、AAの治療には、この悪循環を断ち切るために、抗酸化、抗炎症、およびアポトーシス経路の調節を考慮する必要があります。
アミグダリン(AMG)は天然に存在するシアノゲン配糖体化合物であり、主にバラ科(Rosaceae)の植物種子(アプリコット、アーモンド、桃の核、ビワなど)に含まれています32,33,34。先行研究により、AMGは皮膚のバリア機能を高めることで乾癬を改善できることが示されています35。同時に、AMGの抗アポトーシス作用および抗酸化ストレス作用により、白斑症(AA)の治療への利用が可能となります36,37。また、AMGが炎症反応を抑制し、C3H/HeJマウスにおけるAA症状を軽減させることが以前の証拠によって確認されています38。しかし、AMGが炎症を抑制し酸化ストレスを軽減してAAを緩和させる分子メカニズムについては、十分に報告されていません。本研究では、C3H/HeJマウスのAAモデルおよびH2O2誘発ヒト一次表皮メラノサイト(HPEMs)損傷モデルにおける治療において、AMG介入によるforkhead box O3A(FOXO3a)シグナル伝達を介した酸化ストレス事象を主に実証しました。
プロトコル
倫理承認および参加への同意
動物を用いた実験プロトコルは、ARRIVE 2.0およびNIHの「実験動物の飼育及び使用に関するガイドライン」に従い、Scientist Biotechnology Co., Ltd.の倫理委員会(承認番号:SYST-2024-014)の承認を得て実施した。また、四川省人民病院の倫理委員会の承認も得ている。’s病院は、ヒト臨床検体の倫理的使用について承認を下した。 in vitro 実験(倫理的承認番号:2024103)。すべての組織提供者からインフォームドコンセントを得た。本研究で使用した試薬および機器のすべての商業情報は以下のとおりである。 材料表.
C3H/HeJ マウスにおけるAAモデルの作製とAMGの投与
先行文献に基づき、C3H/HeJマウスにおいてAAモデルを誘導し、AMGで処理した。38,39。簡略すると、30匹の雌性C3H/HeJマウス(6歳)–8週齢のマウスは、5つの異なる群(対照群、AA群、AMG-L群、AMG-M群、AMG-H群)に無作為に割り付けられる前に、1週間の適応期間を設けた。対照群を除く残りの4群では、0.05 gのイミキモドクリームをマウスの背部皮膚に塗布することでAAモデルを誘導した。この塗布は週3回行い、合計9回の投与を行った。塗布部位の皮膚面積は1.5 cmであった × 1.5 cm。対照群およびAA群のマウスには、毎日0.02 mL/gの生理的食塩水を経口投与した。一方、AMG群のマウスには、毎日60、90、および120 mg/kgの経口投与を行った。投与期間は21日間である。AAモデルの一般的な観察および評価として、明瞭な円形の脱毛斑 ≥ 直径1 cmで、瘢痕や重度の炎症がなく、毛幹が破断していること。マウスに全身性の脱毛、重度の皮膚潰瘍、または自然に急速な毛髪再生が見られる場合は、除外する。
HPEMs
前述の方法に従って40、病院で包皮切除術を受けた患者からの健康な皮膚組織を採取し、75%エタノールに5分間浸した。その後、アンピシリン(100 U/mL)および硫酸ストレプトマイシン(100 mg/mL)を含むPBSで皮膚組織を数回洗浄し、ディスペースII溶液中で4℃でインキュベートした°Cで一晩消化処理した。分離・単離された表皮層を細切し、滅菌膜でろ過して細胞懸濁液を得た。遠心分離後、沈殿した下層の細胞を回収し、次いで無血清のメラノサイト254培地に再懸濁して、約5の密度で再接種した × 105 培養フラスコ内で培養し、CO₂2 インキュベーター。3回の継代後、純粋なメラノサイトを後続の実験に用いた。
Hの確立2O2誘導型ヒトメラノサイト酸化ストレス損傷モデルおよびAMG介入
融合度60%から80%の人間のメラノサイトを、対照群および異なる濃度のHを含む群に分類した2O2 (200、400、600、800、および1000 µM)。24時間のインキュベーション後、細胞生存率は 評価した CCK-8法により。その後、Hの最適濃度を2O2 メラノサイトの酸化ストレスモデルの構築に使用され、異なる濃度のAMG(0.1、0.25、0.5、1、2.5、5、および10 mg/mL)を添加して24時間培養を行った。その後、細胞生存率を指標としてAMGの濃度を評価およびスクリーニングした。
HE染色検査
マウスの肝臓および腎臓組織を4%パラホルムアルデヒドで24時間固定後、パラフィン包埋を行い、以下の手順で脱水処理を行った:70%エタノール中4時間、80%エタノール中2時間、90%エタノール中2時間、95%エタノール中2時間、無水エタノール中(2回、各1時間)、キシレン中(2回、各30分)38,39,41次に、4-µmパラフィン切片にH&E染色した標本は脱水、透明化処理を行い、中性バルサムで封入した。組織切片のデジタル化には3D HISTECHスキャナーを用い、20倍の画像を取得した。× および40× 拡大像を撮影した。
酵素結合免疫吸着測定法(ELISA)および生化学的検出
皮膚組織を1:9(w/v)の割合でバッファー溶液中でホモジナイズし、その後1006×gで遠心分離した。–1789 × g 10分間反応させる。BCA法を用いて血清、皮膚組織抽出液、および細胞上清中のタンパク定量を行った後、MDA、IL-6、IL-15、およびIFN-γ 対応するELISAキットを用いて評価した。また、SOD、CAT、およびGPX-4の酵素活性は、それぞれの生化学キットの取扱説明書に従って検出を行った。
活性酸素種(ROS)の検出のためのフローサイトメトリー
無血清培養液を用いて10を希釈したµM DCFH-DAを1:1000の比率で使用した。その後、マウス皮膚組織またはヒトメラノサイトを細胞懸濁液に調製した。–20×106 細胞/mL(10を用いて)µM DCFH-DA。細胞を37℃でインキュベートした。°20分間C。この期間中、細胞は3分ごとに振盪および混合した。–5分後。無血清培地で3回洗浄し、それぞれの励起波長および発光波長を488nmおよび525nmに設定してフローサイトメトリーにより細胞内ROSレベルを定量した。42,43.
免疫蛍光測定
FOXO3a(1:1000)一次抗体を4-µm皮膚組織切片または固定化HPEMを4℃で一晩中保存°C. その後、試料をAlexa Fluor蛍光色素で標識した二次抗体で処理し、DAPI溶液で核染色を行った。最後に、蛍光顕微鏡を用いて切片を観察および画像取得した。ROSによる蛍光イメージングでは、4-µ皮膚組織の冷凍切片またはHPEMスライドを室温で再加温し、乾燥させた。組織の周囲を組織化学用ペンで円形に囲んだ。スライドを自己蛍光消去剤で5分間処理後、流水で10分間洗浄した。ROS染色液を滴下し、37℃で暗所にてインキュベートした。°30分間C。組織切片は脱色シャーカーを用いてPBSで5分間ずつ、合計3回洗浄した。その後、DAPI染色液を滴下し、インキュベートした 暗所で室温下、10分間反応させた。スライドを蛍光消去剤含有封入剤で封入した後、蛍光顕微鏡を用いて検体を観察し、画像を取得した。励起/発光波長は330–DAPIの380/420 nmおよび510 nm–Cy3の場合は560/590 nm。
ウエスタンブロット
マウスの皮膚組織またはヒトメラノサイトの場合、皮膚組織50 mgまたは2 × 10⁵ 細胞および1 mLのRIPA溶解バッファー(プロテアーゼ阻害剤添加)を1.5 mLマイクロ遠心チューブに採取した。氷上での30分間の反応後、12,000 gで5分間遠心分離を行い、上清画分を回収した。BCA法でタンパク質濃度を測定後、タンパク質溶液と5× SDSローディングバッファーを体積比4:1で混合し、次に95℃の金属浴中で沸騰させた °5分間、C。サンプルを80 Vまたは120 Vで10%SDS-PAGE電気泳動した後、タンパク質を0.22-µ一定電流200 mAで1時間、m PVDF膜を用いて行う44,45次に、膜を遠心振とう機を用いて室温で1時間、5%スキムミルク(TBSTバッファーで調製)でブロッキングした。その後、膜を以下の一次抗体で処理した。 主要組織適合性複合体クラスI (MHC I)(1:1000)、IFN-γ (1:1000)、IL-6(1:1000)、IL-15(1:1000) β-アクチン(1:1000)、SOD(1:1000)、CAT(1:1000)、グルタチオンペルオキシダーゼ4(GPX-4)(1:1000)、およびFOXO3a(1:1000)を4℃で °Cで一晩中インキュベートした。その後、室温で二次抗体(1:10,000)を1時間反応させた。ECL化学発光試薬を用いて発色を行い、ChemiScope 6100を用いて画像を取得した。
定量的逆転写ポリメラーゼ連鎖反応(qRT-PCR)
まず、マウス皮膚組織またはヒトメラノサイトからの試料RNAを、製造元の指示に従って調製した。’total RNA抽出キットの手順に従う。逆転写キットの操作手順に従い、PCR装置のパラメータを25℃で設定した°10分間42℃°15分間85℃°cDNAサンプルを得るために5分間95°Cで反応を行った。同様に、十分なDNAコピー数を得るためにPCR装置の設定パラメータは以下の通りであった:初期変性:95°C°5分間50℃、1サイクル;変性:95℃°Cで10秒間、40サイクル;アニーリングおよび伸長:60°30秒間40サイクル、C。 目的遺伝子の正規化発現量は、以下の式を用いて算出する:2‑ΔΔCq (ΔΔCq = Cqターゲット‑Cqβ‑アクチン)46,47qRT-PCR用の遺伝子プライマー配列に関する情報は以下の通りである。 表1.
ChIP-PCR解析
ChIP-PCR解析は、従来のプロトコルに従って行った。48まず、細胞を1%ホルムアルデヒドで10分間交差結合させ、グリシン溶液を添加して交差結合反応を停止した。PMSFを含む予め冷却したPBSで洗浄後、PMSFを含むSDS溶解バッファーを用いて細胞を溶解した。その後、超音波細胞破砕装置を用いてクロマチンDNAを主に200~1,000 bpの断片に切断し、アガロースゲル電気泳動により断片サイズを確認した。切断されたクロマチン試料を、PMSFを含むChIP希釈バッファー中で再懸濁し、20µ試料のLを入力コントロール群として採取した。残りの試料は、プロテインA+Gアガロース/サーモン精子DNAで前処理した。その後、0.5µgの一次抗体を添加し、4℃で一晩インキュベートした。°ゆっくり振荡しながらC。陰性対照群にはウサギIgGを同量添加した。翌日、抗原-抗体複合体を捕捉するためにProtein A+Gアガロースビーズを添加し、複合体を低塩免疫複合体洗浄バッファー、高塩免疫複合体洗浄バッファー、LiCl免疫複合体洗浄バッファーおよびTEバッファーで順次洗浄した。免疫沈降した複合体は溶出バッファーで溶出し、溶出産物およびinput対照群のサンプルはともに65℃での加熱処理を受けた°4時間、65°Cでインキュベートして架橋を切断した。その後、プロテイナーゼK処理によりタンパク質を消化し、フェノール・クロロフォルム抽出およびエタノール沈殿によりDNAを精製した。精製されたDNAはTEバッファーに溶解し、その後のqRT-PCR解析に用いた。ChIP-PCRに使用した遺伝子配列情報は以下の通りである。 表2.
ChIP-PCRの候補ゲノム部位は、JASPARデータベース(https://jaspar.elixir.no/)を用いたインシリコ予測により選択された。具体的には、研究者らはTSS上流2000 bpにわたるプロモーター配列を取得した CAT, SOD、および GPX4 遺伝子。これらの配列は、対応する位置重み行列を用いてFOXO3aの結合モチーフについてスクリーニングされた。感度と特異性のバランスを取るため、著者らは相対的プロファイルスコアの閾値を >80%。この基準を満たすすべての予測モチーフの中から、著者らは各遺伝子に対してスコアが最も高い上位2つの候補部位を、ChIP-PCRによる検証のための領域として選択した。例えば、 CAT 遺伝子において、選択した部位は転写開始点(TSS)から相対的に-733 bpおよび-1259 bpの位置にあった。本研究で使用した抗FOXO3a抗体は、市販のChIP用グレードの抗体である。特異性を確保するため、著者らは各ChIP-PCRアッセイに対して、アイソタイプIgGおよび陰性ゲノム領域という2つの独立した陰性対照を用いた。アイソタイプIgG対照は、同じ種由来の非免疫IgGを用いて並行して行う免疫沈降実験として実施した。陰性ゲノム領域対照については、FOXO3aのコンセンサスモチーフが予測されない非結合領域を標的とする特異的プライマー対を設計した。この対照領域により、クロマチンのランダムな切断や非特異的なPCR増幅によるエンリッチメントを除外することができた。フォールドエンリッチメントは、3段階の正規化戦略を用いて算出した。
ステップ1:正規化されたデータを入力 ΔCt ΔCt [正規化IP] = Ct[IP] - (Ct[Input] - log₂(DF) (1)
ΔCt [正規化IgG] = Ct[IgG] - (Ct[Input] - log₂(DF)。 (2)
DF = 入力希釈係数。実験では、10%の入力サンプルを使用したため、DF = 10 である。
ステップ2: ΔΔIPとIgGの間のCt値
ΔΔCt [IP/IgG] =ΔCt [正規化IP]ΔCt [正規化IgG] (3)
ステップ3:フォールドエンリッチメント=2(-ΔΔCt [IP/IgG]. (4)
統計解析
データは平均値として示す ± 標準偏差は、最低3回の独立した実験に基づいている。統計解析はGraphPad Prismソフトウェア(バージョン6.0)を用いて行った。正規分布および分散の均一性を満たす複数群間のデータ比較は、一元配置分散分析(one-way ANOVA)を用いて評価し、その後、Tukey法を用いて多重比較を行った。’事後検定。統計的有意性は p < 0.05.
結果
正常なC3H/HeJマウスにおいてAMGは肝腎毒性を示さない
実験的な観点からAMGの潜在的な肝毒性および腎毒性を明確に特定するため、研究者は以前に検討した3つの用量(60, 90, および 120 mg/kg)を正常なC3H/HeJマウスに経口投与(gavage)により投与した38。 図1に示すように、3つの用量でAMGを21日間胃内投与した後、肝小葉の構造は明瞭であり、肝細胞は秩序だって配列していた。腎臓の皮質および髄質組織は正常であり、糸球体や腎尿細管に損傷や病変は見られなかった。AMG投与期間中、マウスに異常な行動学的徴候は見られなかった。実際、本論文では生化学的な毒性および体重データが測定されていないため、AMGに肝腎毒性がないという妥当性に影響を与える可能性がある。しかし、肝臓および腎臓の組織病理学的検査結果に基づくと、これらのデータは、著者らが設定した用量でのAAに対するAMG治療が妥当であることを部分的に示唆している。
AMGは、AAの発生および進展ならびにROSの生成を抑制する
まず、以下のMHC IおよびIL-15の指標を測定した。 発症および進行に密接に関連している AAの。〜に示されているように 図2A–C、AAシミュレーションの病理学的条件下において、C3H/HeJマウスの皮膚組織におけるMHC IおよびIL-15タンパク質の量は有意に増加した(p < 0.001)。一方、AMG-MおよびAMG-Hによる処理では、これら2つのタンパク質の発現レベルが有意に低下した(p < 0.01または p < 0.001). 同様に、3回投与のAMG治療により、血清中のIL-15レベルが有意に抑制されました(p < 0.001, 図2D)。さらに、免疫蛍光染色の結果から、AA群マウスの皮膚には大量のROSが存在することが示された一方で、AMG介入により、AA群と比較してROSの発現が有意に抑制された(p < 0.001, 図2E および F)。一貫して、フローサイトメトリーの結果から、AA群の皮膚組織におけるROSレベルは、〜と比較して有意に上昇していることが示された。 対照群。しかしながら、AA群と比較して、AMG介入はROSの増加を抑制した(p < 0.001, 図2G および H).
AMGはFOXO3aのタンパク質および遺伝子発現を促進した。
AMGがFOXO3aに及ぼす影響を調べるため、著者らはタンパク質レベルおよび遺伝子レベルの両方でその発現量を検証した。免疫蛍光染色の結果、AA群ではFOXO3aタンパク質の発現が著しく減少していた一方で、AMGはC3H/HeJマウスの皮膚組織におけるFOXO3aタンパク質レベルを刺激することが示された(p < 0.001, 図3A および B)。さらに、qRT-PCRのデータは、AMGがFOXO3a遺伝子の発現を有意に増加させたことを示している(p < 0.001; 図3C)。同様に、ウェスタンブロット実験により、AMGが 大幅に上昇した FOXO3aのタンパク質発現(p < 0.05または p < 0.001, 図3D および E).
AMGはAAマウスの皮膚組織における酸化ストレスイベントを抑制した
酸化ストレスによって促進されるAAの病理学的進行は、症状の悪化を招く。生化学的検査の結果(図4)から、対照群と比較して、AA群のマウス皮膚組織における抗酸化指標であるSOD、CAT、GPX-4は有意に抑制されており(p < 0.001、図4AおよびB)、一方で前酸化指標であるMDAは大幅に増加していた(p < 0.001、図4C)。予想通り、研究者はAMG投与後、抗酸化指標が有意に増加し、前酸化指標が有意に減少したことを確認した(p < 0.001;図4A–C)。同様に、ウェスタンブロットのデータからも、AMG介入によって抗酸化指標であるSOD、CAT、GPX-4のタンパク質発現レベルが有意に上昇したことが示唆された(p < 0.001;図4Dおよび4E)。
AMGはH2O2によって誘導されたHPEMsのアポトーシスおよび炎症反応を抑制した
図5Aに示される結果は、H2O2の濃度上昇(200–1000 µM)に伴い、HPEMsの生存率が段階的に低下したことを示している(p < 0.001)。その中で、600 µMのH2O2がHPEMsの細胞生存率を低下させるのに最も適切な濃度であった(p < 0.001)。さらに、600 µMのH2O2でHPEM細胞を刺激した条件下において、0.1–10 mg/mLのAMGが細胞生存率を有意に向上させることが判明した(p < 0.05またはp < 0.001、図5B)。動物実験の結果と一致して、図5CおよびDのアポトーシス検出のためのフローサイトメトリーで示されたように、AMGがHPEMsにおけるH2O2誘導性アポトーシスを有意に抑制することも判明した(p < 0.001)。MHC I指標について、ウェスタンブロット解析により、AMGがH2O2誘導性の傷害を受けたHPEMsにおけるタンパク質発現を著しく抑制することがさらに実証された(p < 0.05またはp < 0.01;図5Eおよび5F)。炎症因子の検出については、ELISAの結果から、AMGがH2O2によって誘導されたHPEMsにおけるIFN-γ、IL-6、およびIL-15を含む前炎症性サイトカインの量を有意に減少させたことが示された(p < 0.001;図5G)。さらに、これら3つの前炎症性タンパク質に対するAMGの抑制効果が、図5HおよびIに示すウェスタンブロット解析によってさらに検証された(p < 0.01またはp < 0.001)。
AMGはH2O2によって誘導されたHPEMsのROSレベルを低下させた
H2O2およびAMGで処理していないHPEM細胞と比較して、600 µM H2O2による刺激はROSの産生を有意に促進したことが、それぞれ免疫蛍光染色の結果(p < 0.001, Figure 6AおよびB)およびフローサイトメトリー実験の結果(p < 0.001, Figure 6CおよびD)によって示された。興味深いことに、AMGはROS量を有意に減少させた(p < 0.001, Figure 6)。
AMGは、H2O2によって誘導されたHPEMsの酸化ストレスイベントを抑制した。2O2
同様に、著者らはH2O2によって誘導されるHPEMにおける酸化ストレスにAMGがどのように影響するかを評価した。2O2対照群と比較して、H2O2 刺激により、SOD、CAT、およびGPX-4の機能が低下した(p < 0.001, 図7A および B)、一方でMDAレベルを著しく上昇させた (p < 0.001, 図7C)。驚くべきことに、AMG介入により、SOD、CAT、およびGPX-4の活性が有意に向上した(p < 0.001, 図7A および B)、一方でMDAレベルを低下させ(p < 0.001, 図7C)。さらに、ウェスタンブロットの結果からも、AMG投与によってSOD、CAT、およびGPX-4のタンパク質発現が有意に増加したことが裏付けられた(p < 0.05または p < 0.01, 図7D および E).
AMGはH2O2によって誘導されたHPEMsのFOXO3aレベルおよびFOXO3a調節下のSOD、CAT、GPX-4を促進した
対照群と比較して、H2O2刺激はFOXO3a遺伝子発現の著しい減少をもたらしたが(p < 0.001, Figure 8A)、AMGの介入はこの効果を有意に減弱させた(p < 0.05, Figure 8A)。さらに、ウェスタンブロット(p < 0.05, Figure 8B およびC)および免疫蛍光(p < 0.05, Figure 8DおよびE)解析により、AMGの適用がFOXO3aのタンパク質発現を大幅に増加させることが確認された。ChIP-PCR実験により、Figure 8F–Iに示すように、AMGがSOD (p < 0.001)、CAT (p < 0.01)、GPX-4 (p < 0.01)の発現レベルを高めること、およびSOD (p < 0.001)、CAT (p < 0.001)、GPX-4 (p < 0.001)のプロモーターにおけるFOXO3aの濃縮レベルを高めることが確認された(Figure 8J–L)。
AMGは、H2O2によって誘導されるHPEMsのFOXO3a調節性酸化ストレスおよびアポトーシス現象を抑制した
まず、研究者はFOXO3aの低発現HPEM株を樹立した。この細胞株では、FOXO3aのタンパク質発現レベル(p < 0.001、Figure 9AおよびB)および遺伝子発現レベル(p < 0.001、Figure 9C)の大幅な低下が認められた。フローサイトメトリーの結果から、H2O2投与群と比較して、AMGはFOXO3a低発現HPEMsにおけるROSレベルと細胞アポトーシスを有意に減少させることが示された(p < 0.001、Figure 9D–G)。同時に、AMGはFOXO3a低発現HPEMsにおいて、FOXO3aのタンパク質および遺伝子発現(p < 0.01、Figure 9H–J)、ならびにFOXO3aによって調節されるSOD、CAT、GPX-4タンパク質の発現レベル(p < 0.05、p < 0.01、またはp < 0.001、Figure 9H, K–O)および遺伝子発現を有意に増加させた。
データの可用性:
すべての生データは、以下のURLの公開データリポジトリから入手可能です。https://doi.org/10.5281/zenodo.22090466
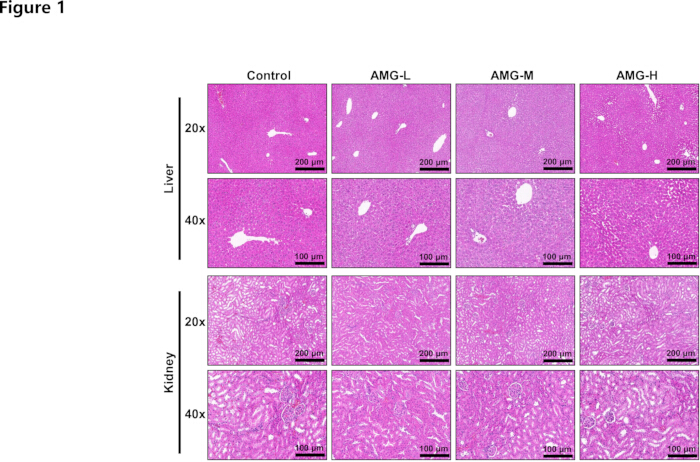
図1: HE染色。正常なC3H/HeJマウスの肝臓および腎臓に対するAMG(60, 90, 120 mg/kg)の用量依存的な毒性を評価するためにHE染色を用いた。20× (200 µm) および 40× (100 µm) の倍率において、肝臓および腎臓に特異的な病理学的損傷は観察されなかった。n = 6。 こちらのリンクをクリックして、この図の拡大版を表示してください。
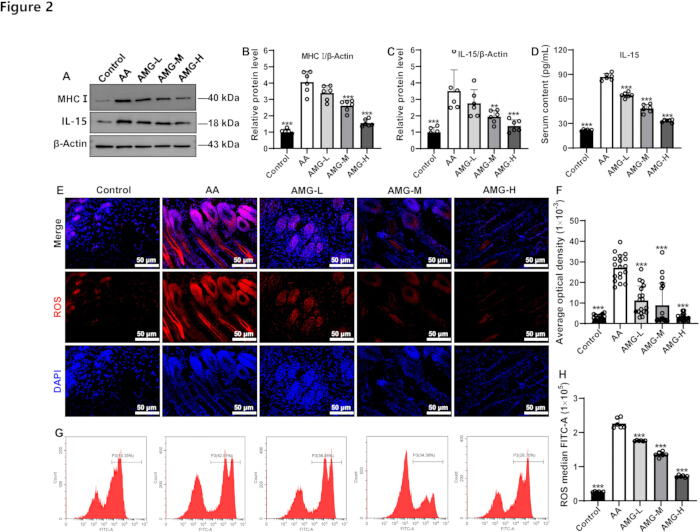
図2AAマウスの皮膚試料におけるMHC I、IL-15、およびROSに対するAMGの影響。 (A–C)、ウェスタンブロットによる評価の結果、AMGはMHC IおよびIL-15のタンパク質発現レベルを低下させた。(D)、AMGを低下させた マウス血清中のIL-15レベル。E および F)、IFアッセイで検出した結果、AMGはマウス皮膚サンプルにおけるROSレベルを低下させた。(G および H)、フローサイトメトリーにより測定した結果、AMGはマウス皮膚サンプルにおけるROSレベルを低下させた。実験結果は平均値として提示されている。 ± 標準偏差 **p < 0.01および ***p < AA群と比較して0.001;n = 6。 この図の拡大版を表示するには、ここをクリックしてください。
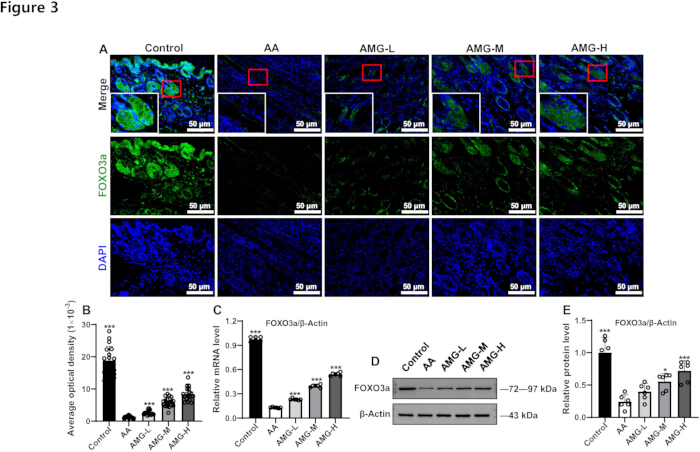
図 3: AAマウスの皮膚サンプルにおけるFOXO3aタンパク質および遺伝子レベルに対するAMGの影響。(A) IFアッセイにより評価した、AMGによるFOXO3aタンパク質レベルの上昇。(B) IFの定量結果。(C) AMGによるFOXO3a遺伝子発現の上昇。(D) ウェスタンブロットにより検出した、AMGによるFOXO3aタンパク質発現の上昇。(E) ウェスタンブロットの定量結果。実験結果は平均値 ± SDで示す。*p < 0.05 および ***p < 0.001 vs. AA群; n = 6. こちらのリンクをクリックして、この図の拡大版を表示してください。
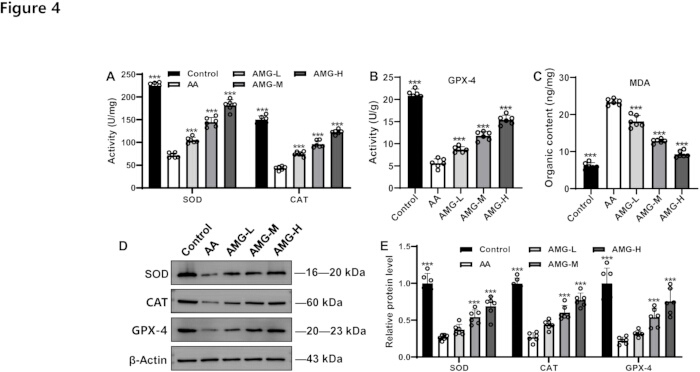
図 4: AAマウスの皮膚サンプルにおける酸化ストレス指標へのAMGの影響。(A) 生化学的検査キットを用いて評価したSODおよびCATレベルに対するAMGの刺激効果。 (B) および (C) において、AMGはGPX-4レベルを上昇させ、MDAレベルを抑制した。 (D) SOD、CAT、およびGPX-4の代表的なタンパク質バンド。 (E) SOD、CAT、およびGPX-4のタンパク質発現の定量結果。実験結果は平均値 ± SDで示している。 ***p < 0.001(AA群との比較);n = 6. こちらのリンクをクリックして、この図の拡大版を表示してください。
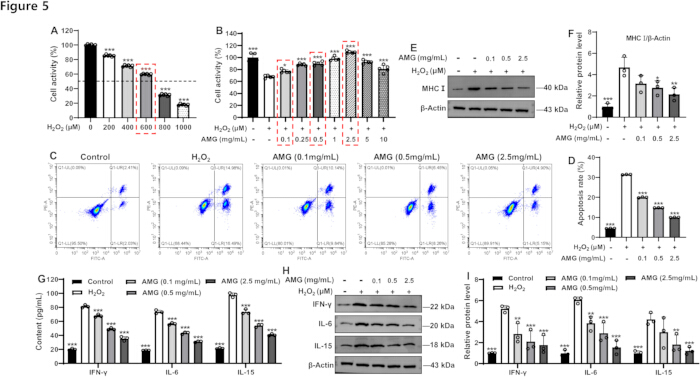
図 5: H2O2で誘導したHPEMsのアポトーシスおよび炎症指標に対するAMGの影響. (A) 様々な濃度のH2O2がHPEMsの生存率に及ぼす影響 (n = 6). (B) H2O2刺激で誘導したHPEMsの生存能力に対する様々な濃度のAMGの影響 (n = 6). (C) H2O2刺激で誘導したHPEMsにおけるAMG介在性アポトーシスを評価するために、フローサイトメトリー解析を用いた. (D) 細胞アポトーシスの統計結果. (E) MHC Iのウェスタンブロットバンド. (F) タンパク質MHC Iの相対発現量の定量結果. (G) H2O2刺激で誘導したHPEMsにおけるIFN-γ、IL-6、およびIL-15に対するAMGの影響. (H) IFN-γ、IL-6、およびIL-15のウェスタンブロットバンド. (I) タンパク質IFN-γ、IL-6、およびIL-15の相対レベルの定量結果. 実験結果は平均値 ± SDで示されている. *p < 0.05, **p < 0.01, ***p < 0.001 (H2O2群との比較); n = 3. この図の拡大版を表示するには、ここをクリックしてください。
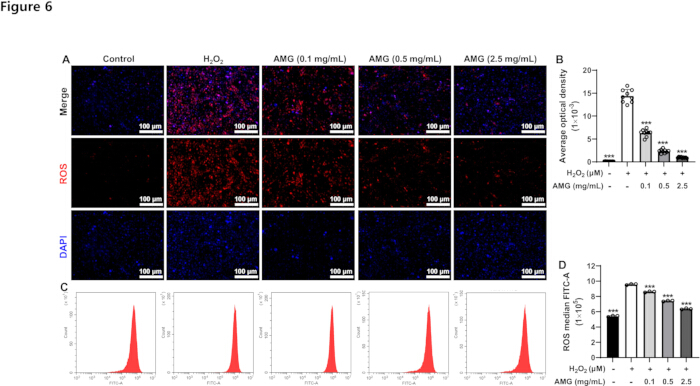
図 6: H2O2によって誘導されたHPEMにおけるROSに対するAMGの影響。(A) ROSの蛍光画像。(B) ROSの蛍光定量統計結果。(C) ROSのフローサイトメトリー画像。(D) ROSのフローサイトメトリー定量統計結果。実験結果は平均値 ± SDで示している。***p < 0.001 (H2O2群と比較); n = 3. こちらのリンクをクリックして、この図の拡大版を表示してください。
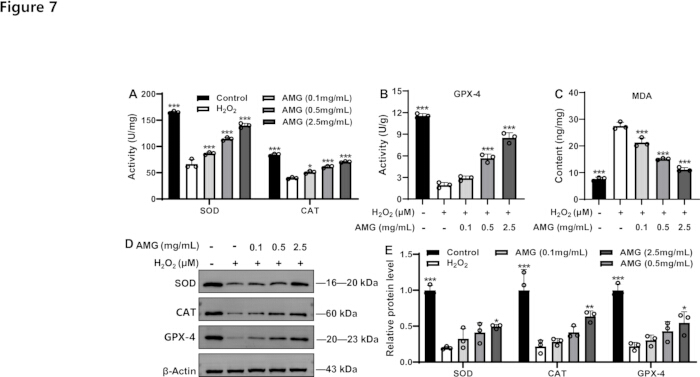
図7: H2O2により誘導されたHPEMsにおける酸化ストレス指標に対するAMGの影響。HPEMsにおけるSOD (A)、CAT (B)、GPX-4 (C) およびMDAのレベルを、生化学キットまたはELISAキットを用いて測定した。SOD、CAT、およびGPX-4のウェスタンブロットバンド (D) と、その定量結果 (E)。実験結果は平均値 ± SDで示す。*p < 0.05, **p < 0.01, ***p < 0.001 (vs. H2O2群); n = 3. この図の拡大版を表示するには、ここをクリックしてください。
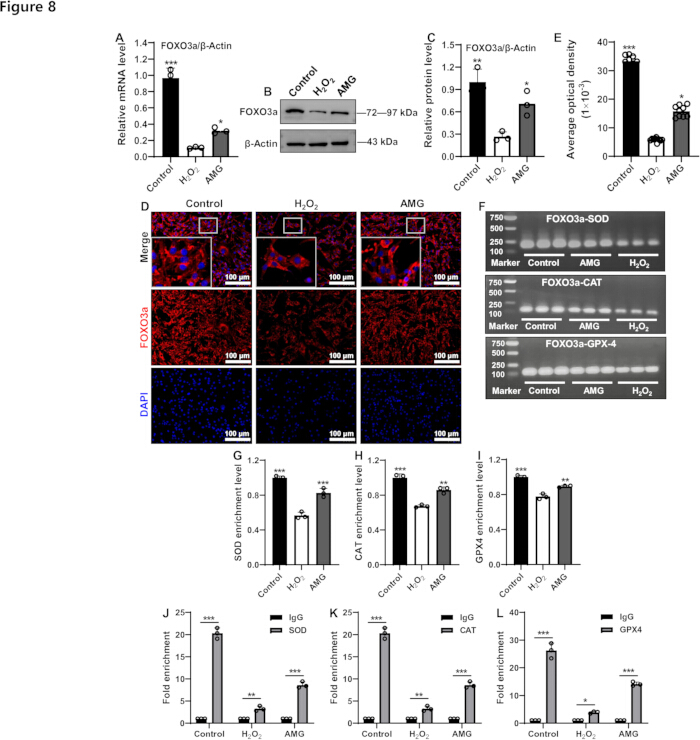
図8H2O2により誘導されたHPEMにおけるFOXO3aに対するAMGの影響2O2. (A) FOXO3a遺伝子の発現レベル。FOXO3aのウェスタンブロットバンド(B)およびその定量結果(C)。FOXO3aの蛍光画像(D)およびその蛍光定量統計結果(E). (F) FOXO3a-SOD、FOXO3a-CAT、およびFOXO3a-GPX-4のChIP-PCRにおける代表的な電気泳動パターン。SOD (G)、CAT (H)、およびGPX-4(I). SODのプロモーターにおけるFOXO3aの濃縮レベル(J)、CAT(K)、およびGPX-4(L)がChIP-PCRにより検出された。実験結果は平均値として提示されている。 ± 標準偏差 *p < 0.05, **p < 0.01および ***p < 0.001 対 H2O2 群、または指示された群に対して;n = 3。 こちらの図を拡大して表示するには、ここをクリックしてください。
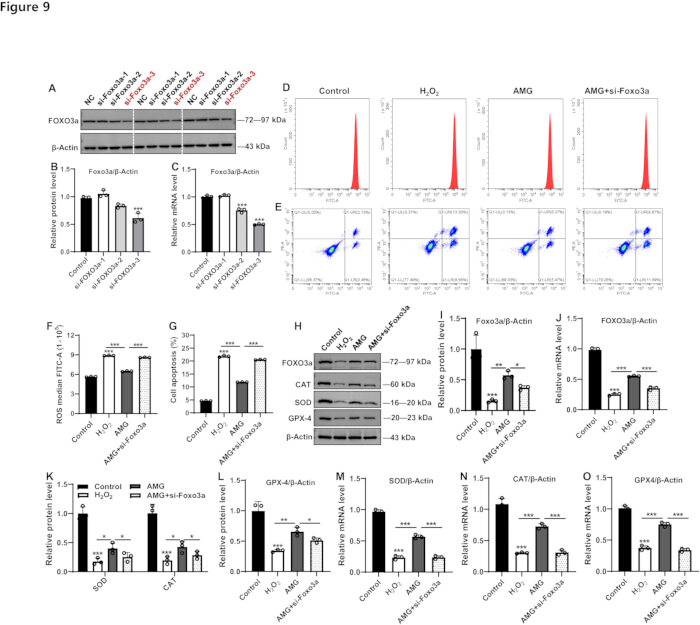
図 9: FOXO3a低発現かつH2O2刺激を与えたHPEMs細胞における、酸化ストレスおよびアポトーシスに対するAMGの影響。(A) FOXO3aのウェスタンブロットバンドおよびその定量結果(B)。(C) FOXO3a mRNA発現の定量結果。(D) ROSおよび細胞アポトーシスのフローサイトメトリーグラフ(E)。および関連する統計学的知見(FおよびG)。(H) FOXO3a、SOD、CAT、およびGPX-4のウェスタンブロットバンド。(I) FOXO3aタンパク質発現の定量結果。(J) FOXO3a mRNA発現の定量結果。(KおよびL) SOD、CAT、およびGPX-4タンパク質発現の定量結果。SOD(M)、CAT(N)、およびGPX-4(O)の遺伝子発現の定量結果。実験結果は平均値 ± SDで示されている。*p < 0.05, **p < 0.01, ***p < 0.001 対 コントロール群、または対 指示された群;n = 3。こちらのリンクをクリックして、この図の拡大版を表示してください。
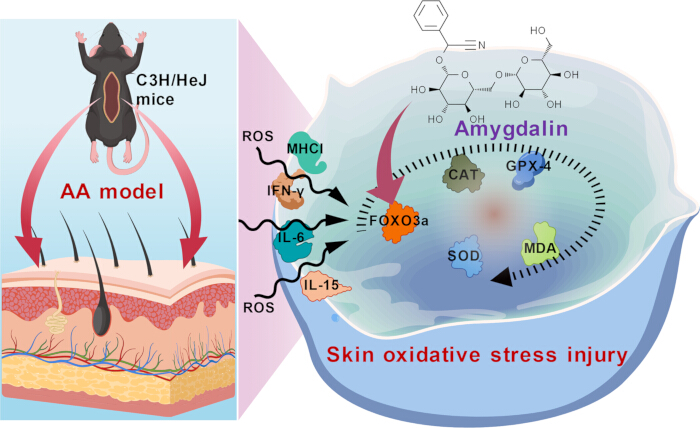
図10: 概略図 この図は、AMGがFOXO3aの発現を刺激し、それによって酸化ストレスと炎症を抑制し、AAを改善させるメカニズムを示しています。 これは著者らが~を用いて作成したものである。 BioGDP.comであり、著作権上の問題はありません。 この図の拡大版を表示するには、ここをクリックしてください。
| 遺伝子 | 種 | 配列 (5' - 3') | 塩基長 (bp) |
| FOXO3a | マウス | フォワード:GCAAGCCGTGTACTGTGGA | 116 |
| 相補鎖:CGGGAGCGCGATGTTATCC | |||
| FOXO3a | ヒト | フォワード:CGGACAAACGGCTCACTCT | 150 |
| リバース:GGACCCGCATGAATCGACTAT | |||
| スーパーオキシドディスムターゼ | ヒト | フォワード:AAAGATGGTGTGGCCGATGT | 167 |
| リバース:CAAGCCAAACGACTTCCAGC | |||
| 触媒 | ヒト | フォワード:CTATCCTGACACTCACCGCC | 129 |
| リバース:CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | ヒト | フォワード: GCAAGGGCATCCTGGGAAAT | 84 |
| リバース:GTTCTTGTCGATGAGGAACTGTG | |||
| β-アクチン | ヒト | フォワード:AATCTGGCACCACACCTTCTACAA | 172 |
| リバース:GGATAGCACAGCCTGGATAGCAA | |||
| β-アクチン | マウス | フォワード:GTGCTATGTTGCTCTAGACTTCG | 174 |
| リバース:ATGCCACAGGATTCCATACC |
表1:qRT-PCRに使用した遺伝子配列情報。qRT-PCRに使用したプライマー。
| 遺伝子 | 種 | 配列 (5' - 3') | 長さ (bp) |
| SOD | ヒト | Forward: TGCCAGAAGAGGGACAGAACAGG | 173 |
| Reverse: ATCCGCCCACAGACACGAGAG | |||
| CAT | ヒト | Forward: GGGAAGCAGATTTCTCCAGTG | 141 |
| Reverse: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | ヒト | Forward: TGGCACATTTTGGGGTTGGAAC | 103 |
| Reverse: TGAACGCTCCTCCTCCTTAAACG |
表2:ChIP-PCR用遺伝子配列情報ChIP-PCRに使用したプライマー。
ディスカッション
AMG自体に直接的な毒性はありません。AMGは腸内微生物酵素または胃酸によって加水分解され、極めて毒性の高いシアン化水素を生成・放出します49。その後、シアン化水素は消化管を通じて急速に血流へと吸収されて全身の組織に広がり、神経系、心血管系、および呼吸器系の組織に低酸素症を引き起こします50。メカニズムとしては、シアン化水素がシトクロムオキシダーゼ中の鉄イオンと結合して細胞呼吸鎖を遮断し、その結果、組織の低酸素状態と細胞代謝障害を招き、急性中毒を誘発します51。毒性症状には、頭痛、吐き気、嘔吐、呼吸困難が含まれます49,52。重症の場合、呼吸不全や死に至ることがあります49,52。したがって、AMGの安全な投与量範囲を確保することは、その薬理効果を研究するための前提条件となります。本研究において著者らは、まず病理学的検査を通じて、使用した用量(60、90、および120 mg/kg)が正常なC3H/HeJマウスにおいて肝毒性または腎毒性を引き起こさないことを確認しました。これが、AMGによる円形脱毛症治療に関するさらなる研究の基礎となります。
IFN-γは、主に活性化されたCD4+/CD8+ T細胞によって分泌され、AAの発症における炎症の重要な駆動因子として機能します53,54,55。IFN-γは、毛包の免疫特権を破壊し(MHC Iの低発現を抑制するなど)、自己反応性T細胞に毛包のメラノサイトを攻撃させ、その結果、毛母細胞の空胞化や毛球の異常角化を引き起こします56,57。動物実験では、IFN-γ遺伝子を欠損したマウスがAAへの耐性を示すことが示されています58。IL-6およびIL-15は、JAK/STATシグナル伝達カスケードを活性化し、IFN-γの放出を促進することで、Th1型免疫応答を増強させます59。さらに、IL-15はNK細胞およびT細胞の増殖を刺激し、毛包構造周囲の炎症性浸潤を悪化させます60。正常な毛球はMHC Iの低発現によって免疫監視を回避していますが、AA患者ではMHC Iが異常にアップレギュレートされており、毛包のメラノサイトがT細胞攻撃の標的となります61。本研究において、著者らはAMG治療がC3H/HeJマウスの皮膚におけるMHC I およびIL-15タンパク質レベルを有意にダウンレギュレートしたことに注目しました。先行する動物実験においても、AMGがAAマウスにおけるIFN-γおよびIL-6レベルを抑制できることが確認されています38。H2O2により誘発されたHPEMsの傷害において、AMG治療後はMHC IおよびIFN-γ、IL-6、IL-15を含む前炎症性サイトカインが著しく制限されました。これらのデータは、AMGのAA治療における潜在的な効果が、免疫と炎症のバランス維持に関連している可能性を示唆しています。
抗酸化酵素系(SOD、CAT、およびGPX-4)と脂質過酸化マーカーであるMDAおよびROSとの不均衡は、AAの病態形成において重要な役割を果たしています62。SODはO2·⁻からH2O2への変換を触媒することで酸化ストレスを軽減し、一方でCATおよびGPX-4はH2O2をさらにH2Oに分解し、ROSの蓄積を防ぎます。過剰なROSは脂質過酸化を誘発し、MDAレベルの上昇を招き、毛包細胞に直接的な損傷を与えることが示唆されています63。AA患者では、毛包におけるROSの除去能力が低下し、MDAの蓄積が毛乳頭細胞のアポトーシス死を悪化させることで、毛包が早期に休止期へと移行します63。さらに、酸化ストレスは炎症性因子であるIFN-γの放出を促進し、免疫攻撃と毛包の変性をさらに悪化させる可能性があります64。本研究において、研究者らはAMG介入がAAマウスの皮膚における過剰発現したROSおよびH2O2誘発性のHPEM細胞損傷を軽減することを明らかにしました。同時に、in vivoおよびex vivoの実験的調査の両方において、AMG治療が抗酸化指標(SOD、CAT、およびGPX-4)を有意に増加させ、一方で前酸化指標であるMDAを弱めることが示されました。これらの証拠は、酸化ストレスのバランスを維持することが、AMGによるAAへの寄与であることを示しています。GPX-4活性の低下がMDAの制御不能な生成につながり、これがフェロトーシスプロセスを誘発する可能性があることを考慮すると、これらの分子プロセスもAAの悪化に寄与し、AMG治療の潜在的なメカニズムとして機能すると考えられます。これらすべてについては、今後さらなる実験的な検証が必要です。
主要な転写因子であるFOXO3aは、酸化ストレスおよび免疫調節経路の両方を介して、AAの病態生理に関与している可能性がある。65酸化ストレス下で核内に移行し、SODやCATなどの主要な抗酸化酵素をアップレギュレートすることで、過剰なROSを除去し、頭皮組織への酸化的な損傷を軽減させることができる。局所的な酸化負荷を軽減することで、FOXO3aは毛包の免疫特権を安定させ、非瘢痕性脱毛症を引き起こす自己免疫攻撃を抑制することができる。酸化ストレス調節に関しては、FOXO3aの活性化によってSODやCATなどの抗酸化酵素の発現がアップレギュレートされ、ROSの蓄積が抑制される。65しかしながら、FOXO3aの機能不全は、主要な脂質過酸化産物であるMDAの生成亢進を引き起こし、それによって細胞アポトーシスを悪化させる可能性がある66。免疫調節レベルでは、FOXO3aはMHC I制限抗原を調節することで自己免疫攻撃を誘発する。67本研究では、AMGがC3H/HeJマウスの皮膚組織およびH2O2誘発HPEM細胞において、FOXO3aのタンパク質レベルおよび遺伝子レベルを劇的に上昇させたことを報告した。さらに、FOXO3a発現レベルの低いHPEM細胞において、AMGはROSレベルと細胞アポトーシスを減少させる一方で、FOXO3aの発現、およびFOXO3aによって調節されるSOD、CAT、GPX-4のレベルを上昇させた。 総合的に、これらの知見は、円形脱毛症(AA)に対するAMGの治療効果が、FOXO3aを介した酸化ストレスと細胞アポトーシスの調節バランスに密接に関連していることを示唆している。AMGによるFOXO3aを介したAA改善の因果関係を考慮すると、今後の研究では、AMGの介入下でFOXO3aの過剰発現または薬理学的阻害を行う必要がある。加えて、AMGを介したFOXO3aが酸化ストレスを軽減し、炎症反応を調節することで、ROS誘発性損傷および免疫介在性破壊から毛包幹細胞を保護できるかどうかについては、さらなる調査が必要である。もう一点注目すべき点は、AMGがH2O2の毒性に直接拮抗することで抗酸化効果を発揮するのかどうかである。₂O₂ あるいは、細胞内シグナル伝達を調節することによるものかについては、本研究において未解決の課題として残っている。
結論として、本研究ではまず、試験した投与量においてAMGが肝臓および腎臓に対して潜在的な毒性を持たないことを確認した。さらに、分子レベルにおいて、AMGがFOXO3aの発現を促進し、それによってSOD、CAT、およびGPX-4の発現を転写レベルで活性化させ、炎症反応およびアポトーシスを抑制することでAAを治療する可能性が示された(図 10)。しかし、本研究にはいくつかの限界があり、今後の研究で探求および解明する必要がある。第一に、AA動物におけるAMGの長期毒性および薬物動態特性を明らかにすることは、その薬理効果および分子メカニズムに関する詳細な研究の基盤および前提条件となる。第二に、AA治療におけるAMGの薬理効果については、複数の動物モデルを用いた大規模な研究および臨床試験による確認が依然として必要である。分子メカニズムに関しては、AMGの薬理効果を媒介しているのがFOXO3aであるかどうかをさらに確認するため、レスキュー実験を行う必要がある。また、AMGによる直接的な抗酸化活性によるものか、あるいはAMGが媒介するFOXO3aによる抗酸化効果であるかについては、さらなる探求が必要である。
開示事項
著者らは、利益相反を宣言するものはありません。
著者’ 寄与:
Xun He:調査、方法論、執筆 – 草稿作成。劉景松、王嘉偉、戴哲:データキュレーション。龔玉剛、盧偉、沙小偉:ソフトウェア、可視化、検証。何勲:概念化、執筆 – レビュー & 編集、資金獲得、および監督
謝辞
本研究は、四川省幹部保健委員会(2024-221)の支援を受けて実施されました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 5×オールインワンマスターミックス(AccuRTゲノムDNA除去キット含有) | Applied Biological Materials Inc.(中国、江蘇省) | G492 | |
| β-アクチン抗体 | Affinity Biosciences Co., Ltd.(中国、武漢) | AF7018 | |
| アミグダリン | 成都Herbpurify Co., Ltd.(中国、成都) | K-001-181216 | |
| カタラーゼ抗体 | Proteintech, 中国 武漢 | 66765-1-Ig | |
| カタラーゼキット | Elabscience、中国、武漢 | E-BC-K031-M | |
| C3H/HeJマウス | Chengdu Yaokang Biotechnology Co., Ltd.(中国、成都) | N000190 | |
| ChIPアッセイキット | Beyotime Biotechnology(中国、上海) | P2078 | |
| 254培地 | Gibco, Thermo Fisher Scientific, アメリカ | M-254-500 | |
| DAPI染色試薬 | Servicebio(中国、武漢) | G1012 | |
| ディスパーゼ II | Shanghai Yuanye Bio-Technology Co., Ltd., 上海, 中国 | S25046 | |
| EvaGreen Express 2×qPCRマスターミックス-ダイなし | Applied Biological Materials Inc.(中国、江蘇省) | MasterMix-ES | |
| ファストブラック HB | Sangon Biotech Co., Ltd.、中国、上海 | A602008-0025 | |
| ウシ胎児血清 | エブリグリーン | 13011-8611 | |
| 蛍光顕微鏡 | SOPTOP | CX40 | |
| FOXO3a抗体 | Proteintech, 中国、武漢 | 10849-1-AP | |
| 凍結ミクロトーム | Thermo | クライオトーム E | |
| グルタチオンペルオキシダーゼ4抗体 | Proteintech, 中国・武漢 | 67763-1-Ig | |
| グルタチオンペルオキシダーゼ4キット | Elabscience、中国、武漢 | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc.(米国メリーランド州ロックビル) | —— | |
| イミキモドクリーム | 四川明心製薬有限公司(中国、成都) | H20030129 | |
| インターフェロンガンマ抗体 | Proteintech(中国、武漢) | 15365-1-AP | |
| インターフェロンガンマキット | Elabscience、中国、武漢 | E-EL-H0108およびE-EL-M0048 | |
| インターロイキン6抗体 | Proteintech、中国、武漢 | 21865-1-AP | |
| インターロイキン6キット | Elabscience、中国、武漢 | E-EL-H6156およびE-EL-M0044 | |
| インターロイキン15抗体 | Affinity Biosciences Ltd.(中国、武漢) | DF2521 | |
| インターロイキン15キット | Elabscience、中国、武漢 | E-EL-H0222 および E-EL-M0728 | |
| マロンジアルデヒド測定キット | Elabscience、中国、武漢 | E-EL-0060 | |
| MHC抗体 | Affinity Biosciences Ltd.(中国、武漢) | DF8558 | |
| 光学顕微鏡 | ZEISS | Primo Star | |
| パラフィン切片作成機 | Thermo Scientific | HM325 | |
| 病理スキャンソフトウェア | 3DHISTECH (ハンガリー) | スライドビューア2.5.0 | |
| ペニシリン・シンサイロイド溶液 | Biosharp、中国、北京 | BL505A | |
| ウサギIgG | Beyotime Biotechnology、中国、上海 | A7016 | |
| ROSアッセイキット | Beyotime Biotechnology(中国、上海) | S0033M | |
| スーパーオキシドディスムターゼ1抗体 | Proteintech(中国、武漢) | 10269-1-AP | |
| 組織包埋装置 | 武漢君傑電子有限公司(中国武漢) | JB-P5 | |
| 組織ハイドロエクストラクター | Thermo Scientific | STP420 ES | |
| 全RNA抽出キット | Foregene、中国、成都 | RE-03014 | |
| 総スーパーオキシドディスムターゼキット | Elabscience、中国、武漢 | E-BC-K020-M | |
| 白色ワセリン | Shanghai Aladdin Biochemical Technology Co., Ltd., 中国、上海 | P434227 |
参考文献
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.