本ビデオでは、高解像度イメージングに向けて、発達期および成体Drosophilaの視覚系を解剖、免疫染色、および封入するための詳細で再現性のあるプロトコルを提供します。これらの手法により、ニューロブラストのパターニング、ニューロンの分化決定、光受容体軸索の標的化、および成体ニューロピルの組織化の可視化が可能となり、視覚系の発達を研究するための汎用性の高いフレームワークとなります。
この記事について
サマリー
要約
Drosophilaの視覚系は、ニューロンの多様性がどのように生成され、機能的な神経回路へと統合されるかという、発達神経科学における中心的な問いを探究するための強力なモデルです。視覚系は、網膜と4つの異なるニューロピル(ラミナ、メドゥラ、ロビュラ、ロビュラプレート)で構成されており、これらが共同して高度に組織化された構造を形成し、網膜からの視覚入力を処理して脳の高次センターへと中継します。発達過程において、視覚系は大幅なリモデリングを受けます。幼虫の発達期には、神経上皮からニューロブラストが段階的に生成され、空間的および時間的なパターニングプログラムを統合することで非対称分裂し、多様なニューロンサブタイプを産生します。その後、これらのニューロンは分化し、成体の視覚系の機能的回路を構築する精密なシナプス接続を形成します。これらのダイナミックなプロセスは、幼虫、蛹、および成体の各段階にわたる免疫染色を用いて確実に研究することができます。 本稿では、発達期および成体のDrosophila視覚系の解剖および免疫染色のための、詳細で再現可能なプロトコルを提供します。ここでは主に、時空間的パターニングとニューロンの特定を強調するための幼虫ニューロブラストの代表的なイメージングと、成体ニューロピルの形態の可視化に焦点を当てます。これにより、発達中のDrosophila視覚系を可視化するための堅牢な枠組みが提供されます。
概要
Drosophila melanogaster(キイロショウジョウバエ)の視覚系は、神経系発達の根底にある細胞および分子メカニズムを探索するための重要な発達モデルとして機能しています。その高度に定型化した構造、広範な遺伝学的ツールキット、および保存された発達プロセスにより、神経幹細胞の発達、ニューロンの分化決定、回路構築、および脳の組織化に関する理解が進展してきました。ハエの視覚系は、複眼の網膜と、ラミナ(lamina)、メドゥラ(medulla)、ロビュラ(lobula)、ロビュラプレート(lobula plate)という4つの視覚中枢(optic neuropils)で構成されており、これらは複雑な階層的回路を形成しています1。網膜にある感覚光受容細胞が光を検知し、それを神経信号に変換します2,3,4。これらの信号は、4つの視覚中枢を相互に接続する局所的な介在ニューロンおよび投射ニューロンを通過し、そこでの連続的な処理段階を経て、コントラスト、動き、色などの視覚的特徴が抽出されます4,5。処理された視覚情報は、その後、視覚投射ニューロンを介して高次脳中心へと伝達され、さらなる統合が行われます4,5,6。
発達中の視葉では、増殖性の神経上皮(NE)を複雑な神経回路ネットワークへと変換させる、精密にタイミングが制御された一連の発達事象が起こります7,8。NEは胚発生中の視 placode に由来します7,8。幼虫期において、神経上皮細胞はまず対称分裂を通じて増殖し、前駆細胞プールを拡大させます。その後、細胞は徐々に神経芽細胞へと移行し、非対称分裂を行うことで、成体視覚系のニューロンおよびグリア細胞を産生します9,10,11,12,13。時空間的なパターニング機構によってニューロンのアイデンティティが多様化し、新たに産生されたニューロンは発達中の髄質(medulla)内で同心円状の層を形成し、その後、蛹期の発達過程で機能的な回路へと分化します14,15,16,17,18,19。時空間的なシグナルの統合により、細胞型特異的なニューロン転写因子が活性化され、その持続的な発現によってニューロンの細胞型が規定されます14,15,20,21,22。同様の機構がラミナ(lamina)およびロビュラ(lobula)にも存在し、ニューロンのアイデンティティを規定しています14,23,24,25,26。
視覚系の発達における免疫蛍光イメージングは、その発達の根底にある細胞および分子レベルのイベントを可視化するための最適な手法となっています。可視化を成功させるには、高品質な組織サンプルの調製と信頼性の高い免疫染色試薬だけでなく、慎重な解剖と封入時の正確なサンプル方向の設定が不可欠です27,28。脳の解剖学的特徴を明らかにするには、異なる発達構造や細胞プロセスに応じて、サンプルを特定の方向に向ける必要があります。いくつかの論文やプロトコルで、Drosophila脳の解剖と免疫染色について詳細に記述されています28,29,30,31,32。しかし、視覚系で広く研究されている発達プロセスの文脈でこれについて述べたものはごくわずかです27.
本稿では、幼虫および成虫の視覚系の解剖、免疫染色、およびマウントに関する包括的なプロトコルを提示します。広く普及している注射針を用いた簡便で費用対効果の高い幼虫脳の解剖法を導入することで、専門的な解剖ツールが限られている研究室や教育現場でもこの手順を容易に実施することが可能になります。本プロトコルの実証として、幼虫の神経上皮から神経芽細胞への(NEからNBへの)移行の可視化、発達中の髄質における同心円状の神経組織化、および成虫の視葉ニューロピルの代表的な例を示します。また、発達中および成虫の視覚系における空間的・時間的パターニングおよび光受容体のターゲティングの解析例も提供します。これらの手順と規定のマウント方向を合わせることで、神経発達研究における発達中および成熟したDrosophila視覚系の再現性が高く高品質な画像を得るための実用的な枠組みが提供されます。
プロトコル
1. 試薬および器具の準備
Drosophilaの視覚系を正常に解剖し免疫染色するためには、実験を開始する前にすべての試薬と器具を準備しておく必要があります。あらかじめすべての溶液を調製しておくことで、組織の操作時間を最小限に抑え、手順全体を通して組織の形態を維持することができます。以下の試薬を調製し、すぐに使用できるように準備してください:
- リン酸緩衝生理食塩水 (1x PBS):組織の解剖、洗浄、および試薬調製用に、10xストック溶液から1x PBSを調製する。PBSは、操作中の組織の完全性を維持するための等張環境を提供する。1x PBSは 4 °C で保存する。
- 解剖培地:解剖には、氷冷したSchneider's insect mediumを使用する。Schneider's mediumは、昆虫の血リンパのイオン組成を密接に模倣するように処方されており、Drosophila 組織をサポートするため、長時間の解剖に推奨される。
- 固定液 (1x リン酸緩衝生理食塩水およびTriton X-100 (PBST) 中 4% ホルムアルデヒド):最適な固定と組織保存を確実にするため、16% ホルムアルデヒドストックから1x PBSTを用いて新鮮な 4% ホルムアルデヒド溶液を調製する。
注意:ホルムアルデヒドは反応性が高く、吸入、経口摂取、または皮膚吸収により毒性を示す。適切な個人用保護具 (PPE) を着用し、化学薬品用ドラフトチャンバー内で取り扱い、専用のホルムアルデヒド有害廃棄物として廃棄すること。 - 洗浄バッファー (1x PBST):洗浄および透過処理に使用するため、PBST (0.3% Triton X-100を含む 1x PBS) を調製する。
- ブロッキング溶液:ブロッキング溶液として、5% 牛血清アルブミン (1x PBST中の 30% BSAから調製) または 5% ノーマルヤギ血清 (1x PBST中の 5% NGS) のいずれかを使用する。これにより、抗体の非特異的な結合を抑制できる。長期保存する場合は 4 °C で保存する。
- Sylgardコートプレートの調製:Sylgardコートした解剖皿は、組織を固定し、微細なピンセットの先端を保護する柔らかい表面を提供する。Sylgard 184のベースと硬化剤を 10:1 の比率で完全に混ざるまで混ぜ合わせる。ペトリ皿に流し込んで均一にコーティングし、乾燥するまで 37 °C で 2–4 日間硬化させる。室温 (22–25 °C) における触媒後のSylgard 184の可使時間は約 2 h であるため、この時間内に混合液を使用すること。
- 組織の形態を維持し分解を抑制するため、すべての解剖培地およびバッファーをあらかじめ冷却し、サンプル調製、解剖、および免疫染色の間は氷上に保持する。プロトコルを開始する前に、すべての解剖器具、顕微鏡スライド、カバーガラス、封入剤、およびピンセットまたは解剖針が準備され、すぐに使用できる状態にあることを確認する。適切な発生段階のハエまたは幼虫を収集し、解剖の準備を整えておく。
Drosophila melanogasterを用いた研究において、倫理的な承認やガイダンスは不要であった。
2. 幼虫脳の解剖、免疫染色および封入
- 解剖:
- 湿らせた筆を用いて、バイアル内部から3齢の徘徊期 Drosophila 幼虫を8–10匹回収し、氷冷した1X PBSが入ったガラス製スポットプレートで洗浄して、残留した餌の破片を除去する。
- ピンセットまたは小型の筆を用いて、ガラス製スポットプレートから幼虫1匹を、Sylgardを塗布していない150 mm Petri plateの中心にある氷冷した1X PBSまたはSchneider's mediumの液滴へと移す。
- 非利き手で1 mLシリンジ針を用いて幼虫の中央部を保持する。利き手で同じ位置にシリンジ針で横方向に切り込みを入れ、幼虫を2等分にする(Figure 1A–B)。
注意:シリンジ針は鋭利であり、怪我をする恐れがある。使用済みの鋭利物は指定の廃棄容器に廃棄すること。 - 非利き手で、幼虫の前半部(黒い口鉤で識別可能)の切断面を保持する。利き手のシリンジ針を用いて、靴下を裏返すように、口鉤を体腔を通して内側へゆっくりと押し込む。この操作により幼虫のクチクラが翻転し、裏返し(inside-out)の標本が作成される。この裏返し解剖法は迅速であり、脳や眼原基への損傷を防ぐのに役立つ(Figure 1C–D)。
- クチクラが翻転すると、成虫原基や口鉤に付着した脳が確認できる。シリンジ針を用いて、腸、唾液腺、脂肪体などの不要な組織を除去する(Figure 1E)。
- 解剖した脳を、氷上に保持した300 µLの氷冷1X PBSを含むガラス製スポットプレートに移す(Figure 1F)。
- 十分な数の脳が解剖できるまで、または20分が経過するまで、ステップ2.1.2–2.1.6を繰り返す。
注:組織の高い品質を維持するため、解剖時間は20分を超えないようにすること。 - 200 μLピペットを使用して、脳が浸っている程度の量だけ残して、緩衝液の大部分を吸引除去する。
- 固定:解剖皿の中の脳に200 μLの冷固定液(4% formaldehyde)を加え、顕微鏡用ガラススライドで覆う。その後、皿をベンチトップロッカーに置き、揺動速度28、揺動角度8°で20分間揺動させる。
注:組織の崩壊を防ぐため、高速での揺動は避けること。
注意:Formaldehydeは有害である。Formaldehydeを含む溶液を取り扱う際は、手袋、白衣、フェイスマスク、保護メガネなどの適切な個人用保護具(PPE)を着用すること。 - 固定液を吸引除去し、200 μLの洗浄緩衝液(0.3% Triton X-100含有 1X PBS)を加える。PBSTで迅速に2回リンスし、続いて20分間の洗浄を2回行う。
注:Triton X-100は、組織サンプルの透過性を高め、抗体の浸透を促進するために不可欠な界面活性剤である。 - ブロッキング:PBSTを吸引除去し、ブロッキング液(1x PBST中の5% Normal Goat Serumまたは5% BSA)を脳に加える。室温で40分間インキュベートする。
注:ブロッキング液でのインキュベーションにより、組織内の非特異的な結合部位が飽和され、それによってバックグラウンド染色の減少と抗体特異性の向上が得られる。抗体染色が特異的でバックグラウンドが最小限である場合は省略可能だが、このステップを推奨する。
- 免疫染色
- 推奨される希釈倍率で、約50 μLの洗浄用PBSTを用いて一次抗体カクテルを調製する。
注:抗体の安定性と活性を維持するため、調製中は抗体分注液を氷上に保持すること。 - ガラスウェルから脳を1.5 mLマイクロ遠心チューブに移す。脳が浸っている程度の量だけ残して、余分なブロッキング液を除去する。
- 抗体カクテル溶液を調製し、脳の入ったチューブに加える。20 µLピペットチップで穏やかにピペッティングして混合し、抗体を均一に分散させる。
注:50 µLの一次抗体溶液で脳をインキュベートすることで、染色の質を損なうことなく抗体消費量を抑えることができる。 - 脳の入ったチューブをスタンドに立て、4 °Cで16時間インキュベートする。
注:場合によっては、染色の質を高めるために4 °Cで48–72時間一次抗体インキュベーションを行うことができる。一次抗体は、染色の質を低下させることなく少なくとも3回再利用可能である。 - 200 μLのPBSTを加える。迅速な洗浄を2回行い、続いて20分間の長い洗浄を2回行う。
- 推奨される希釈倍率で、約250 μLの洗浄用PBSTを用いて二次抗体カクテルを調製する。
注:光退色の原因となる光への曝露を避けるため、二次抗体添加後のすべてのインキュベーションは暗所で行うこと。 - 余分なPBSTを除去し、二次抗体カクテルを脳に加える。室温(22–25 °C)で2時間、または4 °Cで16時間、段ボール箱で覆って暗所にし、ロッカー上でインキュベートする。
- PBSTを用いて、上記の洗浄ステップ(迅速なリンス2回、続いて20分間の長い洗浄2回)を繰り返す。
一時停止ポイント:脳はPBST中で4 °Cで最大1週間保存可能である。ただし、組織の分解や蛍光色素の減衰による信号損失を最小限に抑えるため、封入後できるだけ速やかにイメージングを行うことが推奨される。
- 推奨される希釈倍率で、約50 μLの洗浄用PBSTを用いて一次抗体カクテルを調製する。
- 幼虫視葉の封入
- 顕微鏡スライドを70%エタノールで洗浄し、5分間乾燥させる(Figure 2E)。
- 顕微鏡スライドの中央に2本の並行な両面テープを貼り、テープ間に5–10 mmの間隔を空ける。
- チップを切断した200 µLピペットを用いて、脳を別の清潔な顕微鏡スライドに移し、イメージング中に目的領域を妨げる可能性のある脚原基などの不要な組織を除去する。
注:イメージング中に目的領域を妨げない小さな組織は、封入時にそのままにしておいてよい。 - 両面テープを貼った顕微鏡スライドに脳を移す。
注:脳が乾燥しないよう、常に1x PBST緩衝液に浸しておいた状態で作業すること。 - 実体顕微鏡下で、脳の特徴的な膨らんだ形態と腹神経索(VNC)の位置を解剖学的指標として、各幼虫脳の前後の向きを確認する(Figure 2A–D)。
- 前方封入:膨らんだ側がスライドから離れて上を向き、VNCがスライド側を向くように脳を配置する(Figure 2A, Figure 3A)。
- 後方封入:膨らんだ側がスライドを向き、VNCがスライドから離れて反対側を向くように脳を配置する(Figure 2B, Figure 3F)。
- 側方封入:1 mLシリンジ針または細いタングステン針を用いて、前方封入した脳とVNCを正中線に沿って二分し、2つの半脳を作成する(Figure 2C)。各半球を90°回転させ、側方のlobula-plug側がカバーガラスを向き、内側の切断面がイメージング平面から離れるように配置する(Figure 2D, Figure 3K)。
注:目的の向きを得るために、実体顕微鏡下で必要に応じて脳の位置を調整する。配置中も脳を緩衝液に浸したままにすること。 - 緩衝液の大部分を吸引除去し、脳が浸っている程度の量だけ残す。
- 脳がある領域に20–40 μLの封入剤(SlowFade Gold Antifade)を加え、20 μLピペットで均一に広げる。
- カバーガラスが両方のテープストリップに乗るように注意して配置し、端をマニキュアで密封する。
注:カバーガラスを配置した後に大きな気泡ができた場合は、気泡が消えるまでカバーガラスとスライドの隙間に封入剤を追加する。
3. 成体脳の解剖、免疫染色および封入
- 解剖:成体脳の解剖は技術的な難易度が高く、慎重な取り扱いが必要です。成体脳の解剖には、鋭利なステンレス製ピンセットの使用を強く推奨します。
- 必要とされる日齢の成虫のショウジョウバエを十分な数、CO2パッドを用いて麻酔し、解剖中の麻酔状態を維持するため、氷バケツ上に置いた湿らせたティッシュペーパーに移す。
注:麻酔後、解剖中は氷上のティッシュで湿らせておくことで、CO2による維持が不要になります。2 パッドを装着し、取り扱いを容易にします。 - 精密ピンセットを用いて、成虫のハエを脚からそっとつまみ上げ、Sylgardでコーティングしたペトリ皿に移します。
- ピンを胸部中央の脳領域から離れた位置に上から刺し、Sylgardコーティング済みのプレートにショウジョウバエを固定します。氷冷した1X PBSバッファーまたはSchneider's Mediaの液滴にハエを浸し、ハエを自分の方へ回転させるかプレートを動かして、解剖に適した頭部の位置に調整します。
注意:解剖ピンは鋭利であり、怪我をする恐れがあります。指定の鋭利物廃棄容器に廃棄してください。 - 利き手のピンセットを用いて、吻および眼の間の前頭クチクラを慎重に除去し、脳を部分的に露出させる。これにより、網膜クチクラの下に開口部が形成され、その後の脳解剖においてピンセットを操作しやすくなる。
- 微細ピンセットを用いて、網膜の最外縁をそっと掴み、両側から引き離します。網膜を剥離する際、視葉を刺さないように注意してください。
- 脳に付着している気管や前腸などの残留組織を慎重に除去してください。
- 洗浄済みの脳を、~を含むガラス製スポットプレートに移します。 200 µL 氷上で保持した1X PBS。
- 十分な数の脳が回収されるか、あるいは30分が経過するまで、解剖ステップ3.1.2から3.1.7を繰り返します。
- aを使用してください 200 µL ピペットを用いて脳からPBSを吸引し、脳が浸っている状態を維持するのに十分な量だけを残します。
- 固定:添加 200 μL 摘出した成体脳が入ったガラススポットプレートに、冷たい固定液(1X PBS溶液中の4%ホルムアルデヒド)を加え、顕微鏡用ガラススライドでプレートを覆い、ベンチトップロッカーに設置してロッキング速度28で30分間振盪させる。
注意:ホルムアルデヒドは有害物質です。ホルムアルデヒドを含む溶液を取り扱う際は、適切な手袋、白衣、および保護メガネを着用してください。 - 固定液を吸引し、脳を浸すのに十分な量だけを残して、以下を添加する。 200 µL PBSTを用いて、短時間の洗浄を3回、20分間の長時間の洗浄を2回、繰り返し行う。
- ブロッキング:PBSTを除去し、ブロッキング溶液(5% NGSまたは5% BSA)中で脳を45分間インキュベートする。
- 脳を1.5 mLチューブに移し、脳が浸る程度の量だけ残して、ブロッキング溶液の大部分を除去する。
- 必要とされる日齢の成虫のショウジョウバエを十分な数、CO2パッドを用いて麻酔し、解剖中の麻酔状態を維持するため、氷バケツ上に置いた湿らせたティッシュペーパーに移す。
- 免疫染色
- 適切な希釈倍率で一次抗体カクテルを調製し、以下の溶液に溶解します。 50 µL PBSTの。
- 脳が入ったチューブに一次抗体カクテルを加え、12~16時間、以下の温度でインキュベートします。 4 °C.
- 抗体溶液を吸引除去し、PBSTを加えて短時間のすすぎを2回、次に20分間の洗浄を2回行う。
- 推奨される希釈倍率で、二次抗体カクテルを調製します。 250 µL PBSTの。
- PBSTを除去し、二次抗体カクテルを加える。ベンチトップロッカーを用い、室温(22–25 °C)で2時間、または12〜16時間静置し、 4 °C 暗所で。
- 洗浄を繰り返す(短時間洗浄を3回、長時間洗浄を2回、それぞれ20分間)。
一時停止ポイント:このステップで一旦停止し、脳をPBST中に保持してください。 4 °C 1週間。
- 成体視葉のマウント
- 70%エタノールで洗浄し、顕微鏡スライドグラスを準備する。
- 18 x 18 mmのカバーガラス2枚を、汎用接着剤の小さな滴の上に配置し、脳を設置するための隙間(1 mm未満)を設けてカバースリップブリッジを作成します(図2F).
- 使用して 200 µL チップの先端を切り、洗浄した脳をスライドガラス上に転送し、イメージング時の視界を遮る可能性がある気管や頭部角皮などの組織を除去します。
- 洗浄済みの脳を、ステップ3.3.2で準備したマウント用スライドに転送してください。
注意:封入手順の間、脳を常に1x PBSTに浸し、乾燥させないようにしてください。 - 実体顕微鏡下で、各成体脳の全体的な形態に基づき、前後方向を特定する。凸面が前側に、凹面が後側に相当する。
- 前方方向への固定:脳の前方表面および触角葉がカバーガラス側を向くように配置する(図4A).
- 後方マウント:脳の後面をカバーガラスに向け、触角葉がカバーガラスと反対側に向くように配置します(図4D).
- 側方固定:視覚ニューロピルがイメージング平面に対して平行になるように脳を配置する。脳を前方位置に置き、回転させる。 90°、そしてそれをスペーサーカバーガラスの端に当てて支えます(図4G).
- 1x PBSTバッファーの大部分を吸引し、脳が浸っている状態を維持するのに十分な量だけを残します。
- 追加 40 μL 封入剤(できればVECTASHIELD Antifade Mounting Media)を脳が存在する領域に滴下し、その後、カバーガラスを用いて均一に広げます。 20 μL ピペットで吸い出します。必要に応じて、封入剤を追加してください。
注:VECTASHIELD Antifade Mounting Mediaは、粘度が高いためカバーガラス間の隙間に留まりやすく、カバースリップブリッジスライドに適しています。 - 22 x 22 mmのカバーガラスを、2枚のカバーガラスの上に載るように慎重に配置します。隙間に封入剤を追加し、気泡を取り除きます。
- 縁をマニキュアで封止します(図2F).
4. 画像取得および画像処理
- Leica STELLARIS 8 共焦点顕微鏡を用い、40倍(NA = 1.3)および63倍オイル浸漬(NA = 1.4)対物レンズを使用して、1024 × 1024 ピクセルの解像度で画像を撮影する。
- スキャン速度 200 Hz、zステップ 1 µm でZスタック画像を収集する。
- サンプルに応じて 0.75–1.0倍のズーム範囲で、双方向スキャンを用いて撮影する。
- 各蛍光色素に適した検出器を使用し、ゲイン設定 100 で検出を行う。
注:励起波長は 405, 488, 555, 647 nm を使用し、撮影する抗体および蛍光色素に応じてレーザー出力を調整する。 - Leica 撮影ソフトウェアを用いて画像を収集し、Fiji/ImageJ2 バージョン 2.16.0/1.54p を用いて処理する。
結果
発達中の視葉の全体構造を維持し、その解剖学的特徴、発生段階の移行、および細胞型を正確に捉えるためには、適切な解剖、免疫染色、および正しいマウント方向が不可欠です。マウント方向を変えることで、ショウジョウバエ(Drosophila)の幼虫および成虫の視覚系を相補的な視点から観察でき、異なる解剖学的領域や神経細胞の特徴を可視化することが可能になります。
幼虫の固定方向:
このセクションでは、発達中の幼虫視葉のイメージングを容易にする代表的なマウント方向について説明します(図3)。幼虫脳の模式図では、OPC、medulla、およびlaminaを含む主要な視葉構造が強調されています(図3A)。前方マウントでは、OPC、神経上皮から神経芽細胞への(NE-to-NB)転換、medulla神経芽細胞のバンド、および発達中のlaminaが観察されます。Deadpan (Dpn)、E-Cadherin (ECad)、およびDachshund (Dac)で染色した前方マウント脳では、これらの構造が明示されます(図3B)。また、この方向では、Hth、Opa、Erm、およびEyの連続的な発現によって示される、medulla神経芽細胞における時間的な転写因子カスケードも分解して観察できます(図3C)。anti-Chp抗体で標識され、laminaニューロンに混在する光受容体軸索も、前方方向で可視化可能です(図3D, E)。 後方マウントでは、内部増殖中心 (IPC) とOPCの先端が露出し、発達中の視葉の相補的な視点が得られます(図3F, G-H)。laminaニューロンに混在する光受容体軸索(Chp陽性)は、後方方向でも可視化できます(図3I, J)。前方マウントと併せて、この方向により、発達中の幼虫視覚系の異なる領域への相補的なアクセスが可能になります。 側方マウントでは、OPCの空間的パターニングとニューロンの同心円状の組織化が明らかになります(図3K)。側方マウントでは同時に、medullaニューロンの同心円状の組織化を観察できます(図3L)。代表的なニューロン集団には、空間ドメインに依存しないBsh陽性medulla内在性ニューロン (Mi1) やTfAP-2陽性transmedullaryニューロン (Tm1, Tm2, Tm4, Tm6) のほか、Dm8、DRA-Dm8、Dm11などの領域特異的なニューロンサブタイプが含まれます(図3L)。VsxおよびOptix (Optix-GAL4>GFP) は神経上皮 (NE) には存在しますが神経芽細胞 (NB) には存在せず、一方RxはNEとNBの両方に見られます19。さらに、VsxとRxは、それぞれの空間ドメインに対応する特定の有糸分裂後ニューロンで発現しています19 (図3M)。laminaおよびmedullaを標的とする光受容体軸索は、側方方向で可視化できます(図3N, O)。これらのマウント方向により、medulla神経芽細胞の空間的および時間的パターニングが、いかにして異なるニューロンのアイデンティティを生み出すかを分析することが可能になります14,22。
成虫のマウント方向:このセクションでは、成虫のDrosophila視葉をイメージングするためのマウント方向の概略図と代表例を示します。前方向からのマウントでは、視葉を正面から観察でき、ラミナ(lamina)、メデュラ(medulla)、およびロビュラ(lobula)とロビュラプレート(lobula plate)の前方が明らかになります(図 4A)。Anti-Bruchpilot (Brp) は視覚ニューロピルを標識し、Bsh はメデュラ皮質の Mi1 ニューロンを標識します(図 4B)。同じ方向で、anti-Chaoptin (Chp) はラミナおよびメデュラに投射する光受容体軸索を標識します(図 4C)。後方向からのマウント方向では、視葉のより深い領域が露出し、メデュラニューロピルの深部を可視化することが可能になります(図 4D、E)。この方向において、Chp 染色はメデュラ内の光受容体終末を解像します(図 4F)。 側方向からのマウントでは、視葉を側面から観察でき、ラミナ、メデュラ、ロビュラ、およびロビュラプレートを同時に可視化することが可能です(図 4G、H)。Bsh はラミナニューロン(L4 および L5)とメデュラ固有ニューロン(Mi1)を標識し、Brp はニューロピルの境界を定義します。光受容体の投射はラミナおよびメデュラ内に標的を持ち(図 4I)、成虫の視覚系の構成の概要を提供します。
前方向、後方向、および側方向のマウント方向を組み合わせることで、発達期および成熟期の視覚系の相補的な観察が可能となり、研究者は実験目的に応じて異なる解剖学的領域、発達上の特徴、およびニューロン集団を検討することができます。
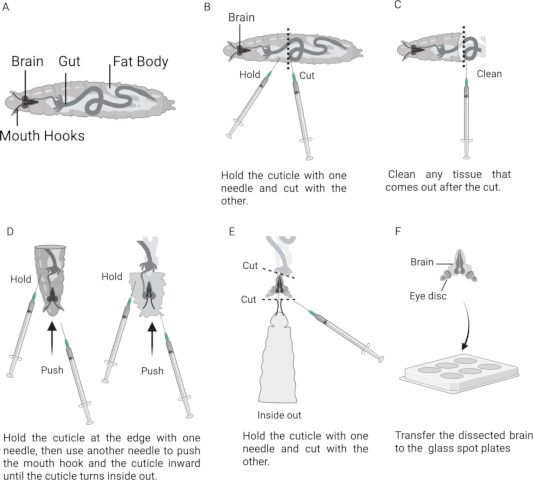
図 1: 注射針法を用いたDrosophila幼虫脳の解剖。(A) 脳および関連する解剖学的構造の位置を示す、3齢幼虫後期の模式図。(B) 2本の注射針の間に固定された幼虫を示す。点線は横断的に切断するおおよその位置を示す。(C) 周辺組織を除去した後の幼虫の前半身。(D) 注射針を用いて幼虫の角質層を反転させる一連の手順。(E) 脳、成虫原基、および口鉤が露出した反転標本。(F) ガラス製スポットプレートに分離された幼虫脳。こちらのリンクをクリックして、この図の拡大版を表示してください。
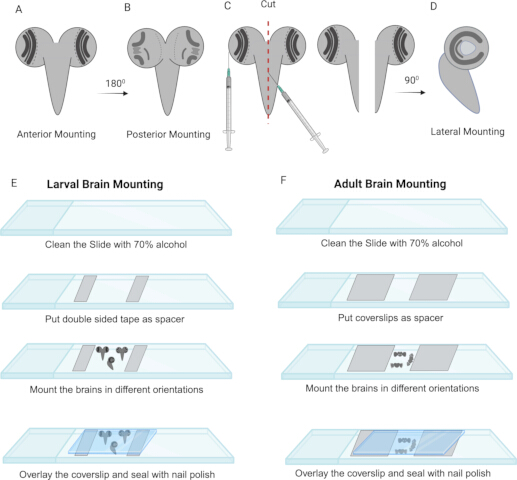
図2: Drosophilaの幼虫および成虫の視覚葉のマウンティング手順。(A) 幼虫脳の前方マウンティング方向。(B) 幼虫脳の後方マウンティング方向。(C) 注射針を用いた、前方マウンティングした脳の左右二分。(D) 半片化した脳の側方マウンティング方向。(E) 幼虫脳のマウンティングにおける代表的な手順。(F) 成虫脳のマウンティングにおける代表的な手順。こちらのリンクをクリックして、この図の拡大版を表示してください。
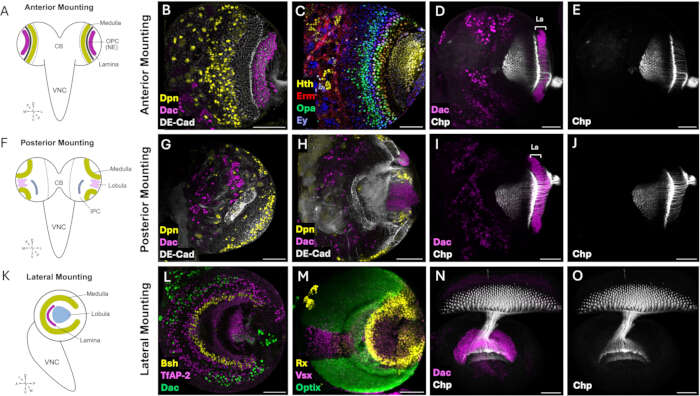
図 3: Drosophila 幼虫の視覚系をイメージングするためのマウント方向。 (A) 幼虫3齢脳の前方マウント方向を示す模式図。前方表面をカバーガラスに向けている。(B) 前方マウントした幼虫脳の代表的な共焦点画像。anti-DE-Cadherin(DE-CAD、灰色)でラベルされた外側増殖中心(OPC)、anti-Deadpan(Dpn、黄色)でラベルされた髄質神経芽細胞、およびanti-Dachshund(Dac、マゼンタ)でラベルされた発達中のラミナを示す。(C) 神経芽細胞の発達過程で、時間的転写因子であるHomothorax (Hth)、Odd-paired (Opa)、Earmuff (Erm)、Eyeless (Ey) を順次発現している髄質NBの画像。(D-E) 眼原基から発達中のラミナおよび髄質へと投射する光受容体軸索の代表的な画像。(F) 幼虫脳の後方マウント方向を示す模式図。後方表面をカバーガラスに向けている。(G) 視葉の後方表面の浅層の共焦点画像。内側増殖中心(IPC)およびOPCの先端に位置する髄質神経芽細胞(tOPC)を示す。(H) 後方視葉のより深部で取得した光学切片。IPCおよび発達中のロビュラを強調している。(I-J) 発達中の視葉へと投射する光受容体軸索の後方視図。(K) 半分に切断した幼虫脳の側面マウント方向を示す模式図。切断した内側面をカバーガラスに向け、発達中の髄質の同心円状の構造をラミナおよびロビュラプラグとともに可視化している。(L) 髄質ニューロン集団の同心円状の配置を示す代表的な共焦点画像。Brain-specific homeobox (Bsh) でラベルされたMi1ニューロン、TfAP-2 でラベルされたTm1、Tm2、Tm4、およびTm6ニューロン、腹側髄質のDachshund (Dac) 陽性Dm8ニューロン、および背側縁領域(DRA)のDm8およびDm11ニューロンが含まれており、髄質ニューロンサブタイプの空間的組織化を示している。(M) 外側増殖中心の最大強度投影像。発達中の視葉において転写因子Vsx、Optix (Optix-GAL4>GFP)、およびRxによって定義される空間的パターニングドメインを示している。(N-O) 側面マウント方向における光受容体軸索の代表的な画像。発達中のラミナおよび髄質内への投射とターゲティングを示している。スケールバー = 50 µm。略語:La = Lamina(ラミナ)。こちらのリンクをクリックして、この図の拡大版を表示してください。
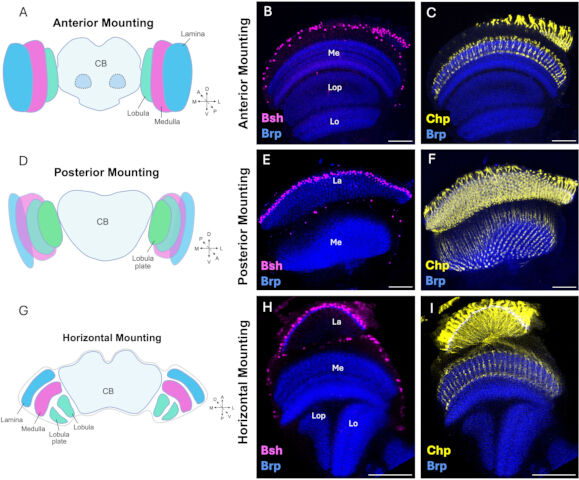
図 4: 成体Drosophila視覚系のイメージングにおけるマウント方向。(A) 成体脳の前方マウント方向を示す模式図。前方表面をカバーガラスに向けている。(B) 前方マウントした成体脳の代表的な共焦点画像。メデュラ皮質内のBrain-specific homeobox (Bsh)陽性Mi1ニューロン(マゼンタ)と、anti-Bruchpilot (Brp, 青)でラベル付けされたニューロピルを示している。この方向では、周辺のラミナ、メデュラ、ロビュラ、およびロビュラプレートを前方から観察できる。(C) anti-Chaoptin (Chp, 黄)でラベル付けされ、ラミナおよびメデュラのニューロピルに投射する光受容体軸索の代表的な画像。(D) 成体脳の後方マウント方向を示す模式図。後方表面をカバーガラスに向けている。(E) 後方マウントした成体視覚系の代表的な共焦点画像。anti-Brpでラベル付けされたメデュラニューロピルのより深い層を強調している。(F) anti-Chaoptin (Chp, 黄)でラベル付けされた光受容体軸索の後方からのビューであり、メデュラニューロピル内への標的化を示している。(G) 成体脳の側方マウント方向を示す模式図。視覚系全体の構成を可視化するため、一方の視葉をカバーガラスと平行に配置している。(H) 成体視葉の代表的な側方ビュー。Bsh陽性のラミナニューロン (L4 および L5) とメデュラMi1ニューロン(マゼンタ)、および anti-Brp (青)でラベル付けされたニューロピルを示しており、ラミナ、メデュラ、ロビュラ、およびロビュラプレートの空間的配置が明らかになっている。(I) anti-Chaoptin (Chp, 黄)でラベル付けされ、anti-Brp (青)でラベル付けされたラミナおよびメデュラのニューロピルに投射する光受容体軸索の代表的な画像。スケールバー = 50 µm。略称:Me = Medulla(メデュラ);La = Lamina(ラミナ);Lo = Lobula(ロビュラ);Lop = Lobula plate(ロビュラプレート)。この図の拡大版を表示するには、ここをクリックしてください。
ディスカッション
本プロトコルでは、高解像度共焦点イメージングに向けた、幼虫および成体Drosophilaの視覚系の解剖、免疫染色、および封入のための信頼性の高い手法を提示します。この手順により、発達中および成熟した視覚葉の構造的完全性と形態が維持され、同時に、主要な発達プロセス、ニューロン集団、およびニューロピル構造を最適に可視化できる封入方向が確保されます。代表的な例として、神経上皮から神経芽細胞への移行(NE-to-NB transition)、メドゥラ内の時空間パターニング、視覚葉における光受容体軸索のターゲティング、および成体視覚系ニューロピルの構成について説明します9,10,13,14,23。したがって、本プロトコルは、あらゆる発達段階における他のプロセスや細胞型の可視化に容易に適応可能な、柔軟な枠組みを提供します。
以前に発表された手法と比較して、本プロトコールは、幼虫および成虫のDrosophila視覚系の双方に最適化された手順を組み合わせており、異なる実験目的に合わせて調整された複数のマウント方向を提示している。これまでにもDrosophilaの脳の解剖および免疫染色のプロトコールはいくつか報告されているが28,29,30,31,32、発生プロセスの文脈で特に視覚系に焦点を当てたものは比較的少ない27。本プロトコールでは、特殊な微細ピンセットの代わりに、容易に入手可能な1 mLシリンジを用いた別の幼虫解剖法について説明する。この手法は習得までに時間を要するが、クリーンで安価かつ迅速な代替案であり、特殊な解剖器具へのアクセスが限られている教育用ラボや研究グループにとって特に有用であると考えられる。我々の理解では、この解剖法はピンセット法よりも脳への負担が少なく、ピンセット法で起こりやすい、解剖中の脳の牽引による損傷を回避できる。さらに、我々の免疫染色プロトコールでは、染色の質を損なうことなく、抗体カクテルの使用量を慎重に減らしており、高価な市販抗体を節約している。これらの特徴により、アクセシビリティ、解剖、およびマウントの面で実用的な利点が得られ、同時に、異なる実験要件に合わせてプロトコールを容易に適応させることが可能となる。
本プロトコルを成功させるには、いくつかの重要なステップに細心の注意を払う必要があります。一般的な問題の多くは、解剖、固定、染色、または封入の手順を調整することで解決できます。解剖、ロッキング、またはピペッティング中の過度な機械的ストレスは、組織の損傷や断片化を引き起こす可能性があります。そのため、解剖は氷冷PBS中で迅速に行い、周囲の組織を除去する際や、その後のロッキングおよびピペッティングでは、穏やかな操作を心がけてください。組織の歪み、形態の喪失、または染色のムラなどで示される固定不良は、固定時間の不足や固定液の不適切さが原因である可能性があります。新鮮に調製したホルムアルデヒド溶液を使用し、固定時に組織を完全に浸すことで、組織形態と染色の均一性を維持できます。染色の弱さやムラは、透過処理の不足、抗体の浸透不全、または抗体インキュベーション条件が最適でないことが原因として考えられます。透過処理や抗体インキュベーション時間を延長し、必要に応じて4 °Cで一次抗体インキュベーション時間を延ばすことで、抗体の浸透と染色が改善される場合があります。高いバックグラウンド染色は、ブロッキングや洗浄の不足、または抗体濃度の過剰により発生することがあります。適切なブロッキングと洗浄を行い、あわせて抗体濃度を適切に調整することで、非特異的な染色を低減できます。封入時の向きが不適切であると、目的の領域が隠れたり、カバーガラスから遠くなりすぎたりすることがあります。プロトコルに記載されている解剖学的指標に従って脳の向きを調整し、目的の領域をカバーガラスに近づけて配置することで、正しい解剖学的構造のイメージングが容易になります。
このプロトコルは汎用性が高いものの、特定の組織、発生段階、抗体、およびイメージング要件に応じて調整が必要な場合があります。例えば、組織によっては氷上での固定時間を短縮した方が好ましい場合がある一方で、特定の抗体では 4 °C で最大1週間の長期間インキュベーション、あるいは逆に 22–25 °C での短期間インキュベーションが必要な場合があります。固定の質は、脳および視葉全体の形態の保持、明確な組織境界、および歪み、断片化、脱落が最小限であることで評価できます。同様に、適切な透過処理は、組織全体にわたる比較的均一な抗体染色によって評価でき、これは抗体が十分に浸透したことを示します。これらの検討事項により、Drosophila の視覚系を保持しつつ、固定、透過処理、染色、および封入条件を特定の実験用途に合わせて柔軟に調整することが可能です。
開示事項
著者は利益相反がないことを宣言します。著者はすべての最終編集内容を確認し、承認しました。
スペル修正および文章の構成変更には、言語編集ツール(Grammarly)を使用した。
謝辞
Brp、Dac、DE-Cad、およびChpモノクローナル抗体は、NIHのNICHDによって設立され、アイオワ大学生物学部(Iowa City, IA 52242)で維持管理されているDevelopmental Studies Hybridoma Bankより入手した。A.B.、A.R.、およびC.S.は、NYU Abu Dhabi Center for Genomics and Systems Biology (ADHPG-CGSB)へのNYU Abu Dhabi Research Institute Awardを通じたTamkeenによる支援、およびC.D.へのNIH RO1 EY017916による支援を受けた。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Austerlitz 昆虫固定ピン, 0.15mm | Fine Science Tools | 26002-15 | |
| 抗体:マウス抗Brp抗体 | Developmental Studies Hybridoma Bank | nc82 | 希釈倍率 1:50 |
| 抗体:マウス抗Chp | Developmental Studies Hybridoma Bank | 24B10 | 希釈倍率 1:50 |
| 抗体:ラット抗DE-CAD抗体 | Developmental Studies Hybridoma Bank | DCAD2 | 20倍希釈 |
| 抗体:マウス抗Dac抗体 | Developmental Studies Hybridoma Bank | mAbdac1-1 | 1:100希釈 |
| 抗体:Sheep anti-GFP | BioRad | 4745-1051 | 希釈倍率 1:200 |
| 抗体:ウサギ抗Bsh抗体 | デスプラン研究室 | - | 1:1000希釈 |
| 抗体:モルモット抗Hth抗体 | Desplan研究室 | - | 1:100希釈 |
| 抗体:ギニアピッグ抗TfAP-2抗体 | Desplan研究室 | - | 希釈倍率 1:500 |
| 抗体:ウサギ抗Ey抗体 | Desplan研究室 | - | 希釈倍率 1:200 |
| 抗体:ラット抗Erm抗体 | Desplan研究室 | - | 100倍希釈 |
| 抗体:ギニアピッグ抗Rx抗体 | Desplan研究室 | - | 希釈倍率 1:300 |
| 抗体:ウサギ抗Vsx抗体 | Desplan研究室 | - | 1:100希釈 |
| 抗体:Alexa Fluor 405標識ドンキー抗マウスIgG | Abcam | ab175658 | 希釈倍率 1:250 |
| 抗体:Alexa Fluor 488標識ドンキー抗マウスIgG | Jackson ImmunoResearch | 715-547-003 | 希釈倍率 1:400 |
| 抗体:Alexa Fluor 555標識ドンキー抗マウスIgG | ThermoFisher Scientific | A31570 | 希釈率 1:500 |
| 抗体:Alexa Fluor 647標識ドンキー抗マウスIgG | Jackson ImmunoResearch | 715-605-151 | 希釈倍率 1:250 |
| 抗体:Alexa Fluor 405標識ドンキー抗モルモットIgG | Jackson ImmunoResearch | 706-475-148 | 希釈倍率 1:250 |
| 抗体:Alexa Fluor 555標識ドンキー抗ギニアピッグIgG | Sigma-Aldrich | SAB4600297-5OUL | 希釈倍率 1:500 |
| 抗体:Alexa Fluor 647標識ドンキー抗モルモットIgG | Jackson ImmunoResearch | 706-605-148 | 希釈倍率 1:250 |
| 抗体:Alexa Fluor 405標識ドンキー抗ウサギIgG | Abcam | ab175651 | 希釈倍率 1:250 |
| 抗体:Donkey anti-rabbit IgG Alexa Fluor 555 標識 | Invitrogen | A31572 | 希釈率 1:500 |
| 抗体:Alexa Fluor 555標識ドンキー抗ラットIgG | Abcam | Ab150154 | 希釈倍率 1:500 |
| 抗体:Alexa Fluor 488標識ドンキー抗羊IgG | Jackson ImmunoResearch | 713-545-147 | 希釈倍率 1:400 |
| BD 1ml シリンジ(25g x 16mm 針付き)x 120本 | BD | 303175 | |
| ウシ 血清アルブミン (BSA)、30% | Sigma-Aldrich | A7284-50ML | |
| カバーガラス 18 x 18 mm | VWR | 631-0120 | |
| カバーガラス 24 x 24 mm | VWR | 631-0126 | |
| 両面テープ 19mm x 33m | スコッチ | AMS12354 | |
| ショウジョウバエ:Canton S | BDSC | 64349 | |
| ショウジョウバエ:Optix-GAL4 | 京都 | 104266 | |
| ショウジョウバエ:nls-GFP/CyO-YFP | BDSC/Desplan研究室 | 4775 | |
| Flystuff Drosophila Ultimate Flypads | Genesee Scientific Corporation | 59-172B | |
| 蓋付きアイスバケット、ラウンド型、4L、ブルー | Corning | 432123 | |
| 画像 (FIJI) | (米国メリーランド州ベセスダ、国立衛生研究所) | Fiji/ImageJ2 バージョン 2.16.0/1.54p | |
| Kimtech Science Precision ワイプ | Kimberly-Clark Professional | 05511 | |
| 実験用シーリングフィルム | Parafilm M | PM-996 | |
| 顕微鏡スライドガラス | VWR | 8037/1 | |
| ミニ遠心機 | VWR | 521-2848 | |
| マニキュア | Mumuso | 2023/11/05 | |
| 正常ヤギ血清 | Sigma-Aldrich | G9023 | |
| ペイントブラシ | カムリン | S-66 | |
| パラホルムアルデヒド(PFA) | シグマ | P6148 | |
| シャーレ 100mm x 15mm | Falcon | 351029 | |
| リン酸緩衝生理食塩水 (PBS) | シグマ | P5493 | |
| PYREX® 9つの凹みのあるガラス製スポットプレート | Corning | 7220-85 | |
| ロッカー(ベンチトップ型) | Fisherbrand | 8861025 | |
| セーフロックチューブ 1.5mL | Eppendorf | O219706H | |
| シュナイダー昆虫培地 | シグマ | S0146 | |
| Slowfade gold 退色防止剤 | Invitrogen | S36936 | |
| Sylgard 184 シリコーンエラストマー | ダウ | 4019862 | |
| TritonX-100 | シグマ | 93426 | |
| タングステン針 0.25 mm | Fine Science Tools | 10130-10 | |
| タングステン針 0.5 mm | Fine Science Tools | 10130-20 | |
| UHU 多目的接着剤 | UHU | 40815 | |
| 超微細ピンセット | 世界一流研究センター (WPI) | 500235 | |
| Vectashield 退色防止封入剤 | ベクター | H-1000 | |
| ボルテックスミキサー | VWR | VM-3000 |
参考文献
- Nériec N, Desplan C. From the Eye to the Brain: Development of the Drosophila Visual System. Curr Top Dev Biol. 2016;116:247–71.
- Montell C. Drosophila visual transduction. Trends Neurosci. 2012;35(6):356–63.
- Currier TA, Pang MM, Clandinin TR. Visual processing in the fly, from photoreceptors to behavior. Genetics. 2023;224(2),1–28.
- Fischbach KF, Dittrich APM. The optic lobe of Drosophila melanogaster. I. A Golgi analysis of wild-type structure. Cell Tissue Res. 1989;258(3):441–75.
- Dorkenwald S, et al. Neuronal wiring diagram of an adult brain. Nature. 2024;634(8032):124–38.
- Matsliah A, et al. Neuronal “parts list” and wiring diagram for a visual system. bioRxiv: The Preprint Server for Biology. Preprint posted online April 2024.
- Younossi-Hartenstein A, Nassif C, Green P, Hartenstein V. Early neurogenesis of the Drosophila brain. J Comp Neurol. 1996;370(3):313–29.
- Zhang Y, Li X. Development of the Drosophila Optic Lobe. Cold Spring Harb Protoc. 2024;2024(3):108156.
- Apitz H, Salecker I. A Challenge of Numbers and Diversity: Neurogenesis in the Drosophila Optic Lobe. J Neurogenet. 2014;28(3-4):233–49.
- Egger B, Gold KS, Brand AH. Notch regulates the switch from symmetric to asymmetric neural stem cell division in the Drosophila optic lobe. Development. 2010;137(18):2981–7.
- Sato M, Yasugi T, Minami Y, Miura T, Nagayama M. Notch-mediated lateral inhibition regulates proneural wave propagation when combined with EGF-mediated reaction diffusion. Proc Natl Acad Sci U S A. 2016;113(35):E5153–62.
- Wang W, et al. Notch signaling regulates neuroepithelial stem cell maintenance and neuroblast formation in Drosophila optic lobe development. Dev Biol. 2011;350(2):414–28.
- Yasugi T, Sugie A, Umetsu D, Tabata T. Coordinated sequential action of EGFR and Notch signaling pathways regulates proneural wave progression in the Drosophila optic lobe. Development. 2010;137(19):3193–203.
- Bakshi A, Ben El Kadhi K, Desplan C. Decoding neuronal diversity: Mechanisms governing neural cell fate in Drosophila. Curr Opin Neurobiol. 2025;93.
- Holguera I, Desplan C. Neuronal specification in space and time. Science (1979). 2018;362(6411):176–80.
- Konstantinides N, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316–22.
- Li X, et al. Temporal patterning of Drosophila medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456–62.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila visual center. Dev Biol. 2013;380(1):12–24.
- Chen YC, et al. Single-locus chromatin memory enables flexible spatial fate specification in the Drosophila visual system. bioRxiv. Published online August 21, 2026:2026.08.09.743789.
- Erclik T, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365–70.
- Simon F, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila optic lobe. Nat Neurosci. 2026;29(5):1068–78.
- Bhattacharya A, Rao H, Sen SQ. Chromatin priming and Hunchback recruitment integrate spatial and temporal cues in Drosophila neuroblasts. eLife15:RP110150.
- Bostock MP, Prasad AR, Donoghue A, Fernandes VM. Photoreceptors generate neuronal diversity in their target field through a Hedgehog morphogen gradient in Drosophila. Elife. 2022;11:e78093.
- El-Danaf RN, et al. Morphological and functional convergence of visual projection neurons from diverse neurogenic origins in Drosophila. Nat Commun. 2025;16(1):1–15.
- Pinto-Teixeira F, et al. Development of Concurrent Retinotopic Maps in the Fly Motion Detection Circuit. Cell. 2018;173(2):485–98.
- Xu C, Ramos TB, Rogers EM, Reiser MB, Doe CQ. Homeodomain proteins hierarchically specify neuronal diversity and synaptic connectivity. Elife. 2023;12:RP90133.
- Arain U, Valentino P, Islam IM, Erclik T. Dissection, Immunohistochemistry and Mounting of Larval and Adult Drosophila Brains for Optic Lobe Visualization. J Vis Exp. 2021;(170):e61273.
- Zhang Y, Li X. Immunostaining of Drosophila Brains to Study Optic Lobe Development. Cold Spring Harb Protoc. 2024;2024(3):108157.
- Daul AL, Komori H, Lee CY. Immunofluorescent staining of Drosophila larval brain tissue. Cold Spring Harb Protoc. 2010;2010(7):pdb.prot5460.
- Sweeney ST, Hidalgo A, de Belle JS, Keshishian H. Dissection of adult Drosophila brains. Cold Spring Harb Protoc. 2011;2011(12):1472–4.
- Tito AJ, Cheema S, Jiang M, Zhang S. A Simple One-step Dissection Protocol for Whole-mount Preparation of Adult Drosophila Brains. J Vis Exp. 2016;(118):55128.
- Wu JS, Luo L. A protocol for dissecting Drosophila melanogaster brains for live imaging or immunostaining. Nat Protoc. 2006;1(4):2110–5.
再版と許可
この記事は公開されました
動画は近日公開