Drosophila胚を用いて、目的遺伝子の変異体表現型を評価し、筋芽細胞融合におけるそれらの役割を決定するための詳細な方法を記述します。このアプローチにより、胚の筋肉発達過程における遺伝子機能の体系的な特性解析が可能になります。
この記事について
サマリー
要約
単核の筋芽細胞が融合して多核の合胞体を形成することは、骨格筋の発達における基本的プロセスである。 キイロショウジョウバエ です このプロセスのに関与する候補遺伝子の機能を迅速かつ効率的に評価するための、強力で遺伝学的な操作が可能なモデルです。ここでは、における筋芽細胞融合表現型を解析するための、ステップバイステップの指示を含む包括的なプロトコルについて説明します。 キイロショウジョウバエ 胚。本手法には、候補遺伝子の変異系統の選択、胚の回収と固定、ホールマウント免疫染色、発生段階の判定、共焦点イメージング、および表現型解析が含まれる。ミオシン重鎖(MHC)染色は、筋肉全体の形態を可視化し、融合していない単核の筋芽細胞を特定するために用いられる。同時に、Even-skipped(Eve)染色で特定の筋線維内の核を標識することで、その線維に組み込まれた核をカウントし、融合程度の定量解析が可能となる。総合的に、本プロトコルにより、読者は任意の標的遺伝子の変異表現型を評価し、筋芽細胞融合におけるそれらの役割を検証することができる。本アプローチは、筋芽細胞融合の新規制御因子の同定および特性解析のための堅牢な枠組みを提供する。
概要
骨格筋は人体で最も豊富な組織であり、全体重の30%以上を占めています。胚発生において、骨格筋線維は、筋芽細胞と呼ばれる単核の筋細胞が融合して多核の合胞体筋線維となることで生成されます1,2。この過程は、適切な筋肉の形成、成長、および機能に不可欠であり、その破綻は多くの筋疾患に関連しています3,4。脊椎動物の骨格筋と同様に、Drosophila melanogasterの胚および幼虫の体壁筋を構成する多核の筋線維も、単核の筋芽細胞の融合によって形成されます5,6,7,8。Drosophilaでは、筋始原細胞(muscle founder cells)と融合能を有する筋芽細胞(FCMs)という2種類の筋細胞の間で、非対称な融合シナプスにおいて融合が起こります9,10,11,12,13。重要なことに、筋芽細胞の融合を制御する細胞イベントおよび分子メカニズムは、Drosophilaと脊椎動物の間で高度に保存されており14,15,16、そのためDrosophilaは筋芽細胞融合の遺伝学的および細胞学的基盤を研究するための強力なモデル生物となっています。
Drosophilaモデルには、いくつかの実験上の利点もあります。第一に、Drosophilaのライフサイクルが短い(25 °Cで約10日)ため、迅速な遺伝的交雑と効率的な変異株の作製が可能です。第二に、Drosophilaの胚は小さく、固定後の抗体透過性が高いため、組織の切断を行うことなく、ホールマウント免疫染色による筋発達の高解像度イメージングが可能です。第三に、Drosophilaの胚における筋発達は非常に定型的なパターンに従っており、ほとんどの腹部半節に30本の筋線維が存在します。各筋線維は単一のファウンダー細胞によって規定され、それが規定数のFCM(3〜30個)と融合するため17、筋芽細胞融合の再現性のある定量的な解析が可能です。最後に、遺伝子変異体や染色体欠失を持つ欠損株の公開コレクションが利用可能であるため、時間を要する変異体のde novo作製を行うことなく、ほぼすべての遺伝子の機能喪失解析を迅速に行うことができます。
Drosophila胚における筋芽細胞融合表現型を評価するための詳細なプロトコルを提示します(図 1)。本プロトコルには、適切な変異アレルなどの選択、胚の回収および固定、ホールマウント免疫染色、胚のイメージング、および融合表現型の定量分析のための戦略が含まれています。これらの手順を組み合わせることで、筋芽細胞融合に関与する候補遺伝子の遺伝学的解析のための、迅速かつ効率的なワークフローが提供されます。
プロトコル
1. 筋芽細胞融合の遺伝学的解析のための変異株の選択
- FlyBaseで目的遺伝子の変異系統を検索する。該当する遺伝子レポートページを開き、「Alleles, Insertions, Constructs, and Aberrations」の項目に記載されている変異アレルを確認する。
- 各アレルの分子レベルの病変を確認し、ヌルアレルまたは強い機能喪失アレルを選択する。ナンセンス変異、フレームシフト変異、欠失、または遺伝子機能を損なう挿入を含むアレルを優先的に選択する。
- ホモ接合体変異胚をバランサー保持の兄弟個体から区別するため、選択した変異アレルを蛍光マーカーを持つバランサー染色体上に配置する。変異アレルが位置する染色体に応じて、適切な蛍光バランサーを選択する(表1)。
2. Drosophila 胚の回収および固定
- 25 G針を用いて、100 mLプラスチックビーカーの側面と底面に複数の通気孔を開け、胚回収カップを準備する(図 1)。
- 15 gのアガーと400 mLの蒸留水(dH₂O)を混合し、121 °Cで21分間オートクレーブして、ブドウジュースアガーを準備する。溶融したアガーを、手で触れて熱いと感じる程度の温度まで冷却する。
- 100%ブドウジュース100 mLを、手で触れて熱いと感じる程度の温度まで温め、溶融アガーと十分に混合する。60 mm培養皿に約10 mLずつ分注し、室温で凝固させた後、4 °Cで保存する。
- 10 gのドライイーストを15 ml dH₂Oに混ぜ、滑らかで塗り広げられる状態にして、新鮮なイーストペーストを準備する。ペーストをブドウジュースアガープレートの中央に塗布し、プレートを25 °Cに予熱する(図 1)。
注:準備したイーストペーストは4 °Cで最大2週間保存可能である。 - 変異アレルと適切な蛍光バランサーのヘテロ接合体である3〜7日齢の成虫を回収カップに移す。
注:コントロールとして、w1118などの野生型ハエを使用する。回収カップ1つにつき、雌約50〜80匹、雄40〜50匹で十分である。 - 予熱したブドウジュースアガープレートを回収カップの上に置き、ゴムバンドで固定する(図 1)。回収カップを25 °Cで12時間インキュベートする。
- 回収カップを軽く叩いてハエを振り落とし、プレートを新しい予熱済みプレートに交換する。ハエを順化させるため、2日間にわたり12時間ごとにプレートの交換を繰り返す。
注:冷たいプレートでは産卵数が減少するため、各プレートを使用前に25 °Cに予熱すること。 - 2日間の順化期間の後、プレートを新しい予熱済みプレートに交換する。一晩(14〜15時間)ハエに産卵させる。
- 1.5 mLマイクロ遠心チューブに、蒸留水で調製した0.1% (v/v) Triton X-100を満たす。0.1% Triton X-100に浸した絵筆を用いてプレートから胚を回収し、チューブに移す。
- チューブを激しく振って胚を再懸濁させ、残留したイーストペーストを除去する。胚を沈降させた後、溶液が透明になるまで、または少なくとも3回、0.1% Triton X-100で洗浄する(図 1)。
- 最終的な次亜塩素酸ナトリウム濃度が2.85%になるように、約50%の家庭用漂白剤を1.5 mL加える。ニューテーターで3分間回転させ、胚を脱殻する。
注:脱殻しすぎると胚が損傷し、その後の免疫染色の品質が低下するため、漂白剤への長時間暴露を避けること。 - 胚を沈降させ、漂白剤を除去し、0.1% Triton X-100で3回洗浄する。
- 残りの洗浄液を除去し、リン酸緩衝生理食塩水(PBS)で調製した3.7%ホルムアルデヒド700 µLとヘプタン700 µLを加える。
注意:ホルムアルデヒドとヘプタンはドラフト内で取り扱い、適切な化学物質安全手順に従って廃棄すること。 - チューブの蓋をしっかりと閉め、30秒間激しく振る。ニューテーターで30分間回転させ、固定を完了させる。
- 上層のヘプタン相と下層の水相の界面に胚が集まるまで待機する(図 1)。胚を乱さないように注意して水相を慎重に除去する。
- メタノール約700 µLを加え、30秒間激しく振って胚を脱黄卵嚢化させる。
注:正常に脱黄卵嚢化された胚はチューブの底に沈むが、剥離した卵膜は界面に残る(図 1)。
注意:メタノールはドラフト内で取り扱い、適切な化学物質安全手順に従って廃棄すること。 - 胚が少量のメタノールに浸かった状態を維持しながら、ヘプタンとメタノールを除去する。メタノールで胚を2回洗浄する。
- ニューテーターを用い、PBST(0.1% Triton X-100含有PBS)で1回5分間、計3回洗浄して胚を再水和させる。この工程および以降のすべての工程において、胚を遮光して保護する。
注:脱黄卵嚢化後の胚は、脱水を防ぎ形態を維持するため、常に溶液に浸した状態にしておく。蛍光タンパク質およびフルオロフォア標識抗体を維持するため、周囲の光への暴露を最小限に抑えること。
3. 全身免疫染色の実施
- PBSTを除去し、胚を1.5 mLのPBSBT(0.5% BSA (w/v) および 5 mM NaN3含有PBST)に入れ、室温のニューテーターで少なくとも1時間インキュベートする。
- ピペットチップの先端を切り、開口部を広げることで、胚の移送時の機械的損傷を最小限に抑える。
- ブロッキング済みの胚を0.5 mLマイクロ遠心チューブに移し、ブロッキング溶液を除去する。抗MHC抗体(1:500)18および/または抗Eve抗体(0.5 µg/mL)を含む新鮮なPBSBTを200−300 µL加える。
- 一次抗体とともに、胚を4 °Cのニューテーターで一晩インキュベートする。
注:筋芽細胞融合表現型の特定後、定量分析のために抗Eve共染色を行う。ショウジョウバエ(Drosophila)胚の筋系を可視化するには、ウサギまたはラットの抗MHC抗体を使用できる。 - 一次抗体溶液を除去し、ニューテーター上でPBSTを用いて1回10分間、計3回胚を洗浄する。
注:必要に応じて、一次抗体溶液を4 °Cで保存して再利用する。この溶液は通常、1か月以内に最大3回まで再利用可能である。 - 適切な蛍光二次抗体を1:500に希釈した300 µLのPBSBTに入れ、室温のニューテーターで2時間インキュベートする。
- 二次抗体溶液を除去し、PBSTを用いて1回10分間、計3回胚を洗浄する。
- 最後のPBST洗浄液を除去し、封入剤を約80 µL加える。胚を顕微鏡スライドガラスに移し、サンプルの上にカバーガラスを静かに被せ、端を封印する(図1)。
注:作成したスライドは4 °Cで遮光保存し、最適な蛍光信号を得るために可能な限り速やかに撮像する。
4. 胚のステージ判定とイメージング
- 明視野照明下で、中腸の特徴的なハート型の形態19により、ステージ15後期の胚を同定する。
注:MHCタンパク質の発現は、ステージ14またはそれ以前の胚では検出されない。ステージ16の胚では、ハート型の中腸が収縮し、4つの室に分割される19。 - 蛍光マーカーの欠如により、ホモ接合体変異胚を同定する。
注:ホモ接合体変異胚は蛍光標識されたバランサーを保持していないため、蛍光タンパク質を発現しない。野生型コントロール胚については、この手順を省略する。 - anti-MHC抗体で標識された体壁筋全体を可視化するため、側面を向いた胚を選択する。
注:背面または腹面を向いた胚では、主に筋肉の対応する部分のみが露出する。筋芽細胞の融合欠損を包括的に評価するには、側面を向いた胚を使用すること。 - 信号の飽和を避けつつ明瞭なMHC蛍光を得るためにレーザー出力と検出器ゲインを調整し、各実験内のすべてのサンプルでこれらの設定を維持する。体壁筋の全深さを包含するようにz-stackの上限と下限を定義する。
- 画像解像度を1024 × 1024 pixels、ピンホールを1 Airy unit、ライン/フレーム平均を1、ズーム倍率を1に設定し、各実験内のすべてのサンプルでこれらの設定を維持する。40×油浸対物レンズを用い、1.0 µm間隔で共焦点z-stack画像を撮像する。
- 表現型の再現性を評価するため、遺伝型あたり約6−10個の胚を撮像する。
注:ホモ接合体変異遺伝型の確認が必要な場合は、MHCチャネルと同時に蛍光バランサーマーカーチャネルを撮像する。
5. 融合定量のためのDA1筋のイメージング
- 側方に方向づけられた胚において筋芽細胞の融合不全を確認した後、MHCおよびEveの共染色を行う。
- イメージング用に、背側に向いたステージ15の変異体胚およびコントロール胚を選択する。
注:Even-skipped (Eve) は、背側急性筋1 (DA1) の核に特異的に発現している20。DA1筋に組み込まれたEve陽性核の数を決定することで、筋芽細胞の融合を定量化する。 - 信号の飽和を避けつつ、鮮明なMHCおよびEveの蛍光を得られるようにイメージングパラメータを調整する。Eve信号に基づき、DA1筋の全深さをカバーするzスタックの範囲を定義する。
- 上述のイメージングパラメータを用いて、共焦点zスタック画像を取得する。融合の定量化のため、ジェノタイプごとに約6〜10個の胚を撮影する。
6. 核の定量および統計解析
- 定型的かつ反復的な筋肉パターンに基づき、腹部半節 A1−A7 を特定する。
- MHCでラベル化されたDA1筋肉内のEve陽性核を特定する。zスタック全体を確認し、各DA1筋肉内の異なる焦点面にあるすべてのEve陽性核をカウントする。
注意:各腹部半節には単一のDA1筋肉が含まれている。したがって、特定の半節内のすべてのEve陽性核は、対応するDA1筋肉としてカウントされる。 - 各胚について、A2−A5など、同一の腹部半節セットにおけるDA1核を定量化する。
注意:腹部半節 A1−A7 のDA1筋肉は定量化に適しているが、7つの半節すべてを解析する必要はない。代わりに、胚あたり A2−A5 などの複数の半節を定量化し、一貫性を保つためにすべての胚で同一の半節セットを解析する。 - 胚ごとのDA1筋肉あたりの平均核数を算出し、その平均値を1つの独立したデータポイントとして使用する。個々の胚のデータポイントを統計解析ソフトに入力し、解析およびプロットを行う。
- 2つの条件を比較する場合は、両側Student's t-検定を用いる。3つ以上の条件を比較する場合は、一元配置分散分析(one-way ANOVA)に続いてDunnett's検定を行い、p < 0.05 を統計的に有意とみなす。
結果
spook (spo) のFlyBase遺伝子レポートページを例として、適切な変異アレルを選択する方法を説明します。spo は、ステロイドホルモン生合成に関与する酵素をコードする「ハロウィン」遺伝子の一つであり21,22、筋芽細胞の融合を促進することが示されています23。spo のFlyBase遺伝子レポートページの「Alleles」セクションには、文献で報告されている12種類の spo 変異アレルが記載されており、そのうち4種類がBDSCに寄託されており (図 2A)、容易に入手可能です。目的のアレルがBDSCを通じて入手できない場合は、その変異系統を最初に報告した研究グループに直接請求することができます。
BDSCから入手可能な4つの変異アレルの中で、spo1 はミスセンス変異(G481E)を有し、一方でspoMI06810はコーディング領域内にMiMIC挿入を持ち、アミノ酸Y341でフレームシフトが生じている(図 2B,C)。Spoタンパク質は543個のアミノ酸で構成されているため、spoMI06810(Y341fs)は全長のおよそ40%を欠く短縮型タンパク質を産生すると予測され、したがって強力な機能喪失アレルである可能性が高い。以上のことから、筋芽細胞融合の表現型解析には、spo1 よりもspoMI06810が適している。
筋芽細胞の融合は、胚発生ステージ12(産卵後 [AEL] 7.3−9.3 h)に始まり、ステージ15の終わり(11.3−13.3 h AEL)までにほぼ完了する24。したがって、融合の表現型は通常、体壁筋のパターンが形成され、ほとんどの融合イベントが完了したステージ15後期の胚で評価される。
ステージ15の胚は、2つの顕著な形態学的特徴によって識別できます。それは、背側閉鎖の完了と、中腸に特徴的なハート型の形態が現れることです(図 3A–C)19。ステージ14の胚は、頭部内反が進行中であることで区別でき(図 3A)、一方、ステージ15の胚は特徴的なハート型の中腸を示します(図 3B)。ステージ16の胚は、中腸のくびれと4つの部屋(胃盲腸;図 3C)の形成によって識別可能です19。さらに、MHCタンパク質の発現はステージ14を含む初期段階では検出されませんが、ステージ15以降の段階で強力に発現します(図 3A–C)。
胚発生の後期ステージ15において、野生型(w1118)胚の体壁筋のパターニングは完了しており、側方視ではほとんどの腹部半節が同一で定型的な筋肉パターンを示します(図 3B)。この定型的な筋肉パターンは、ウサギまたはラットの抗MHC抗体を用いて可視化できます(図 3B,D)。対照的に、胚を背面または腹面から撮影した場合、観察できる筋線維は少なくなります(図 3E,F)。したがって、側方から胚を撮影することで、体壁筋全体を可視化でき、筋芽細胞の融合不全の評価が容易になります。
筋芽細胞の融合不全を調べるため、ホモ接合体変異胚の体壁筋を側面からイメージングします。ホモ接合体変異体は、GFPやYFPなどの蛍光バランサーマーカーの欠如によって識別されます。例えば、spoMI06810/TM3, twi>UAS-GFP親に由来するホモ接合体spo変異胚はGFP陰性である一方、バランサーを持つ兄弟胚は中胚葉でGFPを発現します(図 4B,C)。野生型およびGFP陽性の兄弟胚と比較して、spo変異胚では、融合能を持つ未融合の筋芽細胞(FCMs)が多数存在することを特徴とする筋芽細胞融合不全が認められます(図 4A–C)。
注目すべき点として、spo変異体胚では、表面セクション(Z1)よりも深い光学セクション(Z3およびZ4)において、より多くの未融合のFCMが観察される(Figure 4B)。この分布は、胚の筋芽細胞融合時におけるファウンダー細胞とFCMの空間的組織化を反映している。ファウンダー細胞と成長中の筋管は主に中胚葉の表層に位置しているが、一方でFCMは、成長中の筋管に向かって移動し融合する前は、より深い層に位置している25。その結果、未融合の筋芽細胞は、特に部分的な融合欠損を持つ胚において、深い共焦点セクションに多く存在する。したがって、融合表現型の重症度を過小評価することを避けるためには、体壁筋肉の全深さをカバーするz-stackの取得が必要である。
側面方向での体壁筋全体の可視化により、筋芽細胞の融合欠損の表現型評価が可能になりますが、定量分析は背側方向でのDA1筋の可視化によって行うことができます。野生型胚では、DA1筋は完全に形成されており、13.03 ± 0.60個のEve陽性核が含まれています(Figure 5A,C)。spo変異胚では、DA1筋におけるEve陽性核の数が8.16 ± 0.54個に減少しており(Figure 5B,C)、より少ない数のFCMがDA1創始細胞と融合するという融合欠損が示唆されます。一貫性と再現性のある定量化を行うため、同一の腹部半節(A2−A5)のDA1筋におけるEve陽性核を数えて胚ごとに平均し、各胚の平均値を統計分析の単一データポイントとして使用します(Figure 5C)。
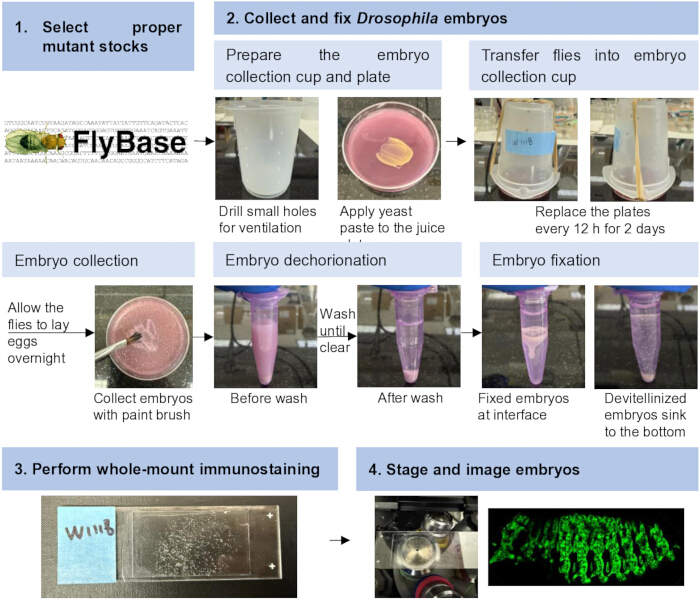
図1: ショウジョウバエ(Drosophila)胚における筋芽細胞融合の遺伝学的、表現型および定量的解析のワークフロー。 ワークフローには、適切な変異体系統の選択、胚の回収と固定、ホールマウント免疫染色と封入、ならびに胚のステージ判定とイメージングが含まれる。こちらのリンクをクリックして、この図の拡大版を表示してください。
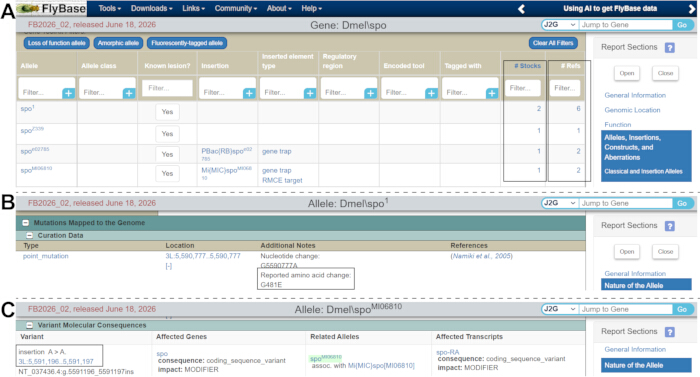
図 2: FlyBaseを用いた変異対立遺伝子の選択。 (A) spoのFlyBase遺伝子レポートページのスクリーンショット。「Alleles」セクションに変異対立遺伝子がリストされている。Stocks列(枠囲み)は利用可能なストック数を、Refs列(枠囲み)は関連文献数を示している。(B,C) 2つの代表的なspo変異対立遺伝子、spo1 (B) および spoMI06810 (C) の分子病変。ここをクリックして、この図の拡大版を表示してください。
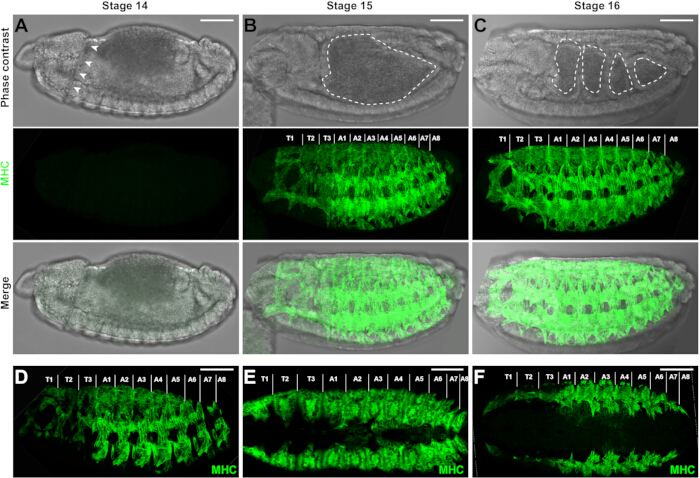
図 3: Drosophila 胚の筋肉組織。 (A–C) ステージ 14、15、16 の野生型 (WT) 胚の位相差像、MHC染色 z-projection 共焦点像、およびマージ像。ステージ 14 の胚 (A) では、頭部の陥入が認められる(矢頭)。ステージ 15 の胚 (B) では特徴的な心臓形の中腸(破線)が観察される一方、ステージ 16 の胚 (C) では中腸が 4 つの異なる室(破線)に分かれている。MHC タンパク質の発現はステージ 14 (A) では検出されないが、ステージ 15 (B) および 16 (C) で強くなる。胚は側面図で示されており、左側が前方、右側が後方、上が背面、下が腹面である。胸部 (T1–T3) および腹部 (A1–A8) の半節が示されている。(D) ラット抗 MHC 抗体を用いて可視化した、ステージ 15 WT 胚の筋肉組織の側面共焦点像。他のパネルの画像にはウサギ抗 MHC 抗体が使用された。(E,F) ステージ 15 WT 胚の筋肉組織の背面 (E) および腹面 (F) の z-projection 共焦点像。背面および腹面方向では、側面方向よりも少ない筋繊維しか観察されない。スケールバー = 50 µm。 こちらのリンクをクリックして、この図の拡大版を表示してください。
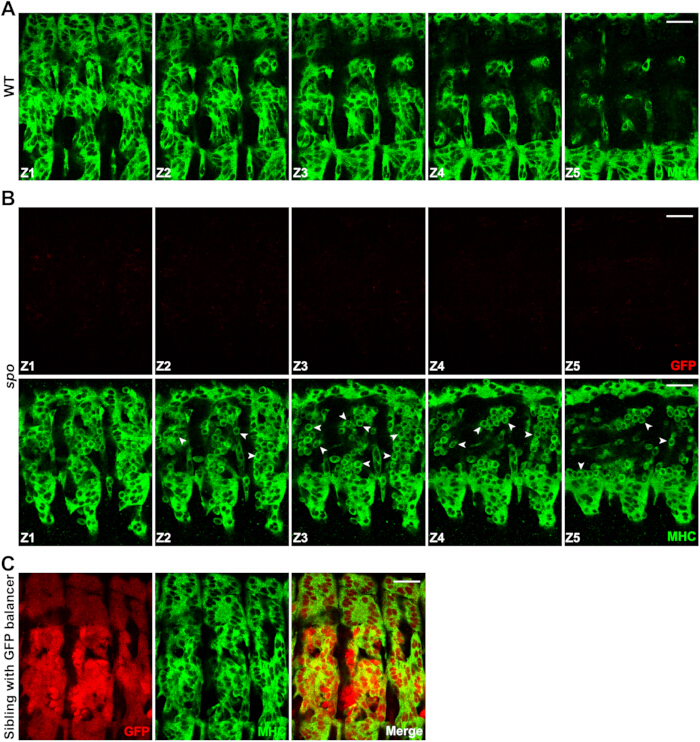
図4: 野生型とspo変異体胚における筋肉系の比較。 (A) 後期ステージ15のWT胚の側方視における体壁筋肉の代表的な共焦点zスタック画像。筋芽細胞の融合が完了しており、未融合の筋芽細胞は見られない。MHCを緑色で示す。 (B) spoMI06810/TM3, twi>UAS-GFP親から得られたGFP陰性のspo変異体胚の側方視における体壁筋肉の代表的な共焦点zスタック画像。GFP蛍光(赤)の消失は、その胚がspoMI06810のホモ接合体であることを示す。矢印は代表的な未融合筋芽細胞を示す。胚表面付近(Z1)よりも深い光学的切片(Z3およびZ4)において、より多くの未融合筋芽細胞が観察される。MHCを緑色で示す。 (C) 同様のspoMI06810/TM3, twi>UAS-GFP親から得られたGFP陽性の兄弟胚の側方視の共焦点画像。TM3バランサー上のtwi>UAS-GFPトランスジェーンによって駆動される中胚葉のGFP発現(赤)により、GFP陽性の兄弟胚とGFP陰性のホモ接合体spo変異体胚を区別できる。MHCを緑色で示す。スケールバー = 20 µm。 こちらのリンクから、この図の拡大版をご覧いただけます。
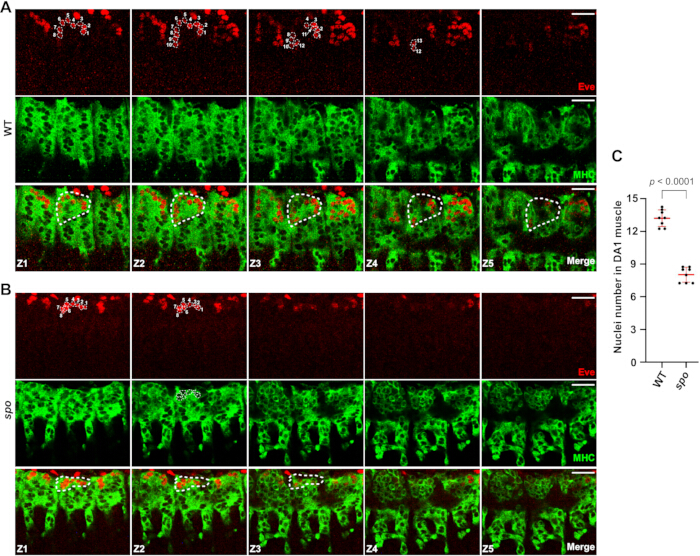
図 5: DA1筋肉の代表的な共焦点zスタック画像および定量化。 (A,B) anti-MHC(緑)およびanti-Eve(赤)で標識したステージ15後期のWT (A) および spo 変異体 (B) 胚の背側面の共焦点zスタック画像。筋肉内のすべての核を捉えるため、Eve陽性のDA1筋肉の全深さにわたって共焦点zスタックを取得した。Eve陽性核は、MHCシグナル内の中染まっていない領域として現れる。代表的なDA1筋肉を破線で囲み、DA1筋肉内のEve陽性核に番号を付した。 (C) WTおよび spo 変異体胚のDA1筋肉におけるEve陽性核の定量化。各遺伝子型について8個の胚を定量化した。各データポイントは、1個の胚のヘミセグメントA2–A5におけるDA1筋肉の平均核数を表す。データは平均 ± SD(赤色のバー)で示した。統計的有意性は、両側 Student's t-test を用いて決定した;p < 0.0001。スケールバー = 20 µm。 この図の拡大版を表示するには、ここをクリックしてください。
| BDSCストック番号 | 遺伝子型 | 目的 |
| 6873 | N1/FM7c, twi>UAS-GFP | 中胚葉でのGFP発現により、GFP陰性のホモ接合体変異胚を識別することが可能になります。 |
| 6662 | wgGla-1/CyO, twi>UAS-GFP | |
| 6663 | 博士澪/TM3, twi>UAS-GFP | |
| 23229 | baz4/FM7c, Dfd-YFP | 頭部特異的なYFP発現により、YFP陰性のホモ接合体変異胚を同定することが可能になる。 |
| 23230 | SNA(特異的核酸増幅)スコ/ CyO, Dfd-YFP | |
| 23232 | 博士1/TM6B, Dfd-YFP |
表1:バランサー染色体に蛍光マーカー遺伝子を持つDrosophila系統。
ディスカッション
ここで述べるプロトコールは、Drosophila胚における筋芽細胞融合の遺伝学的、表現型および定量的な解析のための包括的なワークフローを提供するものである。重要な点として、変異系統において融合不全が観察された場合、目的の遺伝子が観察された表現型に責任があることを検証するために、追加の遺伝学的解析が必要となる。ストックの維持過程で自然発生的な背景変異が蓄積し、それが変異表現型に寄与する可能性があるためである26。一つの手法としては、変異アレルと目的遺伝子を欠失させる染色体欠失との交配によって得られたトランスヘテロ接合体胚を調べる方法がある。これらの胚においても同様の融合不全が観察されれば、その表現型が無関係な背景変異ではなく、候補遺伝子の破壊に起因するという結論を支持することになる。GAL4/UASシステム27などを用いた遺伝学的レスキュー実験により、目的遺伝子の発現が変異胚における正常な筋芽細胞融合を回復させるかどうかを判定し、さらなる検証を行うことができる。
Drosophila Gene Disruption Projectにより、Drosophila遺伝子の約75%をカバーする公開変異株コレクションが作成されていますが28、目的のすべての遺伝子に対して、適切な変異アレル(特に強力な機能喪失アレル)が利用可能であるとは限りません。このような場合、染色体欠失株を代替リソースとして利用することで、候補遺伝子が筋芽細胞融合に関与しているかどうかを評価できます。現在利用可能な欠失株コレクションは、真核的なDrosophilaゲノムの98%以上をカバーしており29、ほぼすべての遺伝子の機能喪失解析が可能です。染色体欠失は、FlyBaseの遺伝子レポートの「Aberrations」セクションで確認できます。しかし、各欠失株は複数の遺伝子を欠損させているため、ホモ接合型欠失胚で観察された筋芽細胞融合不全を、さらなる検証なしに欠失領域内の特定の遺伝子のせいにすることはできません。したがって、欠失株を用いて融合不全が特定された場合は、単一遺伝子ノックアウト変異株を作成し、解析することで、筋芽細胞融合における候補遺伝子の具体的な役割を決定する必要があります。
本プロトコルは、関心のある個々の遺伝子の変異体に関する表現型解析に焦点を当てていますが、このワークフローは、利用可能な欠損コレクション29を用いた、筋芽細胞融合の新規制御因子のための大規模な欠損スクリーニングにも適用可能です。さらに、MHC抗体を特定の筋芽細胞融合制御因子に対する抗体に置き換えることで、胚の回収、固定、免疫染色を含む一般的なワークフローを、融合シナプスに対するタンパク質の局在を調べるために適応させることができます。最後に、ここに記載した方法は、筋芽細胞融合以外の他の胚発生プロセスの表現型解析に適応させることができ、それによって本プロトコルの有用性をより広範な発生研究へと拡張することが可能です。
開示事項
著者らは、競合する利益がないことを宣言します。ChatGPT 5 (OpenAI) は、文法および言語の編集のみに使用されました。科学的なコンテンツ、データ、分析、または図の作成には使用されていません。
謝辞
ショウジョウバエの系統を提供していただいたBloomington stock centerに感謝いたします。本研究は、E.H.C.に対するNIH助成金R01AR085116およびR35GM136316の支援を受けて行われました。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 寒天 | Fisher | BP1423-500 | 寒天粉末;固形培養培地の調製に使用。 |
| ウシ血清アルブミン (BSA) | Sigma | A7906 | ウシ血清アルブミン;免疫染色のブロッキング溶液の調製に使用。 |
| 共焦点顕微鏡 | Leica | SP8 | 染色標本の蛍光イメージングに使用するレーザー走査型共焦点顕微鏡。 |
| 共焦点顕微鏡 | Nikon | A1R | 染色標本の蛍光イメージングに使用するレーザー走査型共焦点顕微鏡。 |
| カバーガラス | Fisher | 12-545-CP | ガラス製カバーガラス、40 mm × 22 mm;顕微鏡観察用の標本封入に使用。 |
| 培養皿 | Corning | 430166 | 60 mm 培養皿;生物学的標本の取り扱い、培養、または処理に使用。 |
| ドライイースト | Sigma | YSC2 | 生物培養の栄養源として使用するドライイースト。 |
| ホルムアルデヒド, 37% | Fisher | BP531-500 | 固定液の調製に使用する濃縮ホルムアルデヒド溶液。注意:毒性および揮発性があるため、適切な個人用保護具を着用し、化学薬品用ドラフトチャンバー内で取り扱うこと。 |
| ヤギ抗マウス IgG 647 | ThermoFisher | A-21236 | マウス一次抗体の蛍光検出用の蛍光色素標識ヤギ抗マウス IgG 二次抗体。 |
| ヤギ抗ウサギ IgG 568 | ThermoFisher | A-11036 | ウサギ一次抗体の蛍光検出用の蛍光色素標識ヤギ抗ウサギ IgG 二次抗体。 |
| ヘプタン | Fisher | H350 | 標本の固定および透過処理に使用する有機溶媒。注意:引火性および有害性があるため、適切な個人用保護具を着用し、化学薬品用ドラフトチャンバー内で取り扱うこと。 |
| インキュベーター | Percival | I36LL | 規定の環境条件下で培養物または実験生物を維持するために使用する温度制御インキュベーター。 |
| メタノール | Pharmco | 339000ACSBK01 | 標本の固定、脱水、または透過処理に使用するメタノール。注意:引火性および毒性があるため、適切な個人用保護具を着用し、化学薬品用ドラフトチャンバー内で取り扱うこと。 |
| 顕微鏡スライドグラス | Fisher | 12-550-15 | イメージング用の標本封入に使用するガラス製顕微鏡スライドグラス。 |
| 封入剤 | ThermoFisher | P36980 | 蛍光を保持し、染色標本を顕微鏡観察用に封入するために使用する抗退色封入剤。 |
| マウス抗 Even skipped (Eve) 抗体 | DSHB | 2B8 | Even skipped タンパク質を認識するマウスモノクローナル一次抗体;免疫蛍光染色に使用。 |
| ヌタター | Corning | 6720 | 洗浄、ブロッキング、または抗体インキュベーションステップにおいて、サンプルを穏やかに連続的に撹拌するために使用するベンチトップヌタティングミキサー。 |
| プラスチックビーカー | Sigma | Z245380 | 100 mL プラスチックビーカーをショウジョウバエの回収カップとして使用。 |
| ウサギ抗ミオシン重鎖 (MHC) 抗体 | — | — | Drosophila ミオシン重鎖を認識するウサギ一次抗体;抗体源は Kiehart and Feghali (1986), Journal of Cell Biology 103, 1517–1525 に記載。 |
| ラット抗ミオシン重鎖 (MHC) 抗体 | DSHB | BB7/21.14 | ミオシン重鎖を認識するラットモノクローナル一次抗体;免疫蛍光染色に使用。 |
| アジ化ナトリウム (NaN3) | Sigma | S8032 | 抗体溶液または緩衝液の保存剤として使用するアジ化ナトリウム。注意:強い毒性があるため、誤飲、吸入、皮膚接触、および金属との接触を避けること。 |
| Triton X-100 | Fisher | AAA16046AP | 膜透過処理および洗浄またはブロッキング緩衝液の調製に使用する非イオン性界面活性剤。 |
| 10× リン酸緩衝生理食塩水 (PBS) | Fisher | BP3994 | 洗浄、希釈、および緩衝液調製用の 1× PBS を調製するための濃縮リン酸緩衝生理食塩水。 |
参考文献
- Abmayr SM, Pavlath GK. Myoblast fusion: Lessons from flies and mice. Development. 2012;139(4):641-656.
- Petrany MJ, Millay DP. Cell fusion: Merging membranes and making muscle. Trends Cell Biol. 2019;29(12):964-973.
- Wherley TJ et al. Current topics in developmental biology. Vol. 158. Academic Press; 2024:53-82.
- Millay DP. Regulation of the myoblast fusion reaction for muscle development, regeneration, and adaptations. Exp Cell Res. 2022;415(2):113134.
- Dworak HA, Sink H. Myoblast fusion in Drosophila. Bioessays. 2002;24(7):591-601.
- Schejter ED. Myoblast fusion: Experimental systems and cellular mechanisms. Semin Cell Dev Biol. 2016;60:112-120.
- Deng S, Azevedo M, Baylies M. Acting on identity: Myoblast fusion and the formation of the syncytial muscle fiber. Semin Cell Dev Biol. 2017;72:45-55.
- Lee DM, Chen EH. Drosophila myoblast fusion: Invasion and resistance for the ultimate union. Annu Rev Genet. 2019;53:67-91.
- Bate M. The development of Drosophila melanogaster. CSH Laboratory Press; New York; 1993:1013-1090.
- Baylies MK, Bate M, Ruiz Gomez M. Myogenesis: A view from Drosophila. Cell. 1998;93(6):921-927.
- Chen EH, Olson EN. Towards a molecular pathway for myoblast fusion in Drosophila. Trends Cell Biol. 2004;14(8):452-460.
- Sens KL et al. An invasive podosome-like structure promotes fusion pore formation during myoblast fusion. J Cell Biol. 2010;191(5):1013-1027.
- Kim JH et al. Mechanical tension drives cell membrane fusion. Dev Cell. 2015;32(5):561-573.
- Chen EH. Invasive podosomes and myoblast fusion. Curr Top Membr. 2011;68:235-258.
- Kim JH, Jin P, Duan R, Chen EH. Mechanisms of myoblast fusion during muscle development. Curr Opin Genet Dev. 2015;32:162-170.
- Kim JH, Chen EH. The fusogenic synapse at a glance. J Cell Sci. 2019;132(18).
- Haralalka S, Abmayr SM. Myoblast fusion in Drosophila. Exp Cell Res. 2010;316(18):3007-3013.
- Kiehart DP, Feghali R. Cytoplasmic myosin from Drosophila melanogaster. J Cell Biol. 1986;103(4):1517-1525.
- Campos-Ortega JA, Hartenstein V. The embryonic development of Drosophila melanogaster. 2nd ed. Springer Berlin Heidelberg; Berlin, Heidelberg; 1997:9-102.
- De Joussineau C, Bataille L, Jagla T, Jagla K. Diversification of muscle types in Drosophila: Upstream and downstream of identity genes. Curr Top Dev Biol. 2012;98:277-301.
- Namiki T et al. Cytochrome P450 CYP307A1/Spook: A regulator for ecdysone synthesis in insects. Biochem Biophys Res Commun. 2005;337(1):367-374.
- Niwa R, Niwa YS. Enzymes for ecdysteroid biosynthesis: Their biological functions in insects and beyond. Biosci Biotechnol Biochem. 2014;78(8):1283-1292.
- Ruan ZR, Yu Z, Xing C, Chen EH. Inter-organ steroid hormone signaling promotes myoblast fusion via direct transcriptional regulation of a single key effector gene. Curr Biol. 2024;34(7):1438-1452.e6.
- Beckett K, Baylies MK. 3D analysis of founder cell and fusion competent myoblast arrangements outlines a new model of myoblast fusion. Dev Biol. 2007;309(1):113-125.
- Richardson B, Beckett K, Baylies M. Visualizing new dimensions in Drosophila myoblast fusion. BioEssays. 2008;30(5):423-431.
- Huang W et al. Spontaneous mutations and the origin and maintenance of quantitative genetic variation. eLife. 2016;5.
- McGuire SE, Roman G, Davis RL. Gene expression systems in Drosophila: A synthesis of time and space. Trends Genet. 2004;20(8):384-391.
- Bellen HJ et al. The Drosophila Gene Disruption Project: Progress using transposons with distinctive site specificities. Genetics. 2011;188(3):731-743.
- Cook RK et al. The generation of chromosomal deletions to provide extensive coverage and subdivision of the Drosophila melanogaster genome. Genome Biol. 2012;13(3).
再版と許可
この記事は公開されました
動画は近日公開