電気鍼治療は、孤束核内のニューロン活性を回復させることにより、慢性心不全および病的な心室リモデリングを軽減します。この治療的な中枢神経調節は、候補生物学的標的である転写因子YY1のアップレギュレーションに関連しています。
研究記事
慢性心不全における電気鍼治療の中心的なメカニズム:孤束核の定量的プロテオミクスによる知見
* These authors contributed equally
この記事について
サマリー
要約
慢性心不全(CHF)は、自律神経系の調節不全と交感神経の過剰活性化によって引き起こされる、世界的な心血管死の主要な原因となっています。電針(EA)は中枢神経調節を介して心保護作用を発揮しますが、主要な自律神経統合センターである孤束核(NTS)における特異的な分子標的は依然として不明です。これを調査するため、左前下行枝の結紮によりCHFラットモデルを構築しました。ラットに対し、両側の神門(HT7) acupointへ7日間連続でEAを施行しました。心機能および心筋傷害は、心エコー、酵素結合免疫吸着法(ELISA)、および組織学的染色を用いて評価しました。NTSの神経活動は、c-Fos免疫蛍光染色およびin vivo電気生理学的に評価しました。分子メカニズムは、定量的プロテオミクスとバイオインフォマティクスを用いて探索し、コア標的を定量PCRおよびウェスタンブロッティングで検証しました。EAは、左室駆出率を改善し、心筋線維化を軽減し、血清中の心不全マーカーを減少させました。同時に、EAはNTS内における自発的な神経発火率、局所電位のエネルギー、およびc-Fosの発現を回復させました。プロテオーム解析により、EAによって調節される85個のコアとなる発現変動タンパク質が同定されました。ダウンレギュレートされた58個およびアップレギュレートされた27個のタンパク質の機能層別化により、それぞれが細胞外マトリックスの構築およびATP依存性クロマチンリモデリングに関与していることが明らかになりました。トポロジカルネットワークマッピング、パスウェイ濃縮解析、および組織発現プロファイリングを統合した段階的なスクリーニングアプローチにより、転写因子YY1が極めて反応性の高い候補標的として同定されました。in vivoでの検証により、EAがYY1の発現をアップレギュレートすることが確認されました。全体として、EAは病理学的な心リモデリングを軽減し、NTSの神経活動を回復させました。YY1はこの中枢神経調節に関連する候補標的として同定され、CHFにおけるEAの効果の根底にあるメカニズムについて分子レベルでの知見を提供しました。
概要
慢性心不全(CHF)は、多様な心血管疾患の末期段階として広く認識されており、世界的に心血管死の主要な原因であり続け、世界のヘルスケアシステムに多大な負担をかけています1。CHFの病態生理学的な進行は、主に自律神経系の調節不全によって引き起こされ、持続的な交感神経の過剰活性化と副交感神経の低下を特徴としています2。したがって、自律神経の恒常性を回復させることは、病的な心リマデリングを軽減し、全般的な心機能を改善するための極めて重要な治療戦略であると考えられています3。
電気鍼治療(EA)は伝統的な鍼灸の現代的な発展形であり、心血管疾患の管理における臨床的有効性が広く認められています4。我々の以前の研究を含む広範な研究により、この治療法は主に中枢自律神経系を調節することで、顕著な心保護効果を発揮することが明らかになっています。具体的には、神門(HT7)穴へのEAが、標的とした中枢神経メカニズムを通じて過剰な交感神経流出を効果的に抑制し、交感神経・副交感神経のバランスを回復させ、それによってCHFの病理学的進行を改善することを実証してきました5,6,7,8。
延髄に位置する孤束核(NTS)は、中枢性の自律神経バランスを維持するための重要な統合センターである。NTSは心血管反射および末梢感覚入力の主要な中継地点として機能し、交感神経緊張と迷走神経緊張の間の動的平衡を調節している9。このような解剖学的および機能的な重要性にもかかわらず、CHFに対するEA治療中のこの重要な脳幹センターにおける特異的な分子変化については、ほとんど解明されていない。高度なハイスループットプロテオミクスとバイオインフォマティクス解析を組み合わせることで、この中枢神経生物学的プロセスに関与する複雑なタンパク質ネットワークおよびシグナル伝達カスケードを、バイアスなくマッピングするための強力なツールが得られる10。
したがって、本研究では、CHF(慢性心不全)におけるHT7 acupoint(神門穴)へのEA(電気鍼)が心機能およびNTS(孤束核)ニューロン活動に及ぼす影響を調査し、EA治療に伴うNTS内の分子レベルの変化を明らかにすることを目的としました。in vivo電気生理学、定量的プロテオミクス、バイオインフォマティクス解析、および分子生物学的検証を統合することで、CHFにおけるEA介在性の中心神経調節に関連する候補分子ターゲットを同定することを試みました。
プロトコル
All methods involving vertebrate animals were performed in compliance with the Animal Care and Use Committee of Anhui University of Chinese Medicine, with approval number AHUCM-rats-2024145. The reagents and the equipment used are listed in the Table of Materials.
Animal preparation and grouping
Clean-grade male Sprague-Dawley rats, aged 8 weeks and weighing 200 to 250 g, were used for all experiments. The animals were housed in a controlled environment maintained at 24 ± 2 °C and 50%–60% relative humidity, under a standard 12 h light-dark cycle. All rats were provided ad libitum access to food and water and underwent a 1-week acclimatization period prior to any experimental procedures.
For Experiment I, which evaluated functional and central neural activity, 24 rats were randomly divided into four groups of six animals each: Sham, CHF, EA, and Sham EA groups (Figure 1A). For Experiment II, which evaluated molecular targets and high-throughput proteomics, 36 rats were randomly assigned to three groups of 12 each: Sham, CHF, and EA. The sample sizes were determined based on the Resource Equation Method to adhere to animal welfare ethics and the reduction principle while ensuring statistical validity (E value = 20 for Experiment I; E value = 33 for Experiment II)11. This sample size strategy was consistent with protocols used in previous studies on EA for cardiovascular diseases8,12. Post hoc power analyses indicated that statistical power exceeding 0.90 supported the adequacy of this allocation. The Sham EA group was excluded from Experiment II because preliminary functional evaluations indicated a lack of therapeutic efficacy.
Establishment of the chronic heart failure model
The rats were fasted for 12 h prior to surgery and had free access to water. Anesthesia was induced with 3% isoflurane and maintained at 1.5%–2% isoflurane during the procedure. As isoflurane is a volatile anesthetic, a proper scavenging system was used, and the procedure was performed in a well-ventilated area to prevent occupational exposure.
Standard limb electrocardiograms (ECG) were continuously recorded. A left thoracotomy was performed to expose the heart, and the left anterior descending coronary (LAD) artery was permanently ligated 2 to 3 mm below the left atrial appendage using a 7-0 non-absorbable suture13. Successful ischemia was confirmed by identifying an ST-segment elevation of at least 0.2 mV on the ECG (Figure 1B). Intraperitoneal injections of penicillin (200,000 U/mL) and subcutaneous injections of carprofen (5 mg/kg) were administered daily for three consecutive days postoperatively to prevent infection and alleviate pain.
For the sham control cohort, an identical thoracotomy procedure was performed, followed by superficial needle insertion at the matching anatomical location without ligation of the LAD coronary artery. Identical postoperative care and monitoring were provided. Echocardiographic assessment was performed at 4 weeks post-surgery. The model was considered successfully established when the left ventricular ejection fraction (LVEF) was ≤45%8 (Figure 1C). Animals that failed to meet these criteria, presented preoperative baseline ECG abnormalities, or experienced premature mortality were systematically excluded. Supplementary rats were subjected to identical surgical protocols to immediately replace excluded animals and maintain a uniform sample size.
Electroacupuncture intervention
In accordance with established comparative anatomical protocols14, the bilateral HT7 acupoints on the Hand-Shaoyin Heart Meridian were located at the palmar aspect of the transverse wrist crease near the ulnar border, directly within the radial depression of the flexor carpi ulnaris tendon. The local area was routinely disinfected. Two sterile disposable acupuncture needles (0.25 x 25 mm) were advanced perpendicularly into each HT7 acupoint area to a target depth of 2 to 3 mm and positioned approximately 1 mm apart to remain strictly within the identical acupoint region. For video documentation, the insertion depth was visually verified by pre-marking the needle shaft at the 3 mm position prior to insertion.
One needle was attached to the cathodic terminal of the EA apparatus, and the adjacent needle was attached to the anodic terminal to establish a localized electrical circuit (Figure 1D). A continuous electrical waveform was delivered at a constant frequency of 2 Hz and an intensity of 1 mA, calibrated to produce observable yet mild muscle twitches in the corresponding limbs, for 30 min daily over seven consecutive days under isoflurane anesthesia.
A minimal needling protocol was applied to the sham intervention cohort to account for nonspecific somatosensory responses15,16. Sterile needles were inserted superficially to a depth of 0.5–1 mm at identical HT7 locations without attaching electrical leads or administering current, matching the 30 min anesthetic duration. The baseline Sham and CHF control groups were subjected to identical daily isoflurane exposure (1.5%–2% isoflurane for 30 min daily over seven consecutive days) without needle insertion or electrical stimulation. This procedure standardized the anesthetic baseline across all experimental cohorts and controlled for potential neurosuppressive or cardioprotective artifacts induced by repetitive volatile anesthesia.
Echocardiography assessment and animal euthanasia
Following the intervention, the rats were anesthetized with 3% isoflurane for induction and 1% for maintenance, and secured in a supine position on the animal platform. Chest hair was carefully removed using a depilatory agent, and an acoustic coupling agent was uniformly applied to the exposed skin. Cardiac function was evaluated using a digital ultrasound system equipped with an 18 MHz echo transducer. M-mode echocardiography was recorded to measure LVEF and left ventricular fractional shortening (LVFS), and the mean value from 3 technical replicates was calculated for final analysis.
Blood was drawn from the abdominal aorta while the animals remained under anesthesia to prevent subsequent blood loss and coagulation and to ensure sample quality for enzyme-linked immunosorbent assay (ELISA). The rats were euthanized immediately by continuous induction with 5% isoflurane until cessation of heartbeat and respiration.
Tissue samples were subsequently allocated according to the experimental design. For Experiment I, 3 rats per group were used to harvest the heart for hematoxylin and eosin (HE)/Masson staining and the brain for c-Fos immunofluorescence. The remaining three rats were allocated for in vivo electrophysiology. For Experiment II, bilateral NTS tissues were extracted from six rats per group for proteomics. Tissues from the remaining six rats were harvested for molecular verification: three were used for Western blotting and qPCR, and three were used exclusively for qPCR.
Enzyme-linked immunosorbent assay
The collected blood samples were allowed to coagulate naturally at 4 °C for 10–20 min. The samples were centrifuged at 1,000 x g for 15 min at 4 °C to separate the serum, and the supernatants were collected. When analysis was not performed immediately, serum samples were stored at −80 °C until required. Serum concentrations of N-terminal pro-brain natriuretic peptide (NT-proBNP) and cardiac troponin T (cTnT) were quantified using specific ELISA kits according to the standard instructions. Absorbance values were measured, and biomarker levels were calculated based on standard curves.
Histological and immunofluorescence staining
Harvested heart tissues were rinsed in pre-cooled 0.9% sodium chloride solution, sectioned 5 mm above the apex, and embedded in paraffin. The tissue sections were deparaffinized and rehydrated. HE staining was performed by applying hematoxylin for 10 min, followed by eosin counterstaining for 2.5 min. Masson staining was performed by applying hematoxylin for 60 s and Masson's trichrome for 30–60 s. The sections were differentiated in 6%–8% phosphoric acid and counterstained with light green for 5 min. The collagen volume fraction (CVF) was quantified to evaluate myocardial fibrosis.
Harvested brain tissues were fixed in 4% paraformaldehyde, dehydrated in graded sucrose solutions, and sectioned at a thickness of 30 µm. As paraformaldehyde is toxic and a suspected carcinogen, it was handled inside a chemical fume hood while appropriate personal protective equipment was worn. The sections were blocked with a buffer containing 0.5% Triton X-100 and 3% bovine serum albumin, then incubated overnight at 4 °C with a primary antibody against c-Fos. The sections were then washed with phosphate-buffered saline and incubated with corresponding secondary antibodies for 2 h at room temperature in the dark. The slices were mounted with a fluorescence quenching solution containing 4',6-diamidino-2-phenylindole (DAPI), and the c-Fos-positive neurons were imaged.
In vivo electrophysiology
Rats were anesthetized with isoflurane at 3% for induction and 1% for maintenance and secured in a brain stereotaxic apparatus. The scalp was shaved and disinfected. A midline incision was made to expose the bregma, and the dura mater was removed. A cranial hole was precisely drilled above the NTS region based on the following stereotaxic coordinates relative to Bregma: anteroposterior (AP) ±12.6 mm, mediolateral (ML) ±0.9–2.1 mm, and dorsoventral (DV) ±7.6–8.1 mm.
Following completion of the electrophysiological recordings, the exact stereotaxic localization of the electrode tip was verified. A direct current of 1 mA was briefly applied to the recording electrode for 10 s to create a small electrolytic lesion. Post-experiment, the brainstem was sectioned, and the lesion tract was histologically confirmed to be anatomically localized within the NTS.
An eight-channel (2 x 4) microelectrode array was implanted and slowly advanced to the target brain region at a rate of 5 µm/s using a motorized micromanipulator. Once stable neural activity was established, recordings were acquired continuously for 400 s. A multichannel acquisition system was used to capture neuronal spike discharges (filtered at 150–8,000 Hz, sampling rate 40 kHz) and local field potentials (LFP; filtered at 0.7–400 Hz, sampling rate 1 kHz).
Spike-sorting software was used to eliminate typical high-amplitude interference signals and artifacts via waveform cross-correlation. Subsequent neuronal signal analysis was performed using neural-analysis software. Neurons were classified as active only when they exhibited a spontaneous mean firing rate >2 Hz and maintained a stable signal-to-noise ratio >3:1. The 2 Hz threshold was selected based on the established physiological characteristics of autonomic-related NTS neurons; it effectively excluded predominantly silent cells and low-frequency respiratory-rhythmic bursts, thereby ensuring that the analysis focused on tonically active neurons mediating basal cardiovascular regulation17,18,19,20. Mean neuronal firing frequency and spike discharge raster plots were generated based on these criteria. Energy spectrograms of the 2D LFP and 3D power spectral density (PSD) topographies were constructed to assess neural oscillatory energy characteristics.
Following the recording, the incision was sutured, and the rats were monitored until they fully recovered from anesthesia. Penicillin was administered via intraperitoneal injection, and carprofen (5 mg/kg, s.c.) was administered daily for three consecutive days.
Data-independent acquisition quantitative proteomics analysis
Total protein was extracted with a lysis buffer and quantified by the bicinchoninic acid method. The proteins were denatured, subjected to reductive alkylation, and digested with trypsin at 37 °C for 2 h. The resulting peptides were desalted using a C18 column, concentrated at 45 °C, and resuspended for subsequent mass spectrometry analysis.
Peptides were loaded onto a trap column (5 µm C18, 300 µm x 5 mm) equilibrated with 96% buffer A (0.1% formic acid in water). The peptides were separated along a high-throughput ultra-high-performance liquid chromatography analytical column using a rigorously optimized gradient of buffer A and buffer B (0.1% formic acid in 80% acetonitrile).
Mass spectrometry was performed in positive ion data-independent acquisition (DIA) mode with an electrospray voltage of 1.9 kV. Full mass spectrometer scans were acquired over a mass range of 380 to 980 m/z at a resolution of 240,000, with an automatic gain control (AGC) target of 500% and a maximum injection time of 3 ms. MS/MS spectra were acquired at a resolution of 80,000 (AGC target: 500%; maximum injection time: 3 ms; RF lens amplitude: 40%). Precursor ions were fragmented using higher-energy collisional dissociation with an isolation window of 2 Th and a normalized collision energy of 25% under a defined cycle time of 0.6 s.
Raw mass spectrometry data were processed using DIA-NN software. A spectral library was generated using the internal deep learning algorithm, and the match-between-runs function was applied for quantification against the Rattus norvegicus reference proteome database, with trypsin digestion and up to 2 missed cleavages. The final quantitative protein matrix was filtered using a strict 1% false discovery rate threshold at both the precursor-ion and protein levels.
Bioinformatics analysis and hub gene mining
Bioinformatics analyses and data visualizations were performed primarily using the R programming environment alongside specialized network visualization software. To ensure methodological transparency and reproducibility, all custom R scripts used throughout these analytical processes were provided in the Supplementary File 1. Initial data quality control and overall distribution assessments were performed using the ropls package. Protein identification/quantification overview statistics were compiled; partial least squares discriminant analysis (PLS-DA) was performed across the three groups; orthogonal partial least squares discriminant analysis (OPLS-DA) was performed for pairwise comparisons; and sample correlation heatmaps were generated using the pheatmap package.
Core differentially expressed proteins were screened using thresholds comprising a p-value <0.05, fold change >1.2, and variable importance in projection score >1.0. Double volcano plots were generated using the ggplot2 package, intersections were identified using the ggVennDiagram package, and hierarchical clustering heatmaps were plotted using the pheatmap package to visualize the intersecting proteins. Gene Ontology (GO) and Kyoto Encyclopedia of Genes and Genomes (KEGG) enrichment analyses were performed separately for the upregulated and downregulated proteins using the enrichR package based on the Enrichr database.
All differentially expressed proteins were mapped to the STRING database with a confidence threshold of 0.4 to construct the protein-protein interaction network. The interaction data were imported into network visualization software. The cytoHubba plugin was applied to calculate topological scores, and the top 18 high-scoring genes were extracted based on node color depth. The 18 hub candidates underwent pathway enrichment analysis, and the top 10 most prominent proteins were selected to assess their expression levels across human tissues using the Genotype-Tissue Expression (GTEx) database. The most critical hub gene was identified based on human brain expression levels and network topological scores. The Cistrome Data Browser was used to predict downstream transcription factors and histone modifications associated with the specific hub gene.
Western blot and quantitative polymerase chain reaction
Total protein was extracted from NTS tissues using a lysate mixture containing phenylmethanesulfonyl fluoride lysis buffer, PMSF, and phosphatase inhibitors. The samples were homogenized using an ultrasonic cell disruptor and centrifuged at 13,800 x g for 20 min at 4 °C to collect the supernatants. Protein concentrations were determined using the bicinchoninic acid protein assay kit. A total of 20 µg of protein from each sample was separated by 10% sodium dodecyl sulfate-polyacrylamide gel electrophoresis and subsequently transferred onto polyvinylidene fluoride membranes.
The membranes were blocked with 5% non-fat milk in Tris-buffered saline Tween (TBST) for 1 h at room temperature and incubated overnight at 4 °C with specific primary antibodies targeting Yin Yang 1 (YY1) and β-actin as the housekeeping protein. The membranes were washed with TBST for 5 min three times and incubated with a horseradish peroxidase-conjugated secondary antibody for 1.5 h at room temperature. Target bands were visualized using an enhanced chemiluminescence kit, captured using an imaging system, and quantified relative to β-actin.
Total RNA was extracted from NTS tissues using an RNA extraction reagent. RNA concentration and purity were measured using a spectrophotometer, and first-strand cDNA was synthesized using a reverse transcription kit. Quantitative real-time polymerase chain reaction (PCR) was performed using a SYBR Green PCR kit on a real-time PCR system. The specific primer sequences used for amplification, along with their respective NCBI Reference Sequence accession numbers, were as follows: YY1 (NM_001002271.1), forward 5'-AGCGTTCGTTGAGAGCTCAA-3' and reverse 5'-AGCCTTCGAATGTGCACTGA-3'; DPF2 (NM_001014264.1), forward 5'-TGTGATGACTGTGACCGTGG-3' and reverse 5'-TCCAAACACAGGTGGCAACT-3'; DMAP1 (NM_001007705.1), forward 5'-GGTGTGACATTACGGAGCCA-3' and reverse 5'-TCCAGCAGCATCTGTTCCAG-3'; and glyceraldehyde-3-phosphate dehydrogenase (GAPDH) (NM_017008.4), forward 5'-GGCACAGTCAAGGCTGAGAATG-3' and reverse 5'-ATGGTGGTGAAGACGCCAGTA-3'. Relative mRNA expression levels were calculated using the 2-ΔΔCt method and normalized against the internal reference gene GAPDH.
Statistical analysis
All experimental data were analyzed using statistical software and presented as the mean ± standard deviation (SD). Normality was assessed using the Shapiro-Wilk test, and homogeneity of variance was evaluated using the Brown-Forsythe test.
For comparisons between two independent groups, the Student's t-test or the paired t-test was used for data that met the normality criteria. Data that failed to satisfy normality assumptions were analyzed using the Mann-Whitney U test or the Wilcoxon signed-rank test. For comparisons among multiple groups, one-way analysis of variance, followed by the Holm-Sidak post hoc test, was used when the assumptions of normality and homogeneity were met. The Kruskal-Wallis H test, followed by the Dunn post hoc test, was used when these assumptions were not met.
Correlations were assessed using the Pearson correlation coefficient calculated using the Hmisc package in R. Corresponding p-values were adjusted using the Benjamini-Hochberg false discovery rate method via the stats package to control for the inflated type I error rate due to multiple testing. General statistical significance was set at p <0.05.
結果
電気針治療は慢性心不全ラットにおいて心機能を改善し、心筋損傷を軽減する
CHFに対するEAの影響を評価するため、LAD冠動脈結紮によりラットモデルを構築し、続いて特定のEAまたはSham EA介入を行った。心エコー検査、生化学的アッセイ、組織学的染色を含む系統的な評価を実施した(Figure 2A)。機能面では、CHF群に心室拡大と収縮能の低下が認められた。EA治療は、CHFラットで観察されたLVEFおよびLVFSの低下を改善したが、Sham EA群の心機能レベルはCHF群と同程度であった(Figure 2BおよびFigure 2C)。
さらに、EAは血清NT-proBNPおよびcTnTレベルを低下させ、心負荷の軽減と心筋損傷の緩和が示された。対照的に、Sham EA群はCHF群と同様の生化学的パラメータを示した(Figure 2E,F)。組織学的解析では、CHF群において心筋の構造的損傷と線維化が認められた。EA治療は心筋構造を改善しCVFを減少させたが、Sham EA群ではCHF群と同様の病理学的変化とCVFレベルが維持されていた(Figure 2D)。総合的に、EAはCHFに対して心保護効果を発揮したが、Sham EA介入では同様の治療効果は得られなかった。
電気鍼治療は、慢性心不全ラットの孤束核におけるニューロンを活性化させる
NTSがEA治療に対する中枢反応を媒介するかを判断するため、神経興奮のマーカーであるc-Fosの染色により神経活性化を評価した。免疫蛍光イメージング(図 3A)および定量的な細胞数カウント(図 3B)により、NTSにおけるc-Fos陽性ニューロンの数は、Sham群と比較してCHF群で少ないことが明らかになった。しかし、EA治療により、c-Fosの発現はSham群のベースラインと同等のレベルまで増加した。末梢の機能的結果と同様に、Sham EA群ではCHF群と同等のc-Fos発現レベルが示された。
これらのNTSニューロンの機能状態を評価するために、in vivo電気生理学的信号を記録した。スパイク放電波形(図 3C)および定量的な平均発火率(図 3D)は、組織学的所見と一致していた。NTSニューロンの自発的発火頻度は、CHF条件下で低下していた。対照的に、EA介入はニューロンの発火率を上昇させたが、Sham EA処置ではそのような電気生理学的変化は見られなかった。
この神経活性化パターンは、局所フィールド電位(LFP)解析によって裏付けられました。2D LFPカラースケールスペクトログラムおよび3Dパワースペクトル密度マップ(図 3E)に示されているように、CHF状態においてNTS内の神経振動エネルギーは減衰していました。EA治療後、神経周波数スペクトル全体でパワー強度の上昇が認められ、ネットワークの活性化が示されましたが、これはSham EA群では見られませんでした。
この中枢的な活性化の生理学的関連性を調べるため、末梢の心機能指標と中枢のNTSニューロン活性を統合したピアソン相関分析を行った(図3F)。分析の結果、NTSにおける平均発火率およびc-Fos発現は、LVEFと正の相関を示した。対照的に、これらの中枢神経活動指標は、血清心不全マーカーであるNT-proBNPと負の相関を示した。これらの相関は、EAによって変調されるNTSの神経活性化が、その末梢的な心保護効果に関連していることを示唆している。
電気鍼治療は孤束核における全般的なプロテオームプロファイルを変化させる
先行して行われた機能評価において、Sham EA群に治療効果が認められなかったため、プロテオミクス解析の段階ではSham群、CHF群、およびEA群のみを対象とした。組織採取に先立ち、EAの治療効果を評価するために1群あたり12匹のラットに対して心エコー検査を実施し、その結果を以下に提示する。 補足図1Aこの評価の後、各群から6つの生物学的レプリケートを用い、質量分析ベースの定量プロテオーム解析を行った。
プロテオミクスデータの信頼性と全体的な分布を評価するため、品質管理および多変量解析を行った。同定されたタンパク質の総数は、Sham群で5,914個、CHF群で5,980個、EA群で5,836個であり、3つの実験群間でタンパク質検出数が同等であることが示された(図4A および 補足表1部分最小二乗判別分析により、Sham群、CHF群、およびEA群の間で明確な分離が示され、疾患状態およびEA介入に関連するグローバルプロテオミクスプロファイルがそれぞれ異なることが示唆された(図 4B).
ペアワイズ直交部分最小二乗判別分析により、Sham群とCHF群の間(図 4C)、およびCHF群とEA群の間(図 4D)で分離が認められた。対応する置換検定により、各モデルの信頼性が裏付けられた。さらに、ピアソンの相関ヒートマップでは、プロテオームサンプルにおいて群内での高い相関と群間で明確に異なるパターンが示され、生物学的レプリケートの再現性が支持された(図 4E)。以上の品質管理および多変量解析の結果から、このプロテオームデータセットは、その後の差分発現タンパク質の同定およびバイオインフォマティクス解析を行うのに十分な堅牢性を有していることが示された。
電気針は、孤束核における主要な変動発現タンパク質およびシグナル伝達経路を調節する
EAの分子標的を探索するため、タンパク質の変動を解析した。ボルケーノプロットにより、Sham群対CHF群およびCHF群対EA群の比較におけるタンパク質の発現上昇および低下の分布を示した(図 5A、補完表 2、および補完表 3)。治療標的を特定するために、インターセクション解析(積集合解析)を行った。ベン図に示すように、CHF群で発現が上昇し、EA治療後に発現が低下した58個のタンパク質と、CHF群で発現が低下し、EA介入によって発現が上昇した27個のタンパク質が特定された(図 5B および補完表 4)。このスクリーニングにより、合計85個の主要な発現変動タンパク質が抽出された。階層的クラスタリングヒートマップにより、EA介入がこれら85個のタンパク質の異常な発現パターンを調節し、それらのプロファイルをShamのベースラインへと移行させたことが示された(図 5C)。
これらのコアターゲットの生物学的機能を決定するため、2つの異なるタンパク質サブセットに対してGOおよびKEGG濃縮分析を個別に実施した。EAによって発現が低下した58個のタンパク質のサブセットでは、GOバブルプロットにより、細胞外マトリックス組織化や細胞外構造組織化などの生物学的プロセス、外部包囲構造やコラーゲン三量体などの細胞成分、そしてコラーゲン結合やグルタミン酸受容体結合などの分子機能において有意な濃縮が示された(図 5D および 付録表 5)。続いて、コードダイアグラムおよびサンキーダイアグラムを用いて可視化したKEGGパスウェイ分析により、これら58個のタンパク質がタンパク質の消化および吸収、筋細胞の細胞骨格、TGF-βシグナル伝達パスウェイなどのカスケードに関与していることが明らかになった(図 5E および 付録表 6)。これらのトポロジカル可視化により、COL3A1、COL14A1、MYH11、DCN、DPF2を含む特定のタンパク質が、複数の病理学的パスウェイを繋ぐ主要なノードであることが強調された。
対照的に、EA介入によって発現が上昇した27個のタンパク質のサブセットについて機能注釈を行った。GO濃縮解析の結果、細胞成長の調節やDNAテンプレート転写伸長の正の調節といった生物学的プロセスへの関与に加え、カルシウム依存性タンパク質結合やテトラピロール結合を含む分子機能への関与が示された(図5F および 付録表7)。対応するKEGGコード図およびサンキーダイアグラムにより、これらのタンパク質が、ATP依存性クロマチンリモデリングやポリコム抑制複合体を含む重要なパスウェイにマッピングされた(図5G および 付録表8)。特筆すべき点として、このネットワークマッピングにより、YY1、E2F2、ENTPD5などの主要なタンパク質が特定され、これらが中心的なシグナリングネットワークを橋渡ししていることが明らかになった。この包括的な機能層別化により、その後のコアターゲット検証のための構造的基盤が構築された。
ネットワークトポロジーと発現プロファイリングにより、電気鍼治療介入の効果に関連する候補ターゲットとしてYY1が同定された
85個の変動発現タンパク質の中からハブ遺伝子を特定するため、タンパク質相互作用ネットワークを構築した。トポロジカル解析により、高い接続スコアを持つ18個のノードが同定された(図 6A および 補足表 9)。続いて、これら18個のハブタンパク質に特化してKEGGパスウェイ解析を行った。対応するコードダイアグラムおよびサンキーダイアグラムにより、これらのハブと、ATP依存性クロマチンリモデリング、ポリコム抑制複合体、TGF-βシグナル伝達経路を含む、濃縮されたシグナル伝達カスケードとの間の複雑な関係がマッピングされた(図 6A および Supplementary Table 10)。この機能プロファイリングに基づき、顕著に濃縮されていた上位10個のタンパク質をさらなるスクリーニングのために選出した。EAの治療標的は中枢神経系に位置するため、これら10個の候補をGTExヒト組織発現データベースを用いて評価した(図 6B および 補足図 1B–J)。その結果、YY1(図 6B)、DMAP1(補足図 1C)、および DPF2(補足図 1D)のみが脳組織で発現していることが示された。
EAの応答性が高い候補標的を単離するため、NTS組織を用いたin vivo分子実験を行った。3つの脳濃縮候補因子の転写応答性を評価するために、定量リアルタイムPCRを用いた。その結果、YY1のmRNA発現はCHF条件下で低下し、EA治療後に上昇したが、DPF2およびDMAP1のmRNA発現レベルは実験群間で統計的に有意な変化を示さなかった(Figure 6C)。この転写スクリーニングにより、DPF2とDMAP1はさらなる検証から除外され、YY1が主要な応答候補であることが裏付けられた。その後のウェスタンブロット解析では、Sham群を基準とした場合、CHF群でYY1タンパク質レベルが低下していたが、EA介入はこの傾向を打ち消し、YY1タンパク質発現を増加させた(Figure 6DおよびFigure 6E)。これらの実験結果は、EAがNTS内においてYY1の発現をアップレギュレートすることを示している。
YY1の発現を制御する上流の調節機構を調べるため、関連するヒストン修飾および転写因子の解析を行った。なお、これらの知見はCistrome Data Browserから得られた計算バイオインフォマティクスの予測のみに基づくものであり、直接的な実験的ChIP-seq検証の結果ではないことに留意されたい。エピジェネティックな予測では、YY1遺伝子座において、H3K27ac、H3K27me3、H3K4me3を含むヒストン修飾が高い調節ポテンシャルスコアを示すことが明らかになった(Figure 6F)。同時に、調節ポテンシャルスコアリングにより、CDK9、PRDM1、およびELL2などの転写因子がYY1の上流調節因子として同定された(Figure 6G)。これらのバイオインフォマティクス予測は、NTSにおけるYY1発現を制御する潜在的なエピジェネティックおよび転写ネットワークを概説するものである。
要約すると、提示されたデータは、EA介入がCHFラットにおける全身的な心機能を効果的に改善し、心筋損傷を軽減することを実証している。これらの末梢における心保護効果には、中心的な作用として、NTS内でのニューロンの発火活動および神経振動エネルギーの回復が伴っている。さらに、定量的プロテオミクススクリーニングにより、85個の主要な変動発現タンパク質が同定され、転写因子YY1が高反応性の候補ターゲットであることが明らかになった。以上の結果から、CHFに対するEAの治療効果はNTSの神経機能の回復と密接に関連しており、YY1のアップレギュレーションがこの中心的な神経生物学的プロセスに関与している可能性が示唆される。
データの利用可能性
本研究の知見を裏付けるために生成および分析されたすべてのデータは、原稿内およびそのSupplementary File 1に含まれています。公的データのアクセシビリティに関する要件に従い、本研究の根拠となる利用可能なすべての生データは、Zenodoパブリックリポジトリに寄託されており、以下のリンクから自由にアクセス可能です:https://doi.org/10.5281/zenodo.22030720。また、正当な理由がある場合には、責任著者から追加の支持データを提供することが可能です。
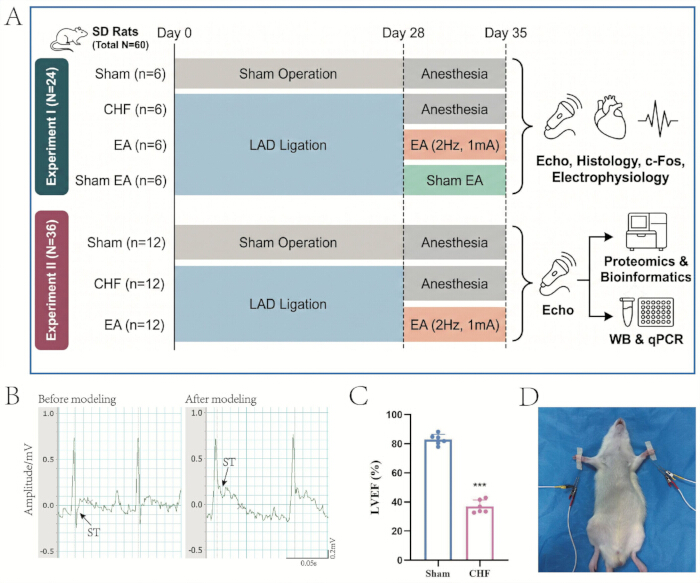
図1: 実験デザイン、慢性心不全ラットモデルの作製、および電気針治療の介入。(A) 2つの独立した実験シリーズにおけるタイムラインと群分けを含む、実験全体のフローチャート。(B) LAD冠動脈結紮前後の代表的な心電図記録。矢印は心筋虚血を確認するST節の上昇を示している。(C) モデル作製の成功を確認するための、術後4週目のLVEFの定量分析(生物学的反復 n = 6, 平均 ± SD)。***p < 0.001 vs. Sham群。(D) 両側のHT7経穴へのEA介入。ここをクリックして、この図の拡大版を表示してください。
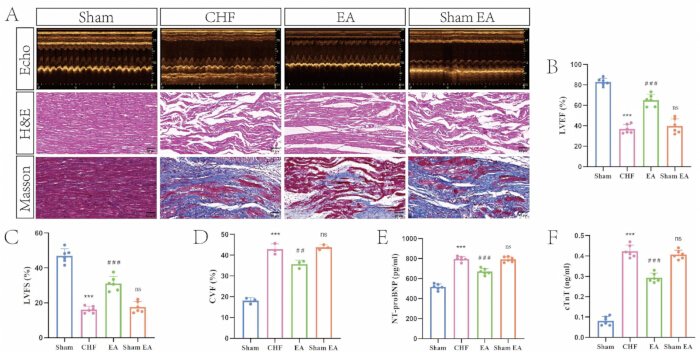
図2電気鍼治療は、慢性心不全ラットにおける心機能を改善し、心筋損傷を軽減させる。(A) 4つの実験群における心筋組織の代表的なMモード心エコー図、ならびにヘマトキシリン・エオジン染色およびマッソン・トリクローム染色画像(スケールバー = 50 µm). (B) 群間におけるLVEFの定量分析(生物学的反復 n = 6、平均値 ± SD). ***p < Sham群に対し 0.001; ###p < 0.001:CHF群と比較して有意差あり。ns:CHF群と比較して有意差なし。 (C) 群間におけるLVFSの定量分析(生物学的反復 n = 6、平均値 ± 標準偏差(SD)。 ***p < Sham群に対し0.001; ###p < CHF群に対してp < 0.001;nsはCHF群に対して有意差なし。 (D) 群間におけるCVFの定量分析(生物学的レプリケート n = 3、平均値 ± 標準偏差(SD)。 ***p < Sham群に対し0.001; ##p < CHF群に対しp < 0.01;nsはCHF群に対し有意差なし。 (E) 各群における血清NT-proBNP濃度の定量分析(生物学的反復 n = 6、平均値 ± 標準偏差(SD)。 ***p < Sham群と比較して0.001; ###p < 0.001 vs. CHF群;ns:CHF群に対して有意差なし。 (F) 各群における血清cTnT濃度の定量分析(生物学的反復 n = 6、平均値 ± 標準偏差(SD)。 ***p < Sham群に対し 0.001; ###p < 0.001(CHF群と比較);ns、CHF群と比較して有意差なし。 この図の拡大版を表示するには、ここをクリックしてください。
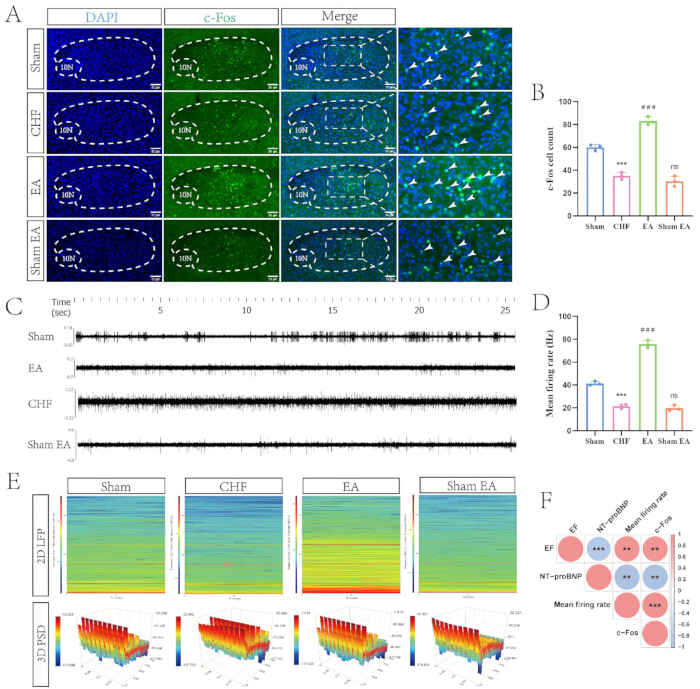
図 3: 電気鍼治療は、慢性心不全ラットの孤束核におけるニューロン活性を回復させる。(A) 各群におけるNTSのc-Fos発現の代表的な免疫蛍光画像。核はDAPIで対比染色され、c-Fos陽性細胞は緑色に染色されている。破線は解剖学的領域を囲み、白い矢印は代表的なc-Fos陽性ニューロンを示す(スケールバー = 30 µm)。(B) 各群におけるc-Fos陽性細胞数の定量分析(生物学的反復 n = 3, mean ± SD)。***p < 0.001 vs. Sham群; ###p < 0.001 vs. CHF群; ns, CHF群に対して有意差なし。(C) 各群におけるNTSの代表的なin vivo電気生理学的スパイク放電トレース。(D) 各群における平均ニューロン発火率の定量分析(生物学的反復 n = 3, mean ± SD)。***p < 0.001 vs. Sham群; ###p < 0.001 vs. CHF群; ns, CHF群に対して有意差なし。(E) NTS内の神経振動エネルギーを示す代表的な2D局所フィールド電位スペクトログラムおよび3Dパワースペクトル密度トポグラフィー。(F) 末梢心血管表現型と中枢神経活動パラメータとの関係を評価した相関行列。赤色と青色の円は、それぞれ正の相関と負の相関を示す。**p < 0.01; ***p < 0.001。こちらのリンクをクリックして、この図の拡大版を表示してください。
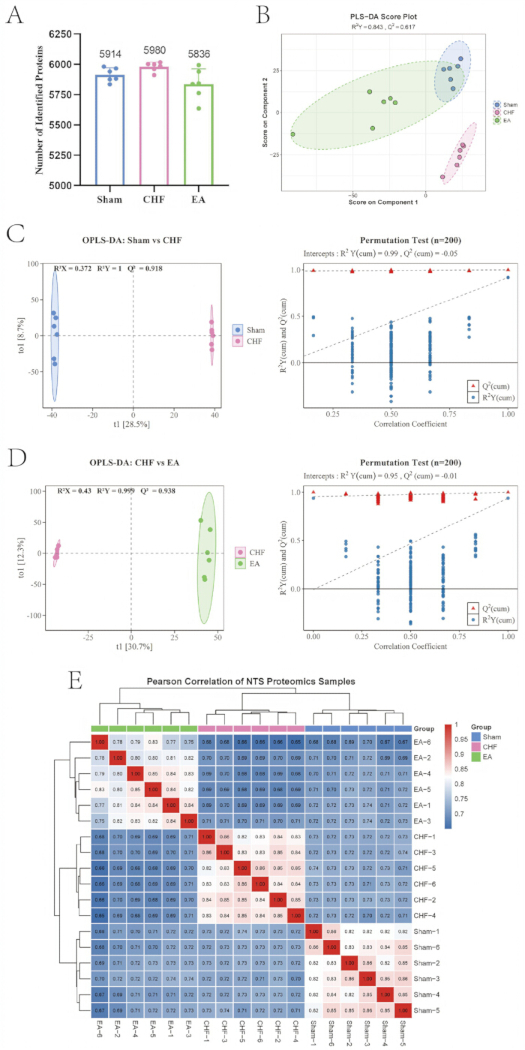
図 4: 孤束核におけるプロテオームプロファイルの品質管理および多変量統計評価。(A) 3つの実験群(生物学的反復 n = 6)における同定タンパク質の定量的概観。(B) 群間の全体的な空間分布と分離を示す部分最小二乗判別分析(PLS-DA)スコアプロット。(C) Sham群とCHF群の比較におけるモデルの信頼性を検証する直交部分最小二乗判別分析(OPLS-DA)スコアプロットおよび対応する置換検定(200回の置換)。(D) CHF群とEA群の比較におけるモデルの信頼性を検証する直交部分最小二乗判別分析(OPLS-DA)スコアプロットおよび対応する置換検定(200回の置換)。(E) すべてのプロテオームサンプルにおける群内再現性と群間分散を評価したピアソン相関係数の階層的クラスタリングヒートマップ。こちらのリンクをクリックして、この図の拡大版を表示してください。
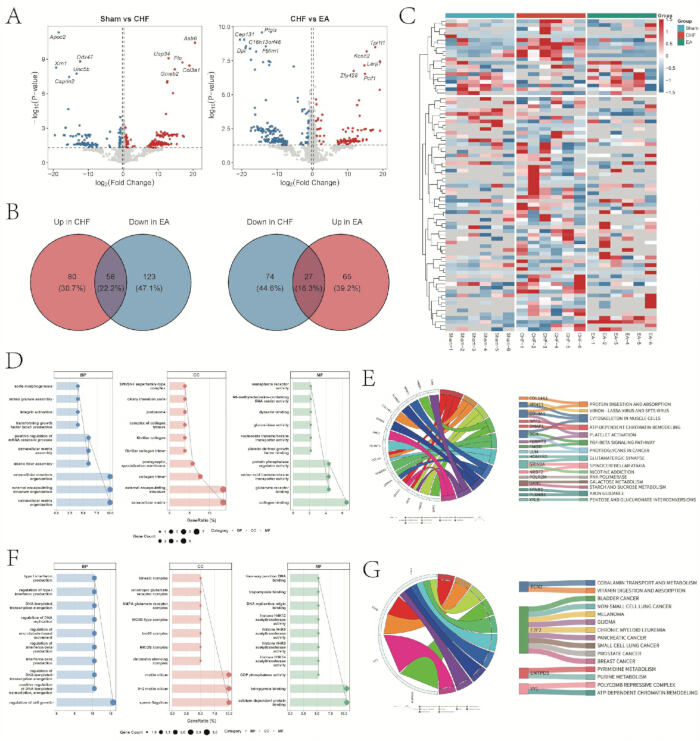
図5孤立路核において電気鍼刺激により調節されるコア差分発現タンパク質の同定および機能濃縮解析。(A) Sham群対CHF群、およびCHF群対EA群の比較における、発現上昇および発現低下タンパク質の分布を示すボルケーノプロット。 (B) EA介入後の発現低下および発現上昇したコアタンパク質を特定するための、交差分析を示すベン図。 (C) 主要な変動タンパク質の発現プロファイルの階層的クラスタリングヒートマップ。 (D) 発現低下したタンパク質サブセットにおいて、濃縮された生物学的プロセス、細胞成分、および分子機能を詳細に示したGOバブルプロット。 (E) 発現低下タンパク質によって濃縮されたシグナリングパスウェイをマッピングしたKEGGコードダイアグラムおよびサンキーダイアグラム。 (F) 発現上昇したタンパク質サブセットにおいて濃縮された生物学的プロセス、細胞成分、および分子機能を詳細に示したGOバブルプロット。 (G) 発現上昇したタンパク質によって濃縮されたシグナリング経路をマッピングしたKEGGコード図およびサンキーダイアグラム。 こちらの図の拡大版を表示するには、ここをクリックしてください。
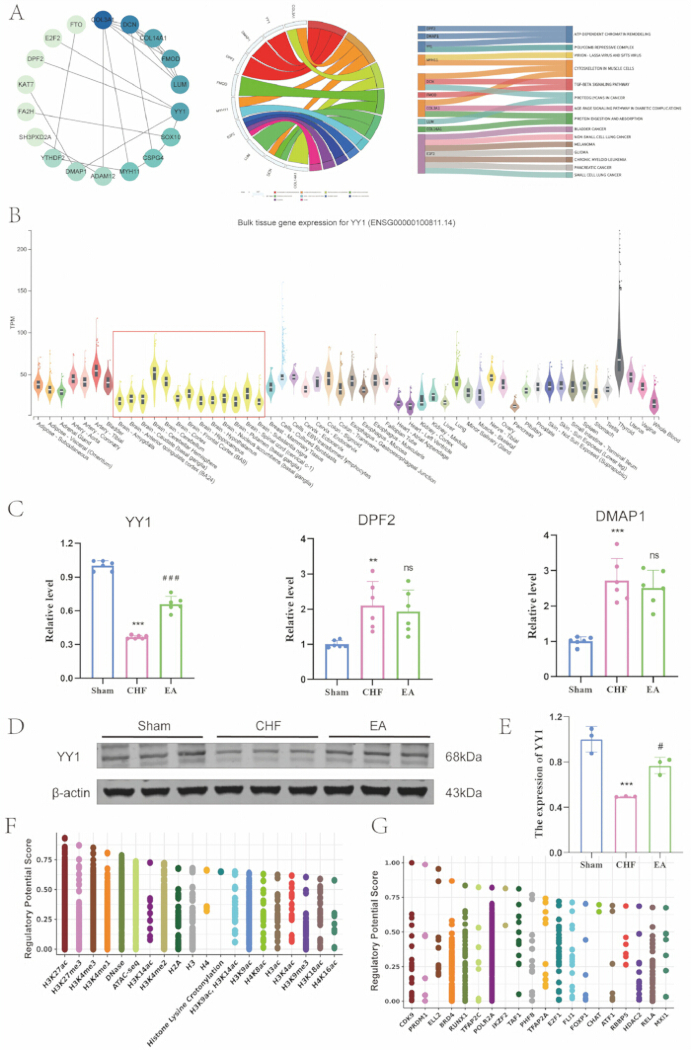
図 6: ネットワークトポロジー、組織発現プロファイリング、および分子生物学的検証により、電気鍼に関連する標的候補としてYY1が同定された。(A) 同定されたハブタンパク質のタンパク質相互作用ネットワーク、コード図、およびサンキーダイアグラム。(B) GTExデータベースから得られたYY1のヒト組織発現プロファイル(赤枠は脳組織を示す)。(C) 各群におけるNTS中のYY1、DPF2、およびDMAP1 mRNA発現の定量分析(生物学的反復 n = 6, 平均 ± SD)。**p < 0.01, ***p < 0.001 vs. Sham群; ###p < 0.001 vs. CHF群; ns, CHF群に対して有意差なし。(D) 各群におけるNTS中のYY1およびβ-actinの代表的なウェスタンブロットバンド。(E) 各群におけるYY1タンパク質発現の定量分析(生物学的反復 n = 3, 平均 ± SD)。***p < 0.001 vs. Sham群; #p < 0.05 vs. CHF群。(F) 制御ポテンシャルスコアに基づく、YY1遺伝子座を制御するエピジェネティックなヒストン修飾のバイオインフォマティクス予測。(G) 制御ポテンシャルスコアに基づく、YY1遺伝子座を制御する上流転写因子のバイオインフォマティクス予測。この図の拡大版を表示するには、ここをクリックしてください。
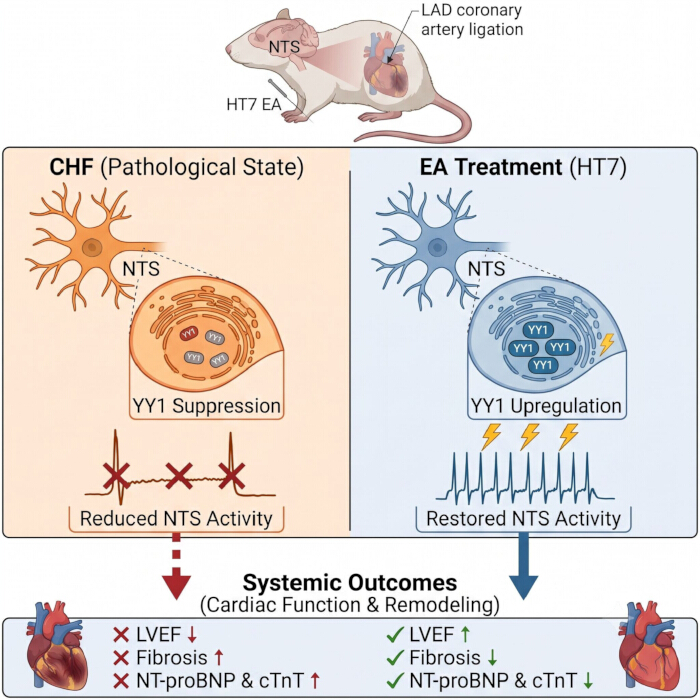
図7: HT7への電気鍼治療、YY1のアップレギュレーション、孤束核におけるニューロン活動の回復、および慢性心不全の改善との関連について提案されたモデル。(左)病理学的状態:LAD冠動脈結紮によって誘発されたCHFモデルでは、転写因子YY1の抑制に伴い、NTS内のニューロン活動が低下している。この中枢神経抑制は、LVEFの低下、心筋線維化の増加、および血清心不全マーカーの上昇として現れる病理学的な心リマデリングに関連している。(右)EA治療:HT7経穴へのEA介入は、NTSにおけるYY1の発現をアップレギュレートし、ニューロンの発火を回復させる。この中枢神経変調は心保護効果を発揮し、病理学的リマデリングを軽減し、全身的な心機能を改善する。 ここをクリックして、この図の拡大版を表示してください。
補足図1:プロテオミクスコホートの心機能評価および候補ハブ遺伝子のヒト組織発現プロファイル。(A) 各群におけるLVEFおよびLVFSの定量分析(生物学的反復 n = 12, 平均 ± SD)。***p < 0.001 vs. Sham群;###p < 0.001 vs. CHF群。(B-J) GTExデータベースから得られた候補ハブ遺伝子のヒト組織発現プロファイル。COL3A1 (B)、DMAP1 (C)、DPF2 (D)、FMOD (E)、MYH11 (F)、E2F2 (G)、LUM (H)、DCN (I)、およびCOL14A1 (J)を含む。こちらをクリックしてファイルをダウンロードしてください。
補足表 1:孤束核におけるグローバルプロテオームの包括的な同定および定量マトリックスこの表は、すべての実験コホートにおける完全な定量プロテオミクスデータセットを示しています。重要な列には、Protein ID(UniProtアクセッション番号)、Gene(遺伝子シンボル)、First.Protein.Description(機能注釈)、およびSham群、CHF群、EA群の各生物学的反復における正規化タンパク質強度値(各群 n = 6)が含まれます。こちらをクリックしてファイルをダウンロードしてください。
補足表2:Sham群とCHF群の比較におけるタンパク質のOPLS-DA変数重要度投影(VIP)スコアこの表には、OPLS-DAモデルに基づきSham群とCHF群を区別する特徴量が記載されています。主要な列には、feature(特定のタンパク質/遺伝子の識別子を表す)とVIP_value(Variable Importance in Projection)が含まれており、後者は群間分離に対する各特徴量の寄与度を示しています(閾値:VIP > 1.0)。こちらのリンクからファイルをダウンロードしてください。
補足表3:CHF群とEA群の比較におけるタンパク質のOPLS-DA変数重要度投影(VIP)スコアこの表は、OPLS-DAモデルに基づき、CHF群とEA群を区別する特徴量をリスト化したものである。表S2と同様に、特徴量の列と対応するVIP_valueが含まれており、EA介入に最も反応した特徴量が強調されている。こちらをクリックしてファイルをダウンロードしてください。
補足表4:電針によって調節された85個のコア変動発現タンパク質の詳細リスト。この表は、CHFによって有意に変動し、その後にEA介入によって回復したタンパク質の共通項目を示している。重要な列には、Protein_ID、Gene、log2FC(発現変動を示すlog2 Fold Change)、統計的有意性のためのP_value(閾値 p < 0.05)、およびモデルへの寄与度を評価するVIP_valueが含まれる。こちらのリンクからファイルをダウンロードしてください。
補足表5:ダウンレギュレートされたコアタンパク質サブセットのジーンオントロジー(Gene Ontology)濃縮分析。この表は、EAによってダウンレギュレートされた58個のタンパク質のジーンオントロジー(GO)機能アノテーションを示しています。重要な列には、ONTOLOGY(生物学的プロセス [BP]、細胞成分 [CC]、分子機能 [MF] に分類)、機能的なDescription、p.adjust(多重検定のために調整されたp値)、および各用語で濃縮された特定の遺伝子に対応するgeneIDが含まれます。こちらのリンクからファイルをダウンロードしてください。
補完表6:発現低下したコアタンパク質サブセットのKyoto Encyclopedia of Genes and Genomesパスウェイ濃縮分析。この表は、発現低下した58個のタンパク質における濃縮されたシグナル伝達カスケードを示している。主要な列には、パスウェイのTerm(項目)、濃縮の統計的有意性を示す調整済みp-value、および各パスウェイに関与する特定の交差Gene(遺伝子)が含まれている。こちらをクリックしてファイルをダウンロードしてください。
補足表7:上昇調節されたコアタンパク質サブセットのジーンオントロジー(GO)濃縮解析。この表は、EAによって上昇調節された27種類のタンパク質のジーンオントロジー(GO)機能アノテーションを示しています。形式および列の定義(ONTOLOGY [BP, CC, MF]、Description、p.adjust、geneID)は、表S5に詳述されているものと同一です。こちらをクリックしてファイルをダウンロードしてください。
補足表8:発現上昇したコアタンパク質サブセットのKyoto Encyclopedia of Genes and Genomesパスウェイ濃縮分析この表は、発現上昇した27種類のタンパク質における濃縮されたシグナリングカスケードを示しています。形式および列の定義(Term、補正後p値、Genes)は、表S6に詳述されているものと同一です。こちらをクリックしてファイルをダウンロードしてください。
補足表9:タンパク質相互作用ネットワークから導出された18個のハブタンパク質のトポロジカル接続スコア。この表は、コアハブ遺伝子の特定に使用されたネットワークトポロジーパラメータをまとめたものである。主な列には、遺伝子名、および生物学的ネットワーク内における各ノードの相対的な重要性と接続性を定量化するDegree(次数)、Betweenness Centrality(媒介中心性)、Closeness Centrality(近接中心性)などの中心ネットワーク指標が含まれている。こちらのリンクからファイルをダウンロードしてください。
補足表 10:18種類のネットワークハブタンパク質のKyoto Encyclopedia of Genes and Genomes(KEGG)パスウェイ濃縮解析。この表は、特定された18種類のハブタンパク質によってのみ濃縮された特定のシグナリングパスウェイを示しています。主な列には、パスウェイ名(Term)、有意性を示す調整済みp値、および機能的濃縮を駆動しているそれぞれの遺伝子(Genes)が含まれます。こちらのリンクからファイルをダウンロードしてください。
補足ファイル1:データ解析および可視化に使用したRスクリプト、および未切除のウェスタンブロット画像。この補足ファイルには、ピアソン相関分析、ダブルボルケーノプロットの作成およびEA逆転タンパク質の同定、ジーンオントロジー(GO)濃縮分析、階層的クラスタリングヒートマップの作成、京都遺伝子ゲノム百科事典(KEGG)濃縮の可視化、直交部分最小二乗判別分析(OPLS-DA)およびパーミュテーションテスト、部分最小二乗判別分析(PLS-DA)、プロテオミクスサンプルの相関ヒートマップの作成、およびベン図分析に使用したRスクリプトが含まれています。こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
本研究では、慢性心不全(CHF)ラットモデルにおける神門(HT7)穴への電気鍼(EA)の中枢メカニズムを調査した。生理学的および組織学的データにより、EAが左室駆出率(LVEF)を改善し、心筋線維化を軽減させることが示された。これらの末梢の変化と並行して、生体内電気生理学的記録および神経マッピングにより、EAが孤束核(NTS)内の神経発火率を回復させることが裏付けられた。質量分析ベースのプロテオミクスを通じてNTSの分子ランドスケープをマッピングし、介入によって異常な発現パターンが調節された85個の変動タンパク質を同定した。その後のトポロジー解析および組織発現プロファイリングにより、転写因子YY1が候補バイオターゲットとして抽出された。分子生物学的な検証により、EAがYY1の発現を上昇させることが示された。これらの知見は、EAの中枢分子ネットワークを構築するものであり、YY1が中枢自律神経調節とCHFの改善を結びつける潜在的な神経生物学的ターゲットであることを示唆している。包括的な中枢メカニズムは図7にまとめられている。
孤束核(NTS)は、中心性心血管反射と自律神経調節の統合センターとして機能します21,22。心血管疾患において、慢性心不全(CHF)は、交感神経の過剰活性化と迷走神経の抑制を特徴とする持続的な自律神経不均衡を伴います23。この病態の病理生理学的な進行に伴い、末梢圧受容器の感受性が低下し、NTSへの興奮性求心性入力が減少します24。その結果、この神経的な鈍化により、延髄後腹外側部(CVLM)の活性化が減弱し、それに続いて延髄前腹外側部(RVLM)の脱抑制が起こり、最終的に過剰な中枢性交感神経流出を招きます25。これらのメカニズムと並行して、電気生理学的および組織学的データにより、CHF状態ではNTSニューロンの自発的な発火頻度とc-Fos発現が減少していることが示されました。標的的な神経調節アプローチとして、電気鍼(EA)によって生成された体性感覚求心性信号は、末梢神経を介して脊髄後角に伝達され、NTSを含む脳幹構造へと上昇することが理論的に提案されています26。結果は、HT7(神門)穴へのEA介入が、この脳領域における神経振動エネルギーを増加させ、ニューロンの発火率を回復させたことを示しました。生理学的に、回復したNTSニューロン活性は、延髄内の抑制性介在ニューロンの活性化を促進し、それによって過剰活性化した交感神経前運動ニューロンを抑制すると同時に、副交感神経遠心性信号を増強します27。これらの中枢神経メカニズムを末梢心血管表現型と結びつけると、相関分析により、この中枢神経活性化がLVEFと正の相関があり、末梢心不全マーカーであるNT-proBNPと負の相関があることが裏付けられました。これらの知見は、EAがNTSニューロンの病理的な抑制を緩和し、中枢性の自律神経ホメオスタシスを促進することで、末梢的な心保護効果を発揮する可能性を示唆しています。
この中心的な神経調節の根底にある分子経路を解明するため、NTSのプロテオーム解析を行った。質量分析ベースのプロテオミクスにより、介入によって発現パターンが変動した85個のタンパク質が同定された。機能的な階層化により、EAによってダウンレギュレートされた58個のタンパク質のサブセットが、細胞外マトリックスの構築およびTGF-βシグナル伝達経路に顕著に関与していることが明らかになった。中枢神経系における細胞外マトリックスは、シナプス末端を物理的に包み込み、局所的なイオン恒常性を調節するペリニューロナルネットを含む、組織化された格子構造を形成している28。心不全などの慢性的な病理学的ストレス下では、異常な細胞外マトリックスの沈着により、脳幹内に制限的な微小環境が形成される29。この構造的なリモデリングは、シナプスの構造的可塑性を物理的に妨げ、神経回路を交感神経亢進状態に維持させる30。EAは、DCNとともにCOL3A1やCOL14A1などの構造タンパク質の発現を調節することで、この病理学的な細胞外バリアをリモデリングする。同時に、「筋細胞の細胞骨格」KEGGパスウェイに分類される関連シグナルカスケードの濃縮(これはNTS内に実際に筋細胞が存在することを意味するのではなく、一般的な構造的およびインテグリン介在性の変化を示すものである)は、細胞外の変化が細胞内コンパートメントに伝達されていることを示唆している31。このメカノトランスダクションシグナルが樹状突起スパインのダイナミックなターンオーバーを回復させ、自律神経反射弧におけるシナプス伝達とその効率を調節する32。
細胞外の構造的再編成に加えて、介入によって発現が上昇した27種類のタンパク質の機能注釈から、ATP依存性クロマチンリモデリングの関与が示されました。持続的な心血管自律神経不全はエピジェネティックな制限によって維持されており、凝縮したクロマチンが神経抑制を調節する遺伝子のプロモーター領域へのアクセシビリティを制限しています33。ATP依存性クロマチンリモデリング複合体は、ATP加水分解からのエネルギーを利用してヌクレオソームをスライドさせるか排除し、それによってゲノム領域を活性転写のために開放します34。この経路の濃縮は、DNAテンプレート転写伸長の正の調節とともに、EAがエピジェネティックなレベルで作用して疾患に関連する転写記憶をリモデリングすることを示唆しています35。細胞外微小環境の構造的弛緩は核内エピジェネティック修飾へと変換され、YY1やE2F2などの主要タンパク質によって橋渡しされる神経保護遺伝子ネットワークの協調的な転写を促進します36,37。EAの治療 efficacy を媒介する生物学的標的を系統的に単離するため、段階的なスクリーニング戦略が適用されました。発現変動のあった85種類のタンパク質をトポロジカルネットワークマッピングとパスウェイ濃縮分析でフィルタリングし、10個の有力なハブ候補を特定しました。その後の組織発現プロファイリングにより、ヒト脳組織で発現しているのはYY1とDPF2、およびDMAP1のみであることが確認されました。in vivoでの分子検証により、転写応答性の欠如からDPF2とDMAP1がさらに除外され、YY1が高応答な候補標的であることが確認されました。YY1は、中枢神経系の発達と神経可塑性を制御するジンクフィンガー転写因子です38。成熟した神経回路において、YY1はミトコンドリアの恒常性を維持し、酸化ストレスを軽減することで神経保護調節因子として機能します39。CHFの病理学的進行において、持続的な血行動態ストレスと末梢炎症は、脳幹ニューロンに代謝機能不全と構造的損傷を誘発します40。実験データは、CHF条件下ではNTSにおいてYY1の発現が抑制される一方で、EA介入はこの病理的な抑制を打ち消すことを示しました。経験的な検証ではなく計算バイオインフォマティクスによる予測に基づくと、YY1はH3K27acやH3K4me3などの活性ヒストン修飾と相互作用し、下流の神経保護遺伝子ネットワークの転写を編成するという仮説が立てられています41。YY1活性の回復は、ニューロンの代謝経路の修復を促進し、シナプス接続の構造的完全性を高める可能性があります。その結果、調節されたNTSニューロンは末梢バロリフレックス入力を処理する能力が向上し、下行性交感神経前運動路に対して抑制的制御を及ぼすことで、CHFに伴う心血管系の悪化を改善します42。
これらの発見にもかかわらず、いくつかの方法論的な限界について厳格な検討が必要である。第一に、現在の実験デザインは、直接的な機能的根拠を伴わない相関的なオミクス解析および発現プロファイリングに依存していた。今後の研究では、NTS内でのウイルスベクターを介したノックダウンや過剰発現などの標的遺伝子操作を、実証的なChIP-seqやCUT&RUNなどの解析と併せて導入しなければならない。&YY1の因果的役割を確定的に立証し、その下流のエピジェネティックネットワークを検証するためのタグアッセイ(Tag assays)が行われていない。第二に、プロテオミクス解析段階でSham EA群を除外したことで、非特異的な体性感覚刺激によって誘導される分子シグネチャーを決定的に排除する能力が制限された。しかし、現在の設計では、Shamのベースラインに対してCHF群とEA群を比較することで、EA特異的な分子変化を分離するには十分であると考えられる。これは、Sham群およびCHF群を含むすべての非介入コホートにおいて、日々のイソフルラン麻酔曝露の厳格なベースライン標準化が行われており、最も深刻な非特異的神経ストレスによる混絡因子が効果的に最小限に抑えられたためである。さらに、初期の機能的データでは、Sham EAがCHF群と比較して有意な心血管系または神経系の活性化を引き起こさなかったことが示されており、電流を伴わない表層的な体性感覚刺激では、実質的な中枢分子リプログラミングを駆動するために必要な閾値に達しないことが示唆された。第三に、本研究では標準的な非経穴コントロール群が欠落しており、HT7(神門)という経穴の特異性を確定的に確認することができない。さらに、提案されたHT7からNTS(孤束核)への求心性神経経路は、直接的な神経トレーシングや神経遮断による検証が行われていないため、依然として推測の域を出ない。最後に、in vivo電気生理学的評価では、特定の興奮性および抑制性ニューロンのサブポピュレーションを区別せず、単一時点でのNTS全体の活動を評価したのみであり、長期的な神経可塑性についても評価していない。今後の研究では、中枢神経生物学的メカニズムを精緻化するために、これらの重要な欠落に対処する必要がある。
最終的に、これらの知見が相関関係に基づいたものであることを認めつつ、それらを統合することで、本研究はEAがNTSニューロン機能を回復させることで病理学的な心リモデリングを軽減するという、価値ある分子論的枠組みを提示します。これらのデータは、YY1が中枢心血管ニューロモジュレーションにおける非常に応答性の高い候補標的であることを強調しており、心不全管理における鍼治療の臨床応用に向けた新たな神経生物学的洞察を提供します。
開示事項
すべての著者は、利益相反がないことを宣言します。また、著者は、原稿作成のいかなる過程においても人工知能ツールを利用しなかったことを宣言します。
謝辞
本研究に貢献したすべての研究者に心より感謝申し上げるとともに、供出された実験動物の犠牲に深く敬意を表します。本研究は、中国国家重点研究開発計画(助成番号 2022YFC3500500 および 2022YFC3500502)および徐能貴大学レベル人材支援計画(助成番号 DT2400000222)の支援を受けて実施されました。助成団体は、研究デザイン、データ収集および解析、出版の決定、または原稿の作成において一切の役割を担っていません。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 成体雄性Sprague-Dawleyラット | 辽宁长生生物药业股份有限公司 | No. SCXK (LIAO) 2025-0001 | RGD_70508 |
| 鍼針 | 蘇州天協鍼灸儀器有限公司 | — | — |
| DAPI含有抗退色封入剤 | Aibixin Biotechnology Co., Ltd. | abs9235-25ml | — |
| 抗YY1一次抗体 | Proteintech Group, Inc | 66281-1-Ig | AB_2881664 |
| 抗ベータアクチン一次抗体 | 66009-1-Ig | AB_2687938 | |
| 牛血清アルブミン (BSA) | Sigma Odellie Trading Co., Ltd. | V900933 | — |
| BCAタンパク質定量キット | 上海碧雲天生物科技有限公司 | P0012S | — |
| c-Fos (9F6) ウサギ mAb | Sai Xin Tong Biological Reagents Co., Ltd. | 2250S | AB_2247211 |
| Cytoscape | Cytoscapeコンソーシアム | バージョン 3.2.1 | SCR_003032 |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q711-02 | — |
| 電気鍼治療装置 | 南京吉盛医療科技有限公司 | HANS-200A | — |
| 8チャンネル(2 × 4) マイクロ電極アレイ | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| ELISAキット(NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| ELISAキット (cTnT) | MM-0795R2 | — | |
| 強化化学発光キット | Proteintech Group, Inc | PK10001 | — |
| ヤギ抗ウサギIgG | Aimee Technology Co., Ltd. | 111-545-003 | AB_2338046 |
| HRP標識ヤギ抗マウスIgG二次抗体 | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | 該当なし |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| ImageJソフトウェア | 米国国立衛生研究所 | バージョン 4.0 | SCR_003070 |
| イメージングシステム | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| マルチチャンネル小動物用麻酔器 | RWD Life Science Co., Ltd | R510-22-10 | — |
| 顕微鏡 | Olympus Optical Co., Ltd. | DP72 | — |
| NeuroExplorerソフトウェア | Beijing Plexon Technology Co., Ltd. | バージョン 5.0 | SCR_001818 |
| Offline Sorter ソフトウェア | 北京 Plexon Technology Co., Ltd. | バージョン 4.7.2 | SCR_000012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| Powerlab標準肢II誘導 システム | AD Instruments International Trading Co., Ltd. | ML118 | — |
| PepMap Neo トラップカラム | Thermo Fisher Scientific | — | — |
| ホスファターゼ阻害剤 | 上海碧云天生物科技有限公司 | P1081 | — |
| Rソフトウェア | — | バージョン 4.5.2 | SCR_001905 |
| RIPA溶解バッファー | Yeasen Biotechnology Co., Ltd. | 20115ES60 | — |
| RNAiso Plus | タカラバイオ株式会社 | 9108 | — |
| 小動物用デジタル超音波診断システム | Feiyino Technology Co., Ltd. | VINNO6 Lab | — |
| 統計解析ソフト | GraphPadソフトウェア | バージョン 8.0 | SCR_002798 |
| OmniPlexマルチチャンネルデータ収集 システム | Beijing Plexon Technology Co., Ltd. | バージョン 1.20.0 | — |
| Triton X-100 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| Vanquish Neo UHPLCシステム | Thermo Fisher Scientific | — | — |
| µPAC Neo 高スループットカラム | Thermo Fisher Scientific | — | — |
参考文献
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.