バルクおよびシングルセル転写解析を統合的に用いた結果、ケロイドの診断バイオマーカーとしてヘム代謝に関連する6つの因子を同定しました。実験的検証により、ケロイド線維芽細胞においてfeline leukemia virus subgroup C receptor 1 (FLVCR1) の制御異常が認められ、さらに分子ドッキングシミュレーションにより、(+)-gallocatechinがFLVCR1と相互作用する可能性のある化合物として同定され、今後の機能的な詳細調査の対象となることが示されました。
この記事について
サマリー
要約
ケロイドは再発率が高く、病態機序が不明確な線維増殖性疾患であり、有効な治療標的に欠けている。最近の知見では、代謝リプログラミング、特にヘム代謝が線維化を促進している可能性が示唆されている。本研究では、ケロイドの病態におけるヘム代謝の役割を調査し、特にfeline leukemia virus subgroup C receptor 1(FLVCR1)に着目して、その診断および治療への応用の可能性を探索した。バルクRNA-seqデータセットおよび単一細胞RNA-seqデータ(scRNA-seq)を解析し、差次的発現解析、最小絶対収縮選択演算子(LASSO)、およびランダムフォレスト(RF)モデルを用いて、ヘム代謝に関連する診断バイオマーカーを特定した。さらに、免疫浸潤解析、単一細胞マッピング、マイクロRNA(miRNA)ネットワーク構築、および漢方薬化合物を用いた分子ドッキングシミュレーションを実施した。その結果、6つのヘム代謝関連バイオマーカーが同定され、高い精度の診断ノモグラムを構築した。内皮細胞およびメラノサイトに集積していたFLVCR1は、T濾胞ヘルパー細胞と負の相関を示し、免疫代謝的なクロストークが示唆された。miRNA調節ネットワーク解析により、6つのバイオマーカーすべてを共通に標的とする5つのmiRNAが明らかになった。分子ドッキングにより、(+)-gallocatechinが高親和性のFLVCR1リガンドとして同定された。これらの知見は、ケロイドの病態においてFLVCR1に関連するヘム代謝と免疫変容との間に相関があることを示唆している。同定されたバイオマーカーパネルは探索的な診断能を示し、(+)-gallocatechinはさらなる検証を要するFLVCR1相互作用化合物の候補として特定された。本研究は、ケロイドを代謝-線維化スペクトラムの中で再定義し、代謝-免疫介入を新たな治療戦略として提案するものである。
概要
ケロイドは、元の皮膚損傷の境界を超えて細胞外マトリックスが過剰に蓄積することを特徴とする線維増殖性疾患であり、世界人口の4~16%に影響を及ぼし、特にアフリカ系、アジア系、ヒスパニック系の人々に顕著に高い有病率が見られます1,2。組織学的には良性であるにもかかわらず、ケロイドは持続的な掻痒感、痛み、機能的拘縮、および審美的な外見の損なわれを通じて、身体的および心理社会的に大きな負担を強います。病変内ステロイド注射、外科的切除、放射線療法、レーザー治療を含む現在の治療法は依然として不十分であり、単独療法後の再発率は50%を超えています3,4,5。このような治療上の停滞は、ケロイドの病態生理、特に標準的な線維化促進シグナルを超えて線維化カスケードを開始および維持させる上流の駆動因子の理解に根本的な乖離があることを強調しています。
現代の研究は、主にTGF-β/Smadシグナリングなどの標準的な経路や、異常な線維芽細胞の活性化に焦点を当ててきました6,7,8。ケロイド組織において、免疫細胞の浸潤(特にM2極性マクロファージ、調節性T細胞、および機能不全の樹状細胞)が報告されていますが9,10、これらの研究の多くは、免疫系の変化を線維芽細胞の機能不全による下流の結果として捉えており、上流の制御因子としては扱っていません。極めて重要な点として、この免疫・線維化のクロストークを能動的に形成し得る代謝プログラムについては、ケロイドの病態において全く未解明のままです11,12,13。代謝のリワイヤリングが組織リモデリングのマスターレギュレーターとして機能するという、線維化疾患における新たなパラダイムが出現していることを考えると、この知見の欠如は顕著です。
代謝リプログラミングは、近年、多くの臓器系における線維化の中心的ノードとして浮上しています。肺および肝線維症では、トランスポーター、スカベンジャー、または生合成酵素の発現変化を通じたヘム恒常性の破綻が、酸化ストレス、フェロトーシス、および無菌性炎症を引き起こし、これがコラーゲン沈着を直接的に促進します14。ヘムの蓄積はNLRP3インフラマソームを活性化して線維芽細胞の活性化を誘導し、一方で猫白血病ウイルスサブグループC受容体1(FLVCR1)の欠損は、解消されないヘム毒性を通じて組織線維化を悪化させます。これらの知見は、ヘム代謝が単なる維持プロセスではなく、線維化カスケードを開始させ得る動的なシグナリングハブであることを示唆しており、このパラダイムは皮膚の線維増殖性疾患において検証されるべき課題となっています。
ヘムが介在する免疫調節の妥当性は、癌および慢性炎症モデルからのメカニズム的な証拠によってさらに裏付けられています。ヘムは免疫細胞の運命を直接的に調節するシグナル分子として機能します。具体的には、TLR4/NF-κBシグナル伝達を介してM1からM2へのマクロファージ極性化を促進し15、Bach2を介した転写抑制を通じてT細胞分化に影響を与え16、さらにFLVCR1依存的なヘム排出を介して樹状細胞の成熟を決定的に制御します17,18。特に、細胞内のヘム恒常性に不可欠な細胞膜ヘムエクスポーターであるFLVCR1は、最近、免疫細胞の発達および血管内皮機能不全に関与していることが示唆されています19。これらの収束的な証拠は、FLVCR1がヘム代謝の調節不全と病理学的な免疫リモデリングを結びつける妥当な分子的な接点であることを示しており、この仮説は、免疫細胞が豊富な微小環境を特徴とするケロイドの病態生理において深い意味を持ちます。
他の疾患におけるヘムと免疫のクロストークに関する理解は大きく進展していますが、ケロイドにおいてヘム代謝の調節不全が、病理学的な免疫学的状況を惹起または増幅させる上流のドライバーとして機能しているかどうかは、完全に未解明のままです。この極めて重要な知識の欠如は、相互に関連するいくつかの理由から早急な調査を必要としています。まず、ケロイドは、持続的な炎症や酸化ストレスを含む特徴的な病理学的特性を、肺線維症や肝線維症などの代謝駆動型の線維化疾患と共有しており、基礎となる調節メカニズムに共通性がある可能性が示唆されます。また、FLVCR1を中心としたヘム輸出機構は、皮膚以外の組織において、マクロファージの分極や樹状細胞の成熟といった主要な免疫機能を直接制御することがメカニズム的に検証されており、これをケロイドの免疫病理学に外挿するための強固な理論的根拠となります20。そして最も重要な点は、この代謝-免疫軸を標的とすることで、単に下流の線維化の影響を抑制する現在の対症療法を超え、疾患進行の代謝的な起点において上流から介入できるという、パラダイムシフトの機会が得られることです21。
この根拠に基づき、我々はFLVCR1を中心としたヘム代謝の調節不全が免疫微小環境を能動的に再構築し、ケロイドの病態形成を促進するという仮説を立てました。この仮説を体系的に検証するため、バルクおよびシングルセル転写解析を統合した多層的なアプローチを採用しました。まず、機械学習アルゴリズムと独立したコホートによる検証を用いて、ケロイド組織におけるヘム代謝関連の診断バイオマーカーを同定し、検証しました。次に、シングルセル解像度のマッピングを通じて、内皮細胞、線維芽細胞、メラノサイト、および免疫細胞サブセットを含む異なる細胞コンパートメントにおけるこれらのバイオマーカーの空間的発現パターンを明らかにしました。続いて、特定の免疫細胞集団との定量的相関を記述することで、機能的な免疫・代謝的連携を確立しました。最後に、FLVCR1を中心としたマイクロRNA(miRNA)調節ネットワークを構築し、伝統的な中薬化合物を用いて分子ドッキングシミュレーションを行い、薬剤介入が可能な標的部位を特定しました。この包括的な研究は、ケロイドの病態形成においてこれまで認識されていなかったヘム代謝ー免疫軸を明らかにするだけでなく、この難治性線維増殖性疾患に対する診断および治療の両面で有用な、トランスレーショナルなバイオマーカーパネルを提供するものです。
プロトコル
本研究では、すべてのデータはGene Expression Omnibus (GEO)を含む公開データベースから取得されており、特定可能なヒト参加者や動物被験者が直接関与していないため、倫理的な承認およびインフォームドコンセントは適用されませんでした。
データ収集および前処理
ヘム代謝関連遺伝子は、Molecular Signatures Database (MSigDB; 材料表および補足表 S1を参照) から取得し、これには REACTOME_Heme_Biosynthesis、REACTOME_Heme_Degradation、Wikipathway_Heme_Biosynthesis、REACTOME_Scavenging_Heme_from_Plasma、および HALLMARK_Heme_Metabolism の遺伝子セットが含まれる。本研究で解析したすべてのデータセットは、公開ソースから取得した。2つのバルク遺伝子発現マイクロアレイデータセットを Gene Expression Omnibus (GEO) データベースから取得した:18件のケロイドサンプルと14件の正常皮膚サンプルで構成される GSE44270、および10件のケロイドサンプルと9件の正常皮膚サンプルで構成される GSE7890 である。GSE44270 および GSE7890 は、それぞれ GPL6244 および GPL570 プラットフォームで生成された。シリーズマトリックスファイルと対応するサンプル情報をダウンロードし、R 環境にインポートした。シリーズマトリックスファイルの発現値は、元のデータ提出者によって既に前処理および正規化されていたため、追加の log2 変換やサンプル間の正規化は行わなかった。2つのデータセットは異なるマイクロアレイプラットフォームで生成されたため、統合せずに独立して処理した。データセットは以下に述べる方法で前処理した(材料表を参照)。遺伝子プローブを対応する遺伝子シンボルにマッピングし、遺伝子アノテーションがないプローブ、または複数の遺伝子に一致するプローブは除外した。複数のプローブセットを持つ遺伝子については、検出された最高の発現レベルに基づいて発現値を割り当てた。さらに、3つのケロイドサンプルを含む GSE163973 のシングルセル RNA シーケンシングデータ (scRNA-seq) をダウンロードし、元の研究で定義された品質管理基準に従って処理した。
ケロイドにおけるヘム代謝関連診断マーカーのスクリーニングおよび検証
ケロイドにおけるヘム代謝関連の変動発現遺伝子を特定するため、R関数のwilcox.testを用いてGSE44270にウィルコクソン順位和検定を適用し、有意水準をP < 0.05としました。ケロイドの潜在的な診断マーカーを特定するために、ランダムフォレスト(RF)とLASSO(least absolute shrinkage and selection operator)ロジスティック回帰という2つの機械学習モデルを採用しました。再現性を確保するため、ランダムフォレスト解析はランダムシード1で実行しました(材料表を参照)。モデルは500本の決定木(ntree = 500)を用いて構築し、遺伝子の重要性はノード不純度の平均減少量(IncNodePurity)に基づいて評価しました。重要度スコアが0.3以上の遺伝子を、ランダムフォレスト由来の候補バイオマーカーとして選出しました。LASSOロジスティック回帰はα = 1で実行し、モデル学習中に50個のlambda値を評価しました(材料表を参照)。最適なペナルティパラメータは、二項応答を用いたcv.glmnet関数による5分割交差検証を用いて決定しました。回帰係数が非ゼロの遺伝子を、LASSOで選択された候補として保持しました。最終的に、ランダムフォレストとLASSO回帰の両方で特定された遺伝子の積集合を、最終的な診断遺伝子シグネチャーとしました。この最終的な診断遺伝子シグネチャーは、ノモグラムベースのモデルを用いて評価しました。すべての特徴量選択およびモデルパラメータ推定は、探索コホート(GSE44270)のみで実施し、構築された6つの遺伝子シグネチャーを独立した検証コホート(GSE7890)でさらに評価しました。ノモグラムの診断性能は、受信者動作特性曲線の下面積(AUC)を算出することで評価しました。モデルの安定性を検討するため、解析には5分割交差検証と1,000回のブートストラップ再サンプリング反復を含め、そこから楽観度補正後のAUCを導出しました。次に、決定曲線分析(DCA)を用いてノモグラムの潜在的な純便益を推定しましたが、この結果についてはサンプルサイズが小さいため慎重に解釈しました。
免疫細胞浸潤および相関分析
免疫細胞の濃縮度は、単一サンプル遺伝子セット濃縮解析(ssGSEA)を用いて評価した(材料表を参照)。免疫細胞シグネチャーマトリックスは、Charoentongらによる既報の研究22から取得し、28種類の獲得免疫および自然免疫細胞集団を代表する782個のマーカー遺伝子を含んでいた。解析は、連続的で正規化されたマイクロアレイの発現値に対し、ガウスカーネルを用いて行った。マーカー遺伝子を発現マトリックスに照合した後、遺伝子セットの最小サイズを10とした。得られたssGSEAスコアは正規化した。その他の設定はすべてデフォルト値とした。その後、免疫細胞濃縮スコアと診断遺伝子発現との関係を評価するため、ピアソン相関係数を算出した。得られた相関マトリックスを相関プロットとして可視化し、選択した関連性をロリポッププロットとしてさらに表示した(材料表を参照)。
単一細胞RNAシーケンシングデータの処理および解析
シングルセルRNAシーケンシングデータはGSE163973から取得し、本解析にはケロイド検体3例(KF1、KF2、KF3)のみを含めた。発現データは以下に述べる手順でインポートおよび処理を行った(参照: 材料一覧表合計ユニーク分子識別子(UMI)カウントが200未満または6,000を超える細胞は除外され、予測されるダブレットも除去された。各細胞の遺伝子発現カウントは、細胞全体の総発現量で正規化し、スケール因子10,000を乗じた後、対数変換を行った。データスケーリング時にバッチに関連する変動を回帰除去し、得られたスケーリング済み残差を下流解析に使用した。平均発現量と分散に基づき、変動性の高い上位2,000個の遺伝子を選択し、それらを用いて主成分分析を行った。最初の15個の主成分を用いて、ユークリッド距離に基づくk-最近傍グラフを構築し、その後、共有最近傍グラフに変換した。Louvainアルゴリズムを用い、解像度0.8で細胞をクラスタリングし、同じ15個の主成分を用いてt-SNE(uniform manifold approximation and projection)を行った。細胞型は、元の研究で報告された細胞型の定義に従ってアノテーションし、得られたアノテーションをメタデータフィールドに記録した。細胞型のアノテーションとクラスター割り当てをt-SNE(uniform manifold approximation and projection)座標上に可視化し、診断的遺伝子の発現をアノテーションされた細胞集団全体にわたって表示した。
miRNA–mRNA調節ネットワークの構築
miRNA–mRNA調節ネットワークは、以下に述べる手順で構築した(材料表を参照)。生物種としてHomo sapiensを選択し、遺伝子識別子にはOfficial Gene Symbolsを用いた。候補遺伝子をGene–miRNA Interactionsモジュールに入力し、相互作用データベースとしてTarBase v9.0を選択した。TarBaseには、実験的に検証されたmiRNA–遺伝子調節相互作用が含まれている。ネットワーク構築には、入力した候補遺伝子に関与し、かつ実験的に裏付けられたmiRNA–mRNA相互作用のみを保持し、実験的根拠のない予測上の相互作用は除外した。信頼性スコアによる追加の閾値設定は行わなかった。
構造ベースのバーチャルスクリーニングおよび分子ドッキング解析
構造ベースバーチャルスクリーニング(SBVS)ワークフローを用いて、化合物ライブラリからヒトFLVCR1(feline leukemia virus subgroup C receptor-related protein 1;Table of Materialsを参照)に対する候補リガンドを優先順位付けするためのバーチャルスクリーニングを実施した。ヒトFLVCR1の三次元構造は、Protein Data Bank(PDB ID: 8UBZ)から取得した。この構造は、単粒子低温電子顕微鏡法により総合解像度3.02 Å(EMDBアクセッション:EMD-42110)で決定された、コリン結合状態のヒトFLVCR1である。実験的に決定されたこの構造を選択したのは、FLVCR1の基質結合コンフォメーションを含んでおり、生理的に重要なリガンド結合ポケットを定義するための構造情報が得られるためである。受容体の調製において、基質進入およびリガンド結合領域周辺の構造環境を維持するため、共結晶構造に含まれていたコリン(CHT)およびコレステロールヘミコハク酸(Y01)分子を保持した。ドッキングの探索空間は、共結晶構造のコリン結合領域を含むFLVCR1の基質/リガンド結合ポケット周辺に定義した。グリッドボックスの中心はx = 160.587 Å、y = 160.613 Å、z = 160.484 Åに設定した。ドッキングボックスの寸法は、基質結合ポケットおよびその周辺残基を十分にカバーするように[X × Y × Z Å]に設定した。その後、候補化合物をこの定義済みの結合領域にドッキングさせた。ドッキングポーズは予測結合親和性に基づいてランク付けし、ドッキングスコアが負に大きいほど、リガンドとFLVCR1の相互作用がより良好であると予測した。上位にランクされた化合物を、その後の結合モードおよびタンパク質-リガンド相互作用解析の対象として選択した。
分子動力学シミュレーションおよびMM/GBSA結合自由エネルギー計算
予測されたタンパク質-リガンド複合体をさらに検討するために、分子動力学(MD)シミュレーションを用いた(材料表を参照)。リガンドのトポロジーは、General Amber Force Field(GAFF)パラメータを割り当て、拘束静電ポテンシャル(RESP)電荷を組み込むことで作成した。複合体はAmber99SB-ILDN力場を用いて記述し、TIP3P水モデルの転移性分子間ポテンシャル内に配置し、3つのNa⁺イオンで中和した。最急降下法によるエネルギー最小化の後、定数粒子数・定積・定温(NVT)アンサンブル下で100 ps、次に定数粒子数・定圧・定温(NPT)アンサンブル下で100 psの平衡化を、各フェーズ100,000ステップで行った。その後、300 K、1 barの条件下で、2 fsの時間ステップを用いて100 nsのプロダクションランを実施した。得られたトラジェトリについて、平均二乗偏差(RMSD)、平均二乗ゆらぎ(RMSF)、回転半径(Rg)、溶媒接触表面積(SASA)、水素結合の持続性、および分子力学/一般化ボルン表面積(MM/GBSA)結合自由エネルギーを解析した。
細胞培養
NHDF正常ヒト真皮線維芽細胞株およびPKF原発性ケロイド線維芽細胞株を、2%胎仔牛血清、リコンビナントヒト塩基性線維芽細胞成長因子(1 ng/mL)、およびインスリン(5 µg/mL)を添加した線維芽細胞増殖培地で培養した。両細胞株は、37 °C、5% CO₂の加湿インキュベーター内で維持し、コンフルエンシーが80–90%に達した時点で継代した。
ウェスタンブロット解析
RIPAバッファー、フェニルメチルスルホニルフルオリド、プロテアーゼ阻害剤カクテル、およびホスファターゼ阻害剤からなる溶解バッファーを用いて、NHDF細胞およびPKF細胞から全タンパク質を単離した。BCA法でタンパク質濃度を測定した後、等量のタンパク質をSDS-PAGE(ドデシル硫酸ナトリウム-ポリアクリルアミドゲル電気泳動)により分離し、PVDF(ポリフッ化ビニリデン)膜に転写した。Tween/Tris緩衝生理食塩水で調製した5%脱脂粉乳を用いて、室温で90分間ブロッキングを行い、その後、FLVCR1(ウサギポリクローナル抗体、1:1,000)およびGAPDH(マウスモノクローナル抗体、1:20,000)に対する一次抗体を用いて4 °Cで一晩反応させた。翌日、二次抗体によるインキュベーションを室温で90分間行った。バンド強度はImageJで測定し、相対的なタンパク質レベルをGAPDH内部コントロールで標準化した。すべてのウェスタンブロット解析において、最低3回の独立した生物学的反復を用いた。
リアルタイム蛍光定量逆転写PCR(qRT-PCR)分析
参照したキットを用いて、NHDF細胞およびPKF細胞から全RNAを調製した。次いで、参照したqPCR用cDNA合成ミックス(dsDNase含有)を用いてcDNAを合成した。qRT-PCRはリアルタイムPCRシステムで実施し、参照したSYBR Green Fast Mixを用いてFLVCR1の発現量を測定した。標準化のための内部参照にはGAPDH mRNAを用いた。すべてのqRT-PCR反応はテクニカルトリプリケートで実施し、相対的なmRNAレベルは2−ΔΔCt法により算出した。各実験は独立して少なくとも3回行い、プライマー配列は付録表S2(Supplemental Table S2)に記載している。
統計解析
群間差はウィルコクソン順位和検定を用いて検証し、値は平均値 ± 標準偏差 (SD) として報告した。連続変数間の関連性はピアソンの相関係数を用いて検討した。P < 0.05 の結果を統計学的に有意であるとみなした。有意水準は、ns: P > 0.05、*: P < 0.05、**: P < 0.01、***: P < 0.001、****: P < 0.0001 と示した。
結果
機械学習アルゴリズムを用いたケロイドの候補診断バイオマーカーのスクリーニング
本研究では、合計283個のヘム代謝関連遺伝子を対象とした。ケロイド組織と正常皮膚組織を比較したGSE44270データセットの差分的発現解析により、25個の有意に差分発現している遺伝子が同定された(図1A および 付録表 S3)。疾患関連バイオマーカーをさらにスクリーニングするため、LASSO回帰を用いて9つの候補遺伝子を同定した(図1B,C および 補足表S3)、一方、ランダムフォレスト(RF)アルゴリズムは、予測重要度の高い11個の遺伝子を選択した(図1D および 付随表 S3LASSOとRFの結果の重複をベン図を用いて可視化したところ、6つのコアバイオマーカーが得られた。それらは以下の通りである。 FLVCR1, TMCC2, EIF2AK1, XK, HPX、および KEL (図 1E および 補足表 S3)。GSE44270コホートにおける受信者動作特性(ROC)解析により、6つすべてのバイオマーカーで良好な診断性能が示され、AUC値はそれぞれ0.8016で、 FLVCR1, 0.7063を TMCC2, 0.7817(~用) EIF2AK1, 0.7460(〜について) XK, 0.7500(〜用) HPX、および0.7857を(使用)して KEL (図1F)。これら6つのバイオマーカーに基づき、その後、Rのrmsパッケージを用いてケロイドの診断ノモグラムを構築した(図1G).
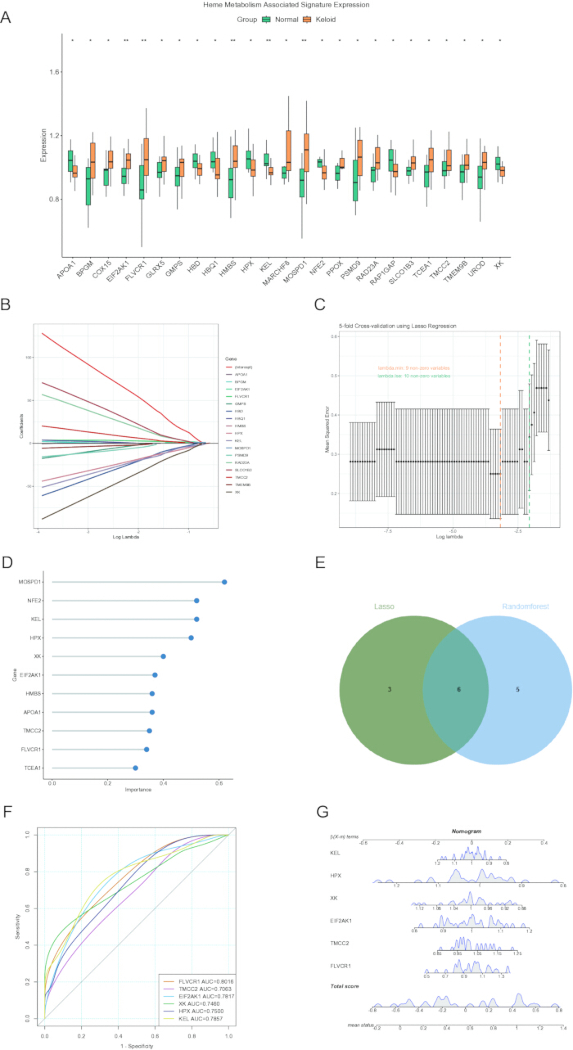
図1: 機械学習アルゴリズムを用いた、ケロイドに関連するヘム代謝関連候補遺伝子の同定 (A) ケロイド組織と正常組織におけるヘム代謝関連遺伝子の発現差を示すボックスプロット。(B, C候補診断マーカーをスクリーニングするためのLASSOロジスティック回帰分析。DRFアルゴリズムによって選出された候補バイオマーカー。E) 2つの機械学習アルゴリズムによって同定された、重複する遺伝子を示すベン図。(F候補バイオマーカーの診断性能を評価したROC曲線分析。G) 6遺伝子シグネチャーに基づくケロイド予測ノモグラム。略語:LASSO、最小絶対収縮選択演算子;RF、ランダムフォレスト;ROC、受信者動作特性。統計的有意性:ns、P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; および ****, P < 0.0001. この図の拡大版を表示するには、ここをクリックしてください。
診断ノモグラムの予測性能を、トレーニングコホート(GSE44270)と検証コホート(GSE7890)の両方で評価しました。本モデルは優れた診断精度を示し、AUC値はそれぞれ0.984(95% CI: 0.950–1.000)および0.922(95% CI: 0.806–1.000)でした(Figure 2A,D)。6遺伝子の診断シグネチャーの堅牢性と潜在的な過学習をさらに評価するため、探索コホート(GSE44270)において追加の内部検証解析を実施しました。5分割交差検証では、サブセット間で一貫した識別性能が示され、平均AUCは0.925となり、トレーニングサンプルの変動にかかわらずモデルが安定した分類性能を維持していることが示されました。さらに、1,000回の再サンプリングによるブートストラップ検証では、平均AUCは0.930(95% CI: 0.794–1.000)となりました。サンプルサイズの制限による潜在的な楽観性を調整した後も、楽観性補正後のAUCは0.930のままであり、この6遺伝子シグネチャーの診断性能は内部検証後も比較的安定していることが示唆されました。さらに、決定曲線分析(DCA)により、本ノモグラムは幅広い閾値確率において、他の診断戦略よりも高い潜在的な正味の利益(net benefit)を示すことが示唆されましたが、サンプルサイズが限られているため、これらの結果は慎重に解釈されるべきです(Figure 2B,E)。加えて、トレーニングコホートと検証コホートの両方において、ケロイド検体は健康対照群よりも有意に高いリスクスコアを示し(Figure 2C,F)、診断モデルの安定性と信頼性がさらに実証されました。
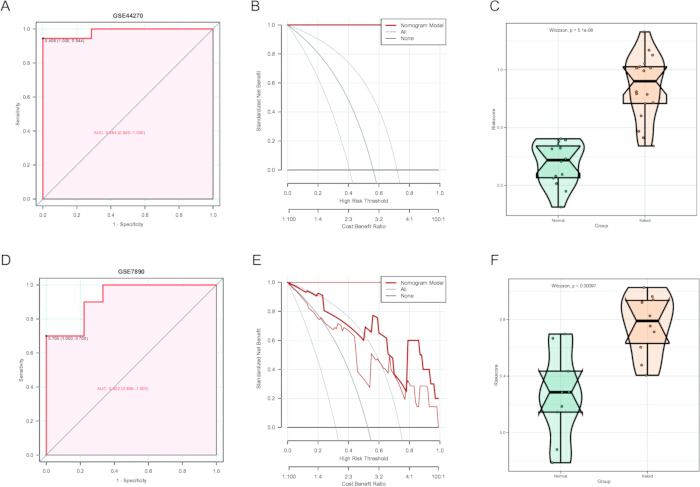
図2: ケロイド予測ノモグラムの検証。(A>) GSE44270データセットにおけるノモグラムの予測性能を評価したROC曲線。(B>) GSE44270におけるノモグラムの臨床的有用性を評価したDCA。(C>) GSE44270におけるケロイドサンプルと正常サンプルのリスクスコア分布の比較。(D>) 独立したGSE7890データセットにおけるノモグラムの予測性能を評価したROC曲線。(E>) GSE7890におけるノモグラムの臨床的有用性を評価したDCA。(F>) GSE7890におけるケロイドサンプルと正常サンプルのリスクスコア分布の比較。略称:ROC = 受信機操作特性曲線、DCA = 決定曲線分析。こちらのリンクをクリックして、この図の拡大版を表示してください。
診断バイオマーカーはケロイドの免疫学的特性に関連している
6つの診断バイオマーカーと免疫微小環境との関係を調べるため、バイオマーカーの発現と免疫細胞浸潤との関連性を評価する相関分析を行った。その結果、6つのバイオマーカーすべてが、複数の浸潤免疫細胞集団と有意に関連していることが明らかになった(図3A)。具体的には、FLVCR1の発現は濾胞性ヘルパーT細胞と負の相関を示した(図3B)。TMCC2は、ナチュラルキラー細胞および活性化樹状細胞と正の相関を示した一方で、未熟樹状細胞および未熟B細胞とは負の相関を示した(図3C–F)。さらに、EIF2AK1の発現はCD56dimナチュラルキラー細胞と負の相関を示し(図3G)、XKは好酸球と負の相関を示した(図3H)。
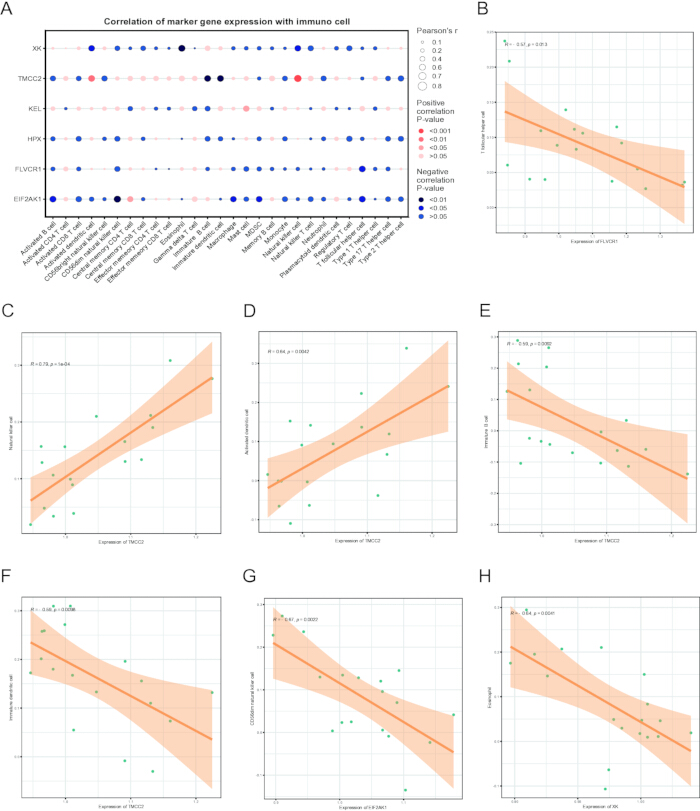
図3候補となるヘム代謝関連遺伝子と免疫細胞浸潤との相関。 (A) 候補遺伝子と免疫細胞集団との相関を示すヒートマップ。赤色は正の相関を、青色は負の相関を示す。 (B)。〜の相関 FLVCR1 発現および濾胞性ヘルパーT細胞。C-F) ~の間の相関 TMCC2 それぞれ、発現およびナチュラルキラー細胞、活性化樹状細胞、未熟樹状細胞、および未熟B細胞。 (G)~との相関関係 EIF2AK1 発現およびCD56dimナチュラルキラー細胞。(H)。〜との相関 XK 発現および好酸球。略語:FLVCR1 = 猫白血病ウイルスサブグループC受容体1、TMCC2 = 膜貫通およびコイルドコイルドメイン2、EIF2AK1 = 真核生物翻訳開始因子2αキナーゼ1、CD56調光 CD56 dim(クラスター分化抗原56 低発現) こちらの図の拡大版を表示するには、ここをクリックしてください。
単一細胞トランスクリプトームデータ解析
ケロイドの微小環境における特定された診断バイオマーカーの発現パターンを特徴づけるため、単一細胞RNAシーケンシングデータセットGSE163973を解析しました。品質管理およびデータ統合の後、ダウンストリーム解析用に21,488個の高品質な細胞を保持しました。総ユニーク分子識別子(UMI)カウントが200未満または6,000以上の細胞は除外され、DoubletDetectionパッケージを用いて潜在的なダブレットを特定し、除去しました。発現変動が最も大きい2,000個の遺伝子を選択し、続いてUniform Manifold Approximation and Projection(UMAP)による次元削減と可視化を行いました。その結果、血管内皮細胞、線維芽細胞、筋線維、角化細胞、免疫細胞、リンパ管内皮細胞、腺細胞、神経細胞、メラノサイト、および未分類の細胞集団を含む、合計10の主要な細胞集団が特定されました(Figure 4A,B)。発現プロファイリングにより、診断バイオマーカーの細胞型特異的な分布パターンが明らかになりました。FLVCR1は主に血管内皮細胞とメラノサイトで発現しており、一方でEIF2AK1は神経細胞、腺細胞、および線維芽細胞で比較的高い発現を示しました。HPXは主にメラノサイトに濃縮されており、KELは腺細胞で優位な発現を示しました(Figure 4C,D)。
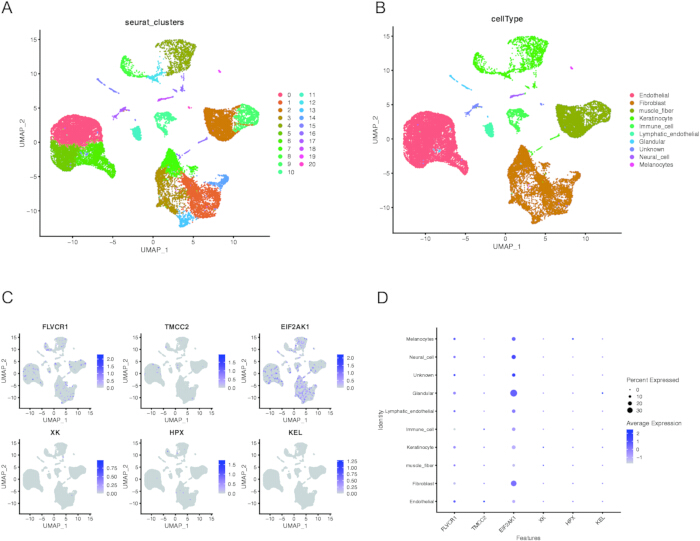
図4: ケロイド単一細胞トランスクリプトームにおけるヘム代謝関連診断バイオマーカーの分布。(A>) ケロイドサンプル由来の21,488個の細胞からなる21の細胞クラスターを示すUMAPプロット。(B>) 原著論文で報告されたアノテーションに基づく細胞型の注釈。(C>) 様々な細胞型におけるヘム代謝関連診断バイオマーカーの発現を示すフィーチャープロット。(D>) 様々な細胞型におけるヘム代謝関連診断バイオマーカーの平均発現レベルおよび発現細胞率を示すバブルプロット。略語:UMAP = uniform manifold approximation and projection。 こちらをクリックして、この図の拡大版を表示してください。
候補診断バイオマーカーの同定および相互作用ネットワーク解析
候補となる診断バイオマーカーの根底にある調節メカニズムを探索するため、miRNA–mRNA調節ネットワークを構築した。予測される相互作用の信頼性を高めるため、候補バイオマーカーを標的とする重複したmiRNAを同定した。その結果、6つの診断バイオマーカーと相互作用する合計282個のmiRNAが得られ、構築された調節ネットワークを図5に示す。特に、hsa-miR-34a-5p、hsa-let-7a-5p、hsa-let-7d-5p、hsa-let-7e-5p、およびhsa-miR-26b-5pは、6つの候補バイオマーカーすべてを同時に調節すると予測された。
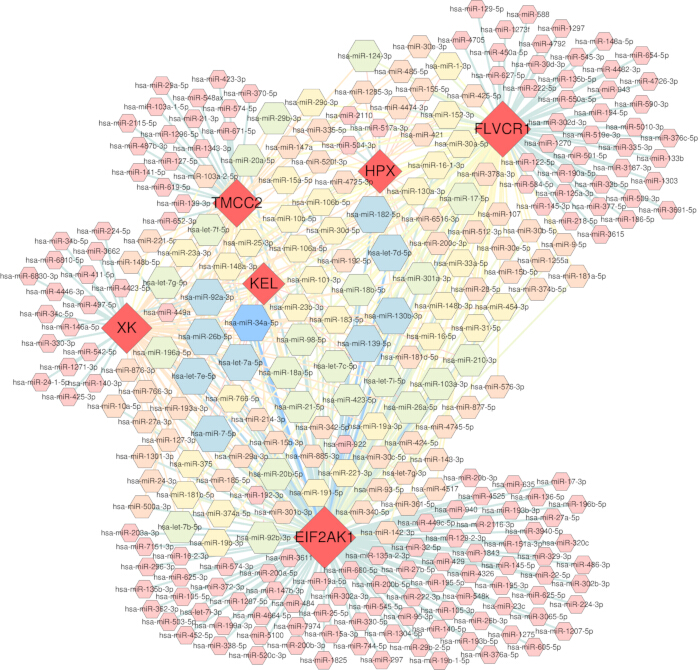
図 5: ヘム代謝関連診断バイオマーカーのmiRNA調節ネットワーク。このネットワークは、6つの診断バイオマーカー遺伝子(FLVCR1、HPX、TMCC2、KEL、XK、およびEIF2AK1)と、それらに関連するmiRNAとの間の調節関係を示している。遺伝子ノードは診断バイオマーカーを表し、周囲のノードはmiRNAを表す。エッジは実験的に裏付けられたmiRNA–mRNA相互作用を示す。略語:FLVCR1 = feline leukemia virus subgroup C receptor 1、HPX = hemopexin、TMCC2 = transmembrane and coiled-coil domains 2、KEL = Kell metallo-endopeptidase、XK = X-linked Kx blood group、EIF2AK1 = eukaryotic translation initiation factor 2 alpha kinase 1、miRNA = microRNA、mRNA = messenger RNA。ここをクリックして、この図の拡大版を表示してください。
FLVCR1発現の実験的検証および潜在的な治療化合物の分子ドッキング解析
バイオインフォマティクスの知見を検証し、同定されたハブ遺伝子の機能的な関連性を確認するために、PKFおよびNHDFにおけるFLVCR1の発現を実験的に評価しました。qRT-PCRおよびウェスタンブロット解析の両方において、正常対照と比較してケロイド線維芽細胞でFLVCR1が有意にアップレギュレートされていることが一貫して示されました(図6A–C、付録図S1および付録表S4)。この細胞発現の上昇は、ケロイドの病態形成にFLVCR1に関連するヘム代謝調節異常が関与している可能性を支持しています。
FLVCR1がヘム代謝に関連する免疫変化に関与している可能性があることから, 次に, この病原性軸を遮断するためにFLVCR1を直接標的とする潜在的な治療化合物を同定することを試みた。中薬(TCM)化合物ライブラリと調製したタンパク質構造を用いて, ハイスループット仮想スクリーニングを実施した。ドッキングスコアが最も良好であった20種類の化合物を, さらなる評価のために選出した(補足表S5)。一般的に、結合エネルギーが低いほど結合親和性が強く、−5 kcal/mol未満のドッキングエネルギーは安定したリガンド・タンパク質相互作用を示すと考えられます。スクリーニングした化合物の中で、(+)-Gallocatechin、(−)-Epicatechin、(−)-Gallocatechin、およびCyanidin (chloride)がFLVCR1に対して良好な結合親和性を示しました。特に、(+)-Gallocatechinは、最も強い相互作用を~に対して示しました。 FLVCR1 GLU214、ASN245、GLN246、およびGLN471と4本の水素結合を形成しており、安定したリガンド–タンパク質結合様式であることが示唆される(図6D–G)。これらの知見は、(+)-ガロカテキンが、~を標的としたメカニズムに基づく治療的介入の有望な候補であることを強調している。 FLVCR1.
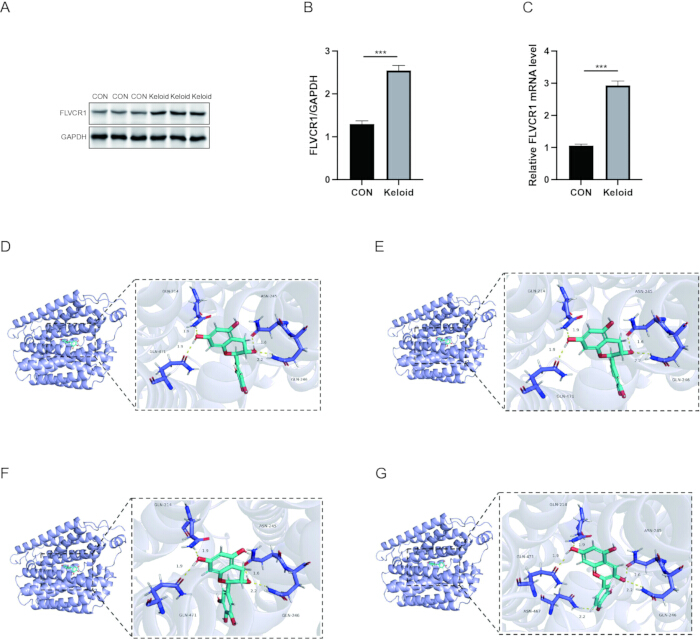
図 6: FLVCR1発現の実験的検証およびFLVCR1を標的とする潜在的化合物の分子ドッキング。(A>) CONおよびケロイドにおけるFLVCR1タンパク質発現を示す代表的なウェスタンブロット画像。GAPDHをローディングコントロールとして用いた。 (B>) GAPDHで標準化したFLVCR1タンパク質レベルの定量。 (C>) CONおよびケロイド線維芽細胞におけるFLVCR1の相対的mRNA発現レベルをqRT-PCRにより測定した。GAPDHを内部標準として用いた。 (D–G>) FLVCR1と選択した低分子化合物との予測結合モードの三次元表現: (D>) (+)-Gallocatechin. (E>) (-)-Epicatechin. (F>) (-)-Gallocatechin. (G>) Cyanidin (Chloride). 略語:FLVCR1 = feline leukemia virus subgroup C receptor 1; CON, コントロール; GAPDH, glyceraldehyde-3-phosphate dehydrogenase; qRT-PCR, 定量的逆転写ポリメラーゼ連鎖反応; SD, 標準偏差。データは平均値 ± SDで表示している。統計的有意差:ns, P > 0.05; *, P < 0.05; **, P < 0.01; ***, P < 0.001; ****, P < 0.0001. こちらのリンクをクリックして、この図の拡大版を表示してください。
分子動力学シミュレーションによるFLVCR1–(+)-Gallocatechin複合体の安定性の確認
予測されたリガンド-タンパク質結合モードの信頼性を検証するため、FLVCR1–(+)-gallocatechin複合体について分子動力学(MD)シミュレーションを実施した。解析では、RMSD、RMSF、回転半径(Rg)、SASA、水素結合解析、およびMM/GBSA計算を用い、複合体が経時的に構造的安定性を維持しているか、およびリガンド結合がタンパク質のコンフォメーション挙動を変化させているかに焦点を当てた。RMSD解析(Figure 7A)では、アポタンパク質とリガンド結合複合体の両方において、最初の20 nsの間で初期変動が見られ、その後緩やかに安定化したことから、シミュレーション中にシステムが平衡状態に達したことが示された。平衡化後、FLVCR1–(+)-Gallocatechin複合体のRMSD値は0.2 nm以下で推移しており、リガンド結合がFLVCR1の構造安定性の維持に寄与していることが示唆された。RMSF解析(Figure 7B)では、ほとんどの残基がシミュレーション全体を通じて限定的な変動を示し、タンパク質の全体的な完全性が保持されていることが示された一方で、いくつかの柔軟な領域はリガンドの収容に関与するループ領域であると考えられる。さらに、安定したRgおよびSASAプロファイル(Figure 7C,D)は、複合体がコンパクトなコンフォメーションを維持しており、明らかな構造的拡張や溶媒露出の変化がないことを示した。水素結合解析(Figure 7E)により、FLVCR1–(+)-Gallocatechin複合体は持続的な分子間相互作用を維持しており、シミュレーション中に約3–4本の水素結合が形成されていたことが明らかになり、リガンド-タンパク質会合の安定性が支持された。さらにMM/GBSA解析により、FLVCR1–(+)-Gallocatechin複合体は良好な結合自由エネルギー(ΔGtotal = −34.87 ± 4.13 kcal/mol)を示した(Supplemental Table S6)。エネルギー分解解析の結果、極性溶媒和エネルギーによる不利な寄与(ΔGsolvation = 25.55 ± 0.74 kcal/mol)があったものの、ファンデルワールス相互作用(ΔVDWAALS = −46.34 ± 2.16 kcal/mol)と静電相互作用(ΔEelec = −14.09 ± 3.45 kcal/mol)が結合に対する主要な正の寄与因子であることが示された(Supplemental Table S6)。以上のMDシミュレーション結果を総合すると、(+)-GallocatechinはFLVCR1と安定な複合体を形成しており、ドッキングで予測された結合モードの信頼性がさらに裏付けられた。
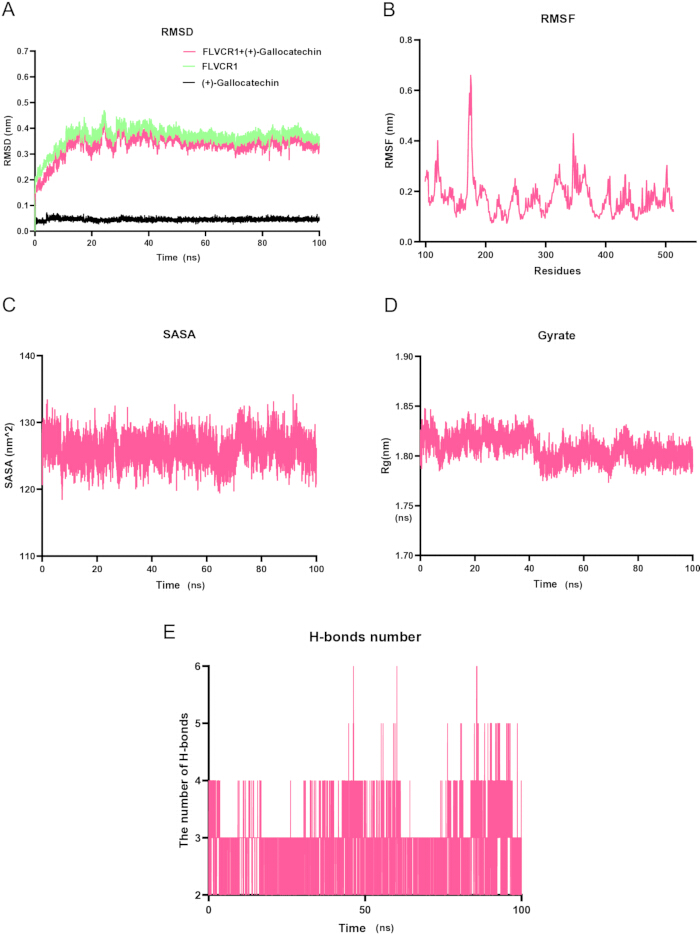
図7: FLVCR1–(+)-Gallocatechin複合体の分子動力学シミュレーション解析。(A) 100 nsの分子動力学シミュレーションにおける、apo FLVCR1およびFLVCR1–(+)-Gallocatechin複合体のRMSDプロファイル。(B) シミュレーション中のFLVCR1の残基レベルの変動を示すRMSFプロファイル。(C) FLVCR1–(+)-Gallocatechin複合体の溶媒接近可能表面積の変化を示すSASAプロファイル。(D) シミュレーション中のFLVCR1–(+)-Gallocatechin複合体のコンパクトさを評価するRgプロファイル。(E) シミュレーション全体を通じたFLVCR1と(+)-Gallocatechinの間の動的な分子間相互作用を示す水素結合解析。略語:FLVCR1 = feline leukemia virus subgroup C receptor 1、RMSD = root mean square deviation、RMSF = root mean square fluctuation、SASA = solvent-accessible surface area、Rg = radius of gyration。こちらのリンクをクリックして、この図の拡大版を表示してください。
データの可用性:
本研究で分析した公開済みのトランスクリプトームデータセットは、Gene Expression Omnibus (GEO) のアクセッション番号 GSE44270、GSE7890、および GSE163973 を 통해アクセス可能です。qRT-PCR 測定値、ウェスタンブロットのオリジナル画像、およびウェスタンブロットの定量データを含む、本研究で生成され実験的検証の根拠となったソースデータは、補足図 S1、補足表 S1、補足表 S2、補足表 S3、および 補足表 S4として提供されています。また、分子ドッキングの結果および MM/GBSA 結合自由エネルギーデータは、補足表 S5および補足表 S6に提供されています。
補足図 S1:ウェスタンブロッティングのオリジナルデータ。こちらのリンクをクリックしてファイルをダウンロードしてください。
補足表 S1:ヘム代謝関連遺伝子こちらのリンクからファイルをダウンロードしてください。
付録表 S2:選択した遺伝子のプライマー配列。こちらのリンクからファイルをダウンロードしてください。
補足表 S3:ケロイドにおける潜在的な診断バイオマーカーを同定するための機械学習アプローチこちらをクリックしてファイルをダウンロードしてください。
付録表 S4:FLVCR1発現の実験的検証を裏付ける生データ。こちらをクリックしてファイルをダウンロードしてください。
補足表 S5:FLVCR1との分子ドッキングにより同定された上位20個の候補化合物。こちらのリンクをクリックしてファイルをダウンロードしてください。
補足表 S6:FLVCR1–(+)-Gallocatechin複合体のMM/GBSA結合自由エネルギー解析。こちらのリンクをクリックしてファイルをダウンロードしてください。
ディスカッション
本研究では、ケロイド形成におけるヘム代謝の調節不全、FLVCR1の発現、および免疫微小環境の変化との間の潜在的な関連性を明らかにしました。バルクおよびシングルセル転写産物解析を統合することで、FLVCR1がヘム輸出不全を病理学的な免疫リプログラミングへと結びつける分子的な結節点であることを確立し、ケロイドを「メタボ・フィブロティック(代謝・線維化)」疾患という新たなスペクトラムの中に位置づけました23,24,25。FLVCR1の潜在的な重要性は、複数の分析レベルにわたる収束的な証拠によって裏付けられています。バルク転写産物解析では、ケロイド組織においてFLVCR1が有意にアップレギュレートされており、強力な診断能を有することが明らかになりました。一方、シングルセル解像度のマッピングにより、その発現は主に血管内皮細胞とメラノサイトに局在していることが分かりました。これら2つの細胞種は、それぞれ異常な血管新生と色素沈着を通じて、ケロイドの病 pathogenesis に深く関与していると考えられています26,27。最も説得力があるのは、FLVCR1の発現が、線維化微小環境においてTh2偏向性の免疫応答とコラーゲン沈着を促進することが認識されつつあるリンパ球サブセットである濾胞性ヘルパーT(Tfh)細胞と強い負の相関を示したことです28。先行研究では、FLVCR1を介したヘム輸出が樹状細胞の成熟および抗原提示に関与していることが示されており29、FLVCR1に関連するヘム恒常性と免疫調節との間に潜在的な関連があることが示唆されています。したがって、観察されたFLVCR1のアップレギュレーションとTfh細胞浸潤との負の相関は、IL-4やIL-13などのTfh関連の前線維化サイトカインが関与する免疫恒常性の変化を反映している可能性があります29,30,31。
さらに、FLVCR1の機能不全に起因する細胞内ヘムの蓄積は、NLRP3インフラマソームを活性化させる可能性が高く、これはヘムがダメージ関連分子パターン(DAMP)として機能し、無菌性炎症を誘発する肝線維症において十分に立証されているメカニズムである32,33,34。このようなインフラマソームの活性化は、IL-1β/IL-18の放出を促進し、TLR4/NF-κBシグナリングを介してM2マクロファージへの極性化を誘導し、酸化ストレスと線維芽細胞活性化の自律的なループを形成すると考えられる35,36。総合すると、これらのデータは、FLVCR1がケロイドにおけるヘム代謝と免疫相互作用の候補バイオマーカーであり、また寄与因子である可能性を支持しているが、提案されたメカニズムのカスケードについては、直接的な機能的検証が必要である。まず、細胞内ヘムの保持が酸化ストレスによる損傷を誘発し、インフラマソームを活性化させ、それが続いて樹状細胞の機能不全を招き、それによって濾胞性ヘルパーT細胞およびTh2型免疫応答への偏りを促進する。この免疫学的偏差がさらにマクロファージのM2表現型への極性化を駆動し、最終的に線維芽細胞の活性化と線維化の進行をもたらすと推察される。
FLVCR1単独の作用にとどまらず、これら6つのバイオマーカーすべての相乗的な調節不全は、複数の調節ノードにわたるヘム恒常性の協調的な崩壊を明らかにしています。活性化樹状細胞と正の相関を示し、未熟なサブセットと負の相関を示すTMCC2は、ヘムストレスの中で免疫能を回復させようとする代償機構を表している可能性があります37,38。ケロイド線維芽細胞および腺細胞に高く発現しているEIF2AK1は、ヘム過剰の直接的な分子センサーとして機能し、eIF2αをリン酸化することでタンパク質合成を全般的に抑制しつつ、ストレス応答遺伝子を選択的にアップレギュレートします39,40,41。これにより、EIF2AK1はヘム蓄積を線維芽細胞の表現型スイッチへと変換する重要な架け橋となり、ケロイド線維芽細胞がアポトーシスに対する高い耐性と過剰なコラーゲン産生を示す理由を説明できる可能性があります42,43,44。主要な血漿ヘムスカベンジャーであるHPXは、メラノサイトにおいて限定的な発現を示しており、色素が豊富なコンパートメント内でヘム毒性を緩衝しようとする細胞自律的な試みであることが示唆されます45,46,47。XKおよびKELの同時的な調節不全は、ケロイドの病態形成における赤血球系ヘム処理機構の関与をさらに裏付けており、この知見は、微小出血を伴う外傷部位にケロイドが頻発する理由を理解する上で興味深い示唆を与えます。これら6つの遺伝子を独立したマーカーとしてではなく、それらの集合的な調節不全を、ヘムのコンパートメント化におけるシステム全体の不全の証拠として解釈します。そこでは、輸送(FLVCR1)、感知(EIF2AK1)、スカベンジング(HPX)、および膜輸送(XK, KEL)の障害が収束し、プロフィブロティックでヘムが豊富な微小環境が形成されていると考えられます。
この代謝-免疫モデルは、説得力のあるエピジェネティックな層によってさらに強化されています。我々は、特定のmiRNA(例:let-7ファミリーおよびmiR-34a-5p)のダウンレギュレーションが、ヘム代謝に関連する経路と線維化経路を同時に脱抑制する可能性のあるceRNAネットワークを同定しましたが、この調節モデルにはさらなる検証が必要です23。シングルセル解析によってもたらされた空間解像度は、このプロセスの根底にある細胞の振る舞いを明らかにし、構造細胞における代謝機能不全がパラクリン的なヘムシグナルを介して免疫細胞が豊富な微小環境を能動的に形成することを実証しており、これにより我々の理解は「バルク組織」の視点から動的な細胞エコシステムモデルへと転換されます48,49,50。内皮細胞におけるヘムの蓄積は、ヘムオキシゲナーゼ-1の誘導と接着分子のアップレギュレーションを通じて、血管漏出と白血球の遊出を促進し、それによってケロイドで観察される免疫細胞が豊富な微小環境を形成する可能性があります51,52,53。同時に、メラノサイトにおけるFLVCR1の発現は、ケロイドの色素沈着という臨床観察と一致しており、色素形成経路と線維化経路の間で共有される代謝的な脆弱性(おそらく酸化ストレス応答によって媒介される)を示唆しています54,55。この空間マッピングにより、我々の理解は「バルク組織」の視点から、構造細胞(内皮細胞、メラノサイト)の代謝機能不全がパラクリン的なヘムシグナルを通じて免疫細胞の挙動を能動的に形作る細胞エコシステムモデルへと転換されます。
トランスレーショナルな視点から、6つのバイオマーカーすべてを統合した我々のノモグラムは、ほぼ完璧な診断精度を達成し、単一のマーカーを大幅に上回る性能を示したほか、決定曲線分析によって明確な臨床的ネットベネフィットが実証されました。さらに踏み込んだ知見として、分子ドッキングにより、緑茶や伝統的な中薬に豊富に含まれる生物活性ポリフェノールである(+)-gallocatechinが、GLU-214、ASN-245、GLN-246、およびGLN-471と安定した水素結合を形成する高親和性のFLVCR1リガンドであることが特定されました。カテキンがケロイド線維芽細胞においてコラーゲン合成を抑制し、transforming growth factor-beta 1の分泌を阻害し、酸化ストレスを軽減させるという先行研究の知見56,57,58があることを踏まえると、この結果は特に説得力のあるものです。我々は、(+)-gallocatechinがFLVCR1のコンフォメーションを安定化させてヘムの輸出能を高め、それによって線維化の代謝的トリガーを根本から遮断するという仮説を立てています。これは、単に下流のコラーゲン産生を抑制する現在の治療法とは根本的に異なる戦略です。このような代謝介入がケロイドの再発に影響を与えるかどうかについては、さらなる実験的および臨床的な検証が必要です。
もちろん、本研究には限界もあります。第一に、解析の大部分が計算上のものであり、FLVCR1の発現と濾胞性ヘルパーT(Tfh)細胞の浸潤との間に観察された関連性は、直接的な因果関係を立証するものではありません。免疫調節におけるFLVCR1の潜在的な役割を明らかにするには、Tfh細胞のフローサイトメトリーによる検証や、ケロイド線維芽細胞におけるFLVCR1のノックダウンまたは過剰発現を用いた機能研究、ならびに線維芽細胞と免疫細胞の相互作用解析や条件付き培地を用いたアッセイが必要です。第二に、サンプルサイズが比較的小さいため、6遺伝子シグネチャーの推定性能に不確実性や楽観的な偏りが生じている可能性があります。内部検証は行われましたが、診断性能とキャリブレーションの信頼性のある評価は依然として限定的です。したがって、この6遺伝子パネルは、より大規模で独立したコホートでのさらなる検証が必要な探索的な分子シグネチャーであると考えるべきです。第三に、患者間の異質性や希少な細胞集団をより正確に捉えるためには、シングルセルデータセットの拡充が必要です。第四に、バイオマーカー発現のタンパク質レベルでの検証および免疫組織化学による空間的局在の特定が行われれば、本知見の臨床的妥当性がさらに強固になります。最後に、分子ドッキングにより(+)-gallocatechinとFLVCR1の結合の可能性が示唆されましたが、臨床応用に至る前に、in vitroでの結合アッセイおよびin vivoでの有効性研究が必要です。これらの限界はあるものの、本研究の結果は、ケロイドにおけるFLVCR1に関連するヘム代謝と免疫変化を結びつける多次元的な枠組みを提供し、さらなる調査のための潜在的な分子バイオマーカーおよび治療候補を特定するものです。
開示事項
著者は宣言すべき利益相反はありません。
著者の寄与
Qiuyan Yangは研究の設計に寄与した。Jianping Zhangはデータ収集に寄与した。Qiuyan YangおよびXiaofang Sunは統計解析に寄与した。Qiuyan YangおよびJing Wangは図の作成および原稿の完成に寄与した。著者全員が原稿の最終版を確認し、承認した。
謝辞
Gene Expression Omnibus (GEO) データベースを通じて、GSE44270、GSE7890、および GSE163973 のデータセットを作成し、公開してくださった研究者の方々に深く感謝いたします。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| AmberTools | アンバープロジェクト | AmberTools | バージョン22;GAFF力場を用いたリガンドパラメータの生成 |
| 抗FLVCR1 | Proteintech | 26841-1-AP | |
| 抗GAPDH | Proteintech | 60004-1-Ig | |
| AutoDock Vina | スクリプス研究所 | https://vina.scripps.edu/ | バージョン 1.2.3;分子ドッキングおよびリガンド結合親和性の予測 |
| AutoDockTools | スクリプス研究所 | AutoDock Suite AutoDock ツールキット AutoDock Suiteは、分子ドッキングのための強力で柔軟なツールセットであり、タンパク質とリガンドの相互作用を予測するために広く利用されています。 AutoDock Vina: AutoDock Vinaは、高度な最適化アルゴリズムとスコアリング関数を用いて、ドッキング速度と精度を大幅に向上させたドッキングプログラムです。 AutoDock-GPU: AutoDock-GPUは、計算をGPUにオフロードすることで、AutoDock 4のドッキング速度を劇的に高速化させた実装です。 AutoDockTools (ADT): AutoDockToolsは、AutoDockおよびAutoDock Vinaで使用する入力ファイルの作成(タンパク質とリガンドの準備、グリッドボックスの設定など)および結果の視覚化を行うためのGUIツールです。 機能: - リガンドおよび受容体タンパク質の準備 - 結合ポケットの定義とグリッドマップの生成 - ドッキングパラメータの設定 - ドッキングポーズの解析と視覚化 インストールとドキュメント: 詳細なインストール手順およびユーザーマニュアルについては、各ツールの専用ページをご参照ください。 | バージョン1.5.6;分子ドッキングのためのリガンドおよび受容体の調製 |
| BCAタンパク質定量キット | Servicebio | G2026 | |
| dsDNase配合qPCR用cDNA合成ミックス | UnionScript | qRT-PCRのための逆転写 | |
| ChemBio3D | PerkinElmer | 研究用製品/ChemDraw | バージョン 14.0;リガンドの3D配座最適化およびエネルギー最小化 |
| 化学発光イメージングシステム | ウェスタンブロットバンドの可視化 | ||
| DoubletDetectionパッケージ | GitHub / JonathanShor | https://github.com/JonathanShor/DoubletDetection | scRNA-seq解析における予測ダブルレットの検出と除去 |
| ECL化学発光基質 | ウェスタンブロット信号検出 | ||
| ウシ胎児血清 | 最終濃度2%;線維芽細胞培養培地用サプリメント | ||
| 線維芽細胞増殖培地 2 | PromoCell | C-23020 | |
| FLVCR1およびGAPDHプライマー | 補足表 S2 | 標的遺伝子および参照遺伝子のqRT-PCR増幅 | |
| ガウス関数 | Gaussian, Inc. | https://gaussian.com/ | Gaussian 16W;リガンドのパラメータ化に向けたRESP原子電荷の算出 |
| ゲル電気泳動装置 | SDS-PAGEタンパク質分離 | ||
| GEOqueryパッケージ | Bioconductor | https://bioconductor.org/packages/GEOquery/ | バージョン 2.68.0; GEOデータベースからの遺伝子発現およびメタデータの取得 |
| ggplot2パッケージ | CRAN | https://cran.r-project.org/package=ggplot2 | バージョン 4.0.2; データの可視化 |
| glmnetパッケージ | CRAN | glmnetパッケージ:LassoおよびElastic Net回帰 | バージョン 4.1.10; LASSO 特徴選択 |
| GROMACS | GROMACS開発チーム | https://www.gromacs.org/ | バージョン 2022.3;分子動力学シミュレーションおよびトラジェトリ解析 |
| GS AntiQ qPCR SYBR Green Fast Mix (Universal) | 遺伝子と | SQ410 | |
| GSE163973 | GEOデータベース | **GEOデータセット** **タイトル:** 肺癌患者における肺組織および末梢血単核細胞の単一細胞RNAシーケンシングによる腫瘍微小環境の解析 **概要:** 本研究では、肺癌患者から採取した肺組織および末梢血単核細胞(PBMC)を用いて単一細胞RNAシーケンシング(scRNA-seq)を行い、腫瘍微小環境における免疫細胞の組成および状態を解析した。 **サンプルの詳細:** * **組織:** 肺組織、末梢血単核細胞(PBMC) * **疾患:** 肺癌 **プラットフォーム:** * **Illumina NovaSeq 6000** **キーワード:** 単一細胞RNAシーケンシング, 肺癌, 腫瘍微小環境, 免疫プロファイリング, 肺組織, 末梢血単核細胞 | 3つのケロイドサンプル;単一細胞発現解析 |
| GSE44270 | GEOデータベース | **GEOデータセット** **タイトル:** ヒト胎盤における胎盤特異的なマイクロRNAのプロファイル **概要:** 本研究では、胎盤特異的なマイクロRNA(miRNA)の同定および特性評価を目的として、正常なヒト胎盤のmiRNAプロファイリングを実施した。次世代シーケンシングを用いてmiRNAの発現を定量的に解析し、胎盤における特異的な発現パターンを持つmiRNAを同定した。これらの結果は、胎盤の発生および機能におけるmiRNAの役割を理解し、潜在的な胎盤特異的バイオマーカーを探索するための基礎データとなる。 **サンプル:** - **サンプル数:** 3 - **生物種:** *Homo sapiens*(ヒト) - **組織:** 胎盤 **プラットフォーム:** - **プラットフォームID:** GPL1261 - **プラットフォームタイトル:** Illumina Human miRNA sequencing **キーワード:** マイクロRNA, 胎盤, 次世代シーケンシング, miRNAプロファイリング, ヒト胎盤, バイオマーカー | ケロイドサンプル18検体および正常サンプル14検体;差分的発現解析およびバイオマーカースクリーニング |
| GSE7890 | GEOデータベース | **GEOデータセット** **タイトル:** 記憶形成における海馬依存的な遺伝子発現の変化 **概要:** 本研究では、記憶の固定化プロセス中に海馬で発生する遺伝子発現の変化を調査した。空間学習課題(モーリス水迷路)を用いて、記憶の形成に関連する遺伝子群を特定し、それらが記憶の保持にどのように寄与するかを解析した。 **サンプル情報:** * **生物種:** *Mus musculus*(マウス) * **組織:** 海馬 * **実験条件:** 対照群(未学習)および学習群(空間学習後) * **プラットフォーム:** Affymetrix Mouse Genome 430 2.0 Array **キーワード:** 記憶形成, 海馬, 遺伝子発現, マイクロアレイ, 空間学習, シナプス可塑性 | 10件のケロイド検体および9件の正常検体;診断バイオマーカーの独立した検証 |
| GSVAパッケージ | Bioconductor | GSVA (遺伝子セット変動解析) | バージョン 1.48.3; ssGSEAに基づく免疫細胞浸潤解析 |
| HRP標識ヤギ抗マウスIgG | Abcam | ab97040 | |
| HRP標識ヤギ抗ウサギIgG | Abcam | ab97051 | |
| 加湿CO22 インキュベーター | 37 °C, 5% CO22NHDFおよびPKF細胞の維持 | ||
| ImageJ | アメリカ国立衛生研究所 | https://imagej.nih.gov/ij/ | ウェスタンブロットのバンド強度の定量化 |
| インスリン | 5 μg/mL 最終濃度;線維芽細胞培養培地用サプリメント | ||
| 分子シグネチャーデータベース (MSigDB) | Broad Institute | GSEA-MSigDB | バージョン 2024.1.Hs;ヘム代謝関連遺伝子セットのソース |
| NetworkAnalyst | NetworkAnalyst | ネットワーク分析ツール | バージョン 3.0;miRNA-mRNA相互作用ネットワークの構築 |
| 正常ヒト真皮線維芽細胞 | Procell | CP-H106 | |
| 脱脂粉乳 | 5%溶液; ウェスタンブロット分析のためのメンブレンブロッキング | ||
| 光学シーリングフィルムまたはキャップ | qRT-PCR反応のシーリング | ||
| リン酸緩衝生理食塩水 | Procell | PB180327 | |
| PDB ID: 8UBZ | RCSB PDB | 構造 ID: 8UBZ タイトル: 哺乳類型サイクリン依存性キナーゼ 2 (CDK2) と CKI-1 の複合体構造 構造の詳細 構造名: 哺乳類型サイクリン依存性キナーゼ 2 (CDK2) と CKI-1 の複合体構造 手法: X線結晶構造解析 解像度: 1.64 Å 生物学的エンティティ: ポリマー 1: 哺乳類型サイクリン依存性キナーゼ 2 (CDK2) ポリマー 2: CKI-1 リガンド: - ADP (アデノシン二リン酸) - MG (マグネシウムイオン) - CL (塩化物イオン) - HOH (水) キーワード: キナーゼ, 細胞周期, サイクリン依存性キナーゼ, 抑制因子, X線結晶構造解析 | ヒトFLVCR1の構造;構造ベースのバーチャルスクリーニングに用いるFLVCR1タンパク質構造のソース |
| ホスファターゼ阻害剤 | タンパク質溶解バッファー用サプリメント | ||
| PKF | Procell | GCP-H235 | |
| PMSF | Servicebio | G2008-1ML | |
| pROCパッケージ | CRAN | pROC パッケージ:ROC 曲線の分析および評価 | バージョン 1.19.0.1; ROC曲線およびAUC解析 |
| プロテアーゼ阻害剤カクテル | Roche | 4693124001 | |
| タンパク質転移装置 | PVDF膜へのタンパク質転写 | ||
| PVDFメンブレン | Millipore | IPVH08100 | |
| PyMOL | シュレーディンガーödinger, LLC | https://pymol.org/ | バージョン 2.6.1;タンパク質-リガンドドッキングポーズおよび分子間相互作用の視覚化と解析 |
| qRT-PCRプレートまたはチューブ | qRT-PCR反応セットアップ | ||
| R | R Foundation for Statistical Computing | https://www.r-project.org/ | バージョン 4.3.1;統計学的およびバイオインフォマティクス解析 |
| randomForestパッケージ | CRAN | randomForest パッケージの R 用実装 | バージョン 4.7.1.2;ランダムフォレストによる特徴量選択 |
| REACTOME_ヘム合成; REACTOME_ヘム分解; WIKIPATHWAYS_ヘム合成; REACTOME_血漿からのヘム回収; HALLMARK_ヘム代謝 | 分子シグネチャーデータベース (MSigDB) | https://www.gsea-msigdb.org/gsea/msigdb | バージョン 2024.1.Hs;マージ後のユニーク遺伝子数 283;ヘム代謝関連遺伝子の定義 |
| リアルタイムPCRシステム | qRT-PCR増幅および検出 | ||
| リコンビナントヒト塩基性線維芽細胞増殖因子 | 最終濃度 1 ng/mL;線維芽細胞培養用培地添加剤 | ||
| RIPAバッファー | Servicebio | G2002 | |
| rmsパッケージ | CRAN | https://cran.r-project.org/package=rms | バージョン 6.7.1; ノモグラムの作成 |
| SDS-PAGE試薬またはプレキャストゲル | SDS-PAGEによるタンパク質分離 | ||
| Seuratパッケージ | CRAN | https://satijalab.org/seurat/ | バージョン 5.4.0; scRNA-seq の前処理、クラスタリング、および可視化 |
| TarBase | DIANAツール | https://carolina.imis.athena-innovation.gr/diana_tools/ | バージョン9.0;実験的に支持されたmiRNA-mRNA相互作用のソース |
| トータルRNAキットII | オメガ | R6934-01 | |
| 伝統中国医学活性化合物ライブラリー | バーチャルスクリーニング用候補化合物のソース | ||
| Tween/Tris緩衝生理食塩水 | ブロッキングバッファーの調製およびメンブレンの洗浄 | ||
| UnionScript qPCR用第一鎖cDNA合成ミックス(dsDNase含有) | 遺伝子と | SR511 |
参考文献
- Dirand Z, et al. Macrophage phenotype is determinant for fibrosis development in keloid disease. Matrix Biol. 2024;128:79-92.
- Fang X, et al. Hypertrophic scarring and keloids: epidemiology, molecular pathogenesis, and therapeutic interventions. MedComm (2020). 2025;6(10):e70381.
- Adler R, et al. Pentoxifylline and long-term risk of keloid formation: a real-world 10-year outcomes study using TriNetX. J Am Acad Dermatol. 2026;94(5):1561-3.
- Banerjee P, et al. Anti-fibrotic properties of a decellularized extracellular matrix scaffold from porcine small intestinal submucosa in normal human and keloid fibroblasts. Int J Mol Sci. 2025;26(24):11764.
- Chang YH, McGrath JA, Hsu CK. Regression of extensive keloids during imatinib therapy for gastrointestinal stromal tumor. JAMA Dermatol. 2025;161(12):1293-4.
- Wang QR, et al. CCL17 drives fibroblast activation in the progression of pulmonary fibrosis by enhancing the TGF-β/Smad signaling. Biochem Pharmacol. 2023;210:115475.
- Higuchi Y, et al. Cavin-2 promotes fibroblast-to-myofibroblast trans-differentiation and aggravates cardiac fibrosis. ESC Heart Fail. 2024;11(1):167-78.
- Zhang H, et al. Plasma apolipoprotein E protein attenuates pulmonary fibrosis through LRP1 and PLAU dual receptor-mediated TGF-β/Smad inhibition. J Adv Res. 2025. doi:10.1016/j.jare.2025.12.045.
- Chen Q, et al. Immune imbalance drives keloid pathogenesis: emerging targets for precision immunotherapy. Adv Wound Care (New Rochelle). 2026:21621918261417702.
- Deng CC, et al. Single-cell RNA-seq reveals immune cell heterogeneity and increased Th17 cells in human fibrotic skin diseases. Front Immunol. 2024;15:1522076.
- Wang Q, et al. Weighted gene co-expression network analysis and machine learning identified the lipid metabolism-related gene LGMN as a novel biomarker for keloid. Exp Dermatol. 2024;33(1):e14974.
- Zhang W, et al. New insights into keloid pathogenesis: biomarker potential for CDK7 and DDB2. Front Cell Dev Biol. 2025;13:1718189.
- Li W, et al. Altered arginine metabolism affects proliferation and radiosensitivity of keloids. Exp Dermatol. 2025;34(3):e70077.
- Jiang J, et al. Ambient fine particulate matter induces cardiac fibrosis through triggering ferroptosis by heme degradation induced-iron overload. Ecotoxicol Environ Saf. 2025;297:118227.
- Lin W, et al. Heme oxygenase-1 overexpression activates the IRF1/DRP1 signaling pathway to promote M2-type polarization of spinal cord microglia. Drug Dev Res. 2024;85(8):e70033.
- Knez J, Kovačič B, Goropevšek A. The role of regulatory T-cells in the development of endometriosis. Hum Reprod. 2024;39(7):1367-80.
- Voltarelli VA, et al. Heme: the lord of the iron ring. Antioxidants (Basel). 2023;12(5):1074.
- Wilks A, Egoshi R. Heme trafficking and the importance of handling nature's most versatile cofactor. Chem Rev. 2025;125(23):11358-78.
- Bertino F, et al. Dysregulation of FLVCR1a-dependent mitochondrial calcium handling in neural progenitors causes congenital hydrocephalus. Cell Rep Med. 2024;5(7):101647.
- Kumar A, et al. Iron regulates the quiescence of naive CD4 T cells by controlling mitochondria and cellular metabolism. Proc Natl Acad Sci U S A. 2024;121(17):e2318420121.
- Jiang H, et al. Gut microbiota dysbiosis in diabetic nephropathy: mechanisms and therapeutic targeting via the gut-kidney axis. Front Endocrinol (Lausanne). 2025;16:1661037.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-62.
- Chen Y, et al. 5-ALA photodynamic metabolite-powered zero-waste ferroptosis amplifier for enhanced hypertrophic scar therapy. Nat Commun. 2025;16(1):8321.
- Li X, et al. Hypericin-mediated photodynamic therapy promotes apoptosis and inhibits fibrosis by inducing HMOX1-mediated ferroptosis in hypertrophic scar fibroblasts. J Photochem Photobiol B. 2025;273:113303.
- Chen Y, et al. Functional transdermal nanoethosomes enhance photodynamic therapy of hypertrophic scars via self-generating oxygen. ACS Appl Mater Interfaces. 2021;13(7):7955-65.
- Oh S, et al. Revealing the pathogenesis of keloids based on the status: active vs inactive. Exp Dermatol. 2024;33(5):e15088.
- Zhao S, et al. New anti-fibrotic strategies for keloids: insights from single-cell multi-omics. Cell Prolif. 2025;58(6):e13818.
- Yasujima T, et al. The role of FLVCR1 and FLVCR2 in choline transport in the Caco-2 intestinal epithelial cell model and rat small intestine. Biochim Biophys Acta Mol Basis Dis. 2025;1871(6):167883.
- Zhang M, Chen H, Qian H, Wang C. Characterization of the skin keloid microenvironment. Cell Commun Signal. 2023;21(1):207.
- Wang Y, et al. FoxC1 activates Notch3 signaling to promote the inflammatory phenotype of keloid fibroblasts and aggravates keloid. Exp Cell Res. 2025;444(2):114402.
- Zhang J, et al. ERG transcriptionally activates SFRP1 to promote apoptosis of keloid fibroblasts and inhibit epithelial-mesenchymal transition and fibrosis through the Wnt3a/β-catenin pathway. Arch Dermatol Res. 2025;317(1):467.
- Ramos-Tovar E, Muriel P. NLRP3 inflammasome in hepatic diseases: a pharmacological target. Biochem Pharmacol. 2023;217:115861.
- Brahadeeswaran S, et al. NLRP3: a new therapeutic target in alcoholic liver disease. Front Immunol. 2023;14:1215333.
- Xiao Y, et al. STING mediates hepatocyte pyroptosis in liver fibrosis by epigenetically activating the NLRP3 inflammasome. Redox Biol. 2023;62:102691.
- Paolucci T, et al. Quantum molecular resonance inhibits NLRP3 inflammasome/nitrosative stress and promotes M1 to M2 macrophage polarization: potential therapeutic effect in osteoarthritis model in vitro. Antioxidants (Basel). 2023;12(7):1358.
- Wei J, et al. FERM domain containing kindlin 1 knockdown attenuates inflammation induced by intracerebral hemorrhage in rats via NLR family pyrin domain containing 3/nuclear factor kappa B pathway. Exp Anim. 2023;72(3):324-35.
- Tao L, Zhou Y, Wu L, Liu J. Comprehensive analysis of sialylation-related genes and construct the prognostic model in sepsis. Sci Rep. 2024;14(1):18110.
- Sun Q, et al. Identification of hub genes and key pathways associated with sepsis progression using weighted gene co-expression network analysis and machine learning. Int J Mol Sci. 2025;26(9):4433.
- Chen JJ. HRI protein kinase in cytoplasmic heme sensing and mitochondrial stress response: relevance to hematological and mitochondrial diseases. J Biol Chem. 2025;301(5):108494.
- Chakrabarty Y, Yang Z, Chen H, Chan DC. The HRI branch of the integrated stress response selectively triggers mitophagy. Mol Cell. 2024;84(6):1090-100.e6.
- Bora P, et al. Drug repurposing screen identifies an HRI activating compound that promotes adaptive mitochondrial remodeling in MFN2-deficient cells. Proc Natl Acad Sci U S A. 2025;122(48):e2517552122.
- Zhang C, et al. CaMKII suppresses proteotoxicity by phosphorylating BAG3 in response to proteasomal dysfunction. EMBO Rep. 2024;25(10):4488-514.
- Chaabani H, et al. Trifloxystrobin induces oxidative stress-dependent activation of the OMA1-DELE1-HRI integrated stress response leading to apoptosis in human neuroblastoma cells. Environ Pollut. 2026;390:127562.
- Das R, et al. CMT2A-linked MFN2 mutation, T206I promotes mitochondrial hyperfusion and predisposes cells towards mitophagy. Mitochondrion. 2024;74:101825.
- De Simone G, et al. Heme scavenging and delivery: the role of human serum albumin. Biomolecules. 2023;13(3):575.
- Turilli-Ghisolfi ES, Lualdi M, Fasano M. Ligand-based regulation of dynamics and reactivity of hemoproteins. Biomolecules. 2023;13(4):683.
- Zhang P, et al. Risk factors and prediction models for cardiotoxicity induced by anthracyclines in malignant chemotherapy. Cancer Chemother Pharmacol. 2025;95(1):73.
- Petrillo S, et al. Endothelial cells require functional FLVCR1a during developmental and adult angiogenesis. Angiogenesis. 2023;26(3):365-84.
- Fiorito V, Tolosano E. Unearthing FLVCR1a: tracing the path to a vital cellular transporter. Cell Mol Life Sci. 2024;81(1):166.
- Manco M, et al. FLVCR1a controls cellular cholesterol levels through the regulation of heme biosynthesis and tricarboxylic acid cycle flux in endothelial cells. Biomolecules. 2024;14(2):149.
- Shi X, et al. Increased melanin induces aberrant keratinocyte-melanocyte-basal-fibroblast cell communication and fibrogenesis by inducing iron overload and ferroptosis resistance in keloids. Cell Commun Signal. 2025;23(1):141.
- Khunger N, Dash A. Impact of air pollution on skin pigmentation: mechanisms and protective strategies. Int J Dermatol. 2025;64(10):1788-801.
- Ahuja K, Raju S, Dahiya S, Motiani RK. ROS and calcium signaling are critical determinant of skin pigmentation. Cell Calcium. 2025;125:102987.
- Dutta A, Chakraborty S, Roy A, Mittal A, et al. Tissue fibrosis in cardiorenal syndrome: crosstalk between heart and kidneys. Nephrol Dial Transplant. 2025;40(7):1273-83.
- Noah AA, et al. Reversal of fibrosis and portal hypertension by empagliflozin treatment of CCl4-induced liver fibrosis: emphasis on gal-1/NRP-1/TGF-β and gal-1/NRP-1/VEGFR2 pathways. Eur J Pharmacol. 2023;959:176066.
- Murakami T, Shigeki S. Pharmacotherapy for keloids and hypertrophic scars. Int J Mol Sci. 2024;25(9):4674.
- Jin J, Zheng Z. Gut microbiota-derived metabolites in keloid and hypertrophic scarring. Front Microbiol. 2025;16:1644758.
- Aubert A, et al. Potential implications of granzyme B in keloids and hypertrophic scars through extracellular matrix remodeling and latent TGF-β activation. Front Immunol. 2024;15:1484462.