糖尿病マウスにおいて、8週間のトレッドミル運動は、心機能、腸管バリア、およびNlrp3に関連する転写変化に加え、腸内細菌叢の変化、特にAkkermansia muciniphilaの増加と関連していた。
この記事について
サマリー
要約
本研究では、糖尿病マウスモデルにおける運動、腸管バリア関連遺伝子の発現、および心臓のNlrp3インフラマソーム関連遺伝子の発現との関連を調査した。高脂肪食と低用量ストレプトゾトシンを用いて雄性C57BL/6Jマウスに代謝調節異常を誘発し、その後8週間のトレッドミル運動(傾斜5°、速度12 m/min、1日20~50分、週5日)を行った。非運動糖尿病マウスと比較して、運動群のマウスでは、空腹時血糖値、インスリン抵抗性、および血清脂質値が低く、結腸のOccludin mRNA発現が高く(相対発現量:糖尿病マウス 0.38 ± 0.04 vs. 運動マウス 0.79 ± 0.05, P < 0.001)、心臓のNlrp3、IL-1β, TNF-α, Col1a1, および Tgfb1 のmRNA発現が低く、Bax/Bcl-2 mRNA比も低かった(3.06 ± 0.19 vs. 1.48 ± 0.10, P < 0.001)。選択した6つの分類群の糞便qPCR解析では、運動によってAkkermansia muciniphila(0.31 ± 0.04から0.84 ± 0.07)およびLactobacillus(0.48 ± 0.05から1.01 ± 0.07)の相対存在量が増加し、Escherichia coli(3.84 ± 0.33から1.68 ± 0.13, P < 0.01)が減少した。運動群のマウスにおいて、A. muciniphilaの存在量は心臓のNlrp3 mRNA発現と負の相関を示した(R = −0.81, P = 0.0046)。これらの相関関係による知見は、糖尿病マウスにおける運動、心臓および腸管の転写変化、および特定の腸内細菌分類群との間の関連性を示すものであるが、因果関係を立証するものではない。すべての分子生物学的知見はmRNAレベルの変化に限定されており、腸管バリア機能、インフラマソームの活性化、心筋線維化、アポトーシス、またはその他の機能的あるいはタンパク質レベルの影響を実証するものではない。
概要
糖尿病は世界的に拡大している健康上の脅威であり、糖尿病による心疾患合併症は、特異的な治療法が限られている深刻な病態である1,2,3,4。運動トレーニングは糖尿病動物モデルにおいて心機能を改善させることができるが5,6、その根底にあるメカニズム、特に腸内細菌叢や腸管バリアが関与する機序については、いまだ十分に解明されていない。
腸内細菌叢は宿主の代謝および免疫を調節している7糖尿病においては、腸内細菌叢の乱れ(ディスバイオーシス)とバリア機能の低下により、リポポリサッカライド(LPS)の移行が増加し、TLR4介在性の炎症が促進され、心筋損傷が悪化する可能性がある。8,9この腸管由来の炎症負荷は、心機能不全を含む糖尿病合併症の進行に寄与している可能性があります。などの有益な細菌は アッカーマンシア および フェカリバクテリウム 減少する可能性がある一方で、〜などの細菌は E. coli 増加する可能性がある10,11このような微生物叢の変化は、局所的な腸管炎症や全身性エンドトキセミアに寄与し、心臓を含む遠隔臓器に影響を及ぼす可能性がある。NLRP3インフラマソームは糖尿病性心疾患における心炎症の重要なメディエーターであり、その活性化は腸内細菌代謝物によって調節される可能性がある。12,13特定の微生物産物、特に短鎖脂肪酸とLPSは、NLRP3のプライミングおよびアセンブリに対して相反する影響を及ぼすことから、腸内微生物環境と心筋の炎症状態との間に潜在的な関連があることが示唆される。
運動は腸内細菌叢を変化させ、腸管バリア機能を改善させることが知られていますが14,15、糖尿病モデルにおける運動、腸管バリア関連遺伝子の発現、および心臓のNLRP3インフラマソーム関連遺伝子の発現の間の関連性は、まだ完全には解明されていません。腸上皮は、管腔内の微生物と全身循環の間のインターフェースとして機能するため、腸内細菌叢の変化と心臓の炎症反応との関連に寄与している可能性があります。しかし、糖尿病モデルにおいて、運動による腸管バリアの変化、NLRP3インフラマソームの活性化、および心保護の間の因果関係を立証する直接的な実験的証拠は依然として不足しています。
したがって、糖尿病マウスにおいて、トレッドミル運動は心臓の転写変化、特定の腸内細菌叢の変動、腸管バリア関連遺伝子の発現維持、および心臓のNLRP3インフラマソーム関連遺伝子の発現低下に関連するという仮説を立てた。高脂肪食と低用量のストレプトゾトシンを用いて糖尿病マウスモデルを構築し、その後8週間のトレッドミル運動介入を行った。評価項目には、代謝パラメータ、結腸のOccludin mRNA発現、心臓のNLRP3インフラマソーム関連遺伝子発現、ならびに炎症、線維化、アポトーシスに関連する遺伝子発現マーカーを含めた。また、運動に伴う腸内細菌叢の変化を評価するため、特定の腸内細菌タクサを定量化した。相関分析を用いて、特定の腸内細菌タクサ、腸管バリア関連遺伝子の発現、および心臓の転写マーカー間の関連性を検討した。これらの分析は、因果関係のある腸管バリア-NLRP3メカニズムを確立することではなく、関連性を特定することを目的として設計された。
プロトコル
すべての動物実験は、国際的な実験動物ケア認定機関によって認定された動物施設で実施されました。プロトコルは、施設の動物実験委員会(IACUC;承認ID:VS212500103)によって審査され、承認されました。本研究の所属機関にはこの特定のモデルに使用できる認可済みの動物施設がなかったため、実験は承認を受けた外部施設で実施されました。
糖尿病マウスモデルの作製
雄のC57BL/6Jマウス(8週齢、SPFグレード、体重20–22 g)を、制御された条件下(22 ± 2 °C、相対湿度50 ± 10%、12時間明暗サイクル)で1週間順化させ、標準飼料と水は自由摂取とした。
順化後、マウスを乱数表を用いて正常対照群(Control, n = 10)または糖尿病誘発群にランダムに割り付けた。実験手順およびアウトカム測定は、群割り付けを伏せた調査員によって実施した。動物は、特定病原体未感染(SPF)条件下で、エンリッチメント用敷材を入れた標準的なポリカーボネートケージに1ケージあたり4匹ずつ収容した。発情周期に伴う潜在的な変動を最小限に抑えるため、また、高脂肪食/STZモデルでは雄においてより一貫した代謝表現型が得られるため、雄のマウスのみを使用した。
糖尿病を誘導するマウスには、高脂肪食(総エネルギーの60%が脂肪)を4週間投与し、続いてストレプトゾトシン(STZ; 30 mg/kg 体重)を5日間連続で腹腔内投与した。STZは0.1 mol/L クエン酸緩衝液(pH 4.5)を用いて調製直前に溶解し、遮光した状態で、調製後15分以内に投与した。対照群のマウスには、同量のクエン酸緩衝液を投与した。最終投与の1週間後、6時間の絶食を経て、尾端血から空腹時血糖値(FBG)を測定した。FBGが11.1 mmol/L以上のマウスを糖尿病と判定した。これらのマウスをさらに4週間高脂肪食で飼育し、糖尿病に伴う遺伝子発現の変化を誘導させた。
計35匹のマウスでモデル誘導を行い、そのうち28匹が糖尿病の基準を満たした。体重と食物摂取量を毎週モニタリングしたが、これらを除外基準としては使用しなかった。モデル作製期間および介入期間中に死亡または除外された動物はいなかった。モデル作製に成功したマウスを、糖尿病群(DM、n = 10)と運動介入群(DM+Ex、n = 10)にランダムに分けた。最終的なサンプルサイズは、すべての解析において1群あたり n = 10 とし、個々のマウスを実験単位とした。
トレッドミル運動介入
DM+Ex群のマウスには、傾斜5°、速度12 m/minの条件下で、週5日、8週間にわたりトレッドミル運動を行わせた。すべての運動セッションは午前9時から11時の間に実施した。介入前に、マウスを傾斜0°、速度6 m/minで1日5分間、3日間トレッドミル走行に慣らした。各運動セッションには、速度6 m/minでの5分間のウォームアップと、速度6 m/minでの5分間のクールダウンを含めた。走行を促すために軽く突き動かす方法は用いたが、電気刺激は使用しなかった。
1日の走行時間は、1週目は20 min、2週目は25 min、3週目は30 min、4週目は35 min、5週目は40 min、6週目は45 min、7〜8週目は50 minとした。ハンドリングおよび環境への曝露を制御するため、対照群およびDMマウスを同時間、停止させたトレッドミル上に配置した。あらかじめ設定した除外基準は、規定されたエクササイズセッションの80%以上を完了できなかったこととした。この基準に該当した動物はおらず、すべての動物が規定のエクササイズセッションを完了し、有害事象は観察されなかった。
サンプルの採取
最終回の運動セッションの12時間後、マウスを6時間絶食させ、イソフルラン吸入(導入3%、維持1.5–2%、100% O₂、1 L/min)により麻酔をかけた。眼窩後静脈叢から約500 µLの血液を採取し、室温で30分間凝固させた後、4 °Cで3,000 × gにて15分間遠心分離した。得られた血清は−80 °Cで保存した。
その後、マウスを深い麻酔下で頸椎脱臼により安楽死させた。心臓を速やかに摘出し、氷冷したリン酸緩衝生理食塩水(PBS)で洗浄した。左心室組織を分離し、一部を液体窒素で急冷凍結してRNA抽出用に−80 °Cで保存し、残りの組織を4%パラホルムアルデヒドで固定した。遠位結腸組織を約1 cm採取し、PBSで洗浄後、急冷凍結して−80 °Cで保存した。ケージによる汚染を最小限に抑えるため、午前9時から10時の間に直腸から新鮮な糞便サンプルを直接採取し、滅菌チューブに移して採取後15分以内に−80 °Cで保存した。
血清生化学的測定
FBGは血糖測定システムを用いて測定した。血清インスリンは酵素結合免疫吸着法により決定し、総コレステロールおよびトリグリセリドは自動生化学分析装置を用いて測定した。インスリン抵抗性は、恒常性評価モデルを用いて算出した:HOMA-IR = FBG (mmol/L) × insulin (mIU/L)/22.5。
心筋組織からのRNA抽出およびリアルタイム定量PCR
約 30 mg の左心室組織をフェノール・グアニジニウムベースの RNA 抽出試薬でホモジナイズし、試薬のプロトコルに従って全 RNA を抽出した。RNA の濃度と純度は分光光度計で評価し、A260/A280 比が 1.8–2.0 の範囲であれば許容範囲とした。全 RNA (1 µg) を相補的 DNA (cDNA) へ逆転写させた。
定量PCR(qPCR)は、蛍光DNA結合qPCRマスターミックス、各0.4 µmol/Lのフォワードおよびリバースプライマー、および2 µLのcDNAテンプレートを含む20 µLの反応液を用いて実施した。増幅条件は、95 °Cで30秒間加熱し、続いて95 °Cで5秒間および60 °Cで34秒間のサイクルを40回繰り返した。増幅の特異性を確認するため、65–95 °Cの範囲で融解曲線分析を行った。すべての反応は2連(duplicate)で実施し、テンプレートなしコントロールおよび逆転写なしコントロールを含めた。すべてのプライマーペアの増幅効率は90–105%の範囲であった。Tnfa、Il1b、Tgfb1、Col1a1、Nlrp3、およびGapdhのプライマーをTable 1に示す。相対的な遺伝子発現量は2−ΔΔCt法を用いて算出し、コントロール群に対する倍率変化(fold change)として的に示した。
糞便微生物叢DNA抽出およびqPCR定量
糞便DNA抽出プロトコルを用いて、糞便検体から全微生物DNAを抽出した。選択した6つの細菌分類群(Faecalibacterium prausnitzii、Akkermansia muciniphila、Lactobacillus属、Bifidobacterium属、Escherichia coli、Desulfovibrio属)の相対存在量は、表1に記載の分類群特異的プライマーを用いたqPCRによって決定した。全細菌存在量の参照用として、ユニバーサル細菌16S rRNAプライマーを使用した。
相対定量値は、全細菌の16S rRNAをリファレンスとした2−ΔΔCt法を用いて算出し、コントロール群に対して正規化しました。増幅効率を確認するため、既知濃度のプラスミドDNAを段階希釈し、各ターゲットの標準曲線を作成しました。すべての反応は、融解曲線分析を行い、2連(duplicate)で実施しました。細菌の分類群によって16S rRNA遺伝子のコピー数が異なるため、結果は絶対コピー数ではなく、2−ΔΔCtによる相対定量値として報告しました。
結腸におけるOccludin発現の評価
前述の方法に従い、約30 mgの結腸組織を用いて全RNA抽出およびcDNA合成を行った。Occludin mRNAの発現量は、以下のプライマーを用いたqPCRにより測定した:フォワード 5′-GTCGAATGTCTTTGCTGGTGGT-3′、リバース 5′-GCAGCAGCCATGTACTCTTCAC-3′。Gapdhを内部標準として用い、2−ΔΔCt法により相対的発現量を算出した。
統計解析
データは平均値 ± 標準偏差 (SD) として提示した。正規性はShapiro-Wilk検定を用いて評価し、分散の均一性はLevene検定を用いて評価した。パラメトリック検定の前提条件を満たす群間データは、一元配置分散分析 (ANOVA) を用いて解析し、その後、事後ペア比較のためにTukeyの正直有意差 (HSD) 検定を行った。2群間の比較には、非対応の2方向Student's t-testを用いた。
変数間の関連性を評価するために、スピアマンの順位相関を用いました。相関ヒートマップについては、実験群を制御した部分スピアマン相関を算出しました。P値は、ベンジャミーニ・ホッホベルグ法(FDR法)を用いて多重比較補正を行い、FDR補正後のP < 0.05を統計的に有意とみなしました。該当する場合、効果量(ANOVAではCohen's f、相関ではr)および主要な平均差の95%信頼区間を報告しました。すべての統計解析は、統計計算ソフトウェア(バージョン4.2.0)を使用して行われました。
結果
トレッドミル運動は、糖尿病マウスにおける代謝異常の改善に関連していた
対照群と比較して、糖尿病マウスでは空腹時血糖値(18.23 ± 0.61 vs. 6.03 ± 0.21 mmol/L, P < 0.001)、血清インスリン値(16.30 ± 1.04 vs. 8.23 ± 0.38 mIU/L, P < 0.001)、HOMA-IR(13.19 ± 1.18 vs. 2.21 ± 0.17, P < 0.001)、総コレステロール値(4.62 ± 0.23 vs. 2.01 ± 0.09 mmol/L, P < 0.001)、および中性脂肪値(2.12 ± 0.15 vs. 0.80 ± 0.08 mmol/L, P < 0.001)が有意に高かった。8週間のトレッドミル運動介入後、これらのパラメータは、糖尿病マウスと比較して、それぞれ 12.03 ± 0.63 mmol/L、10.61 ± 0.71 mIU/L、5.69 ± 0.67、3.09 ± 0.24 mmol/L、および 1.20 ± 0.14 mmol/L に減少した(P < 0.01 または P < 0.001)。しかし、ほとんどの値は対照群よりも高いままであった(Figure 1A–E)。一元配置分散分析(One-way ANOVA)により、すべてのパラメータにおいて有意な群間効果が認められた(すべて F(2,27) > 25.0, P < 0.001)。
運動トレーニングは、結腸におけるOccludin mRNA発現の上昇および心臓におけるインフラマソーム関連遺伝子発現の低下と関連していた
糖尿病マウスでは、結腸のOccludin mRNA発現量は対照群と比較して約62%低かった(0.38 ± 0.04 vs. 1.00 ± 0.06, P < 0.001)。同時に、心臓のNlrp3、Il1b、およびTnfaのmRNA発現量は、対照群の値のそれぞれ5.6倍、6.5倍、5.1倍に増加した(すべて P < 0.001)。運動介入後、Occludin mRNAの発現量は0.79 ± 0.05に増加した(糖尿病マウスと比較して P < 0.001)。一方、Nlrp3、Il1b、およびTnfaのmRNA発現量は、それぞれ2.30 ± 0.21、2.66 ± 0.25、2.14 ± 0.17に減少した(すべて糖尿病マウスと比較して P < 0.001;Figure 2A–D)。
運動は、心筋線維化およびアポトーシスに関連する遺伝子発現の低下と関連していた
糖尿病群では、対照群と比較して、線維化関連遺伝子であるCol1a1(4.46 ± 0.29倍、P < 0.001)およびTgfb1(4.17 ± 0.24倍、P < 0.001)の心臓における発現が増加しており、併せてBax/Bcl2 mRNA比の上昇(3.06 ± 0.19、P < 0.001)が認められた。運動トレーニング後、Col1a1およびTgfb1のmRNA発現は、それぞれ2.02 ± 0.16および1.92 ± 0.16に減少して(ともに糖尿病マウスに対しP < 0.001)、Bax/Bcl2 mRNA比は1.48 ± 0.10に減少した(糖尿病マウスに対しP < 0.001;図 3A–C)。
運動は、糖尿病マウスにおける特定の腸内細菌叢の分類群の変化に関連していた
対照群と比較して、糖尿病マウスでは、選択した4つの細菌分類群の相対存在量が有意に低下していた:F. prausnitzii (0.25 ± 0.03 vs. 1.01 ± 0.07)、A. muciniphila (0.31 ± 0.04 vs. 1.00 ± 0.06)、Lactobacillus (0.48 ± 0.05 vs. 0.99 ± 0.04)、およびBifidobacterium (0.56 ± 0.06 vs. 1.00 ± 0.06; すべて P < 0.001)。対照的に、E. coli (3.84 ± 0.33 vs. 0.99 ± 0.08) および Desulfovibrio (3.07 ± 0.26 vs. 0.99 ± 0.07) の相対存在量は有意に高かった (ともに P < 0.001)。運動介入は、F. prausnitzii、A. muciniphila、Lactobacillus、および Bifidobacterium の相対存在量の有意な上昇に関連しており (P < 0.01 または P < 0.001)、A. muciniphila は 0.84 ± 0.07 に達した。同時に、E. coli および Desulfovibrio の相対存在量は、それぞれ 1.68 ± 0.13 および 1.52 ± 0.08 に減少した (ともに糖尿病マウスに対し P < 0.001; 図 4A–F)。
選択された微生物叢の変化が、心臓および結腸の遺伝子発現と相関していた
特定の微生物分類群の相対存在量と、心臓および結腸組織における遺伝子発現マーカーとの関連性を評価するために、スピアマン相関分析を行った(図 5A)。A. muciniphilaの相対存在量は、心臓のNlrp3 mRNA(R = −0.81, P = 0.0046)およびTnfa mRNA(R = −0.80, P = 0.0054)と負の相関を示した。E. coliの相対存在量は、結腸のOccludin mRNA発現と正の相関を示した(R = 0.66, P = 0.036; 図 5B–D)。これらの結果は、選択した腸内微生物分類群と心臓および結腸の転写マーカーとの間に相関があることを示すものであるが、因果関係を立証するものではない。
データの利用可能性:
本研究で生成および/または解析されたデータセットは、合理的な要求があれば責任著者から入手可能です。
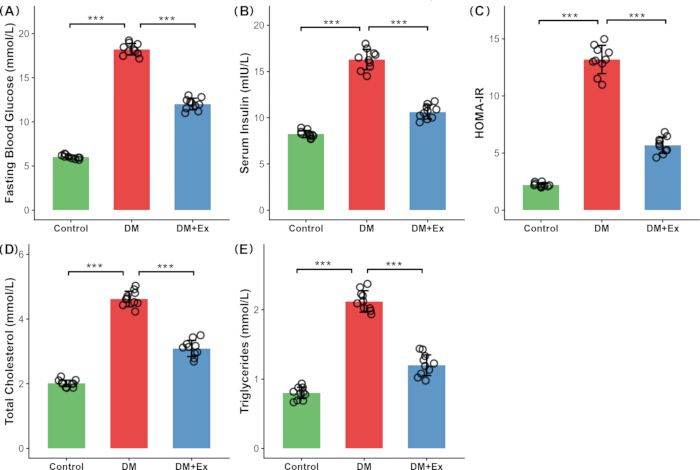
図1: 糖尿病マウスにおける代謝パラメータに対するトレッドミル運動の影響。 (A) 空腹時血糖値。 (B) 血清インスリン。 (C) HOMA-IR。 (D) 総コレステロール。 (E) Control群、DM群、およびDM+Ex群におけるトリグリセリド。データは平均値 ± SD (n = 各群10匹) として示し、各バーに個々のデータ点を重ねて表示している。群間比較は、一元配置分散分析(one-way ANOVA)の後、Tukeyのポストホックテストを用いて行った。*P < 0.05, **P < 0.01, ***P < 0.001; ns = 有意差なし。略称:DM = 糖尿病モデル; Ex = 運動; HOMA-IR = インスリン抵抗性の恒常性評価モデル; SD = 標準偏差。 ここをクリックして、この図の拡大版を表示してください。
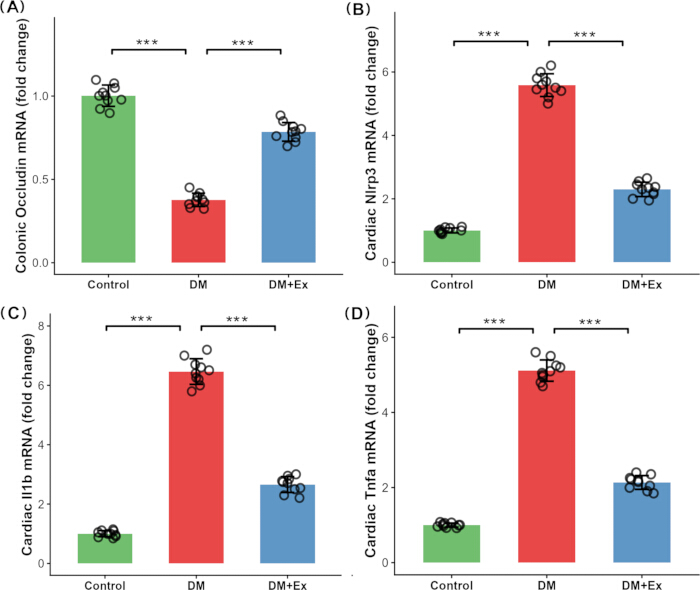
図 2: 糖尿病マウスにおける腸管バリア関連および心臓インフラマソーム関連遺伝子発現に対するトレッドミル運動の影響。 (A) 結腸におけるOccludin mRNAの相対的発現量。 (B) 心臓におけるNlrp3 mRNAの相対的発現量。 (C) 心臓におけるIl1b mRNAの相対的発現量。 (D) 心臓におけるTnfa mRNAの相対的発現量。 遺伝子発現はGapdhで標準化し、コントロール群に対する倍率変化として示した。 データは平均値 ± SD (n = 10/群) で示した。 *P < 0.05, **P < 0.01, ***P < 0.001。 略語:IL-1β = インターロイキン-1β、TNF-α = 腫瘍壊死因子-α、SD = 標準偏差。 こちらのリンクをクリックして、この図の拡大版を表示してください。
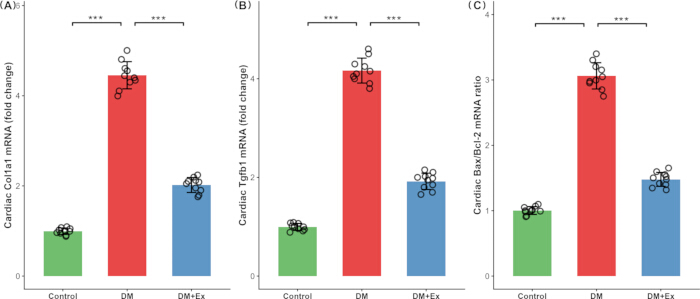
図 3: 糖尿病マウスにおける心筋線維化関連およびアポトーシス関連遺伝子発現に対するトレッドミル運動の影響。 (A) 心臓におけるCol1a1 mRNAの相対的発現量。 (B) 心臓におけるTgfb1 mRNAの相対的発現量。 (C) Bax/Bcl2 mRNA比。遺伝子発現はGapdhで標準化し、Control群に対する fold change として算出した。Bax/Bcl2比は相対的mRNA発現値から算出した。データは平均値 ± SD (n = 各群10) で示し、各バーに個々のデータ点を重ねて表示している。*P < 0.05, **P < 0.01, ***P < 0.001。略語:Col1a1 = collagen type I alpha 1; Tgfb1 = transforming growth factor-β1; Bax = BCL2-associated X protein; Bcl2 = B-cell lymphoma 2; SD = 標準偏差。こちらのリンクをクリックして、この図の拡大版を表示してください。
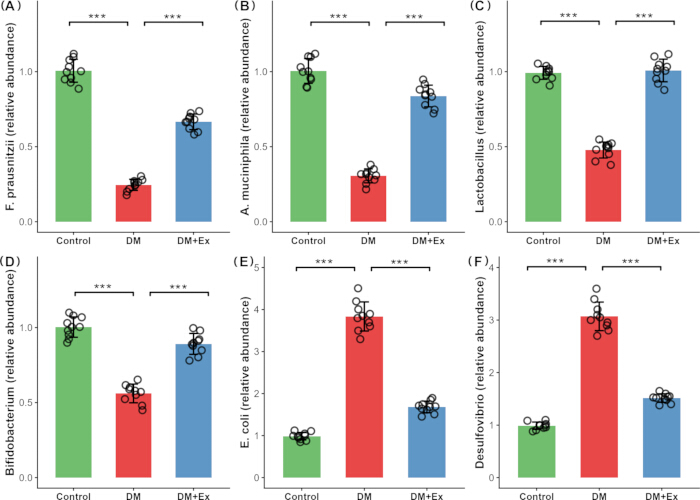
図4糖尿病マウスにおける特定の腸内細菌群の相対存在量に対するトレッドミル運動の影響。 (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) ラクトバチルス. (D) ビフィズス菌. (E) Escherichia coli. (F) デスルフォビブリオ相対的な存在量は、全細菌16S rRNAに対する分類群特異的な16S rRNAターゲットをqPCRで測定し、コントロール群で正規化することで決定した。データは平均値として提示している。 ± 標準偏差 (SD)n = 各群10例)。*P < 0.05, **P < 0.01, ***P < 0.001. 略語:SD = 標準偏差。 この図の拡大版を表示するには、ここをクリックしてください。
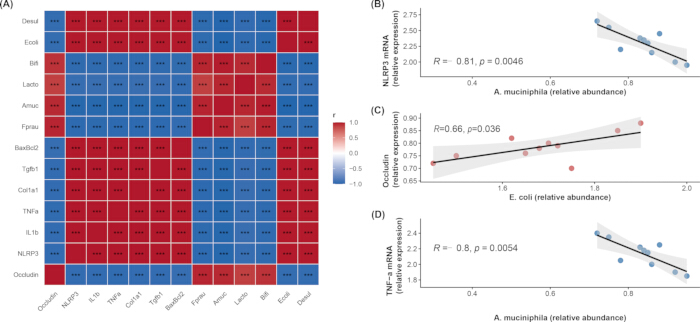
図 5: 選択した腸内細菌群と心臓および結腸の遺伝子発現パラメータとの相関分析。 (A) 選択した細菌群と、結腸の Occludin mRNA、心臓の Nlrp3、Il1b、および Tnfa mRNA、Col1a1 および Tgfb1 mRNA、ならびに Bax/Bcl2 mRNA比との間のスピアマン相関係数を示すヒートマップ。相関は、全3群のデータ(n = 30)を用い、実験群を制御した偏スピアマン相関として算出した。カラースケールは、負の相関を示す青から正の相関を示す赤までの範囲である。ヒートマップ内のアスタリスクは、FDR補正後の有意性を示す(*P < 0.05, **P < 0.01, ***P < 0.001)。(B) DM+Ex群における A. muciniphila の相対存在量と心臓の Nlrp3 mRNA発現との相関。(C) DM+Ex群における E. coli の相対存在量と結腸の Occludin mRNA発現との相関。(D) DM+Ex群における A. muciniphila の相対存在量と心臓の Tnfa mRNA発現との相関。各点は個々のマウスを表す。可視化のため、線形回帰線と95%信頼区間を示している。略語:DM = 糖尿病モデル、Ex = 運動、FDR = 偽発見率。ここをクリックして、この図の拡大版を表示してください。
| 遺伝子/微生物 | フォワードプライマー | リバースプライマー |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| 総細菌数 (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
表1:リアルタイム定量PCRに使用したプライマー配列。
ディスカッション
本研究では、高脂肪食と低用量STZの併用により誘発された糖尿病マウスモデルを用い、運動に伴う代謝、腸管、心臓、および微生物叢の変化を評価した。8週間のトレッドミル運動により、代謝パラメータの改善、結腸におけるOccludin mRNA発現の上昇、心臓におけるNlrp3インフラマソーム関連遺伝子発現の低下、ならびに心筋の炎症、線維化、およびアポトーシス関連遺伝子発現の低下が認められた。また、運動は特定の腸内細菌叢の相対的な存在比の変化とも関連していた。以上の結果から、因果関係は立証されていないものの、運動に伴う心臓の転写変化は、腸管バリア関連遺伝子の発現および特定の腸内細菌叢の変化に関連している可能性が示唆された。
糖尿病モデルで予想される通り、マウスには高血糖、高インスリン血症、インスリン抵抗性、および脂質異常症を含む顕著な代謝異常が現れ、これは確立された病理学的パラダイム16,17と一致していた。8週間の運動レジメンにより、空腹時血糖値が約34%、HOMA-IRが57%減少しており、インスリン抵抗性の部分的な改善が示された。心筋レベルでは、運動によって炎症性(Tnfa, Il1b)、線維化促進性(Tgfb1, Col1a1)、およびアポトーシス関連(Bax/Bcl2)のmRNAマーカーの発現が40%~60%減少した。これは、有酸素運動をAMPK活性化およびNF-κB抑制に関連付けた先行研究18,19と整合している。しかし、これらのパラメータはいずれもコントロール群のレベルまで回復せず、8週間の介入では確立された糖尿病関連の転写表現型を正常化させるには不十分であることが示された。これは、持続的な血糖記憶効果20に関連している可能性がある。
糖尿病マウスでは、結腸のOccludin mRNA発現が約62%低下しており、腸管バリア関連遺伝子の発現が減少していることが示唆された。同時に、心臓のNlrp3、Il1b、およびTnfa mRNA発現は、それぞれ5.6倍、6.5倍、5.1倍に増加した。NLRP3インフラマソームは自然免疫系における重要なセンサーであり、糖尿病性の心臓病理に関与している。高血糖は、活性酸素種(ROS)およびチオレドキシン相互作用タンパク質(TXNIP)経路を介して心筋のNlrp3遺伝子発現を増加させ、その後のIL-1βおよびIL-18に関連する炎症性シグナル伝達に影響を及ぼす可能性がある21,22。また、腸管バリアの破綻に続発するリポ多糖(LPS)の全身性転位の増加も、NLRP3プライミングの上流刺激として報告されている23。LPSはTLR4/MyD88/NF-κBシグナル伝達軸を介してNlrp3およびpro-Il1bの発現を増加させ、インフラマソームのプライミングに必要な第一のシグナルを提供する24。本糖尿病モデルでは、E. coliの相対的な存在量の増加とともに、結腸のOccludin mRNA発現の低下および心臓のインフラマソーム関連遺伝子発現の増加が観察された。これらの並行した変化は、腸管に関連した炎症経路の可能性と整合するが、LPS転位の増加や因果的な腸ー心臓メカニズムを証明するものではない。
運動介入は、結腸のOccludin mRNA発現量を対照群の約79%まで増加させた一方で、心臓のNlrp3、Il1b、およびTnfa mRNA発現量は、対照群の値に対してそれぞれ約2.3倍、2.7倍、2.1倍に減少した。これらの知見は、運動後に腸管バリア関連遺伝子の発現上昇と心臓の炎症性遺伝子の発現低下との間に相関があることを示している。先行研究では、運動が粘液産生の促進、タイトジャンクションタンパク質の調節、および腸管灌流の改善を通じて、腸管バリア機能をサポートする可能性が提案されている25,26,27,28。しかし、本データはmRNAの測定に限定されていたため、これらの機能的なメカニズムを確認するまでには至らなかった。
標的的な腸内細菌叢解析の結果、運動は、選択された分類群の相対存在量における糖尿病関連の変化を部分的に回復させることに関連しており、特にA. muciniphilaの増加とE. coliの減少が認められた。これらの相反する変化は、これらの分類群とバリア維持およびエンドトキシン関連プロセスとの間に以前に報告された関連性と一致している29,30,31。しかしながら、定量化したのは選択された分類群のみであるため、本知見は腸内細菌叢全体の包括的な再構築ではなく、特定の細菌の相対存在量における運動関連の変化として解釈されるべきである。
相関分析により、選択した微生物分類群と転写マーカーとの間の関連性がさらに特定された。運動介入群において、 *A. muciniphila* 存在量は心臓の〜と負の相関を示した Nlrp3 (R = −0.81, P = 0.0046) であり、 TNF-α (R = −0.80, P = 0.0054) のmRNA発現。対照的に、 *E. coli* 豊富さは結腸の~と正の相関があった オクルディン mRNA発現(R = 0.66, P = 0.036; 図5C)。~との正の相関は *E. coli* および オクルディン mRNAは当初の仮説に反しており、選択した腸内微生物タクサと腸管バリア関連遺伝子の発現との関係が、単純な線形モデルでは説明できないことを示している。これらの相関関係は、運動、選択した微生物タクサ、および宿主の転写マーカー間の関連性と一致していたが、因果関係を立証するものではなかった。〜の枯渇が〜であることを示す先行研究のエビデンスによれば、 A. muciniphila 腸管透過性を亢進させ、代謝性エンドトキセミアを誘発する可能性がある32、および糖尿病性心疾患の病理へのNLRP3の関与を示す根拠とともに33、これらの関連性に生物学的な背景を提供している。それにもかかわらず、本研究では、増加したことが直接的に証明されたわけではない。 *A. muciniphila* 粘液バリア機能の増強、LPS移行の減少、またはTLR4/NLRP3介在性心炎症の減弱。
本研究にはいくつかの限界がある。第一に、16Sアンプリコンシーケンシングやメタゲノムシーケンシングではなく、ターゲットを絞った16S rRNA qPCRを用いて6つの代表的な細菌分類群を定量化した。その結果、腸内細菌叢のコミュニティ構造および機能的能率の包括的な評価ができず、より広範なコミュニティの変動や機能的経路を評価することができなかった。したがって、得られた知見は腸内細菌叢のリモデリングではなく、選択した分類群の相対存在量の変化として記述された。第二に、血中LPSレベル、血漿SCFA濃度、および腸管透過性が直接測定されなかったため、メカニズムの解釈が制限された。第三に、本研究は主にmRNA発現データに依存していた。バリア機能の完全性、インフラマソームの活性化、線維化、およびアポトーシスのタンパク質レベルでの検証および機能的検証は行われなかった。したがって、結論は転写レベルの変化に限定され、機能的またはタンパク質レベルの影響を立証するには至らなかった。第四に、検討した運動強度と期間のレジメンが1種類のみであったため、糖尿病に伴う心臓の転写変化に対する最適な運動処方に関する結論を導き出すには限界があった。第五に、雄マウスのみを対象としたため、得られた知見が雌に一般化できるかは不明である。第六に、健康な運動対照群がなかったため、糖尿病特有の反応と運動による生理的影響を区別する能力が制限された。第七に、心エコー検査および心臓組織病理学的検査が行われなかったため、本モデルは糖尿病性心筋症の確定モデルではなく、糖尿病マウスモデルとして記述され、心臓に関するすべての知見は転写レベルの変化に限定された。最後に、一部の観察された相関は、群内の生物学的関係ではなく群間の分離を反映していた可能性があるが、この懸念を軽減するために群を制御した偏相関分析を用いた。
要約すると、糖尿病マウスにおいて8週間のトレッドミル運動は、代謝の改善および心臓と結腸における転写変化に関連していた。これらの変化は、特定の腸内細菌群の相対存在量の変化、特にA. muciniphilaの増加とE. coliの減少に伴って起こった。観察されたこれらの関連性は、運動、特定の腸内細菌群、腸管バリア関連遺伝子の発現、および心臓のインフラマソーム関連転写の間の関係について、さらなる調査を行うことを支持するものである。提案されたメカニズムを検証し、因果関係を確立するためには、より広範なマイクロバイオームプロファイリング、SCFAの定量、腸管透過性アッセイ、およびタンパク質レベルまたは組織学的検証を取り入れた今後の研究が必要となる。観察された関連性が因果経路を反映しているか determine するには、糞便微生物移植、A. muciniphilaの補充、またはNLRP3阻害を用いた追加の介入研究が必要である。
開示事項
著者らは、本論文で報告された研究に影響を及ぼしたと考えられる競合する金銭的利益や個人的関係がないことを宣言します。本原稿および図の作成において、AIツールは使用されていません。
著者貢献:
H.H.およびG.Z.が研究を構想し、計画した。H.H.、G.Z.、およびY.X.が動物実験およびサンプル採取を行った。H.H.およびG.Z.が分子生物学実験を実施し、データを取得した。H.H.およびY.X.が統計解析を行った。H.H.が原稿を起草した。H.W.が重要な知的内容について原稿を批判的に校閲した。著者全員が最終原稿を読み、承認した。
謝辞
本研究は、公的、商業的、または非営利セクターの資金提供機関から特定の助成金を受けていません。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| Accu-Chek 血糖測定器および試験地 | Roche | Accu-Chek Active | 空腹時血糖値の測定に使用 |
| 自動生化学分析装置 | 日立 | 7180 | 血清生化学的測定に使用される |
| C57BL/6Jマウス(雄、8週齢) | 北京維他河実験動物技術有限公司 | SCXK (北京) 2021-0006 | 糖尿病マウスモデルの作製に使用した実験動物 |
| クエン酸緩衝液 (0.1 mol/L, pH 4.5) | Sigma-Aldrich | C8532 | ストレプトゾトシン溶液の調製に使用 |
| マウスインスリン用酵素結合免疫吸着測定法(ELISA)キット | Wuhan HuaMei Biotech | CSB-E05070m | 血清インスリンの測定に使用 |
| 高脂肪食(総エネルギーの60%が脂肪由来) | 研究用飼料 | D12492 | 糖尿病モデルの導入および維持に使用される |
| イソフルラン | RWD Life Science | R510-22-10 | 吸入麻酔に使用される |
| マイクロ遠心機 | Eppendorf | 5424 R | サンプルの遠心分離に使用 |
| NanoDrop 2000 分光光度計 | Thermo Fisher Scientific | ND-2000 | RNAの濃度および純度の評価に使用される |
| パラホルムアルデヒド(4%、PBS中) | Servicebio | G1101 | 組織サンプルの固定に使用される |
| リン酸緩衝生理食塩水 (PBS) | Servicebio | G0002 | 組織サンプルの洗浄およびフラッシングに使用 |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | リアルタイム定量PCRに使用されます |
| PrimeScript RT Reagent Kit (for qPCR) | TaKaRa (タカラバイオ) | RR037A | RNAからcDNAへの逆転写に使用される |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | 糞便サンプルからの微生物DNA抽出に使用 |
| Rソフトウェア | R Foundation | 4.2.0 | 統計解析に使用 |
| リアルタイムPCRシステム (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | リアルタイム定量PCR増幅および検出に使用 |
| ストレプトゾトシン (STZ) | Sigma-Aldrich | S0130 | 高脂肪食と併用し、糖尿病マウスモデルを誘導する |
| 総コレステロール (TC) 測定キット | 南京建誠生物工程研究所 | A111-1 | 血清総コレステロールの測定に使用 |
| トレッドミル(電動式、傾斜制御機能付き) | 中石地創(北京) | ZS-PT-1 | トレッドミル運動介入に使用 |
| トリグリセリド (TG) 定量キット | 南京建城生物工程研究所 | A110-1 | 血清トリグリセリドの測定に使用 |
| TRIzol試薬 | Invitrogen (Thermo Fisher) | 15596018 | 組織試料からの全RNA抽出に使用 |
参考文献
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.