本研究では、電気化学検出器付き高速液体クロマトグラフィー(HPLC-ECD)を用いて、Drosophilaの脳内におけるビオゲン酸アミンを定量するためのプロトコルを記述します。Drosophilaの遺伝的操作の容易さとHPLC-ECDを活用することで、この手法は、脳疾患におけるビオゲン酸アミンの変化の根底にある分子および遺伝的メカニズムを研究者が解明するのに役立ちます。
方法論記事
高速液体クロマトグラフィーを用いた脳疾患Drosophilaモデルにおける生体アミンの変動研究
* These authors contributed equally
この記事について
サマリー
要約
多くの神経精神疾患および神経変性疾患は、脳内神経伝達物質の乱れによって特徴づけられており、これには生体アミン(BA)であるドパミン(DA)およびセロトニン(5-ヒドロキシトリプトファン;5-HT)のレベルの変化や、それらの放出または再取り込みの異常が含まれます。これらの神経化学的変化は、運動機能障害、睡眠の断片化、ストレス反応の変容など、さまざまな主要な行動表現型と相関しています。主要なBA系は相互に作用するため、疾患モデルでは、単一の神経伝達物質の単独の変化よりも、複数のアミンにわたる協調的な変動がしばしば見られます。したがって、行動学的および遺伝学的知見を解釈するには、複数のBAを正確かつ同時に定量することが不可欠です。Drosophila melanogasterは、こうした疾患や神経伝達物質の変化をモデル化するための遺伝学的操作が容易なシステムを提供しますが、ハエの脳組織におけるBAはナノモルからフェモルレベルという極めて低濃度でしか存在せず、またDrosophilaの中枢神経系は非常に小さいため、その検出は技術的に困難です。本研究では、電気化学検出器付き高速液体クロマトグラフィー(HPLC-ECD)を用いて、ハエの脳内のDA、5-HT、およびオクトパミンを検出・定量するプロトコルについて記述します。HPLC-ECDを、ヒトα-シヌクレインのドパミン作動性過剰発現に基づくパーキンソン病のハエモデルに適用し、脳内DAおよび5-HTの変化を検出しました。このプロトコルをα-シヌクレインパーキンソン病モデルに適用したところ、対照群と比較してドパミンは有意に上昇していましたが、セロトニンに変化は見られず、これは初期の代償的なドパミン作動性メカニズムと一致しています。このアプローチは、限定的なDrosophila組織からマルチプレックスなBA定量を行うための、感度が高く低コストで、容易に利用可能な手法を提供します。また、ヒトの脳疾患に関連するモノアミン作動性経路を標的とした遺伝的修飾因子や候補治療薬の系統的なスクリーニングも可能にします。
概要
モノアミン神経伝達物質は、生体アミン(BAs)としても知られており、動機づけ状態、睡眠、学習、記憶、気分調節などを含む(ただしこれらに限定されない)、動物分類群におけるいくつかの主要な神経学的および行動的特性を調節することが知られている。1,2,3,4ドーパミン(DA)やセロトニン(5-ヒドロキシトリプタミン; 5-HT)などのバイオジェニックアミン(BA)の調節不全は、パーキンソン病などの神経変性疾患および統合失調症のような精神疾患に共通する重要な特徴である。3,5しかしながら、疾患の進行と、脳領域およびニューロンサブタイプごとの特定の神経化学的変化との関係については、まだ完全には解明されていません。こうした疑問に答えるには、遺伝的な操作が可能であるだけでなく、疾患に関連する生理学的および行動学的表現型を再現できるモデルシステムが必要です。 キイロショウジョウバエ この目的のための強力なモデルシステムとして台頭している6,7ショウジョウバエは、明確に分画され、十分に特性解析されたドーパミン作動性およびセロトニン作動性ニューロンの集団を有している。7,8、およびこれらのシステムを制御し、哺乳類のものと同等に機能的に保存されている生合成経路、トランスポーター、および受容体ファミリー9このような保存性は、ショウジョウバエにおける神経化学的知見を、人間における疾患というより広範な文脈へと翻訳するための機序的な根拠となる。
神経疾患や精神疾患のモデルとしてのショウジョウバエの有用性は、単なる遺伝的な相同性をはるかに超えています。遺伝的な操作が容易なシステムであるため、ハエにおけるツールを用いることで、遺伝子やパスウェイの細胞特異的なスクリーニングが可能となり、疾患に関連する症状を悪化させる、あるいは回復させる因子を明らかにでき、新たな治療標的の発見を促進します10。さらに、バイナリー発現システムを用いることで、特定のモノアミン作動性ニューロンのサブタイプだけでなく、特定の発生段階のウィンドウを標的にすることができ11、これにより極めて高い空間的および時間的な精度が得られます。また、ショウジョウバエのモデルシステムは、疾患に関連する症状の再現性を評価し、それらを回復させるための介入戦略を試験するための、定量可能な一連の行動レパートリーを提供します7。例えば、ハエにおけるパーキンソン病の確立された遺伝的モデルには、Pink1およびparkinの機能喪失型変異を持つ個体や、野生型または点変異型のヒトα-synuclein (α-syn)、SNCAを過剰発現させたハエが含まれます12,13,14。これらのハエモデルはすべて、運動機能の低下、ドーパミン作動性ニューロンの変性、ミトコンドリア機能不全、およびヒト配列を持つハエにおけるα-synの凝集など、この疾患の最も重要な特徴のいくつかを示します15,16,17,18,19。一方で、神経発達の乱れや異常なドーパミンシグナル伝達も、統合失調症などの疾患の根本的な原因の一つと考えられています20。これと一致して、成体ハエにおける過活動、感覚応答の変化、および覚醒レベルの低下を含む、統合失調症様の症状をモデル化するためにDrosophilaが利用されてきました21,22,23,24,25。総合すると、これらのモデルは、Drosophilaが神経変性疾患の進行と精神疾患の発達的な起源の両方を捉えることができることを示しています。
遺伝的モデルにおける行動変化を神経化学的変化と関連付けるには、BA(生体アミン)の正確で再現性のある定量測定が必要です。また、いくつかの疾患において、モノアミンの調節不全は単一の神経伝達物質系に限定されません。Pink1B9変異ショウジョウバエでは、運動機能障害が出現する前に、セロトニン含量が減少し、セロトニントランスポーターの活性が低下します26。セロトニン作動性シグナリングを早期に薬理学的に救済することで、Pink1B9変異ショウジョウバエにおけるその後の影響を受けたドーパミン作動性ニューロンの喪失を防ぐことができます。したがって、セロトニン系の変化はドーパミン系の病理に先行し、因果的に寄与する可能性があり、これは行動の読み取りや単一のアナライト測定では不可視となる関係性です。同様に、統合失調症のモデルにおいてもセロトニン系の変化が観察されています22,27,28。さらに、Drosophilaにおける主要な生体アミンは、一部は冗長的に、一部は拮抗的に相互作用するため、一つの系の状態で他の系の状態を推測することは困難です29。したがって、これらのモデルにおいて個々のBAを定量化することは極めて重要です。
生体アミンは、生物学的組織中に低ナノモルからフェムトモル濃度の低濃度で存在する電気化学的に活性なモノアミン(例:カテコールアミン、インドールアミン)であり、それらを同時に検出することは技術的に困難である30,31。したがって、疾患におけるBA変化の遺伝学的および分子的な基盤に関する疑問を解決するには、構造が類似した複数のアミンを分離できる分析手法が必要となる。また、この手法は、Drosophilaの中枢神経系標本から得られる少量の組織量において、生物学的に重要な濃度を検出できなければならない。電気化学検出(ECD)を組み合わせた高速液体クロマトグラフィー(HPLC)は、これらの要求を満たす。HPLCは、物理化学的特性に基づいて試料中の異なる分子を分離できる分析手法である。クロマトグラフィーシステムに電気化学検出器を組み合わせることで、生体アミンのような電気化学的に活性な分析物の迅速かつ高感度な分析が可能になる。電気化学検出器は、分析物がカラムから溶出する際に酸化を誘導し、電極表面での相互作用を定量可能な電気信号に変換することで機能する。質量分析などの他の手法でも、同等の選択性と感度が得られる可能性がある32,33。しかし、サンプルあたりのコストが低く、HPLC-ECDの信頼性が高いため、生物学研究室における生体アミンの日常的かつ簡便な検出に最適である。この手法をDrosophilaの遺伝学の強力なツールと組み合わせることで、アミン作動性システムの変化の遺伝学的および分子的な基盤を迅速かつ簡潔に分析することが可能となる。
本研究では、α-synの過剰発現に基づくパーキンソン病の遺伝学モデルを用い、Drosophilaの脳サンプルにおけるBA含量の差を決定するためのプロトコルを提示します。また、本論文では、この手法を用いて脳疾患の分子基盤を研究する方法についても解説します。
プロトコル
本研究で提示された生データは、https://doi.org/10.6084/m9.figshare.33868519 で利用可能です。
使用した試薬および器具は、材料表に記載されています。
1. ショウジョウバエの同調および収集
- 採取前の3日間、25 °Cの一定温度にて、12時間の明期と12時間の暗期からなる一定のサイクルで対象のハエを同調させる。ジェノタイプおよび条件ごとに十分な数のハエを準備するため、5匹ずつで構成される生物学的反復を3~9セット同調させる。
- 採取当日、1.5 mLチューブをドライアイス上に配置する。ハエのジェノタイプまたは条件ごとに1本のチューブを使用する。漏斗を用いてハエをチューブに直接投入し、急速凍結させる。
注:ドライアイス上で直接採取することで、麻酔による潜在的な有害影響を避けつつ、一日の異なる時間帯に採取することが可能になる。この時点で、サンプルは-80 °Cで無期限に保存するか、直ちに処理を行うことができる。時刻による変動という混入変数を避けるため、実験群と対照群は同時に採取すること。本論文の代表的な結果では、点灯から3時間後にハエを採取した。
2. 脳の解剖およびサンプルの調製
- 組織の解剖準備として、ピペットチップボックスの蓋のような高さの低い容器を使用し、氷で満たします。その上に30 mmのペトリ皿を置き、解剖台として使用します。特に暖かい照明を備えた実体顕微鏡を使用する場合、氷の上で組織解剖を行うことで組織の分解を防ぐことができます。
- 皿の上に氷冷した1x リン酸緩衝生理食塩水(PBS)を200 µL滴下し、実体顕微鏡下で、細く鋭いピンセットを用いて各個体を解剖します。
- 脳を解剖するには、一方のピンセットでハエの腹部をつかみ、PBSの滴の中に浸します。ハエを離さずに、頭部と体の接合部をつかんで頭部を取り除きます。
- 体と頭部の両方がPBS上に浮上します。滴から体を取り除いて廃棄します。もう一方のピンセットで頭部の口器をつかみ、PBSの滴の中へ押し戻します。
- 空いている方のピンセットで目の端をつかんで頭部を固定し、口器を取り除きます。
- 口器を取り除いたことで生じた開口部周辺の組織をつかんで引っ張ります。これにより脳が露出します。
- 残った組織が定量に影響を与える可能性があるため、脳を優しく洗浄して頭部の破片を取り除きます。また、サンプルの分解を防ぐため、ドライアイス上のチューブからハエを1匹ずつ取り出してください。
- ピペットチップを使用して、解剖した脳を含む少量の液体を、氷冷した1x PBSが入ったチューブに直接移します。1つの生物学的反復あたり合計5つの脳が集まるまでこの手順を繰り返します。脳がピペットチップに付着するのを防ぐため、あらかじめ解剖プレート上の溶液で数回ピペッティングを行い、チップをコンディショニングしてください。
- 解剖が完了したら、2,000 x gで10秒間の短時間遠心分離を行い、チューブの底に脳を集めます。
- 氷上で、1x PBSを50 µLの0.2 N 過塩素酸(PCA)に慎重に置換します。
注意:PCAは腐食性が非常に強いです。あらかじめドラフトチャンバー内で分注しておき、取り扱い時は適切な個人用保護具を着用してください。これには、耐化学薬品ゴーグル、厚手のネオプレン手袋、およびゴム製エプロンが含まれます。
注:あるいは、脳を直接50 µLの0.2 N PCAに回収することも可能です。その場合は、PBSの不要な混入を避けるため、針を用いて脳を移してください。 - 超音波ホモジナイザーを使用して組織を均質化します。発熱を避けるため、振幅を制御してください。ここでは10 kHzを用い、3秒間の短いパルス照射と3秒間の氷上冷却のサイクルで行います。
- サンプルを15,000 x g、4 °Cで15分間遠心分離します。上清を40 µL採取し、氷上で保存した新しいチューブに入れます。サンプルをPCAに保持することで、BAの酸化を防ぎます。このステップで組織を回収するとシステムが詰まる可能性があるため、避けてください。もし組織が混入した場合はシリンジフィルターを使用できますが、サンプル回収率に悪影響を及ぼします。
- サンプルを分析する直前に、1 M 酢酸ナトリウムを8 µL加えます。これによりサンプルのpHが移動相のpHである3.5に近づき、サンプルが検出器を通過する際のピーク形状が維持されます。これでサンプルの注入準備が完了しました。
3. 移動相の調製
- ガラス瓶に超純水 870 mL を加え、1 L のクエン酸-酢酸移動相を調製します。
- 酢酸ナトリウム三水和物 5.61 g とクエン酸無水物 8.79 g をガラス容器に加え、溶解するまで混合します。pH が 3.5 であることを確認し、異なる場合は適切に調整します。
- ドラフトチャンバー内で、HPLC グレードのメタノール 130 mL を加えます。
- 1-オクタンスルホン酸ナトリウム水和物 130 mg を加え、十分に混合します。
- 1 時間攪拌しながら、0.2 µm フィルターを用いて溶液を真空ろ過します。攪拌により溶液中の捕捉ガスを逃がし、真空ろ過がその脱気とろ過を促進します。
- 超音波バス(42 kHz)で 30 分間ソニケーションを行い、気泡を除去します。
- 容器をアルミホイルで包み、適切にラベルを貼ります。
注: 試薬の品質は保持時間に大きく影響します。HPLC グレードの試薬を使用することで、分析間の整合性を維持できます。また、移動相を再調製する際に同一の試薬を使用することも、結果の再現性を維持するために重要です。
4. 標準物質の調製
- 標準試料を調製するため、OA、DA、5-HTをそれぞれ10 mgずつ、量り紙を用いて個別に計量する。
- 計量した各試料を、個別のストック溶液として調製するため、別々の125 mLガラス瓶に入れる。空の量り紙を再計量し、瓶に入ったOA、DA、または5-HTの正確な量を算出する。
- 分析物の濃度が100 ng/µLになるように加える溶媒量を算出する。10 mgすべてが投入された場合は、溶媒を100 mL使用する。OAおよびDAの溶媒には0.1 M 塩酸を使用し、5-HTには代わりに0.1 M 酢酸を使用する。
- 標準試料に2Na-EDTAを最終濃度1 mg/mLになるように添加する。完全に溶解するまで十分に混合する。遮光のため、ボトルをアルミホイルで包み、4 °Cで保存する。
注:標準試料は、これらの条件下で最大3ヶ月間保存可能である。
5. 検量線用標準溶液の調製
注意:検量線を作成するには、異なる濃度のBAs混合物を用いて3つの標準試料を調製します。本例では、0.03 ng/µL、0.01 ng/µL、および 0.001 ng/µLの作業溶液を使用しています。10 µLを注入することで、それぞれ0.3 ng、0.1 ng、および 0.01 ngの標準量が得られます。
- まず、各100 ng/µLのBAストックを1 µLずつ、97 µLの0.02 M 酢酸-1 mg/mL 2Na-EDTAに加えて、1 ng/µLのストックミックスを調製します。十分に混合してください。
- 1 ng/µLストックを2 µL取り、64.6 µLの0.02 M 酢酸-1 mg/mL 2Na-EDTAに加えます。十分に混合してください。これが0.03 ng/µLの作業溶液になります。
- 1 ng/µLストックを2 µL取り、18 µLの0.02 M 酢酸-1 mg/mL 2Na-EDTAに加えます。十分に混合してください。これが0.1 ng/µLの作業溶液になります。 この溶液は本プロトコルでは注入せず、段階希釈にのみ使用します。
- 0.1 ng/µLストックを4 µL取り、36 µLの0.02 M 酢酸-1 mg/mL 2Na-EDTAに加えます。十分に混合してください。これが0.01 ng/µLの作業溶液になります。
- 最後に、0.01 ng/µLストックを4 µL取り、36 µLの0.02 M 酢酸-1 mg/mL 2Na-EDTAに加えます。十分に混合してください。これが0.001 ng/µLの作業溶液になります。
注: これらの標準液は遮光した容器に保管してください。すべての作業溶液標準液は、その都度調製して使用してください。
6. 注射セットアップおよびラン
注:すべてのHPLCシステムは同一の原理で動作します。しかし、ハードウェアの違いにより、保持時間や分析時間に大きな差が生じることがあります。さらに、ECDの感度によって検出限界も異なります。これらは経験的に定義する必要があります。本研究では、逆相C18カラムを備えた高速液体クロマトグラフィー(HPLC)システムを使用しました。
- ポンプおよび電気化学検出器を含むHPLC装置の電源を入れます。流量を100 µL/minに設定し、電気化学検出器のベースラインが安定するまで待ちます。これには10分から30分かかります。
- サンプルの注入準備が整ったら、流量を500 µL/minに設定します。システムを5分間安定させます。その間に、20 µLのHamiltonシリンジを超純水で3回洗浄します。
- サンプルを10–20 µL、シリンジに吸い込みます。採取量はサンプルループの容量に応じて決定します。詳細はサンプルループのマニュアルを参照してください。
- 注入時にシリンジ内に気泡がないことを確認してください。ガスが混入すると、移動相のポンプ送液やECD測定に影響が出ます。気泡がある場合は、サンプルを戻し、再度シリンジへの充填を試みてください。
- 注入ポートにニードルを完全に挿入します。レバーをロード位置に設定し、シリンジ内の液体がすべて出るまでプランジャーを押し込んでサンプルを注入します。インジェクターのレバーを「注入(inject)」位置に下げます。これで分析が開始され、本条件では30–35分で完了します。
- さらに分析するサンプルがある場合は、次のサンプルを注入する前に、500 µL/minで10–15分間システムを流します。
注意: ECD信号に一定の変動が見られる場合は、システム圧力の変化を確認してください。システム内にガスが滞留していると、不均一な流れや通常より高いバックグラウンドの原因となります。この問題を解決するには、ECDをバイパスし、新しい溶液を用いて高速でシステムをパージしてください。
7. データの抽出および解析
注:この種のデータを収集および解析するためのアナログ-デジタルコンバータやソフトウェアは複数存在します。データ処理の方法は異なる場合がありますが、一般的な原理は共通しています。本研究では、それぞれデータ変換ソフトウェアおよびクロマトグラフィーデータ収集・解析ソフトウェアを使用しました。
- ECDによって捕捉された、BAsの酸化に由来する電流/電圧の変化は、アナログ-デジタル変換器によって変換されます。BA濃度は電流/電圧の変化に比例します。
- BAs標準試料の測定で得られた電流対時間のグラフの曲線下面積を用い、検量線を作成します。値は、電流/電圧 (nA または mV) 対 量 (ng) のグラフにおいて線形回帰で表されます。
- この線形方程式を用いて、サンプル中のBAs濃度を算出します。
結果
生物学的化合物は、それぞれ異なる電位で酸化されます。脳組織のような複雑なマトリックスにおいて、適切なECD電位を選択することで、よりクリーンで正確な定量が可能になります。ここでは、Drosophilaの脳試料におけるOA、DA、および5-HTの同定と定量に対するこの因子の影響を示すために、2つの異なる電圧を選択しました。950 mVを用いることで、混合物中のこれら3つのアミンを容易に検出でき(Figure 1A)、一方で650 mVではドーパミンとセロトニンのみが観察されます(Figure 1B)。これは、これらの化合物の酸化電位(OAは900–1000 mV、DAおよび5-HTは600–700 mV)と一致しています。OA、DA、および5-HTの保持時間は、それぞれ6分、11分、および29分です。0.01 ng、0.1 ng、および0.3 ngの3つの異なる量を定量したところ、950 mVまたは650 mVにおいて同等の検量線が得られました(それぞれFigure 1C,D)。これらの曲線は、各検出電位における試験濃度範囲全体で、各分析物の測定における線形性と感度を示しています。
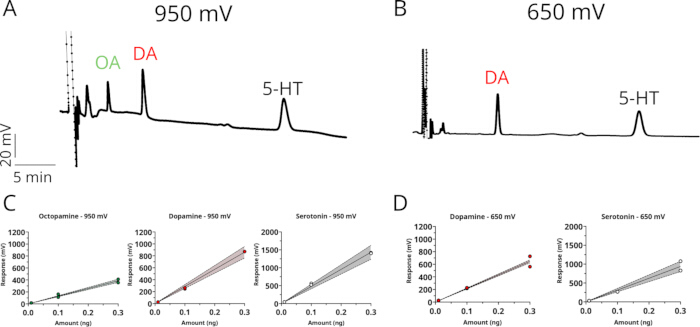
図12つの酸化電位を用いたHPLC-ECDによるビオジェニックアミンの検出および定量. (A, B印加電位(において検出された、オクトパミン(OA)、ドーパミン(DA)、およびセロトニン(5-HT)標準品の分離を示す代表的なクロマトグラム(A) 950 mV または (B)650 mV。縦軸:応答(mV)、横軸:保持時間(目盛り1つあたり5分、スケールバーで表示)。(C,D) 各分析物の検量線(C) 950 mV および (D) 650 mV。ピーク応答(mV)を標準量(ng;0.01–0.3 ng)に対してプロットした。実線は線形回帰近似を、網掛け部分は95%信頼区間を、塗りつぶしおよび白抜きの円は濃度ごとの2回の個別標準注入を表している。 こちらの図の拡大版を表示するには、ここをクリックしてください。
脳抽出物などの複雑な試料は、通常、相当な生物学的バックグラウンドの原因となります。本プロトコルに従い、脳試料中のBAの検出および定量に対する電極電圧の影響を決定することを目的としました。同調後丸2日が経過し、点灯したタイミングで成雄フライを回収し、氷冷PBS中で脳を解剖した後、氷上の0.2 N PCAに投入しました。組織の解離と遠心分離後、上清を1 M 酢酸ナトリウムで平衡化し、10 µLを注入しました。電極電位を950 mVに設定すると、それぞれの保持時間にオクトパミン、ドーパミン、およびセロトニンのピークが現れます(図 2A、黒線)。これらの同定は、各BAの既知量(各0.01 ng)をスパイクした試料を分析することでさらに確認されました(図 2A、赤線)。しかし、目的の分析物の付近に複数の追加ピークが観察され、これが定量を困難にする可能性があります。電極電位を650 mVに設定すると、オクトパミンの検出を犠牲にする代わりに、この問題が解決されます(図 2B)。図 1と同様に、OAはその酸化電位が高いため、650 mVでは分離されません。
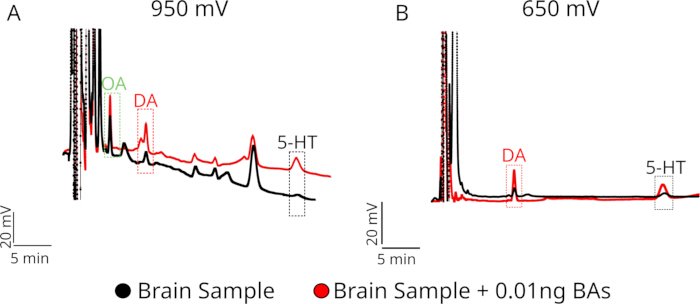
図22つの酸化電位におけるピーク増強(スパイクイン)による脳試料中の内因性生体アミンの同定. (A, B) 適用電位(においてHPLC-ECDで分析した脳組織抽出液の代表的なクロマトグラムA) 950 mV または (B) 650 mV。前に示した(黒色のトレース、 "脳サンプル")および後(赤色のトレース、 "脳試料 + 0.01 ng BAs"既知量(0.01 ng)のオクトパミン(OA)、ドーパミン(DA)、およびセロトニン(5-HT)標準物質によるスパイク。破線枠は各分析物の保持時間ウィンドウを示す。垂直軸:応答(スケールで示される20 mV)、水平軸:保持時間(スケールバーで示される5分)。 この図の拡大版を表示するには、ここをクリックしてください。
同様のプロトコルに従い、パーキンソン病のショウジョウバエモデルである、ドーパミン作動性ニューロンにα-synucleinを発現させたハエ(TH-T2A-GAL4 > UAS-SNCA.J34)の脳におけるバイオジェニックアミン含有量の差を検出するためにHPLC-ECDを用いた。 Pink1遺伝子の変異に基づくPDモデルを用いた先行研究では、0~3日という若齢のハエにおいてドーパミンレベルに差があることが示されている35。本研究では、ドーパミンおよびセロトニンのレベルを比較するために、3~6日齢のハエを使用した。対照群のハエと比較して、PDモデルのハエではドーパミンレベルが有意に上昇していたが(図3A)、セロトニンレベルに変化は見られなかった(図3B)。初期段階におけるドーパミンレベルの上昇は、このモデルにおけるPD症状の発現前における代償機構を反映している可能性がある(Blesa J et al.によるレビュー36)。
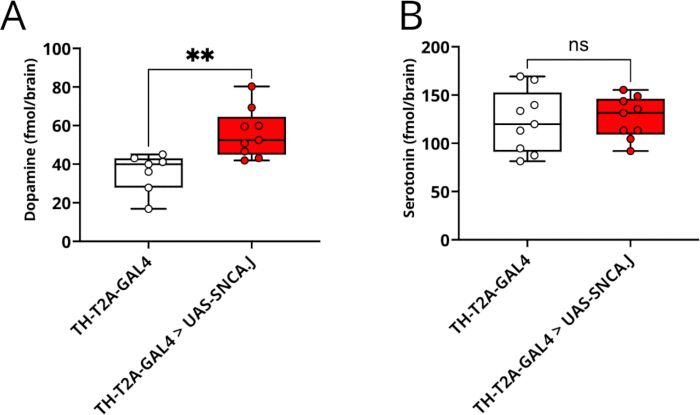
図3: HPLC-ECDによるパーキンソン病Drosophilaモデルにおけるドーパミンおよびセロトニンレベルの定量. 対照群(TH-T2A-GAL4、Aではn = 7、Bではn = 9)およびパーキンソン病モデル群(TH-T2A-GAL4 > UAS-SNCA.J、n = 9)のショウジョウバエにおける、全脳組織のドーパミン(A)およびセロトニン(B)レベル(fmol/brainで表記). このモデルでは、コドン最適化されたヒトα-synuclein配列(SNCA.J)が、TH-T2A-GAL4ドライバーの制御下でドーパミン作動性ニューロンに選択的に過剰発現している. データはボックスひげ図(中央値、四分位範囲、および最小値–最大値)で示されており、個々のデータポイントは、5つの脳をプールした1つの生物学的反復(n)を表している. 統計的有意性は、対応のないt-testによって判定された(**p < 0.01、nsは有意差なし). こちらのリンクをクリックして、この図の拡大版を表示してください。
ディスカッション
HPLCは非常にカスタマイズ性の高い分離技術です。そのため、本プロトコルの多くのステップを変更することができます。信頼性の高い結果を得るには、これらの変更に細心の注意を払い、一貫性を保つことが重要です。固定相と移動相の相対的な極性によって分離モードが定義されます。順相では極性固定相と非極性移動相を組み合わせ、逆相では非極性固定相と極性移動相を組み合わせます。生物学的組織中のバイオジェニックアミン分析には、通常、逆相条件が用いられます。本研究では、メタノールを主溶媒とするクエン酸-酢酸移動相を使用しましたが、溶媒にアセトニトリルを用いたリン酸緩衝液でも同様の測定に成功しています22,26,35。したがって、目的とするピークの分解能や形状に応じて、緩衝液の組成を変更することが可能です。移動相の組成を変更すると、溶出時間が変化する可能性があります37。これによりピークの重なりが生じ、定量が困難または不可能になる場合があります。トラブルシューティングとしては、分析物のカラムとの相互作用はpKaに強く依存するため、pHの変更が最も効果的な解決策となります38。
アミンは酸化分解を起こす可能性があるため、組織の採取と処理がプロトコルにおける重要なポイントとなります。サンプルをドライアイスで回収し、処理まで-80 °Cで保存することが重要な工程です。解剖後、サンプルは酸性条件下で速やかにホモジナイズする必要があります。これにより、BAの分解を防ぐことができます30,39,40。この点において、PCAの入手が困難な場合は、他の酸が有用である可能性があります。また、PCAに代わる非爆発性の酸化剤であるギ酸とメタノールの組み合わせを抽出に使用することも考えられますが、Drosophilaの脳サンプルでは検証していません41。
検出器の選択により、測定可能な対象とその感度が決定されます。一般的な選択肢には、UV/可視光検出器、蛍光検出器、質量分析計などが挙げられ、それぞれ分析物の特性や感度の要件に応じて使い分けられます。電気化学検出(ECD)は、DAや5-HTなどのカテコールアミンやインドールアミンに特に適しており、これらは作用電極で直接酸化され、その濃度に比例した電流を生成します。ECDは、蛍光検出や紫外線検出などの代替検出法と比較して、より簡便で正確な手法であると報告されています。これらの代替法は、サンプル分析までに多くの工程を必要とすることが多く、複雑で時間がかかる場合があります42,43。HPLC-ECDは、生物学的サンプル中の分析物をフェムトモル濃度で検出できるため、極めて優れた感度を備えています44。単一のDrosophilaの脳から得られる組織量はごくわずかであるため、このレベルの感度は不可欠です。重要な点として、HPLC-ECDでは単一のサンプルから複数のバイオジェニックアミンを同時に定量できるため、1回の分析ランでDrosophilaの中枢神経系標本の完全なモノアミンプロファイルを取得することが可能です。
本法には、その適用範囲を規定する固有の限界があります。本法は非常に高感度ですが、DrosophilaサンプルからBAを定量するには、脳をプールして集める必要があります。そのため、他の手法と同様に、単一の脳での検出は報告されていません45。もう一つの欠点は、電極のファウリングです。時間の経過とともに酸化副産物が表面に薄い絶縁層を形成し、感度に影響を与え、信号のドリフトを引き起こすことで、電極のファウリングが発生することがあります46。これは、より高い酸化電圧を用いた際の結果において特に顕著です(Figure 2)。このような変化を考慮するためには、数回のラン後に標準注入を繰り返し行うことが有用です。また、移動相または検出電位に変更を加えた際には、観測されるピークのシフトを補正するために、その都度標準注入を繰り返す必要があります。定期的に電極を洗浄することで、この問題を軽減できます。さらに、HPLC-ECDは、分析に供した組織全体で統合されたアミン含有量のバルクで静的な測定値を提供するという欠点があります。そのため、脳内のどこにそれらのアミンが位置しているか、あるいは特定のニューロン集団の相対的な寄与についての情報は得られません。GABAやグルタミン酸などの非電気活性化合物は、標準的なECD条件下では検出できず、別の分析法が必要です。おそらく最も重要な点は、HPLC-ECDがターゲット分析法であることです。この手法は、既知で十分に特性評価された標準物質と保持時間を比較することに完全に依存しているため、行動表現型と相関している可能性のある未知の分子を特定することはできません。行動の神経化学的相関因子の非ターゲット探索には、コストは高くなりますが、LC-MS/MSなどの手法の方が適しています。
これらの範囲内で、HPLC-ECDは Drosophila の疾患モデルにおける、明確に定義された生物学的に意味のある一連の課題に対処します。本手法により、遺伝子型または処置が定常状態のアミンレベルを変化させるか、またそのような変化が特定の伝達物質系に選択的であるか、あるいはより広範なモノアミンプロファイルに影響を及ぼすかを決定できます。また、発達段階や疾患の進行に伴う神経化学的変化を追跡でき、検出可能な行動表現型に先立つ前症候的な生化学的状態の根拠を提供します47。さらに、薬理学的または遺伝的な介入が、特定のモデルにおけるアミン不足を正常化させるか、過剰に回復させるか、あるいは回復に失敗するかを評価するのにも適しています26。各アミンがどの段階で変動するか、一つの系を修正することが別の系を乱すか、そして発達期の摂動が持続的な神経化学的痕跡を残すかといった問いへの対処こそが、バルクで高感度なマルチアミン分析法の目的です。 Drosophilaで利用可能な行動解析や遺伝学的ツールと併用することで、HPLC-ECDは定量的な生化学的レイヤーを提供し、これらの疾患モデルの解釈範囲を大幅に広げます。
開示事項
著者は利益相反がないことを宣言します。
謝辞
本研究は、米国国立衛生研究所(NIH)の助成金R00NS133470(S.H.)の支援を受けて行われました。内容は著者の責任に帰するものであり、必ずしも米国国立衛生研究所の公式な見解を代表するものではありません。R.V.ZはSubvención a la Instalación en la Academia(SIA)N°85250142の支援を、J.M.Cはチリ国家研究開発庁(Agencia Nacional de Investigación y Desarrollo)のFONDECYT 1231556の支援を受けています。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| (+-) オクトパミン塩酸塩 | Sigma Aldrich | 770-05-8 | |
| 500 mL フィルターユニット | Thermo Scientific | FB12566504 | 0.2 $\mu$m aPESメンブレン、直径75 mm |
| 氷酢酸 | Fisher Scientific | 64-19-7 | |
| クエン酸無水物 | USB | 77-92-9 | |
| Clarity クロマトグラフィーソフトウェア | データアペックス | バージョン 10.1 | |
| Colibrickデータコンバーター | データアペックス | A/Dコンバータ | |
| 塩酸ドーパミン | Sigma Aldrich | 62-31-7 | |
| Dumont #5ピンセット(Dumoxel Biology) | Fine Science Tools | 11252-30 | 解剖用ピンセット |
| EDTA二ナトリウム二水和物、結晶 (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | エイコム | 680.060.00 | 逆相分離カラム |
| EMD Millipore Synergy UV-R 超純水(タイプ1) | Millipore | ||
| Hamiltonシリンジ 25μl (22s/2)"/3) | ハミルトン | 80465 | |
| HTEC-600 | Eicom | HPLC装置 | |
| 塩酸 | Sigma Aldrich | 7647-01-0 | |
| 軽作業用ティッシュワイプ | VWR | 82003-820 | |
| メタノール HPLCグレード | Fisher Scientific | 67-56-1 | 0.2μmフィルター滅菌済み |
| 過塩素酸、70%水溶液 | Fisher Scientific | AC424032500 | 0.2 N PCAに使用すること |
| セロトニン塩酸塩 98% | Fisher Scientific | 153-98-0 | |
| 1-オクタンスルホン酸ナトリウム水和物, HPLCグレード, 99%以上 | Thermo Scientific | 5324-84-5 | |
| 酢酸ナトリウム三水和物, 結晶 | J.T Baker | 6131-90-4 | |
| Bransonic 超音波洗浄機 Sonicator 1510 | Branson | モデル番号:1510R-MT | ソニケーター |
| 超音波プロセッサー(ソニケーター) | Fisherbrand | モデル FB50 | CL18プローブを用いて |
参考文献
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
再版と許可
この記事は公開されました
動画は近日公開