このプロトコルは、蛍光微小管マーカーを用いてDrosophila幼虫の感覚ニューロンにおける微小管ダイナミクスのライブ共焦点イメージングを行うためのガイドを提供します。
方法論記事
微小管ダイナミクスのイメージング インビボ(生体内) in ショウジョウバエ 感覚樹状突起
* These authors contributed equally
この記事について
サマリー
要約
Drosophila幼虫のクラスIV感覚ニューロンはクチクラの直下に位置し、幼虫の成長に伴い2次元的に等方的に拡大する高度に分枝した樹状突起によって特徴づけられます。これらの樹状突起の成長は、樹状突起末端チップの伸長、収縮、および停止を含む確率的なプロセスによって駆動されます。チップのダイナミクスが微小管のダイナミクスによって駆動されるという仮説を検証するために、樹状突起内の蛍光標識微小管をイメージングするためのプロトコルが開発されました。本手法では、共焦点顕微鏡を用いて、クラスIV感覚ニューロンの微細な末端樹状突起における微小管ダイナミクスの可視化が可能です。本法は、膜マーカーと共に微小管を可視化しつつ、イメージング中に樹状突起の形態を維持するように設計されています。本稿では、ライブイメージングに向けたDrosophila幼虫の調製手順と、樹状突起における蛍光標識微小管の可視化手順について記述します。したがって、本プロトコルは、膜の共標識との互換性を維持しながら、微細な末端樹状突起における微小管の挙動を調べるためのアプローチを提供するものです。
概要
ニューロンは高度に極性化した細胞であり、その細胞骨格が細胞の構造を規定しています。ニューロン細胞骨格の構成要素の一つである微小管は、構造的な支持を提供し、長距離の貨物輸送のためのレールとして機能します1,2。微小管細胞骨格は樹状突起の発達に不可欠です3。樹状突起は、分枝、伸長、および収縮というプロセスを通じて確率的に成長します4。Drosophila幼虫の樹状突起分枝(da)ニューロンは、樹状突起の形態形成を研究するための強力なin vivoモデルシステムです。これらの感覚ニューロンは、樹状突起の複雑さの増大に基づいて4つのクラス(I~IV)に分類されます3,5。クラスIVのdaニューロンは、複雑で高度に分枝した樹状突起を持ち、マルチモーダルな痛覚受容体として機能します6,7,8。これらのニューロンの樹状突起は、腹部節に沿って定型的な受容野を形成し、透明なクチクラの直下に位置しています9,10。この解剖学的特徴とDrosophilaの遺伝学的な扱いやすさにより、クラスIVのdaニューロンは、高い空間的および時間的分解能で樹状突起の発達をin vivoで可視化するのに適したシステムとなります。発達過程で樹状突起が成長する際、その先端は成長、収縮、および停止の状態間を確率的に遷移します11。先端の成長と収縮は、微小管の成長と収縮と多くの速度論的な類似性を共有しています12。したがって、これらの細胞における微小管ダイナミクスの可視化は非常に重要です。
Drosophila幼虫を含む生細胞内で微小管ダイナミクスを可視化するための一般的な手法は、EB1やEB3などの蛍光標識された末端結合タンパク質をイメージングすることです13,14,15,16,17,18。しかし、EB-GFPシグナルの解釈は曖昧になる場合があります。例えば、細胞体から離れる方向へ遠位に移動するEB-GFPの点状構造(punctum)は、外側へ伸長する微小管のプラス端である可能性もあれば、遠位方向にスライドしている微小管の内側へ伸長するプラス端である可能性もあります。EB-GFPは主に伸長中の微小管のプラス端を標識しますが、伸長中のマイナス端を標識することもあり19、これがさらなる曖昧さを招きます。微小管を直接可視化することで、これらの曖昧さを軽減できます。
代替アプローチ EB-GFPに対する手法は、GFP-tubulinを用いた微小管の直接標識である。20,21しかし、蛍光標識ツブリンによって近位樹状突起が強力に標識される。22しかし、遠位樹状突起を標識することはできない。23蛍光標識したチューブリンを用いる際、もう一つの困難な点は、可溶性チューブリンの濃度が高いため、終末樹状突起のような細い突起において個々の微小管を区別することが困難であることです。したがって、通常の生理的条件下にある生存ニューロンにおいて微小管のダイナミクスをイメージングすることは、依然として困難な課題となっています。
The ショウジョウバエ 哺乳類のTau、MAP2、およびMAP4の構造ホモログである微小管結合タンパク質(MAP)Jupiterは、 〜における微小管の標識に使用される ショウジョウバエ 卵巣および胚を含む組織24クラスIV樹状突起において、近位分枝の微小管を定量化するためにmCherry-JupiterおよびsfGFP-Jupiterが用いられてきた。22,25,26本プロトコルでは、遠位樹状突起におけるニューロンの微小管挙動を高解像度でタイムラプス観察することを可能にするライブイメージング法について解説します。 ショウジョウバエ Jupiterの蛍光標識されたチューブリン結合ドメインを発現するショウジョウバエ系統を用いたクラスIVニューロン。
プロトコル
本研究では、施設による動物倫理委員会の承認を必要としない無脊椎動物モデルであるDrosophila melanogasterを使用しました。本プロトコルで使用したツールは、材料表に記載されています。
1. 実験用ショウジョウバエ系統の作製
- 目的の親系統を得るために交配を行う。GAL4/UASバイナリーシステムを用いて、GAL4を発現するクラスIV樹状突起分枝(da)ニューロンにおいてmNeonGreen (mNG)-Jupiterを発現させる。 ppk プロモーター
- ホモ接合型のUAS-mNG-Jupiter系統の処女雌と、ホモ接合型の雄を交配させる ppk-GAL4; CD4tdTomatoライン。両方を保持するF1子代を得る。 ppk-GAL4; CD4tdTomato および UAS-mNG-Jupiter。
注: 両方を保持するF1子代 ppk-GAL4; CD4tdTomato および UAS-mNG-Jupiter は、クラスIVのdaニューロンにおいてmNGおよびCD4tdTomatoを強く発現する。少なくとも3系統の独立した遺伝的交配から得られた幼虫を用いてイメージングを行い、1交配あたり最低6匹の幼虫を撮影する。 - 交配のために、壁面に酵母ペーストを少量塗布した維持ボトルに交雑個体を保持する。以下でインキュベートする。 25 °C 2〜3日間。
注: 酵母の給餌により、産卵数および産卵行動が促進される。 - 小ビーカーに酵母をスプーン1杯分取り入れ、水を数滴加えて酵母ペーストを調製する。スパチュラで十分に混ぜ合わせ、必要に応じて水を一滴ずつ加えながら、半固形状にする。
- 毎日、新しい酵母ペーストを含む新しい維持ボトルにハエを移してください。
注: 酵母ペーストが柔らかすぎたり、水っぽすぎたりしないようにしてください。柔らかすぎると、ハエが張り付く可能性があります。方法論の詳細については、Halesを参照してください。 他27 および Roote と Prokop28.
2. ブドウ寒天プレートへの産卵、卵の回収、および幼虫のステージング
- 1 Lの電子レンジ対応ビーカーに、蒸留水 376 mL、ブドウジュース 126 mL、アガー 15 g、およびスクロース 6 gを合わせ、約 0.5 Lのブドウアガー培地を調製する。
- アガーが完全に溶解するまで、1分ごとに攪拌しながら3~5分間電子レンジで加熱する。混合液を少し冷却させた後、エタノール 10 mLと酢酸 5 mLを加える。
- 十分に混ぜ合わせ、培地を60 mmのペトリ皿に分注してブドウアガープレートを作成する。プレートは事前に作成し、逆さまに積み重ねてペトリ皿用スリーブで包み、4 °Cで保存し、2週間以内に使用する。使用前にプレートを室温まで予熱する。
- 維持ボトルから、雄50匹、雌100匹を含む約150匹のハエを産卵ケージに移す。
- 酵母ペーストを少量塗布した60 mmのブドウアガープレートで産卵ケージを覆う。
- 酵母ペーストを含むブドウアガープレート上で、25 °Cで2時間、ハエに産卵させる。プレートを新しい酵母ペーストを含むブドウアガープレートに交換し、さらに2時間産卵させる。
- 3枚目の酵母ペーストを含む60 mmブドウアガープレートを用意し、さらに2時間産卵させる。
- 胚の齢の不均一性を最小限に抑えるため、3枚目のプレートを実験用プレートとして使用し、最初の2枚のプレートは廃棄する。
注: 雌のDrosophilaは受精卵を数時間生殖道に保持することができるため、最初の卵採取分には異なる発生段階の胚が含まれることが多い。最初のプレートを廃棄することで、より同期した卵を得ることができる。 - 産卵後(AEL)の段階別イメージングを行う場合、実験用プレート上の胚を25 °Cで目的の段階に達するまで成熟させる。段階1は 24 h、段階2は 48 h、段階3は 72 h、段階4は 96–120 hとする。
3. 幼虫の洗浄
- 表面から酵母の残渣を除去し、乾燥を防ぐため、幼虫を5 mLの5% sucrose溶液で洗浄し、続いて5 mLのdH₂Oで洗浄する。
- 3/0の筆を用いて、通常3〜4匹の幼虫を35 mmセルカルチャー皿の蓋に移す。ラボ用ティッシュで幼虫を拭き、余分な水分を取り除く。
4. 麻酔
- 麻酔前に幼魚を洗浄し、乾燥させる。
- あらかじめ麻酔装置を準備する(図 1)。ディッシュ上の空気の流れを抑え、イソフルラン麻酔による乱れを最小限にするため、細胞培養ディッシュを段ボール箱の中に入れる。
注意:イソフルランは揮発性麻酔薬である。適切なラボ換気を行い、施設内の化学物質安全手順に従って取り扱いおよび使用すること。蒸発リザーバーとして機能する35 mm細胞培養ディッシュ内部にダクトテープで固定した麻酔用ワンドに、規定量のイソフルランを添加して幼魚を不動化させる。 - 洗浄・乾燥させた幼魚が入った細胞培養ディッシュの蓋を、細胞培養ディッシュの上に載せる。
- 幼魚を2~3分間麻酔にかける。
注:イソフルランの量と麻酔時間は、幼魚のステージおよび個体数によって異なる。投与量は経験的に決定すること。例えば、72 hの幼魚3匹を約30分間麻酔させるには、10~20 µLのイソフルランを2分間使用する。幼魚のステージに関わらず、不動化の開始用量として、幼魚1匹あたり1分間に5 µLのイソフルランを使用する。
5. マウント
- 清潔なガラス製顕微鏡スライド上に、バセリンを用いて長方形または円形の囲いを作り、片方の角に小さな隙間を残す(図 1C)。ヘナディスペンサーを使用して、スライド上に囲いを描く。
- 絵筆を用いて、麻酔した幼虫を囲いの中へ移動させる。Halocarbon Oil 700の一滴の中に、幼虫を背面が上になるように固定する。
- 幼虫の上にNo. 1.5のカバーガラスをかける。バセリンがカバーガラスとスライドの隙間を密閉し、幼虫が顕微鏡スライド上でわずかに押し flattened(平坦化)されるまで、軽く圧力をかける。
- ステップ 5.2 で説明した移動ステップから、最大 30–45 分以内にすぐにサンプルのイメージングを行う。膜チャネルでブレビング(水疱形成)や、樹状突起の断裂を含む神経損傷が観察された場合は、イメージングを中止し、より低用量の麻酔剤を使用すること。
注: カバーガラスを配置した後、Halocarbon Oilの中に気泡がないことを確認すること。高品質なダイナミックビデオを得て、ドリフトを最小限に抑えるには、気泡を避ける必要がある。気泡の形成を最小限にするため、バセリンの囲いの一角に小さな隙間を残し、カバーガラスを配置する際に空気が逃げるようにする。 必要に応じて、細い絵筆を用いてその隙間を密閉する。
6. 顕微鏡観察および画像取得
- 50 µmのピンホールとパーフェクトフォーカスシステムを備えた回転円盤共焦点顕微鏡を用いて、幼虫サンプルのライブイメージングを行う。
- mNG-Jupiterなどの微小管マーカーおよび膜マーカーのCD4tdTomatoを可視化するため、100 mWレーザーを想定し、488 nmおよび561 nmのレーザーラインを最大出力の30%に設定する。
- 露光時間を200 msに設定する。6.5 µmセンサーを搭載したsCMOSカメラと対応する画像取得ソフトウェアを使用して画像をキャプチャする。
- 開口数1.25の40×水浸対物レンズを使用し、ピクセルサイズ0.1614 µmですべての画像を取得する。
- サンプルを手動でフォーカスし、透明なクチクラを通してクラスIVニューロンに容易にアクセスできる、背面側の第2、第3、および第4腹部半節を特定する。
- 各記録について、1 µmステップで深さ最大10 µmまでのzスタックセットを取得する。これらのスタックを10 s間隔で10分または15分間取得する。
注:特に指定がない限り、イメージングにはAEL 72 hの幼虫を使用する。
7. 画像処理および解析
- Bio-Formatsインポーターを使用して、取得した.ND2形式のタイムラプス動画をFIJI (Fiji Is Just ImageJ)にインポートする。後続の解析のため、動画をTIFF形式に変換する。
- FIJIのアフィン変換設定を用いた画像安定化プラグインを使用し、サンプルのドリフトを補正して動画を安定化させる。
- 動きが過剰な動画は解析から除外する。1 µm/minを超える動きを過剰とみなし、それらの動画を解析から除外する。また、膜マーカーチャンネル(CD4tdTomato)でブレビングが観察された動画も除外する。
- FIJIでz軸方向に最大強度投影(maximum-intensity projection)を行い、zスタックを2次元のタイムシリーズに変換する。
- チップおよび微小管の動的特性を定量化するため、FIJIで関心領域に沿って線状の関心領域(ROI)を描く。FIJIのMulti Kymographプラグインを使用してカイモグラフを作成する。ROIに沿って幅3ピクセルのラインスキャンを用いてカイモグラフを生成し、FIJIのMulti Kymographプラグインで処理する。
- ライン幅3ピクセルのPlot Profileツールを用いて強度プロファイルを抽出する。各ラインスキャンに沿った位置と強度が交互の列にコード化された多列CSVファイルを生成する。
- 視野内の空白領域にある対応するROIから背景強度を推定する。各フレームから背景強度を差し引く。
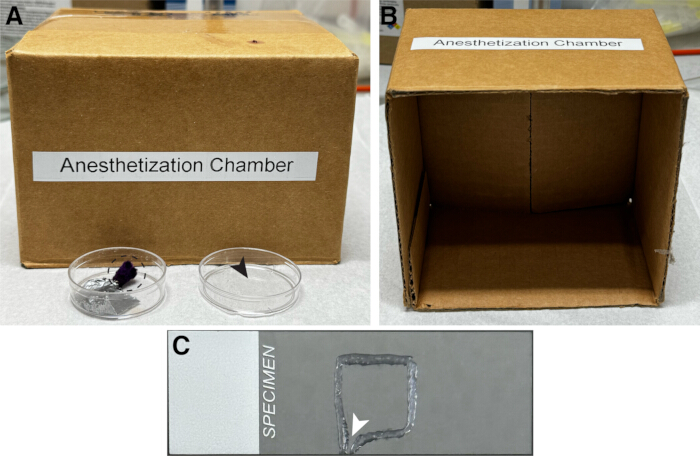
図 1麻酔装置の構成要素。(A) 蒸発麻酔用ワンドを固定したダクトテープ(黒色の破線円)を伴う、35 mmセルカルチャーディッシュを覆う小さな段ボール箱。セルカルチャーディッシュの蓋は、麻酔前および麻酔中に、清潔で乾燥した幼虫を保持するために使用された(黒色の矢頭)。 (B) ボックスの内部視点。 (C) イメージング中に幼虫サンプルを保持するため、ヘナディスペンサーを用いて正方形のワセリン封入部を準備した顕微鏡スライド。カバーガラスの設置時に空気を抜くための小さな隙間(白矢印)が設けられている。 この図の拡大版を表示するには、ここをクリックしてください。
結果
上述のプロトコルに従い、mNG-Jupiterと膜マーカーCD4tdTomatoを併用することで、クラスIV樹状突起分枝(da)ニューロンにおける微小管の可視化に成功した(図2A–C)。膜マーカーは樹状突起分枝の全体的な形態を記述し、一方でmNG-Jupiterは樹状突起内の微小管含有領域を標識した。終末樹状突起の遠位端において、mNG-Jupiterの蛍光は樹状突起の先端付近で弱かったか、あるいは消失していたが、対応する末端におけるCD4tdTomatoの蛍光は強いままであった(図2D–F)。
樹状突起の樹状分枝は、以前の研究11で膜マーカーのみを用いてイメージングした幼虫と比較して、明らかな形態学的差異を示しませんでした。mNG-Jupiterの発現が形態学的異常を引き起こしたかを定量的に評価するため、孵化後72時間(72 h AEL)において、mNG-Jupiterを発現する樹状分枝とコントロールの樹状分枝の樹状突起先端数を計測しました。8匹のmNG-Jupiter幼虫の8個の細胞において、樹状分枝の4分の1領域にある先端数は153 ± 25(平均 ± 標準偏差)であり、コントロール幼虫では144 ± 27(平均 ± 標準偏差)でした(図 2G)。Welchのt検定を用いた結果、有意な差は認められませんでした(図2の凡例を参照)。したがって、mNG-Jupiterの発現は、樹状突起の分枝数に検知可能な変化を及ぼさなかったと考えられます。
タイムラプスイメージングにより、末端樹状突起内におけるmNG-Jupiterシグナルの動的挙動が実証された。図3Aに示す代表的なシーケンスでは、明るいmNG-Jupiterで標識された微小管末端の位置が時間とともに変化している。mNG-Jupiterシグナルの連続的なラインスキャンを時間軸に沿って配列し、微小管の位置と長さの変化を可視化した。その結果得られた図3Bのカイモグラフでは、蛍光シグナルの伸長と短縮が交互に起こっており、これは末端樹状突起において標識された微小管の伸長と短縮が観察されたことと一致している(ビデオ1および2)。細胞体に近いより太い樹状突起では、微小管の数が多いため、個々の微小管のダイナミクスを可視化することはできなかった。
代表的な画像とタイムラプス記録をあわせると、本プロトコルによって、無傷のDrosophila幼虫感覚ニューロンにおける樹状突起の形態と、微小管に関連した蛍光の動的な変化の両方を可視化できることがわかります。膜マーカーは樹状突起構造のリファレンスとなり、mNG-Jupiterによって樹状突起内の微小管の挙動を時間経過とともに追跡することが可能です(図2および3)。
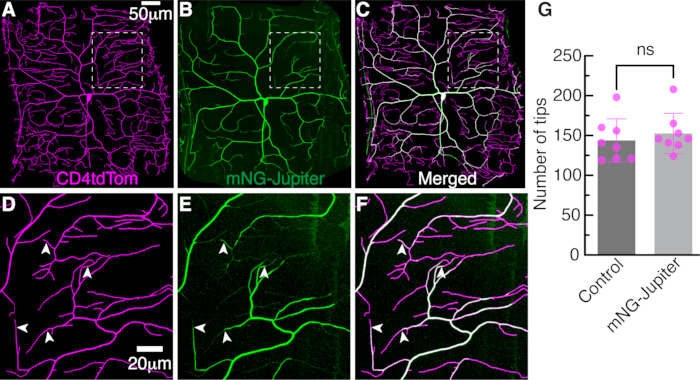
図 2: クラス IV ニューロンにおける樹状突起。産卵後 (AEL) 72 時間におけるクラス IV 樹状突起分枝 (da) ニューロンの樹状突起構造を回転円盤共焦点顕微鏡で撮影した画像。微小管は GAL4/UAS 二成分発現系を用いて可視化している。クラス IV 細胞特異的ドライバーである ppk-GAL4 (pickpocket) により、mNG タグ付き Jupiter (UAS-mNG-Jupiter) の発現を誘導した。樹状突起膜は、CD4 膜マーカーに融合した tdTomato の ppk プロモーター介在による直接発現 (ppk-CD4tdTomato) で標識している。 (A) 膜マーカー、CD4tdTomato。 (B) 微小管マーカー、mNG-Jupiter。 (C) マージ画像。 (D–F) A–C のそれぞれで白点線枠で囲まれた領域の拡大図であり、微小管マーカーと膜マーカーの分布を示している。白の矢頭は、末端樹状突起における mNG-Jupiter の分布を示す。 (G) 72 h AEL におけるコントロールおよび mNG-Jupiter 発現ニューロンの樹状突起先端数の定量。各点は、個別の幼虫から得られた単一ニューロンの 4 分の 1 領域内でカウントされた先端数を示す。1 群あたり 8 匹の独立した幼虫から得られた計 8 個のニューロンを解析した。エラーバーは平均 ± SD を表す。群間の比較には二側非ペア Welch の t-検定を用いた。ns: 有意差なし (P > 0.05)。この図の拡大版を表示するには、ここをクリックしてください。
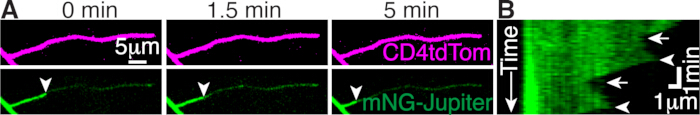
図3末端樹状突起における微小管ダイナミクス。(ACD4tdTomato(上)およびmNG-Jupiter(下)を発現する末端樹状突起の、指定された時点における3枚の画像。矢印は微小管の末端を示す。明るい信号の先に、かすかなmNG信号が確認できる。 微小管シグナル (B) 微小管の伸長と短縮を示すカイモグラフ。矢頭は伸長相を、矢印は短縮相を示す。mNG信号の幅3ピクセルのラインスキャンを順次下方向に並べており、下に行くほど時間が経過している。 こちらの図の拡大版を表示するには、ここをクリックしてください。
ビデオ 1:クラス IV 樹状突起分枝ニューロンにおける mNG-Jupiter のタイムラプスイメージングDrosophila 幼虫のクラス IV 樹状突起における mNG-Jupiter 蛍光を示すタイムラプスシーケンス。このシーケンスは、樹状突起分枝内における微小管関連蛍光の経時的変化を示している。画像は、プロトコルに記載されたライブイメージング条件を用いて取得した。スケールバーは 20 µm。こちらをクリックしてファイルをダウンロードしてください。
ビデオ2:クラスIV樹状突起分岐ニューロンにおけるCD4tdTomato膜マーカーのタイムラプスイメージング。対応するDrosophila幼虫のクラスIV樹状突起分岐におけるCD4tdTomato蛍光を示すタイムラプスシーケンス。この膜マーカーは、イメージング期間中の樹状突起形態の参照基準となる。画像は、プロトコルに記載されたライブイメージング条件を用いて取得した。スケールバーは20 µmである。こちらをクリックしてファイルをダウンロードしてください。
ディスカッション
本プロトコールでは、共焦点顕微鏡を用いてDrosophila(ショウジョウバエ)の感覚ニューロンにおける微小管ダイナミクスのライブイメージングを行うための、トランスジェニックJupiterフライ系統の使用法を実演します。この手法により、膜マーカーを用いて評価される樹状突起の形態を維持したまま、完全な幼虫内での微小管関連蛍光の可視化が可能になります11,29。同様のアプローチが、クラスIVニューロンにおけるGFP-actinおよびLifeAct-GFPを用いたアクチンダイナミクスのイメージングにも利用されています22,30,31,32。原理的には、同じ一般的アプローチを、クラスIV細胞や他のクラスの樹状突起分枝ニューロン(クラスI、II、およびIII)における他の微小管結合タンパク質のイメージングに適用することも可能です。特に、蛍光微小管ラベルとEBラベルを組み合わせることで、微小管の成長に関する解釈の曖昧さを軽減できる可能性があります。例えば、EBコメットが見られないことは、微小管が存在しないか、あるいは微小管は存在するが積極的に成長していないかのいずれかを示唆しますが、微小管を直接可視化することで、これらの可能性を区別するのに役立ちます。したがって、mNG-Jupiterと蛍光EB1を共ラベルすることで、微小管の構成、量、および推定される配向という局所的な文脈の中で、微小管の成長ダイナミクスを解釈できる可能性があります。
適切なライブイメージングデータを取得するためには、いくつかの重要なステップがあります。本プロトコルでは、定義された短時間の固定処置に揮発性麻酔薬のisofluraneを使用します。固定中のisofluraneの用量は慎重に制御する必要があります。麻酔が不十分であると幼虫が動き、過剰であると神経細胞の変性につながる可能性があるためです。また、マウンティング時に気泡が混入すると、画質が低下し、サンプルのドリフトの原因となるため、気泡の混入は避けなければなりません。さらに、カバーガラスによる過度な圧迫は、樹状突起のブレビング(小胞形成)とその後の神経細胞損傷を引き起こす可能性があるため、避ける必要があります。これらのステップは、イメージング全体を通じてサンプルの安定性と樹状突起の形態を維持するために重要です。
本プロトコルの重要な制限事項は、麻酔剤への曝露とカバーガラスによる物理的な拘束を組み合わせた固定および可視化手法が、微小管のダイナミクスに影響を与える可能性があることです。これらの条件下で微小管が乱されているかどうかを判断するために、別の固定方法を単独で、あるいは本プロトコルと組み合わせて使用することができます。このようなアプローチには、胚のイメージングや、Shibirets 33などの温度感受性変異体の使用が含まれ、その後に成長速度やカタストロフ頻度などの速度論的パラメータを比較します。
この制限があるものの、本プロトコルでは、マウント後約30分間は、樹状突起のブレブ形成や形態の悪化、あるいは検出可能な微小管およびチップダイナミクスの消失なく、幼生をイメージングすることが可能です。本手法により、無傷の幼生から高解像度のタイムラプスデータを取得し、末端樹状突起における微小管の動的な挙動を可視化することができます。
開示事項
著者に開示すべき利益相反はありません。
謝辞
著者らは、微小管ラベル化プロジェクトを開始した元研究員のMaijia Liao博士をはじめ、Howard研究室の全メンバーに感謝いたします。また、Howard研究室においてDrosophilaの樹状突起ダイナミクスを可視化するためのプロトコルを開発したSonal Shree博士に感謝いたします。 本出版物で報告された研究は、J.H.に対する米国国立衛生研究所(NIH)の助成金番号 R35 GM161634(国立一般医学科学研究所)および助成金番号 R01 NS118884(国立神経疾患および脳卒中研究所)の支援を受けました。内容は著者の単独責任であり、必ずしも米国国立衛生研究所の公式な見解を代表するものではありません。また、本研究はNSF助成金 PHY-2210464およびPEW Charitable Trusts助成金 38044(J.H.宛)の支援も受けています。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 酢酸(氷酢酸、ACS試薬グレード、 ≥99.7%) | Sigma-Aldrich | 695092 | ブドウ糖寒天培地の調製に使用。約0.5 Lの調製につき5 mLを使用。 |
| アガー(バクトアガー) | Becton Dickinson | 214010 | ブドウ糖寒天培地の調製に使用。約0.5 Lの調製につき15 g使用。 |
| 麻酔用ワンド | Carolina Biological Supply Co. | 173010 | 幼虫の麻酔中に、蒸発リザーバー内でイソフルランを保持するために使用する |
| ビーカー、1 L、電子レンジ対応 | Corning Inc. | 1000-1L | ブドウ糖アガー培地約0.5 Lを調製するために使用する |
| ビーカー、100 mL | Corning Inc. | 1000-100 | 酵母ペーストの調製に使用 |
| Bio-Formats インポーター | オープン顕微鏡環境プロジェクト | 該当なし | .ND2タイムラプスファイルをインポートするために使用したFIJIプラグイン |
| カメラ (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | 6.5 µm センサー;画像取得に使用 |
| 段ボール箱 (5 × 5 × 3 インチ) | Uline | S-4579 | 麻酔セットを覆い、細胞培養皿上の空気の流れを抑えるために使用する |
| 細胞培養ディッシュ | Corning Incorporated | 430165 | 35 × 10 mm。幼虫の操作およびイソフルランの蒸発リザーバーとして使用。 |
| カバーガラス | Globe Scientific Inc. | 1404-15 | 22 × 22 mm、No. 1.5;固定した幼虫の上に配置する |
| ダーウィンチャンバー | ダーウィンチャンバー | IN030-AA-LT-DA-MP | ショウジョウバエの交配維持、産卵、および幼虫のステージ分けに使用される 25 °C |
| 蒸留水(特級) | Research Products International (RPI) | 該当なし | ブドウアガーの調製、酵母ペーストの調製、および幼虫の洗浄に使用する |
| ダクトテープ | Uline | S-6519 | 細胞培養ディッシュ内の麻酔用ワンドを固定するために使用する |
| 産卵ケージ/胚回収ケージ | Genesee Scientific | 59-100 | 小型サイズ。60に適合。 × 15 mmペトリ皿;制御された卵回収に使用 |
| エタノール(無水、200プルーフ) | Decon Labs Inc. | V1001G | ブドウ糖寒天培地の調製に使用。約0.5 Lの調製につき10 mLを使用。 |
| FIJI (Fiji Is Just ImageJ) | 国立衛生研究所(NIH) | バージョン 2.16.0/1.54p | 画像のインポート、安定化処理、最大強度投影法(MIP)、ROI解析、カイモグラフの作成、および強度プロファイル抽出に使用される |
| フライライン:(1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+, UASt-mNeonGreen-Jupiter-RD/CyO | Bloomington Drosophila Stock Center(1); Howard Lab (2) | BDSC# 32078, BDSC# 35845 | クラスIV樹状分枝ニューロンにおけるCD4tdTomatoおよびmNG-Jupiterの発現に使用 |
| グレープジュース、コンコードグレープ100% | ウェルチの | 該当なし | グレープアガー培地の調製に使用。約0.5 Lの調製につき126 mLを使用。 |
| ハロカーボンオイル 700 | Sigma-Aldrich | H8898 | ライブイメージング用に幼虫を固定するために使用する |
| ヘナディスペンサー | ツェイヤー | ZEYER-1005 | 顕微鏡スライド上のワセリン封入領域の形成に使用する |
| 画像スタビライザー | Kang Liによって開発 | 該当なし | サンプルのドリフトを補正するためにアフィン変換設定を用いて使用したFIJIプラグイン |
| イソフルラン | Santa Cruz Biotechnology, Inc. | sc-470926 | マウントおよびイメージング前の幼生の固定に使用されます。 |
| ラボ用ティッシュ(Kimwipes) | Kimberly-Clark Professional | 34120 | 麻酔前に、洗浄した幼虫から余分な水分を除去するために使用する。 |
| メンテナンスボトル | Lab Express Inc. | 7001-PBT | 底面が正方形のポリプロピレンボトル、6オンス。Fly Food B(Bloomingtonレシピ)が含まれており、ショウジョウバエの系統維持および交配に使用される。 |
| マイクロ波 | Panasonic | NN-SN686S | ブドウ寒天培地の調製時に、寒天を溶解させるために使用する |
| 倒立顕微鏡 | Nikon Instruments Inc. | 736228 | ライブイメージング用パーフェクトフォーカスシステム搭載 Ti Eclipse 倒立顕微鏡 |
| 顕微鏡スライドガラス | Fisherbrand | 12550143 | Superfrostスライドガラス;イメージング用に幼虫を固定するために使用 |
| マルチカイモグラフ | Jens Rietdorf、Arne Seitz、およびJohannes Schindelinによって開発 | 該当なし | 微小管ダイナミクスのカイモグラフを作成するために使用したFIJIプラグイン |
| Nikon Elements ソフトウェア | Nikon Instruments Inc. | バージョン 5.21.03 | タイムラプス顕微鏡画像の取得および.ND2ファイルの生成に使用されます。 |
| 対物レンズ、水浸法 | Nikon Instruments Inc. | MRD77400 | 40×, 1.25 NA;ライブイメージングに使用 |
| ペイントブラシ | ダイナスティ | 2157r | サイズ0および3/0。幼虫の移送およびバセリン封入部の密閉に使用する。 |
| シャーレ | Falcon | 351007 | 60 × 15 mm;ブドウアガープレートに使用 |
| スパチュラ | VWR | 82027-532 | 22.9 cm (9インチ);酵母ペーストの調製時に酵母と水を混合するために使用 |
| スピニングディスク共焦点ユニット | 横河 CSU-W1 | SBW001 | 50 µm ピンホール;ライブ共焦点イメージングに使用 |
| ショ糖 | Sigma-Aldrich | 57-50-1 | ブドウ寒天培地に使用し、また幼虫の洗浄には5%溶液として使用する |
| ワセリン | ユニリーバ | 該当なし | 顕微鏡スライドとカバーガラスの間に密閉空間を形成するために使用される |
| 酵母(Red Star Active Dry Yeast) | Lesaffre Corporation | 該当なし | 酵母ペーストを調製し、産卵を促進するために使用する。 |
参考文献
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
再版と許可
この記事は公開されました
動画は近日公開