このプロトコルにより、短寿命のAnnual Killifish(Nothobranchius furzeri)から、あらゆる年齢層において生存可能な心室心筋細胞を安定的に単離することができ、加齢に伴う心機能リモデリングのホールセルパッチクランプ研究に適した細胞を得ることが可能です。
方法論記事
年魚キリフィッシュNothobranchius furzeriからの心室心筋細胞の単離:ホールセルパッチクランプ記録に向けて
この記事について
サマリー
要約
単離した心筋細胞は、心臓電気生理学を研究するための標準的なアプローチであり続けています。単一細胞の調製により、心臓組織全体の構造的な複雑さに影響されることなく、イオン電流や活動電位を直接的に調査し、精密に測定することが可能です。Nothobranchius furzeri(アフリカンターコイズキリフィッシュ)は、極めて短い寿命であることや、人間を含む哺乳類と老化メカニズムが類似していることから、老年学研究の重要なモデル生物として急速に台頭しています。本種は、小型であること、飼育コストが低いこと、ライフサイクルが速いといった実用的な利点と、トランスレーショナルな関連性を兼ね備えています。N. furzeriは、加齢に伴う運動能力、認知機能、および臓器機能の低下、老化の分子標識の蓄積、そして寿命および健康寿命を調節する薬理学的治療への感受性を示します。しかし、老化心臓の機能低下を調査するには、高度な単一細胞技術に適した、高品質で生存可能な細胞を安定して得るための信頼できる手法が必要です。本研究では、若齢および老化N. furzeriの両方から健康な心筋細胞を安定して回収できるよう、既報のDanio rerio心筋細胞単離プロトコルを最適化しました。本プロトコルでは、特にホールセルパッチクランプ法向けに最適化したN. furzeri心室心筋細胞の単離について記述します。本記事では、心臓を効率的に摘出する方法、逆行性灌流による心筋の酵素的解離の手順、および単離した心筋細胞の保存方法を実演します。また、イオンチャネルの構造を損なうことなく細胞外マトリックスおよび細胞間接合を消化するために必要な酵素の選択について議論します。新鮮に単離された心筋細胞は、年齢群を問わず、活動電位の記録や主要な内向き・外向きイオン電流の測定を含む、高解像度の電気生理学的アッセイに適しています。さらに、本記事では、哺乳類の標準的な単離手順とは異なる魚類心筋細胞単離の特徴についても触れています。
概要
心臓の加齢に伴う機能低下は、構造的、分子的な再構成および電気生理学的リマデリングによって引き起こされ、これらが総合的に心予備能を低下させ、不整脈発生への感受性を高めます1。細胞レベルで心臓の老化を駆動するメカニズムを理解するために、ホールセルパッチクランプ法は不可欠な実験ツールとなります。この手法により、個々の膜貫通イオン電流とそのキネティクス、および活動電位(AP)を直接的かつ定量的に評価することが可能となり、加齢に伴う心筋機能不全の基盤となる特定のイオン電流の変化について知見を得ることができます。これらのメカニズムを調査するには、信頼性の高い脊椎動物の心老化モデルが必要です。近年、アフリカーターコイズキリフィッシュ(Nothobranchius furzeri)は、天然の寿命が短いことから、心臓の老化研究における有望なモデルとして登場しました2,3。予備的な分子生物学的および組織学的研究により、Nothobranchiusと哺乳類の老化プロセスには類似点があることが明らかになっています。他グループによる調査では、N. furzeriが、テロメアの短縮、ミトコンドリアDNA量および抗酸化酵素発現の減少、心筋の構造的・電気生理学的変化、ならびにリポフスチンの蓄積やβ-ガラクトシダーゼ活性の上昇といった老化マーカーの蓄積など、哺乳類の心老化における重要な特徴を備えていることが確立されています4,5,6.
しかしながら、心血管研究におけるN. furzeriの重要性は高まっているものの、単一細胞レベルでの詳細な電気生理学的特性解析は、根強い技術的課題によって制限されています。高品質なパッチクランプ記録を得るには、構造的な完全性と無傷のイオンチャネルを維持し、かつ過収縮していない形態を持つ機能的な心筋細胞を単離することが絶対条件となります。哺乳類の心筋細胞に対する酵素解離プロトコルは十分に確立されていますが、魚類の心臓から生存可能な心筋細胞を単離することは、非哺乳類特有の組織構造、相対的に低い細胞回収率、および心臓のサイズが小さいことから、依然として困難です7,8。この手順における主な制限は、心臓へのカニュレーションを正確に行うという技術的な難しさと、酵素処理のわずかな変動に対する試料の感受性です。灌流フローが中断されると、細胞の品質と回収率の両方が著しく低下します。さらに、酵素濃度や消化時間のわずかな偏差であっても、細胞生存率およびその後の電気生理学的記録の品質に大きな影響を及ぼす可能性があります。また、個体の年齢も考慮する必要があります。高齢の魚の心臓は、コラーゲン線維や線維芽細胞の含有量が増加しているため、わずかに高い酵素濃度と長い消化時間を必要としますが2、単離の一般原則は不変であり、最適な結果を得るために酵素濃度と曝露時間を10%の範囲内で調整します。
したがって、魚類モデルにおける心臓の老化に関する電気生理学的研究を推進するためには、詳細で再現性の高い酵素的単離プロトコルが不可欠です。線形寸法におけるある程度の形態的な類似性があるものの、N. furzeriからの心筋細胞の単離には、Danio rerioのプロトコルと比較して、いくつかの大幅な変更が必要です。ゼブラフィッシュの心臓から細胞を単離する古典的な手法では、心臓をそのままの状態で酵素溶液に比較的長時間浸漬させます7,8,9。このアプローチで生存細胞を得ることは可能ですが、Nothobranchiusの心臓に対しては刺激が強すぎ、過剰な酵素消化を招く恐れがあります。本手法では、心腔内に溶液を直接的に安定して流し込むことで、心臓からの血液の洗浄をより効率的に行い、より精密かつ緩やかな酵素処理を可能にしています。本記事では、高品質な電気生理学的記録を確実に行うために必要な主要な調整について述べ、パッチクランプに適した生存心筋細胞をN. furzeriから単離するための洗練された手法を概説します。
プロトコル
本研究はGRZ系統のN. furzeriを用いて行われた。単離心室心筋細胞における活動電位およびイオン電流を記録するため、1.5〜2ヶ月齢の雌雄両性の若年性成熟魚(N = 19、体重 = 0.71 g ± 0.36 g)を使用した。魚類はロシア科学アカデミーA.N.セベルトソフ生態・進化研究所で飼育および提供された。動物は、24 °C ± 1 °Cの条件下、12時間の明暗サイクルで、60〜100 Lの水槽に入れたアクアリウムで飼育した。個体密度は、既報の推奨事項10に従い、1槽あたり10〜20匹とした。
からの心筋細胞単離の原理 *N. furzeri* 既報の古典的な魚類分離法に基づいており、小型の魚類に適応させたものである。11,12すべての実験は、「実験動物のケアおよび使用に関するガイドライン(米国国立衛生研究所)」およびEU指令2010/63/EUに従って実施されました。実験プロトコルは、ロモノーソフ・モスクワ国立大学の生物倫理委員会によって承認されました(申請番号 №202-a、バイオエシックス委員会(生物倫理委員会)の会議にて承認済み №(2025年2月27日に開催された169-d)。使用した試薬および器具は、以下の通りである。 材料リスト.
1. 溶液の調製
- (mmol L-1) 単位で、100 NaCl、10 KCl、1.2 KH2PO4、4 MgSO4、50 taurine、20 glucose、および 10 HEPES を含む Ca2+不含分離液を調製する。室温 (24 °C) で NaOH を用いて pH を 6.9 に調整する。分離操作は室温の生理食塩水を用いて行う。分離において溶液の酸素供給は不要である。
注:分離液はガラス瓶に入れ、4 °C で 3~4 日間保存することができる。 - Ca2+不含液をベースとして、0.8 mg mL-1 collagenase type 1A、0.5 mg mL-1 trypsin、および 0.8 mg mL-1 bovine serum albumin (BSA) を含む酵素液 3 mL を調製する。酵素活性を維持するため、酵素は分離操作の直前に添加する。
注:酵素活性はロットによって異なるため、酵素濃度の調整が必要な場合がある。 - 50~100 mL の水道水を冷蔵庫で +4 °C に予冷する。この冷却水は、魚の鎮痛に使用する。
2. 分離システムの準備
- 2本の10 mLシリンジシリンダーを、高さ約35 cmの位置にスタンドに固定する。
- シリコンチューブ(d = 8 mm)をシリンダーに接続し、その自由端を3方路止血クランプ(ストップコック)で接合する。
- 一方のチューブにCa2+除去分離溶液を、もう一方に酵素溶液を満たす。気泡は流れを妨げ、分離の質を低下させるため、チューブ内に気泡が残らないようにする。その後、流量を遮断する。
- 針先に気泡が入るのを防ぐため、1 mLインスリンシリンジを用いて、32 GのディスペンシングニードルにCa2+除去溶液を満たす。
- 溶液を満たしたニードルを3方路止血クランプの自由端に取り付ける。
- 固定用粘土(マウンティングプティ)を用いて、ニードルを100 mmペトリ皿の底面と平行になるように固定する。
- 灌流システムに接続したペトリ皿を実体顕微鏡の下に配置し、ステージクリップと固定用粘土で固定する(図 1A)。
3. 解剖および心臓の摘出
- 手術器具を準備する:眼科用マイクロサージカル剪刀と鉗子をそれぞれ2ペア、および医療用針を4本入れた解剖用トレイ。
- 冷蔵庫からあらかじめ冷却した水道水を取り出し、魚を速やかに浸します。鰓蓋(さいがい)の動きが止まるまで待ちます。
注意:処置を進める前に、鰓蓋の動きが停止していることを確認し、十分な鎮痛が行われていることを確実にして下さい。 - 魚を水から取り出し、背面を上にして解剖トレイに置き、眼科用剪刀で脊髄を切断します。
- 魚を仰向けにし、針でトレイに固定します。頭部、尾部、および鰓蓋(さいがい)をピンで固定し、十分なスペースを確保するため、鰓蓋は完全に開いた状態で後ろ側に固定してください。
- 腹膜を横方向に切開します。切開線を主軸に沿って縦方向に延長し、ピンセットで皮膚を慎重に持ち上げて内臓器官から離します。下顎の縁まで切開を続け、皮膚の端を左右に固定します(図1B).
- 心室と心動脈球を確認する。心室からできるだけ離れた位置で心動脈球をピンセットで掴み、ゆっくりと体外へ持ち上げる。ピンセットを離さずに、心室を損傷させないよう心室の尾側を切断する。
- 分離した心臓を実体顕微鏡下でペトリ皿に移します。まずカニューレの先端を動脈球に挿入し、周囲の組織を損傷しないように注意しながら大動脈弁を通過させ、心室内にカニューレを固定します。カニュレーションの成功は、以下の手順で達成されます。 > 心臓の90%。
- 結紮糸を用いて、動脈球をカニューレに固定します(図1C).
注:ヒトの毛髪(d = 50–70 µm)は結紮糸として適しており、標準的な縫合糸では小型の心臓に対して太すぎます。
4. 心筋細胞の単離
- Caを含むバレルからの流れを可能にするため、3方コックを開く。2+-溶液。正しく行われれば、心室に溶液が満たされ、拡張します。流速は以下に設定されました。 43 µL 分-1.
- 心室壁を損傷しないように、マイクロサージカル剪刀を用いて心房および静脈洞の残存部分を切り取り除去する。
- 均一な流量を確認しながら、10~12分間心臓を灌流する。シリコンチューブを軽く圧迫して溶液を一時的にパルス状に注入し、心室の肉柱を拡張させ、残存する血液を洗い流す。実体顕微鏡下で心停止が確認され、赤血球の流れが消失すれば、洗浄が完了したことになる。
- ストップコックを切り替え、酵素溶液を心室に導入します。4~6分間灌流します。心室壁の完全性が失われ、小さな心筋断片が脱落していることを視覚的に確認し、酵素処理が行われたことを確認してください。
注意:灌流液をサンプリングしたり、観察のために倒立顕微鏡へ移したりしないでください。細胞物質の喪失や機械的損傷を招き、灌流品質の継続的なモニタリングが中断される可能性があります。双眼顕微鏡下で明確に確認できる、上述の分離成功の指標に従うことが望ましいです。 - 少量を分注します(300–400 µL) の Ca2+-free溶液を35 mm組織培養ディッシュに満たしておく。心室を球動脈輪から切り離し、ディッシュに移す。
- 細い鋏で心室を細かく刻み、その後、ピペットで繰り返し吸引・吐出することで組織を穏やかにホモジナイズします。 100 µL カットオフチップを装着したマイクロピペット。
- 細胞懸濁液を~に移します。 1500 µL チューブ。分注した試料を倒立顕微鏡の低倍率(10倍)で確認します。×)。視野内の棒状の横紋心筋細胞の密度を視覚的に推定してください。視野が混雑しており、多くの棒状細胞が重なり合っている場合は(>10あたり50× (視野に)Caを添加し、2⁺細胞密度を下げ、記録室での過剰な密集を避けるための、〇〇(※原文欠落)を含まない溶液。細胞を〇〇に静置させ、 4 °C 記録を開始する前に40〜50分間。
注:細胞は以下の条件で保持することが可能です。 4 °C 静置期間中。分離後8時間以内に記録に使用すること。
5. 全細胞パッチクランプ記録
- 以下に記載されている各種イオン電流および活動電位の記録に使用する細胞外液および細胞内液を調製する。 表1.
- 垂直型プラーを用いて、(フィラメントなしの)薄壁ホウケイ酸ガラスキャピラリーからパッチピペットを抽出し、細胞内液を満たしてください。充填後のピペット抵抗は2.0~3.0 MΩである必要があります。Ω すべての記録構成において。
- 灌流リザーバーに細胞外浴液を満たし、細胞を記録室に配置する前に、ライン内からすべての気泡を取り除くためのプライミングを行う。
- 少量を(30–40 µL分離した心筋細胞懸濁液をガラス底の記録チャンバーに注入し、細胞を5〜10分間静置させる。
- ピペットをアンプリファイアのヘッドステージに取り付けます。顕微鏡下で、マイクロマニピュレーターを用いてピペットを標的の心筋細胞に向けて降ろし、チップが細胞膜に接触するまで移動させます。接触は、膜にわずかな窪みが生じることと、ピペット抵抗の上昇によって確認されます。
- 緩やかな陰圧吸引を加え、高抵抗のGを形成する。Ω 通常、数秒以内に形成されるシール。
- 保持電位を-80 mVに設定する。一連の短い吸引パルスを用いて膜を破裂させる。ホールセル構成を確立した後、アンプの補正回路を使用して、容量過渡応答を最小限に抑え、細胞容量および直列(アクセス)抵抗を補正する。
- アンプのCell capacitanceおよびSeries resistanceコントロールを使用して、これらの容量性電流を補正します。まずCell capacitanceコントロールを調整してメインの容量性過渡応答を最小限にし、次にSeries resistanceコントロールを調整して、残りのオーバーシュートがほぼ解消され、ベースライン電流が平坦になるまで低減させます。
- 補正後の推定アクセス抵抗が10–12 MΩ以下の細胞のみを採択してください。Ω 活動電位およびイオン電流の記録に使用します。活動電位またはイオン電流の記録に進み、以下に記載する特定の遮断剤を添加してください。 表2 必要に応じて、記録前に(実施してください)。
- 各標的電流に対してカスタム刺激プロトコルの設定が可能なパッチクランプ記録ソフトウェアを用いて記録を行う。本研究で使用したボルテージクランププロトコルを以下に示す。 図2.
結果
このプロトコルでは、高解像度のホールセルパッチクランプ記録に適した、N. furzeri由来の個別の棒状心室心筋細胞を単離します。単離の成功判定は、まず細胞形態とシール品質によって行い、次に、安定した活動電位および各主要なイオン電流を、期待される電圧依存性と振幅で記録できるかという機能的な能力によって確認します。以下の代表的な記録は若いN. furzeriから得られたものであり、健全で適切にクランプされた細胞を示す参照値を定義しています。これらの基準値からの逸脱は、通常、単離が不十分であることを示しており、各基準とともに記載されています。
細胞形態とシールの形成
生存しているN. furzeriの心室心筋細胞は、伸長した棒状で、形態学的に完全で滑らかなサルコレンマ(細胞膜)を呈している(図 3)。一部の細胞では、光学顕微鏡下でかすかな横紋が認められたが、すべての細胞で一貫して解像したわけではなかった。そのため、滑らかで完全な膜および伸長した棒状の形態を、記録用細胞を選択する際の主要な基準とした。このような細胞は、高抵抗シール(>1 GΩ)を容易に形成し、膜破裂に対する耐性を持つ。対照的に、円形、収縮、顆粒状、または腫脹した細胞は、過剰な消化または機械的な損傷の兆候であり、シール形成が悪く、急速に活性が低下するため、除外すべきである。健康な細胞は安定した静止膜電位を保持し、-80 mVの保持電位においてリークが最小限である。
パッチクランプ記録の特性
ホールセルパッチクランプ記録は、パッチクランプアンプを用いて22–24 °Cで実施した。信号は10 kHzでサンプリングし、1–2 kHzでローパスフィルタリングを行った。デジタイザ上の信号分解能を最適化するため、出力ゲイン(α)は×0.5に設定した。直列抵抗は70%–80%で補正し、ラグは10 µsとした。推定アクセス抵抗が10–12 MΩを超えた場合、または記録中に~10%以上の変動があった場合は、その記録を破棄した。活動電位およびイオン電流の記録において、線形リーク減算は適用しなかった。
以下の基準のいずれかに該当する細胞は、解析から除外した:カレントクランプモードにおける静止膜電位が-70 mVより浅い(正側に寄っている)、または安定したギガシールを形成できなかった。>1 GΩ);アクセス抵抗 >10–12 MΩ 補正後。記録中のイオン電流の急速な減衰。形態学的損傷(丸みを帯びた、顆粒状の、または過収縮した外観)。
活動電位(生存能のポジティブコントロール)
カレントクランプモードで記録される活動電位は、単離心筋細胞の電気的な生存能を最も直接的に評価する手段となります。1 msの脱分極電流パルス(0.4–1 nA、閾値の約30%上)を用いて活動電位(AP)を誘発させます。刺激周波数は0.3 Hzに設定してください。波形が安定した定常状態に達した約5分後に、APを記録します。若齢のN. furzeriから適切に単離された心筋細胞では、静止膜電位(RMP)は安定しており、-85 mVに近い値を示します(Figure 4B)。APは近似的に+30 mVまでオーバーシュートし、明確な全か無かの立ち上がりを示します(Figure 4A)。代表的なAP特性としては、APD90が約530 ms、APD50が約460 ms、最大立ち上がり速度(dV/dtmax)が約50 V s-1などが挙げられます。RMPの脱分極(約-70 mVより正側への移行)、オーバーシュートの減少または消失、立ち上がり速度の低下、あるいは多くの場合において安定した振幅と持続時間での反復的な発火を維持できない場合は、細胞の損傷またはクランプ不全であることを示しており、AP特性の評価に使用することはできません。
高速ナトリウム電流 (INa)
高速ナトリウム電流は活動電位(AP)の立ち上がりを担っており、膜の完全性とクランプ品質の鋭敏な指標となります。Table 1のCs+ベースの溶液を用いることで、INaは大きく、急速に活性化および不活性化する内向き電流として記録されます(Figure 5A)。健康な若年心筋細胞では、INaは-60 mV付近で検出可能となり、約-30 mVで約-13 pA pF−1のピーク密度に達し、+20 mV付近で逆転します(Figure 5B)。不活性化時定数は、-50 mVでの~8 msから-10 mVでの~2 msへと減少し、半不活性化電圧は-70 mV付近にあります13(Figure 5C, D)。ピーク電流振幅の大幅な減少、逆転電位のシフトまたは不明確化、あるいは活性化・不活性化キネティクスの遅延や歪みは、単離操作そのものではなく、不適切な電圧制御(直列抵抗誤差)または膜の完全性の低下を示しています。
カルシウム電流(ICaLおよびICaT)
カルシウム電流測定用溶液(Table 1)を用いて記録した結果、N. furzeriの心筋細胞は2つの成分からなる正味の内向きカルシウム電流を示しました。電流は約-60 mVから活性化し始め、支配的なL型電流(ICaL)に加えてT型成分(ICaT)が存在することを示しており、-10 mVから0 mVの間で約-7 pA pF−1のピーク密度に達しました(Figure 6B)。成分の同定は薬理学的に確認されました。10 µMのニフェジピンでは電流が部分的に遮断され、100 µMではほぼ完全な抑制が認められました(Figure 6A)。なお、100 µMのニフェジピン濃度は、10 µM投与後の残存電流が高濃度に対して完全に感受性であり、したがってICaTと同定できることを検証するための特定の対照実験においてのみ使用された点に注意してください。標準的なルーチン記録では、正味のICa 電流を完全に遮断するには50 µMで十分です。ICaL成分は、-50 mVの保持電位から誘発された電流として定義され、ICaTは、-90 mVから記録された電流と単離されたICaLとの差として算出されます(Figure 6C,D)。記述された活性化およびピーク電流電圧を持つ、明確に分離されたニフェジピン感受性内向き電流が認められれば、カルシウムチャネルが良好に保存されていることを示しています。
遅延整流カリウム電流 (IKr および IKs)
外向きカリウム電流の存在は、単離後も再分極機構が機能的に維持されていることを裏付けています。薬理学的条件下(表2)において、-40 mV以上の脱分極により、すべての健全な細胞で外向き電流が誘発されます。選択的遮断薬を用いて、2つの成分が区別されます。クロマノール 293B (20 µM) に感受性を持つ緩徐遅延整流カリウム電流 (IKs) と、E4031 (1 µM) に感受性を持つ迅速遅延整流カリウム電流 (IKr) です(図 7A,B)。若い魚の心筋細胞では、強い脱分極電位において、IKsおよびIKrともに約 1 pA pF−1の密度に達します(図 7C,D)。ヒトの心室再分極において主要な役割を果たす一方、標準的なげっ歯類モデルでは寄与が小さいとされるこれら両方の遅延整流成分が存在することは、記録された細胞が再分極電流を保持したN. furzeriの心室心筋細胞であることの重要な検証となります14。
背景内向き整流電流 (IK1)
背景の内向き整流電流は静止膜電位を決定しており、+60から-120 mVへの電圧ランププロトコルを用いて簡便に評価できます(図 7E)。健全な細胞では、IK1は-80 mV付近で反転し、これはカレントクランプモードで測定されたRMPと一致します。反転電位よりも正の電位において、IK1は特徴的な外向きのハンプを示し、数 pA pF−1でピークに達します(図 7F)。反転電位が-80 mVから大きく離れている場合や、大きな定常的なリークがある場合は、シール不良または膜の損傷を示しています。
総合すると、伸長した桿状の細胞が得られ、滑らかで完全な膜を持ち、ギガオームシールを形成し、上述の参照動作電位波形および電流シグネチャを示す場合に、調製は成功したと考えられます。1つの心臓からこのような細胞を複数得られたことは、酵素的解離によって膜の完全性と、その後の電気生理学的研究に必要な心筋イオンチャネルの全セットの両方が維持されたことを裏付けるものです。
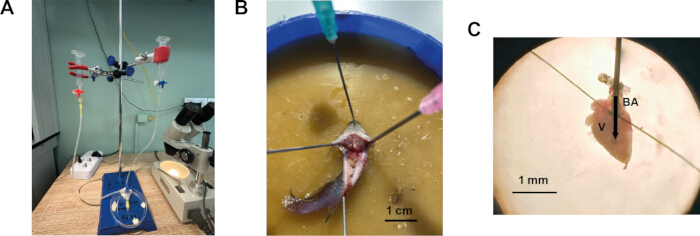
図1: N. furzeriの心臓から心室心筋細胞を単離する手順. (A>) 小魚用に改良された心筋細胞単離システム。(B>) 解剖トレイに固定された魚。腹側を上にし、腹膜を横方向および縦方向に切開している。(C>) 灌流のためにカニュレーションされ、固定されたN. furzeriの心臓。BA – 動脈球, V – 心室。矢印は心室への溶液の流れの方向を示す。こちらをクリックして、この図の拡大版を表示してください。
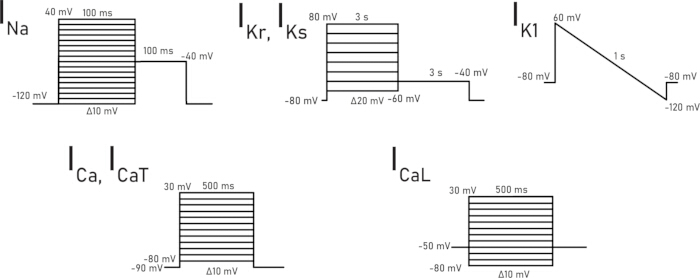
図2各特異的イオン電流の記録に使用されるボルテージクランププロトコル. こちらの図の拡大版を表示するには、ここをクリックしてください。
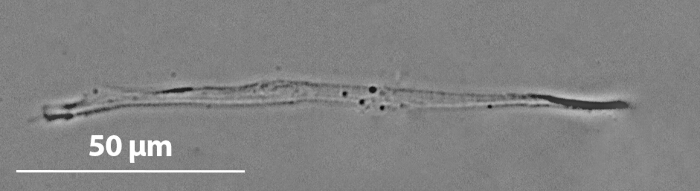
図 3: 若い N. furzeri の心室心筋細胞の代表的な顕微写真. こちらのリンクをクリックして、この図の拡大版を表示してください。
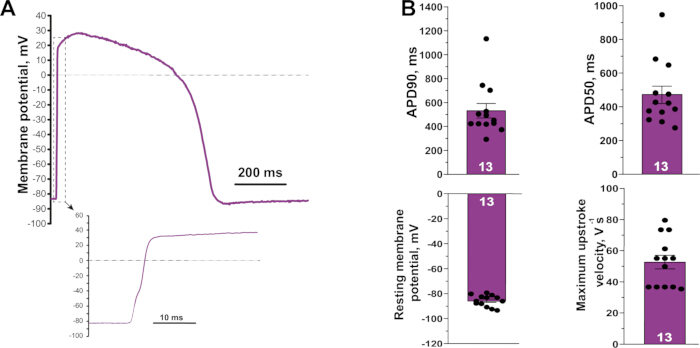
図4: 若齢のN. furzeriの心室心筋細胞から記録された代表的な活動電位。 (A) 活動電位の波形。挿入図は、時間スケールを拡大した急峻な立ち上がり(upstroke)を示している。 (B) 単離した若齢心筋細胞から測定した活動電位特性(静止膜電位、APD50、APD90、および最大立ち上がり速度)。 (N = 7, n = 13)。値は平均値 ± S.E.M. として示している。 この図の拡大版を表示するには、ここをクリックしてください。
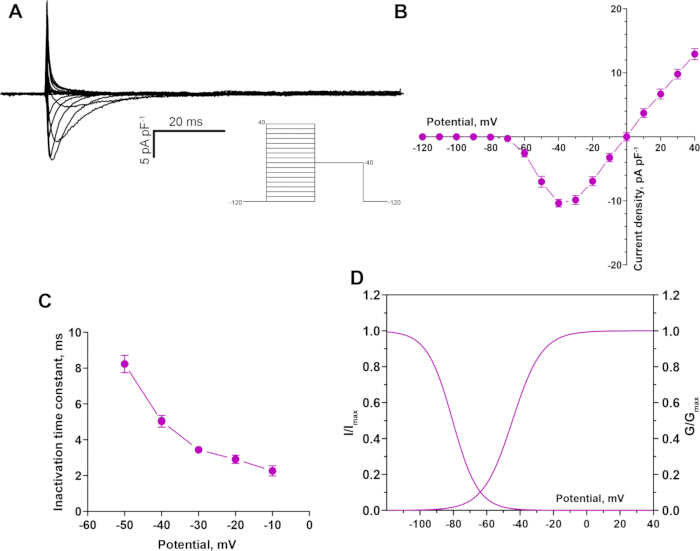
図5: 若い N. furzeri 心室心筋細胞から記録された高速ナトリウム電流 (INa)。(A) INa の代表的な記録。(B) INa の電流-電圧関係。-60 mV付近で活性化し、-30 mV付近でピークとなる。(C) 不活性化時定数の電圧依存性。(D) 定常状態の活性化および不活性化曲線。(N = 5, n = 11)。値は平均値 ± S.E.M. で示している。こちらのリンクをクリックして、この図の拡大版を表示してください。
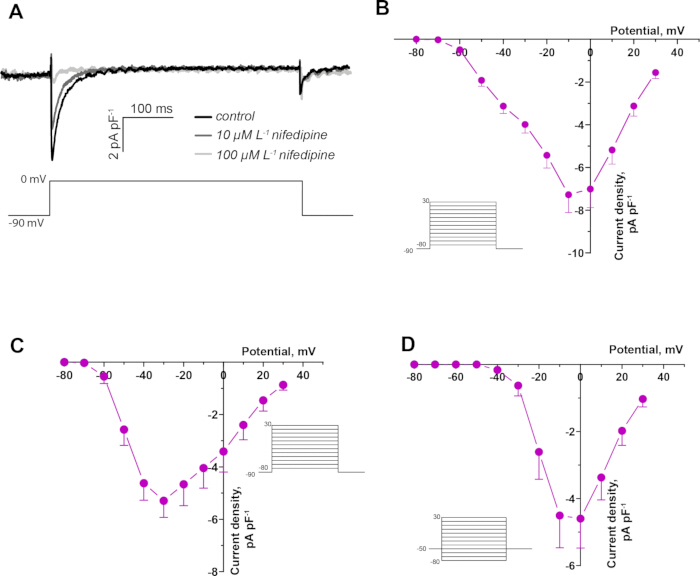
図6: 若いN. furzeri心室心筋細胞におけるカルシウム電流. (A) 若いN. furzeri心室心筋細胞における、コントロール、および10 µMと100 µMのニフェジピン存在下での正味のカルシウム電流の代表的な記録。(B) 正味のカルシウム電流の電流-電圧関係。-60 mV付近で活性化し、-10 mV付近でピークに達する (N = 5, n = 11)。(C) T型成分 (ICaT) の電流-電圧関係 (N = 3, n = 6)。(D) L型成分 (ICaL) の電流-電圧関係 (N = 5, n = 7)。値は平均値 ± S.E.M.で示されている。こちらのリンクをクリックして、この図の拡大版を表示してください。
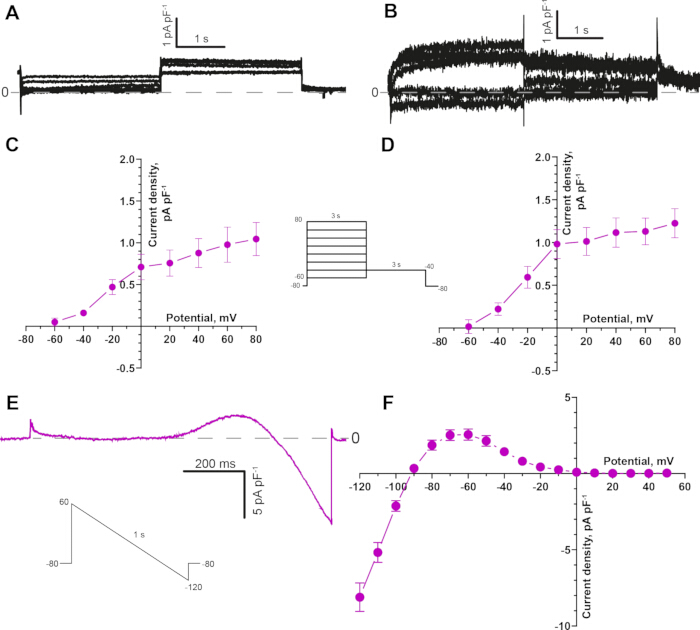
図 7: 若齢 N. furzeri 心室心筋細胞におけるカリウム電流. (A) 遅延整流カリウム電流 (IKs) の代表的な記録。IKrを遮断するためにE4031 (1 µM) を共存させて分離した。 (B) 急速遅延整流カリウム電流 (IKr) の代表的な記録。IKsを遮断するためにchromanol 293B (20 µM) を共存させて分離した。 (C) IKs 電流の電流-電圧関係 (N = 5, n = 9)。 (D) IKr 電流の電流-電圧関係 (N = 5, n = 10)。 (E) +60 mVから-120 mVへの降下電圧ランププロトコルで記録した代表的な IK1。 (F) IK1 の電流-電圧関係、反転電位は約-80 mV (N = 5, n = 18)。値は平均 ± S.E.M. で示す。この図の拡大表示はこちらをクリックしてください。
| 溶液名 | 試薬および濃度 (mM) |
| 活動電位およびカリウム電流 細胞外液 | 150 NaCl, 3 KCl, 1.2 MgCl2, 1.8 CaCl22, 10 グルコース, 10 HEPES; NaOHでpH 7.4に調整 |
| 活動電位とカリウム電流 細胞内液 | 140 KCl, 1 MgCl22, 5 EGTA, 4 MgATP, 0.03 Na2GTPおよび10 HEPES;KOHでpH 7.2に調整 |
| ナトリウム電流細胞外液 | 20 NaCl, 123 CsCl, 1 MgCl2, 1.8 CaCl₂2、10 glucoseおよび10 HEPES;CsOHでpH 7.2に調整 |
| ナトリウム電流 細胞内液 | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTPおよび15 TEA;CsOHを用いてpH 7.2に調整 |
| カルシウム電流 細胞外液 | 150 NaCl, 3 CsCl, 1 MgCl2, 1.8 CaCl22、10 グルコースおよび 10 HEPES;NaOH で pH 7.2 に調整 |
| カルシウム電流 細胞内液 | 130 CsCl, 1 MgCl22, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTPおよび15 TEA;CsOHでpH 7.2に調整。 |
表1:活動電位およびイオン電流のパッチクランプ記録に用いる細胞外液および細胞内液の組成.
| 記録電流 | ブロッカー濃度 (μM) | |
| 1. | 活動電位 | ブロッカー不要 |
| 2. | IKr | 50 Nifedipine, 20 Chromanol 293B |
| 3. | IKs | 50 Nifedipine, 1 E4031 |
| 4. | IK1 | 50 Nifedipine, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifedipine |
| 6. | ICaT | 1 Tetrodotoxin |
| 7. | ICaL | 1 Tetrodotoxin |
表2:特定のイオン電流を選択的に記録するために細胞外溶液に添加した薬理学的遮断剤.
ディスカッション
N. furzeriから生存した心室心筋細胞を正常に単離できたことは、細胞レベルでの加齢に伴う心臓リモデリングの電気生理学的特性を直接的に評価することを可能にする手法的な進歩を意味します。この解像度は、臓器または心臓全体の標本のみでは区別できない、加齢に伴う心機能不全の根底にある特異的なイオンメカニズムを特定するために不可欠です。天然の心筋細胞を研究することで、イオン電流や活動電位の特性を含む基礎的な電気生理学的特性が、加齢によってどのように変化するかについて直接的な知見を得ることができます。
本プロトコルのいくつかのステップは、N. furzeriからパッチクランプに適した高品質な心筋細胞を得るために極めて重要です。まず、酵素活性はバッチによって異なるため、コラゲナーゼおよびトリプシンの濃度は調製ごとに調整する必要があります。過消化は膜損傷とイオンチャネル機能の喪失を招き、一方で消化不足は得られる細胞数を減少させ、ピペットと膜の安定した接触を妨げます。単離された細胞は、滑らかで完全なサルコレンマ(筋細胞膜)を伴う細長い棒状の形態を維持しており、これは単離中の細胞の完全性が保持されていることを示しています。一部の細胞では、光学顕微鏡下でかすかなサルコメアの横紋も確認できる場合があります。損傷した細胞はしばしばイオンチャネル機能の変化や膜特性の低下を示すため、この保持は信頼性の高い電気生理学的データを得るために不可欠です。次に、N. furzeriの心臓が小さいことは技術的な課題であり、酵素的単離の慎重な最適化と精密な手動解剖が必要であり、心臓1個あたりの細胞収率は哺乳類での調製よりも低くなります。さらに、カニュレーションした心臓からの不均一な灌流や漏れも、手順中に発生しうる最も一般的な課題の一つです。いくつかの心臓でカニュレーションを練習し、一貫したアプローチ角度と深さを習得してください。針先に気泡がないこと、および心房球(bulbus)が組織を切り裂くことなくしっかりと結ばれていることを確認してください。また、記録に進む前に、細胞が棒状で、滑らかで完全な膜を持っていることを確認してください(一部の細胞でかすかな横紋が見える場合があります)。球状または顆粒状の細胞は破棄してください。すべての溶液が新しく調製され、pH調整が正しく行われているか確認してください。ピペット抵抗が推奨範囲(2.0–3.0 MΩ)にあることを確認してください。記録中は、上述のアンプパラメータを確認し、補正後のアクセス抵抗が10–12 MΩを超えないこと、カレントクランプモードでの静止膜電位が−70 mVより正側であること、および細胞が安定したギガシールを形成していることを確認してください。
それにもかかわらず、本プロトコルにより、パッチクランプ記録やその他のアプリケーションに適した高品質な細胞を安定して得ることができ、N. furzeriが心細胞老化の実用的なモデルであることが確立されました。N. furzeriは、心老化研究において従来の哺乳類モデルよりも明確な利点を持っています。飼育可能な脊椎動物の中で最短の寿命を持つため、同様の生物学的年齢に達するまで18~24か月を要するマウスモデルと比較して、実用的な期間内で心老化の縦断的研究が可能です15。短寿命であるにもかかわらず、電気生理学的リモデリング、立ち上がり速度の低下を伴う活動電位持続時間の維持、および重要なイオン電流のダウンレギュレーションなど、脊椎動物の心老化における主要な特徴を示します6。
既存の心筋細胞単離法との比較
生存可能な心室心筋細胞の酵素的単離は、幅広い種における単一細胞電気生理学の確立された前提条件となっています。哺乳類において、標準的な手法は、制御された圧力と温度条件下で、無カルシウム緩衝液に続いて酵素含有溶液(通常はコラゲナーゼとプロテアーゼ)を用いて、完全な心臓に大動脈から逆行性灌流を行う方法に基づいています。この戦略により、冠状動脈系を通じて酵素を均一に届け、血液を効率的に洗い流し、心筋を比較的穏やかに解離させることができ、高解像度のパッチクランプ記録に適した棒状の心筋細胞を大量に得ることが可能になります16,17。
しかしながら、硬骨魚類では、心臓の解剖学的構造および哺乳類に匹敵する冠動脈系の欠如により、重要な修正が必要となります。心血管研究で最も広く用いられている小型魚類モデルの一つであるゼブラフィッシュにおいて、心室心筋細胞を正常に単離するには、酵素溶液中で心臓全体を比較的長時間消化させる手法に基づいています8,9. これらのプロトコルでは、摘出した心臓を酵素溶液の液滴または少量の中へ直接移し、室温または種に適した温度でインキュベートした後、機械的なトリチュレーション(破砕)を行い、個々の細胞を遊離させます。このアプローチにより、主要なイオン電流の記録が可能な、生存した横紋心筋細胞が得られることが示されています11。
その有用性にもかかわらず、バッチ消化法を極めて小さい心臓や特に脆弱な心臓に適用する場合、いくつかの制限があります。第一に、酵素への曝露制御が不十分である点です。心室の外層は内層よりも高い有効酵素濃度に長時間曝露されるため、消化が不均一になり、未消化および過消化の細胞が混在する可能性があります。第二に、酵素溶液への浸漬時間が長くなると、特に酵素バッチによって活性が異なる場合や心臓が極めて小さい場合に、過消化のリスクが高まります。第三に、血液の洗浄は主に受動的な拡散と緩やかな手動での洗浄に依存しているため、小型の硬骨魚類心室の狭い腔内空間を完全に洗浄するには不十分である可能性があります。
カルシウムフリー処理、酵素消化、および緩やかなトリチュレーション(しごき)という一般的原則は維持しました。ただし、本研究では動脈球をカニュレーションし、心室腔に直接灌流させることで溶液の投与方法を変更しました。この手法により、消化前に心室腔から血液を洗浄し、心臓を移動させることなく溶液を切り替え、心室壁が緩み始めた時点で酵素処理を終了させることが可能になります。これらの変更は、小さく繊細なN. furzeriの心臓において特に重要であり、酵素溶液への長時間浸漬は過剰な消化を招き、細胞の品質を低下させる可能性があるためです。
今後の応用
本分離法は、今後の研究にいくつかの道を開くものである。第一に、N. furzeri心筋細胞における活動電位の形態、およびイオン電流密度、キネティクス、電位依存性の加齢に伴う変化を体系的に特性評価することが可能となり、本種における心臓老化に関する最近の分子生物学的および組織学的記述2,3,4,5を補完することができる。第二に、このプロトコルを薬理学的ツールと組み合わせることで、寿命または健康寿命を調節する介入が、単一細胞レベルで心臓電気生理学にどのような影響を与えるかを検証できる。第三に、単離したN. furzeri心筋細胞は、パッチクランプ記録以外の用途にも利用可能であり、イオンチャネル発現および翻訳後修飾の加齢に伴う変化の分子解析(qPCR、RNA-seq、プロテオミクス)、免疫細胞化学的染色、およびサルコメア構造の高解像度イメージングなどが含まれる。最後に、ここで述べた方法論的枠組みは、心臓のサイズと解剖学的構造が類似している他の小型の真骨魚類モデルに適応させることができ、それによって心臓老化研究のトランスレーショナルモデルとしてのN. furzeriの有用性を拡張できる。
開示事項
著者らは、競合する資金的利益がないことを宣言します。
謝辞
本研究は、ロシア科学財団(Grant No. 22-14-00075)の支援を受けて行われました。また、動物の繁殖および飼育において助力いただいたAndrei Nikiforov氏に感謝いたします。 Nothobranchius furzeri 本研究で使用した集団。
材料
| 名前 | 会社 | カタログ番号 | コメント |
|---|---|---|---|
| 1 mLインスリン用シリンジ | 医療目的 | 939863 | |
| 10 mLシリンジ | 常州金龍医療プラスチック器具有限公司 | - | |
| 100 mmペトリ皿 | SARSTEDT | 83.3902 | |
| 100 μL マイクロピペット | Thermo Scientific | 4640040 | |
| 35 mm組織培養ディッシュ | SPL LIFE SCIENCES | 11035 | |
| 3方路止水栓 | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| 500 μL チューブ | Eppendorf | EP0030124537-500EA | |
| 5-200 μL チップ | Deltalab | 200009 | |
| 増幅器 | 分子デバイス | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| ホウケイ酸ガラスキャピラリー | Sutter Instrument | B150-110-10 | |
| ウシ血清アルブミン | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H2O | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| コラゲナーゼ 1A 型 | Sigma-Aldrich | C9891 | |
| 塩化セシウム | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| ディスペンシングニードル (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| グルコース | ヘリコン | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| 倒立顕微鏡 | ニコン | - | Eclipse Ti-S |
| 塩化カリウム | Chimmed | 00000000089 | |
| KH2PO4 | ヘリコン | SRL-90654-500G | |
| KOH | ヘリコン | SRL-38630-1KG | |
| MgATP | マックリン | A922363 | |
| MgCl2*6H2O | ヘリコン | Solarbio M8161 | |
| MgSO4*7H2O | ヘリコン | SRL-74440-500G | |
| マイクロマニピュレーター | リアルワールドデータ(RWD) | MM-500 | |
| 眼科顕微手術用鉗子 | CILITA | F-111T | |
| 顕微鏡下眼科手術用剪刀 | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | ヘリコン | H-1418-1.0 | |
| NaOH | ヘリコン | SRL-13913-500G | |
| ニフェジピン | Sigma-Aldrich | N7634 | |
| 灌流システム | バイオテクノロジー | バイオ_4_p | |
| ピペットプラー | ナリシゲグループ | PC-10 | |
| シリコンチューブ(d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| スタンド | NV-lab | 00000034085 | |
| 実体顕微鏡 | Labkompleks LCC | 10557 | |
| タウリン | Acros Organics | 166545000 | |
| 塩化テトラエチルアンモニウム (TEA) | Merck | 822148 | |
| テトロドトキシン | Tocris Bioscience | 1078 | |
| トリプシン | Sigma-Aldrich | T0303 | |
| WinWCPソフトウェア | ストラスクライド大学 | - | V5.7.5 |
参考文献
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
再版と許可
この記事は公開されました
動画は近日公開