염증성 세포 신호 분자인 산화질소(NO)의 수준은 일반적으로 Griess 시약을 사용하여 분석합니다. 이 프로토콜에서는 간단하고 정량화할 수 있으며 반복 가능한 방법으로 NO의 분비를 검출하기 위해 살아있는 초파리 뇌 조직을 사용하여 변형된 Griess 분석을 만들었습니다.
방법 논문
Drosophila Neuroinflammatory Response에서 산화질소 수치의 새로운 전체 조직 정량 분석
이 논문에서
요약
초록
신경염증은 중추신경계(CNS)의 건강한 기능에 필수적인 복잡한 선천성 면역 반응입니다. 정상적인 조건에서는 유도 인자, 탐지기 및 활성화 인자의 복잡한 네트워크가 뉴런 손상, 감염 또는 기타 면역 침해에 신속하게 반응합니다. 이러한 면역 세포의 염증은 파킨슨병(PD), 알츠하이머병 및 ALS와 같은 신경퇴행성 질환의 병리학과 밀접한 관련이 있습니다. 손상된 질병 상태에서 뉴런 손상을 최소화하기 위한 만성 염증은 면역 세포의 과도한 흥분으로 이어질 수 있으며, 궁극적으로 질병 진행을 악화시킬 수 있습니다. 예를 들어, PD의 특징인 중뇌의 도파민 뉴런 손실은 염증 반응의 과도한 활성화에 의해 가속화됩니다. 파킨슨병의 원인은 대부분 알려져 있지 않지만, 환경 독소에 대한 노출이 산발적인 사례의 발병과 관련이 있습니다. 예를 들어, 제초제 파라콰트는 초파리 멜라노가스터(Drosophila melanogaster)를 포함한 여러 동물 모델에서 파킨슨병과 유사한 병리학을 유발하는 것으로 나타났습니다.여기서, 우리는 초파리의 보존된 선천성 면역 반응을 사용하여 염증 반응 연쇄 반응 및 표적 뉴런 사멸의 활성화에 중요한 세포 신호 분자인 산화질소의 다양한 수준을 검출할 수 있는 분석을 개발했습니다. 파라콰트에 의한 신경 세포 손상을 사용하여 새로운 정량적 분석을 통해 이러한 면역 손상이 신경 염증 자극에 미치는 영향을 평가합니다. 신경독 또는 신경 퇴행에 대한 감수성을 높이는 유전자형에 노출된 파리에서 전체 뇌를 완전히 추출한 다음 세포 배양 배지에서 배양합니다. 그런 다음 Griess 시약 반응의 원리를 사용하여 세포 배양 배지로의 산화질소 분비에서 미세한 변화를 감지할 수 있으며, 기본적으로 간단한 절차로 기본 생체 조직 모델을 생성할 수 있습니다. 이 모델의 유용성은 Drosophila melanogaster의 강력한 유전적 및 분자적 복잡성에 의해 증폭되며, 이 분석은 다른 초파리 조직 또는 다른 작은 전체 유기체 염증 모델에 적용할 수 있도록 수정될 수 있습니다.
서론
신경염증은 광범위한 질병의 병리학과 밀접한 관련이 있는 것으로 밝혀진 복잡한 면역 반응이며, 그 중 대부분은 신경퇴행성 질환입니다. 기저 조건에서 이 다면적인 주위 면역 세포 네트워크는 감염, 플라크 또는 부상에 대한 빠른 반응을 통해 조직 건강을 유지합니다1,2. 포유류 중추 신경계의 신경 염증 반응은 정상적인 노화와 관련된 세포 산화 스트레스와 같은 사소한 모욕 또는 화학 독소에 대한 급성 노출로 인한 뉴런 손상과 같은 주요 공격으로 인해 유발될 수 있습니다. 이 유도가 발생하면 미세아교세포(microglia)로 알려진 식세포 감시 세포가 활성화되어 신경 세포 손상 부위로 이동합니다. 주변부에 존재하는 대식세포 세포와 유사한 이 청소부 같은 면역 세포는 손상된 뉴런 및 성상세포와 함께 정교한 신호 연쇄 반응을 시작하여 일반적으로 강력한 미세아교세포반응 3-7을 위해 미세아교세포와 함께 작용하는 신경교세포를 지원합니다. 일단 활성화되면, microglia는 면역 체계를 자극하고 조직 수복을 승진시키기 위하여 염증의 과정을 시작한다1,8.
파킨슨병(PD), 알츠하이머병, 근위축성 측삭 경화증과 같은 신경퇴행성 질환과 같은 지속적인 모욕 상황에서 만성 염증은 건강한 조직에도 심각한 손상을 일으킵니다. 최근 연구에 따르면 면역 체계의 이러한 지속적이고 공격적인 반응은 실제로 질병 상태를 개선하기보다는 악화시키는 과도한 흥분 반응으로 이어질 수 있습니다9-11.
초파리 멜라노가스터에서 선천성 면역 반응은 유전적으로 잘 보존되어 있습니다. 초파리는 진정한 적응 면역 네트워크는 없지만 혈구로 알려진 식세포를 포함하는 정교한 선천성 면역 체계를 유지하고 있습니다. 이러한 면역 세포는 이전에 손상 부위로 이동하는 대식세포 유사 세포로 확인되었으며12,13, 패혈성 쇼크14, 기생충유입 15 또는 바이러스 감염16 중에 식세포작용을 겪습니다.
중요한 것은 포유류 대식세포와 마찬가지로 식세포 혈구는 산화질소 합성효소(NOS)를 발현하고 초파리 면역의 중요한 신호 구성 요소인 산화질소(NO)를 생성한다는 것입니다15,16. 그러나 이러한 모든 연구는 배아 발달 과정과 유충에서만 혈구 반응을 입증할 수 있었습니다.
우리 연구실은 초파리 성인의 뇌에서 이전에 알려지지 않은 현상인 강력한 혈구 매개 신경염증을 관찰했다17. 이 반응은 독성 물질인 파라콰트에 대한 노출을 통해 유도되었습니다. 미국 국립보건원(National Institutes of Health)의 역학 연구에 따르면 널리 사용되는 제초제가 인간의 PD 발병에 대한 잠재적 위험 요인으로 확인되었습니다18. 포유류 모델에서 파라콰트 치료를 조사한 연구는 이미 신경독성 특성을 검증했으며 제초제가 운동 이상 및 선택적 뉴런 손실과 같은 파킨슨병 증상을 유발하는 것으로 나타났습니다19-21. 초파리에서 파라콰트의 치료는 PD 병리학과 일치하는 도파민성 뉴런 사멸뿐만 아니라 광범위한 파킨슨병 행동 표현형을 유발한다22. 이러한 신경염증 반응과 관련된 메커니즘 및 유전적 요인은 아직 초파리에서 완전히 밝혀지지 않았지만, 우리는 신경퇴행 동안 NOS의 보존된 유도를 관찰했습니다.
이 방법을 사용하여 신경독성 민감성이 알려진 돌연변이 유전자형을 사용하여 덜 극적이기는 하지만 유사한 신경염증 반응을 추가로 감지했습니다. 유전자 펀치에 의해 암호화되는 GTP 사이클로하이드롤라제는 BH4의 생합성에서 최초이자 속도 제한 단백질이며, 이는 NOS23,24에 필요한 보조 인자로 작용합니다. 기능 상실 돌연변이 PuZ22는 염증 반응의 감소와 파라콰트25에 대한 감수성 증가를 유발합니다. 이 프로토콜을 통해 우리는 이러한 유전적 변이에 의해 유도된 산화질소 수준의 상대적으로 미묘한 변형을 정량화할 수 있었습니다.
샘플에서 NO를 검출하기 위해 NO 수준을 측정하기 위해 널리 사용되는 비색 방법인 Griess 시약을 사용합니다. 이 시약은 산화질소 생산의 두 가지 최종 생성물 중 하나인 아질산염의 존재를 검출하여 상대적 NO 풍부도를 간접적으로 측정합니다. Griess 시약을 사용하는 기존 아질산염 검출 프로토콜은 주로 시험관 내 분석 또는 세포 배양에 적용되었으며, 여기서 NO는 배양 배지로 확산됩니다. 우리는 처음에 미정제 초파리 머리 균질액25에서 NOS를 검출하기 위한 Griess 시약 기반 방법을 개발했습니다. 그러나 우리는 그 방법이 변경된 조건에 따라 다소 가변적이라는 것을 발견했는데, 아마도 전체 머리 조직에서 NO의 불안정성, 높은 반응성 및 낮은 상대 농도 때문일 것입니다. 따라서 우리는 NOS 활성을 정량화하는 데 더 큰 민감도와 신뢰성을 허용하는 세포 배양 프로토콜을 기반으로 하는 방법을 개발하고자 했습니다. 여기에서는 Drosophila 유충 Malpighian tubules26에서 NOS를 검출하기 위해 이전에 사용했던 방법과 개념적으로 유사한 방법을 설명합니다. 이 절차에서는 독소 치료 직후 절개된 뇌 전체를 활용하여 염증 반응을 유도합니다. 그런 다음 이러한 샘플을 곤충 배양 배지에서 배양하여 조직의 무결성을 보존하고 Griess 시약 기반 분석의 감도와 신뢰성을 향상시켰습니다.
우리는 사용 가능한 정교한 유전 도구를 사용하여 이 모델이 동적 염증/신경 퇴행 네트워크를 조사하기 위한 유망한 유틸리티 역할을 할 수 있을 것으로 기대합니다. 신경염증 반응의 활성화와 상대적 강도를 정확하게 정량화할 수 있는 능력을 갖춘 이 새로운 분석법은 분비된 신경염증 마커를 검출할 수 있는 1차 조직 배양을 생성합니다. 이 방법은 염증의 작은 유기체 모델에 이전에는 부족했던 전체 유기체 또는 살아있는 조직 샘플을 신속하게 분석할 수 있는 저렴하고 매우 민감한 기술을 제공합니다.
프로토콜
1. 파라콰트 노출
- 약 35명의 암컷과 15명의 수컷으로 구성된 동등한 배양 밀도 하에서 25°C의 표준 초파리 배양 배지에서 테스트 파리의 배양을 유지합니다.
- 급유 챔버를 준비하려면 면 바로 위에 여과지가 있는 빈 바이알 바닥에 소량의 흡수성 면을 놓습니다.
- 성인 남성은 감기 혼수 상태 또는 CO 2를 사용하여 3-5 일 후에 마취합니다. 여기에 설명된 실험의 경우 유전자형 y w1118의 수컷을 사용합니다.
- 냉수 상태 분리의 경우, 파리가 들어 있는 영양 공급용 바이알을 두드린 다음 마개를 빠르게 제거하고 파리를 깨끗하고 빈 바이알로 직접 옮겨 라벨이 제대로 붙었는지 확인합니다.
- 파리가 빈 음식 바이알에 성공적으로 옮겨지면 바이알을 두드린 다음 즉시 얼음 양동이에 5분 동안 또는 파리가 기절할 때까지 넣습니다.
메모: 바이알을 얼음에 완전히 담그지 마십시오. 이로 인해 물이나 습기가 바이알에 들어가 파리가 익사할 수 있습니다. 또 다른 예방 조치로 얼음 양동이에 녹인 얼음보다 신선한 얼음을 사용하십시오.
메모: 각 분석에 필요한 파리의 수에 세심한 주의를 기울이고, 가능한 경우 인적 오류(예: 먹이 공급 또는 이동 중 파리가 탈출하는 경우)가 발생할 경우 예방 조치로 각 그룹에 파리를 추가합니다. 예를 들어, 산화질소 검출 분석법은 샘플 세트당 20개의 파리 뇌가 필요하므로 먹이를 줄 때 해부 기술 수준과 효율성을 고려합니다(즉, 초보자는 이송 또는 해부 오류가 발생할 경우 20마리 이상의 파리를 설정해야 함).
- 파리가 마취되면 위에서 준비한 대로 각 그룹을 해당 먹이 바이알로 옮깁니다.
- 파리가 먹이 바이알에서 완전히 깨어난 후 1.5시간 동안 굶겨 죽인 후 아래에 설명된 용액을 준비합니다.
- 이중 증류수 100ml에 자당 5g을 첨가하여 5% 자당(대조 용액)의 원액을 준비합니다. 완전히 녹을 때까지 저어주고 4 °C에서 보관하십시오 .
메모: 5% 자당 원액을 모든 후속 공급 용액의 용매로 사용합니다. - 5% 자당을 희석제로 사용하여 10mM 파라콰트 원액을 준비하고 4°C에서 보관합니다. 필요에 따라 연속 희석액을 사용하여 다른 모든 농도를 준비합니다.
주의: 파라콰트는 독성이 매우 강합니다. 안전 지침 및 적절한 취급/폐기에 대해서는 MSDS를 참조하십시오. - 5% 자당을 희석제로 사용하여 N-니트로-L-아르기닌 메틸 에스테르 염산염(L-NAME), N-니트로-D-아르기닌 메틸 에스테르 염산염(D-NAME)의 10mM 원액을 준비하고 4°C에서 보관합니다. 파라콰트를 사용한 L-NAME 또는 D-NAME의 주화의 경우, 파라콰트 농도와 함께 각 화합물을 1:1 비율로 투여합니다. 필요에 따라 연속 희석액을 사용하여 다른 모든 농도를 준비합니다.
메모: 준비 직후 모든 용액을 필터링합니다. 파라콰트, D-NAME 및 L-NAME 스톡은 실험의 일관성을 보장하기 위해 준비 후 1주일 이내에 사용해야 합니다. - 여과지에 공급 용액의 하루 150μl(또는 수유 시간에 따라 그 이하)를 피펫으로 가열하고 파리가 익사하거나 탈출하지 않도록 주의하십시오.
- 이중 증류수 100ml에 자당 5g을 첨가하여 5% 자당(대조 용액)의 원액을 준비합니다. 완전히 녹을 때까지 저어주고 4 °C에서 보관하십시오 .
2. 생존/사망률 분석
- 앞에서 설명한 대로 공급 챔버를 설정합니다.
메모: 건조를 방지하기 위해 바이알당 최소 3겹의 여과지를 사용하십시오. - 각 바이알에 3-5일 후에 수컷 파리 10마리를 놓고 위의 지시에 따라 여과지가 밤새 마르지 않도록 주의하면서 먹이를 줍니다.
메모: 바이알을 직사광선을 피하고 실온에서 유지하여 용액의 증발을 가속화하지 않도록 하십시오. - 다음 날("Day 1"로 지정)부터 10일 연속 하루에 두 번씩 바이알당 죽은 파리의 수를 기록했습니다.
메모: 점수 산정과 수유를 매일 특정 시간으로 조절하여 변동을 줄이고 일관성을 높입니다. - 모든 그룹에 대해 최소 3개의 독립 반복실험을 사용하여 평균 생존을 계산합니다.
3. 성체 파리의 뇌와 배양
- 해부하기 전에 Grace's Insect Medium의 50μl를 96웰 마이크로타이터 플레이트의 적절한 수의 웰(각 샘플 세트당 웰 1개 + "블랭크"/대조군용 웰 1개)에 피펫팅하고 적절하게 라벨을 부착합니다. 사용할 때까지 플레이트 뚜껑으로 덮으십시오.
메모: 또는 원하는 경우 멸균 원심분리기 튜브를 사용할 수도 있습니다. - 1.3.1-1.3.2 단계에 설명된 대로 콜드 코마를 사용하여 하나의 샘플 세트의 파리를 마취합니다.
- 파리가 완전히 마취되면 현미경 슬라이드에 파리 몇 마리를 놓습니다
메모: 해부에 경험이 없는 경우 파리의 작은 부분 집합으로 시작하십시오. - 집게와 수술용 칼날 또는 두 개의 집게를 사용하여 해부 현미경으로 파리 머리의 목을 베고, 완료되면 파리 시체를 버립니다.
- 소량의 PBS를 해부 버퍼로 사용하십시오. 건조는 피해야 합니다.
- Williamson & Hiesinger (2010)27의 방법에 따라 전체 뇌를 추출하고 큐티클 미립자와 뇌가 아닌 조직(예: 눈 색소 조직)을 조심스럽게 제거합니다(그림 1 참조).
- 절개된 뇌를 적절하게 라벨링된 우물로 옮기고 우물당 최소 20개의 뇌가 있을 때까지 반복합니다.
- 해부 기간 동안 플레이트를 얼음 위에 보관하고 해부 시작과 분석 시작 사이의 총 시간이 20-30분을 초과하지 마십시오.
메모: 각 그룹이 각 우물에 동일한 수를 갖는 한 20개 이상의 뇌를 사용할 수 있습니다. 정확한 판독을 달성하기 위한 최소 뇌 수는 다를 수 있습니다(자세한 내용은 토론 섹션 참조). - 작업 세트가 완료되면 뇌가 가벼운 흔들림으로 25°C에서 6시간 동안 배양하도록 합니다.
- 나머지 모든 그룹에 대해 1.2-1.6단계를 수행합니다.
메모: 각 Sample Set이 완료된 시점 사이의 차이에 따라 배양 종료 시간을 기록하고 조정합니다.
4. 잠복기 중 준비
- 제조업체의 지시에 따라 Modified Griess 시약을 준비하고(표 참조) 사용할 때까지 어두운 곳에 보관하십시오. 필요한 시약의 양은 샘플의 양에 따라 다릅니다. 예를 들어, Griess 시약은 Grace's Medium에 1:1 비율로 추가됩니다(5.5단계). 따라서 샘플 세트당 50μl + 블랭크 대조군의 경우 50μl를 준비해야 합니다.
- 총 8개 농도에 대해 0.78125-100mM 아질산염 범위의 직렬 희석에서 아질산나트륨을 사용하여 아질산나트륨 표준 곡선을 구성합니다.
메모: 이는 시료 농도 및 Griess 시약 활성의 일관성과 정확성을 보장하기 위해 각 실험에 대해 수행되어야 합니다. - 또한 멸균 0.5ml 원심분리 튜브를 준비하고 라벨을 부착하며, 각 처리 그룹마다 2개의 튜브, 대조군에 2개의 튜브를 준비합니다.
5. 아질산염 수준 감지
- 배양 기간이 끝나면 마이크로타이터 웰에서 Grace's Medium(최소 45μl)을 각 그룹에 해당하는 첫 번째 원심분리 튜브 세트로 옮깁니다.
메모: 앞서 언급했듯이 각 해부 세트 사이에 소요되는 시간으로 인한 잠복기의 차이를 고려해야 합니다. - 선택 단계: 이 단계에서 질산염 환원효소와 NADPH를 추가하여 질산염을 아질산염으로 변환합니다. (이 단계는 표시된 결과에 대해 수행되지 않았습니다)
메모: 원하는 경우 질산염/아질산염 분석은 분석 키트에 설명된 대로 샘플 상등액의 분취량으로 수행할 수 있습니다. - 2분 동안 부드럽게 원심분리(약 8,175 x g)하여 우물에서 흡인되었을 수 있는 뇌 또는 조직 미립자를 펠릿으로 만듭니다.
- 첫 번째 원심분리기 튜브 세트에서 두 번째 해당 튜브 세트로 상등액 30μl를 피펫팅하여 샘플을 회전시킨 후 펠릿을 방해하지 않도록 합니다.
- Griess 시약을 1:1 비율로 첨가하고 5-10분 동안 배양한 후 30분 이내에 548nm 흡광도에서 NanoDrop 분광 광도계를 사용하여 분석합니다.
참고: 샘플은 620nm 기준 파장으로 540nm의 흡광도 파장에서 마이크로플레이트 리더를 사용하여 분석할 수도 있습니다. - 각 판독값을 최소 3회 이상 반복하고 판독값의 평균을 구합니다.
메모: 6-10회 판독할 때마다 기계를 "비워두고" 완료하기 전에 빈 컨트롤(뇌가 없는 Grace's Medium plus Griess 시약)을 표준편차로 사용할 샘플로 실행하십시오. - 4.2단계에서 생성된 아질산염 표준 곡선을 사용하여 각 샘플의 상대적 아질산염 수준을 계산합니다.
- 미지의 농도를 계산하려면 먼저 y축의 흡광도(즉, 광학 밀도)를 사용하고 x축의 농도를 사용하여 표준 곡선에서 알려진 농도의 값을 플롯합니다.
- 모든 표준 곡선 값이 그래프로 표시되면 최적선의 기울기를 찾고 x.
에 대한 방정식을 풉니다. 메모: 연속 희석이 제대로 수행되면 최적 맞춤 라인은 선형이거나 매우 가까워야 합니다. 그렇지 않은 경우 표준 곡선을 재구성합니다. 문제가 지속되면 모든 용액, 매체 및 시약이 만료되었는지 확인하고 장비가 제대로 작동하고 감지 범위 내에 있는지 확인하십시오. - 다음으로, y에 대한 흡광도 값을 대체하고 농도를 나타내는 x를 풀기만 하면 됩니다.
NanoDrop 장비 사용에 대한 추가 정보는 Desjardins et al. 2009 및 Desjardins & Conklin, 201028,29를 참조하십시오.
6. 웨스턴 블롯
- 위에서 설명한 대로 조건당 30마리의 파리를 먹이고 가급적이면 액체 질소와 볼텍싱을 사용하여 머리의 목을 베십시오.
- 사용 직전에 2mM 디티오트레이톨(DTT)과 1x 프로테아제 억제제 칵테일을 첨가한 60μl RIPA 완충액의 얼음 위에서 머리 전체를 균질화합니다.
- 4°C에서 8,175 x g에서 5분 동안 샘플을 스핀다운합니다.
- 상층액을 새 원심분리기 튜브로 옮깁니다.
- 샘플을 부드럽게 혼합하고 6.5μl 4x LDS 샘플 버퍼와 2.5μl 500mM DTT.
가 들어 있는 원심분리 튜브에 상등액 17μl를 피펫팅합니다. 메모: 남은 샘플을 액체 질소에 급속 동결하고 사용할 때까지 -20 °C에 보관하십시오. - 샘플을 잘 혼합하고 70 ° C에서 10 분 동안 가열하고 중간 배양 한 번 혼합합니다.
- 가열하는 동안 내부 챔버에 500μl 항산화제가 포함된 프리캐스트 4-12% NuPage Bis-Tris 미니겔, MOPS SDS 실행 버퍼를 사용하여 폴리아크릴아미드 겔 전기영동(PAGE) 실행 장치를 조립합니다.
- 샘플을 빠르게 탈수하고 식히십시오.
- 각 레인에 25μl를 로드합니다.
- 겔 전기영동을 얼음 위에서 200V로 실행하거나 4°C에서 45분 동안 또는 겔이 완성될 때까지 실행합니다.
- 전기영동이 완료되면 iBlot Transfer Stacks를 사용하여 겔에서 분리된 단백질을 니트로셀룰로오스 멤브레인으로 전달하고 Western Blot Detection Kit를 사용하여 신호를 검출합니다.
메모: 사용된 항체는 다음과 같다: 1차 항체 mouse α-nNOS (1:250), mouse α-syntaxin (1:200); Western Blot Detection Kit (마우스)에 제공된 2차 항체(1:250). - 웨스턴 블롯 이미징 시스템 또는 X-ray 필름을 사용하여 화학발광 신호를 감지합니다.
참고: 모든 표준 면역 블롯 검출 및 정량화 방법을 블롯 분석에 사용할 수 있습니다.
결과
Paraquat은 생쥐19, 쥐20 및 초파리22와 같은 수많은 동물 모델에서 파킨슨병 유사 병리와 일치하는 신경 퇴행을 유도하는 것으로 밝혀졌습니다. 우리는 이전에 항염증 항생제인 minocycline을 paraquat과 함께 투여했을 때 생존 기간이 연장되고, 활성 산소종의 생성이 감소하며, 도파민성 신경세포 사멸이 억제된다고 보고한 바 있습니다25. 따라서 minocycline이 염증을 억제하는 작용을 하므로, 우리는 염증 반응 활성화의 핵심 단백질인 NOS와 paraquat 독성 조절에서 NOS의 역할에 대해 조사하기 시작했습니다.
1.25에서 10 mM 사이의 파라콰트 농도를 사용하여, 유효 치사량과 독성 처리 범위를 설정하기 위해 파라콰트 독성 곡선을 작성하였습니다(그림 2A). 또한 20 mM 및 40 mM의 파라콰트 농도에 따른 영향을 분석하였으나, 이러한 고농도에서는 독성이 너무 급격하여 해당 산화 스트레스 요인에 대한 세포 반응을 정확하게 평가할 수 없었으므로, 본 보고서에는 이 농도들에 대한 결과를 포함하지 않았습니다. 경쟁적 NOS 억제제인 L-NAME과 NAME의 비활성 이성질체인 D-NAME을 사용하여, 성체 수컷 초파리에 파라콰트와 NAME 이성질체 중 하나를 함께 처리하였습니다. 파라콰트와 L-NAME을 함께 처리한 초파리는 파라콰트 섭취로 인한 수명 단축이 유의미하게 회복된 반면, 파라콰트와 D-NAME을 함께 처리한 초파리는 생존율 향상을 보이지 않았으며(그림 2B), 이는 NOS 억제를 통해 염증을 억제함으로써 파라콰트 처리 초파리의 생존력이 향상되었다는 가설을 뒷받침합니다.
NOS 매개 파라콰트 반응을 추가로 검증하기 위해, 파라콰트 노출 직후 NOS 단백질 수준의 변화를 측정하였습니다. NOS 단백질 수준은 파라콰트 농도에 의존적으로 증가하였습니다(그림 3A). 10 mM 파라콰트를 6~30시간 동안 처리했을 때, 노출 시간이 증가함에 따라 초기에 증가했다가 이후 감소하는 양상을 관찰하였으며(그림 3B), 이는 저희가 사용한 Griess 분석법 변형법에서 관찰된 아질산염 수준의 패턴과 일치합니다(그림 5B). 이러한 결과는 파라콰트 처리가 NOS 유도를 일으키며, NOS 억제 또는 L-NAME이나 미노사이클린 처리가 부분적인 보호 효과를 제공한다는 저희의 이전 보고와 일치합니다17,25.
그림 4A는 파라콰트(paraquat) 농도의 증가와 NO의 분비 및 검출로 정의되는 염증 반응 정도 사이의 선형 관계를 보여줍니다. 기저 수준에서, 이형접합체 Punch 돌연변이체는 NO를 약간 더 낮은 수준으로 분비했으며, 이는 이전의 검출 방법으로는 판단하기 어려울 정도로 미미한 차이였습니다. 파라콰트를 섭취했을 때, Punch 돌연변이체에서 NO 수치의 뚜렷한 증가가 관찰되었으나, 이는 야생형 처리군 파리보다 현저히 낮았습니다(그림 4B). 처리되지 않은 수준에서의 변동은 매우 미미했음에도 불구하고, 야생형과 Punch 파리의 상대적 수치는 정확하고 재현 가능하게 정량화될 수 있었습니다.
독소나 화학 물질을 다룰 때는 노출 시간 곡선과 농도 기반 독성 곡선을 모두 설정하는 것이 매우 중요합니다. 이러한 조건들이 분석의 민감도를 크게 변화시킬 수 있기 때문입니다. 예를 들어, 5 mM paraquat으로 처리했을 때는 노출 24시간 후에 NO 검출이 최대치에 도달한 반면(그림 5A), 10 mM paraquat에 노출시켰을 때는 더 빠른 유도(12시간에 최대치 도달)가 나타났으나, 장기 노출 시 활성 감소 또한 더 빠르게 진행되었습니다(그림 5B). 빠른 유도를 보이는 높은 농도가 더 유리해 보일 수 있지만, 최대화된 반응은 뉴런과 잠재적으로 혈구 세포(hemocyte) 모두의 사멸을 가속화하여 재현성을 확보하기 어렵게 만들 수 있습니다.
NO 분자는 불안정하며 반응성이 매우 높습니다. 따라서 성공적인 분석을 위해서는 NOS의 지속적인 유도와 NO의 빠른 회전율(turnover) 사이의 최적의 균형을 제공하는 배양 조건이 포함되어야 합니다. 최적의 배양 조건을 정의하기 위해, 우리는 Griess 시약을 첨가하기 전 적출된 뇌를 배양액에서 배양한 시간이 미치는 영향을 평가했습니다. 그 결과, 실온에서 6시간 동안 배양했을 때 후속 Griess 반응에서 아질산염 수치가 최대치가 됨을 확인했습니다.그림 5C다양한 염증 모델에서 검출을 최적화하기 위해 배양 기간의 조정이 필요할 수 있습니다. 해당 과정은 매우 역동적이므로, 신뢰할 수 있고 정확한 결과를 얻기 위해서는 분석 대상이 되는 특정 유기체, 유전자형 및 조직에 맞는 모든 최적 파라미터를 세심하게 설정하는 것이 필수적입니다. 특히 유전적 변이체 및 형질전환 발현 모델의 경우, 특히 발달 단계나 성체의 연령과 관련하여 상당한 최적화 과정이 필요할 것으로 예상됩니다.
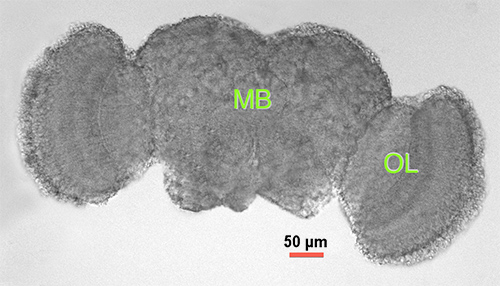
그림 1. Drosophila 성체 뇌. 우화 후 2-3일 된 성체 수컷 뇌의 해부 후 광학 현미경 사진. MB = 중뇌(중앙 피질), OL = 시엽.
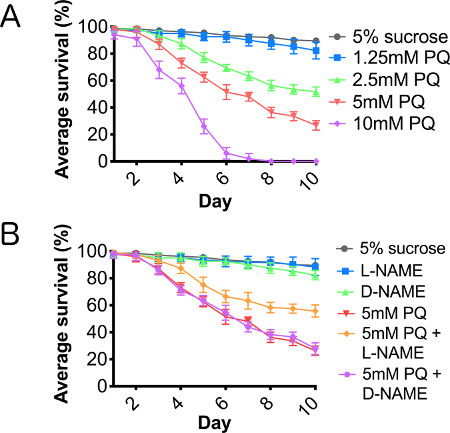
그림 2. Paraquat은 nitric oxide synthase를 통해 매개되어 용량 의존적으로 수명을 감소시킨다. 5% sucrose(대조군) 및 5% sucrose 내 1.25-10 mM 농도의 paraquat 연속 희석액을 섭취한(A) 야생형 수컷 초파리와, paraquat을 L-NAME 또는 D-NAME과 함께 10일 연속으로 섭취한(B) 초파리. N = 10마리씩 3개 그룹. 오차 막대 = SEM.
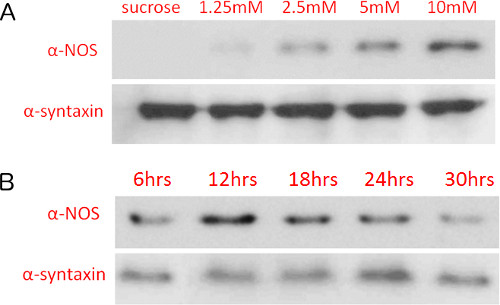
그림 3. 파라콰트 농도와 노출 시간이 증가함에 따라 산화질소 합성효소 단백질 수준이 증가한다.다양한 (A) 파라콰트 농도(12시간 노출)와 (B) 10 mM 파라콰트의 다양한 노출 시간으로 처리한 초파리의 산화질소 합성효소 수준을 면역블롯으로 검출한 결과이다. 단백질 수준은 화학발광 및 X-선 필름 노출을 이용하여 니트로셀룰로오스 막에서 검출하였다.
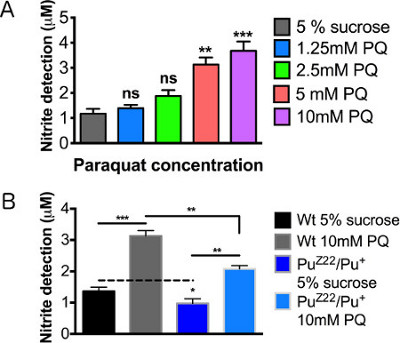
그림 4. 파라콰트 노출 후 일산화질소 검출 수준. 우화 후 2-3일 된 수컷 야생형(WT) 초파리를 12시간 동안 급이한 후 분석하였다. (A) 파라콰트 농도에 따른 농도 곡선. (B) 설탕 대조군과 10mM 파라콰트를 급이한 수컷 Punch 이형 접합체 돌연변이체. N = 그룹당 뇌 20개. 결과는 그룹당 3회 반복 실험의 평균값을 나타낸다. 오차 막대 = SEM. 통계 분석은 Dunnett의 다중 비교 사후 검정을 포함한 일원 분산 분석(one-way ANOVA)을 사용하여 수행되었다 (*, p < 0.05, **, p < 0.01, ***, p < 0.001).

그림 5. 파라콰트 노출 기간 및 조직 배양 시간 변경을 통한 일산화질소 생성 검출 최적화. (A) 5 mM 파라콰트 및 (B) 10 mM 파라콰트로 12시간 처리한 후, 우화 2-3일 차 수컷 뇌의 상대적 일산화질소 수치. (C) 12시간 동안 10 mM 파라콰트를 섭취시킨 후, 조직 배양 기간을 달리하여 측정한 NO 곡선. 유의성 값은 다음을 기준으로 계산됨: (A, B) 각 노출 시간별 5% sucrose 대조군(그래프에 표시되지 않음), (C) 각 배양 시간별 5% sucrose 대조군(그래프에 표시되지 않음). N = 그룹당 뇌 20개. 결과는 그룹당 3회 반복 실험 결과임. 오차 막대 = SEM. 통계 분석은 Dunnett's Multiple Comparison 사후 검정을 포함한 일원분산분석(one-way ANOVA)을 사용하여 수행됨 (*, p<0.05, **, p<0.01, ***, p<0.001).
토론
이 방법은 접근 방식이 간단하지만 NOS 매개 신경염증 수준을 정량화하기 위한 비용 효율적이고 반복성이 높으며 매우 민감한 방법을 제공합니다. 결과 섹션에서 볼 수 있듯이 다양한 유도 모델 또는 유기체에서 반응을 향상시키거나 최적화하기 위해 조정할 수 있는 많은 변수가 있습니다. 그러나 이것은 매우 민감한 시스템이기 때문에 프로토콜의 모든 측면을 신중하게 처리하지 않으면 이러한 변수로 인해 매우 가변적인 결과가 발생할 수도 있습니다. 모델을 사용하여 처음 테스트할 때 화학 물질 농도(그림 4A), 노출 기간(그림 5A 및 5B) 및 배양 기간(그림 5C)을 포함한 변수를 테스트하여 매개변수를 설정하는 것이 좋습니다. 검출 임계값 및 일관성을 달성하는 데 필요한 뇌/조직 샘플의 수와 같은 다른 변수에 유의해야 하며, 이 방법을 유사한 초파리 모델에 적용할 때도 마찬가지입니다. 또한 염증의 연령 의존적 유전 모델에서는 연장된 시점 최적화가 필요합니다.
위에서 언급했듯이 분석의 민감한 특성으로 인해 프로토콜의 불일치로 인해 신뢰할 수 없는 결과가 발생할 수 있습니다. 이를 염두에 두고 모든 장비와 재료는 사용하기 전에 멸균되었습니다. 배양 시간이 짧기 때문에 이 실험에서는 배양 배지에 항생제를 첨가하지 않았습니다. 그러나 프로토콜이 더 긴 배양 시간에 맞게 조정되거나 배양 또는 배지에서 박테리아 성장이 관찰되는 경우 페니실린-스트렙토마이신과 같은 일반적인 배양 항생제를 추가하고 장비를 다시 멸균해야 합니다. 모든 화학 처리 실험과 마찬가지로 모든 그룹이 잘 통제된 조건에서 사육되고 성별과 연령이 일치하며 모든 그룹이 정확히 동일한 먹이 조건을 받도록 주의해야 합니다. 고려해야 할 몇 가지 수유 조건의 예로는 농도의 변화, 공급원에 대한 가용성 및 접근성, 수유 기간 및 수유가 시행되는 시간대가 있습니다. 모든 실험 조건에 대한 자세한 기록과 모델의 자연스러운 공급 패턴에 세심한 주의를 기울이면 변동성을 최소화하는 데 도움이 됩니다. 신경 회로 또는 행동 패턴에 영향을 미치는 돌연변이 또는 형질전환 균주가 사용되는 경우 중요한 제어에는 섭식 행동 모니터링이 포함됩니다.
다시 한 번, 세포 배양 및 용해물에서 유사한 프로토콜을 사용할 수 있지만 이 방법의 주요 장점 중 하나는 조직의 무결성이 유지되므로 뇌 내의 거의 모든 세포 관계가 그대로 유지될 수 있다는 것입니다. 이 시스템은 신경염증 신호 전달 및 세포 분비의 비교적 자연스러운 생체 내 상태를 나타냅니다. 초파리에서 확립된 이 기술은 다른 작은 모델 유기체에 쉽게 맞춤화될 수 있으며 신장 기능을 위한 Malpighian 세뇨관 모델에서 NO 신호 전달에 대한 유사한 적용에 의해 입증된 바와 같이 중추 신경계에 국한되지 않습니다26. 이 프로토콜의 가장 중요한 장점은 연구자 또는 모델 시스템의 요구와 관심에 맞게 이 분석을 조작하고 조정할 수 있다는 것입니다.
화학-유전적 접근법의 조합을 사용하여 이 분석은 염증의 메커니즘, 유전적 구성 요소 및 화학적 조절제를 조사하는 소형 모델 시스템의 능력을 크게 향상시킬 수 있는 잠재력을 가지고 있습니다.
공개 사항
저자는 경쟁하는 재정적 이해관계가 없음을 선언합니다.
감사의 글
이 분석을 개발하는 동안 NanoDrop 분광 광도계를 사용해 주신 Guy 박사님과 Kim Caldwell 박사님께 감사드리며, 비판적인 의견과 제안을 해 주신 J. Gavin Daigle에게도 감사드립니다. 이 방법의 개발은 미국 국립보건원(National Institutes of Health, NS-078728)에서 J.M.O.에 제공한 보조금으로 자금을 지원받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Feeding Chambers | |||
| Empty Drosophila 바이알 | Genesee Scientific | #32-116 | |
| 흡수성 면 | 모든 표준 제품을 사용할 수 있습니다. | ||
| 여과지 | : Fisher | # 09-802-1B | |
| Paraquat 노출 < / em>< / strong> | |||
| Sucrose | Sigma-Aldrich | #S0389 | |
| Paraquat (methyl viologen dichloride hydrate) | Sigma-Aldrich | #856177 | 독성. MSDS 지침 내에서 주의해서 처리하십시오 |
| L-NAME (N-Nitro-L-arginine methyl ester hydrochloride) | Sigma-Aldrich | #N5751 | |
| D-NAME (N-Nitro-D-arginine methyl ester hydrochloride) | Sigma-Aldrich | #N4770 | |
| Dissecting Adult Fly Brains and Incubation | |||
| GraceInsect Medium | Invitrogen | #11605-094 | Grace's Medium은 로트 간 일관성을 높이기 위해 Sf-900 II SFM 또는 Sf-900 III SFM Medium으로 대체할 수도 있습니다. |
| 96웰 플레이트 | Corning | #3596 | 모든 표준 제품을 사용할 수 있습니다. |
| 현미경 슬라이드 | : 모든 표준 제품을 사용할 수 있습니다. | ||
| 수술용 칼날 | Feather | #0197 | 모든 표준 제품을 사용할 수 있습니다. |
| 의료용 핀셋 5 | Dumont | EMS #72877-D | 모든 표준 제품을 사용할 수 있습니다. |
| 10x PBS 버퍼 | OmniPur | #6508 | |
| Detection of Nitrite Levels | |||
| Modified Griess 시약 | Sigma-Aldrich | #4410 | |
| 아질산나트륨 | Sigma-Aldrich | #S2252 또는 #237213 | |
| 단백질 분석 키트 | Bio-Rad | 500-0001 | |
| 큐벳 | 모든 표준 제품을 사용할 수 있습니다. | ||
| 질산염 환원효소 | 선택적 | ||
| NADPH | 옵션 | ||
| Western Blot Analysis | |||
| RIPA 용해 완충액 | Amresco | 97063-270 | |
| dithiothreitol (DTT)- 환원제 | Novex | B0009 | |
| 프로테아제 억제제 칵테일 | Amresco | 97063-082 | |
| 4x LDS 샘플 버퍼 | Novex | B0007 | |
| 프리캐스트 4-12% Bis-Tris 미니겔 | Novex | BG04125BOX | |
| MOPS SDS 러닝 버퍼 | Novex | B0001 | |
| 항산화 | NuPage | NP0005 | |
| iBlot Transfer Stacks (니트로셀룰로오스) | Invitrogen | IB301002 | |
| Western Blot 검출 키트 | Invitrogen | IB711002 | |
| Mouse α-nNOS | BD Biosciences | 611853 | |
| Mouse α-syntaxin | DSHB | 8C3 |
참고문헌
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
재인쇄 및 허가
