특정 유전적 교란이나 독소에 대한 노출은 정상적인 발달 과정을 방해하여 특정 세포 유형의 사멸로 이어질 수 있습니다. 제브라피시 배아에서 전체 마운트 면역형광에 의한 활성화된 Caspase 3 분석은 특이적으로 세포사멸을 겪고 있는 세포의 단계 및 조직 특이적 국소화를 보여줍니다.
방법 논문
활성화된 카스파아제 3을 검출하기 위한 전체 마운트 면역형광에 의한 제브라피시 배아의 세포사멸 분석
이 논문에서
요약
초록
활성화된 Caspase 3(Casp3 분석)을 검출하기 위한 전체 마운트 면역형광은 제브라피시 배아에서 내인성 또는 외인성 세포사멸을 겪고 있는 세포를 식별하는 데 유용합니다. 전체 마운트 분석은 세포사멸 세포의 조직 특이성과 관련된 공간 정보를 제공하지만, 세포사멸을 겪고 있는 정확한 세포 유형을 정확히 찾아내기 위해서는 궁극적으로 절편 및/또는 공동 표지가 필요합니다. 전체 마운트 Casp3 분석은 4세포 단계와 수정 후 32시간 사이의 고정 배아 분석에 최적화되어 있으며 제브라피시 돌연변이 및 변형체 분석, 돌연변이 및 야생형 mRNA의 과발현, 화학 물질 노출을 포함한 여러 응용 분야에 유용합니다. 몇 시간 만에 살아있는 배아에서 세포사멸 세포를 식별할 수 있는 acridine orange 염색과 비교할 때 Casp3 및 TUNEL 분석은 완료하는 데 상당히 더 오래 걸립니다(2-4일). 그러나 세포사멸 세포 형성 및 제거의 동적 특성으로 인해 고정 배아를 분석하면 특정 시점의 여러 샘플에 걸쳐 세포사멸 세포를 정확하게 비교할 수 있습니다. 우리는 또한 Casp3 분석이 비용 및 신뢰성 측면에서 전체 마운트 TUNEL 분석에 의한 세포사멸 세포 분석보다 우수하다는 것을 발견했습니다. 전반적으로 Casp3 분석은 초기 제브라피시 배아에서 세포사멸 세포를 분석할 수 있는 강력하고 재현성이 높은 분석법을 나타냅니다.
서론
여기에서는 초기 제브라피시 배아에서 전체 마운트 면역형광을 수행하여 활성화된 Caspase 3(이하 Casp3 분석이라고 함)가 있는 세포를 검출하는 방법을 설명합니다. 이 방법의 전반적인 목표는 4세포 단계에서 32시간 수정(hpf)까지 제브라피시에서 세포사멸 세포의 상대적 풍부도와 위치를 식별하는 것입니다.
내인성(mitochondria-mediated) 및 외인성(death-receptor-mediated) 자가사멸 경로 모두 caspasecascade 1-2의 활성화를 통해 세포 사멸을 매개합니다. 개시자 캐스파제는 일반적으로 세포 내에서 단량체로 존재하며, 일단 pro-apoptotic 신호에 대한 반응으로 경로 특이적 플랫폼에 모집되면 활성화된 이량체가 됩니다. 그런 다음 활성화된 개시제 카스파제(Caspase 9, 내재적 경로 및 카스파제 8; 외적 경로)는 사전 이합체화된 비활성 효과기 카스파제(Caspase 3, 6, 7)를 절단하여 활성 이종이질체를 형성합니다. 그런 다음 활성 효과기 카스파제는 특정 테트라펩타이드 잔기로 세포 표적을 절단하여 염색질 응축 및 막 기포와 같은 세포사멸의 초구조적 특징에서 절정에 이르는 특정 단백질 분해 파괴를 시작하고, 면역 침묵 방식으로 식세포에 의해 삼켜지기 위해 세포의 포장을 매개하는 세포 표면 신호를 시작합니다. 포유류 세포에서 active effector caspase는 내적 경로와 외적 경로1-2를 통해 세포사멸을 매개하는 세포 분열 이벤트의 대부분을 수행하는 것으로 생각됩니다. 본원에 기재된 프로토콜은 Caspase 3의 절단된 헤테로테트라메라 형태에 특이적으로 결합하는 항체를 사용하지만, 비활성 Caspase 3 이량체는 결합하지 않습니다.
Casp3 분석의 장점 중 하나는 전체 배아의 맥락에서 세포사멸 세포의 공간 분포를 시각화할 수 있다는 것입니다. 따라서 관심 조직에서 세포사멸 세포의 존재 여부를 검사할 수 있으며, 특정 세포 유형을 표지하는 항체 또는 형광 형질전환 균주가 존재하는 경우 공동 표지 실험을 통해 세포사멸을 겪고 있는 세포의 정확한 정체성을 정확히 찾아낼 수 있습니다. 몇몇 그룹은 활성화된 Caspase 3을 제브라피시 배아에서 세포사멸을 위한 마커로 성공적으로 사용했습니다(예: 3-7). 제브라피시 배아에서 세포사멸 세포를 식별하기 위한 추가 전체 마운트 기술에는 TUNEL 분석8 및 아크리딘 오렌지(AO) 염색9가 포함됩니다. 우리는 제브라피시 배아에서 세포사멸 세포를 확인하기 위해 세 가지 방법을 모두 사용했습니다4,6,10.
TUNEL(Terminal deoxynucleotidyl transferase dUTP nick end labeling) 염색은 림프구에서 VDJ 재조합 동안 DNA의 3' 하이드록실 말단에 뉴클레오티드를 추가하는 데 사용되는 TdT(Terminal deoxynucleotidyl Transferase) 효소를 이용합니다11. TdT는 dUTP-비오틴을 추가하여 주로 세포사멸 세포에 풍부한 DNA의 3' 하이드록실기를 유리시킵니다. 그런 다음 조직을 avidin-peroxidase에 노출시키고 기질 3-amino-9-ethylcarbazole을 첨가하면 apoptotic 세포를 염색합니다. TUNEL 분석은 야생형 제브라피시 조직에서 배아 발달 중 세포사멸 세포에 대한 광범위한 분석을 수행하는 데 사용되었습니다12. Casp3 분석과 유사하게 TUNEL 분석은 고정 배아에만 수행됩니다. 우리는 Casp3 분석이 TUNEL 분석보다 더 일관되고 저렴하다는 것을 발견했습니다.
AO 염색은 초파리13에서 세포사멸 세포를 특이적으로 확인하기 위한 메커니즘으로 처음 설명되었습니다. AO는 괴사가 아닌 세포사멸 세포의 세포질과 핵을 모두 염색합니다. AO는 핵산(14)과 결합하는 것으로 잘 알려져 있으며, 이는 핵 염색의 원인으로 생각된다. 그러나 AO는 살아있는 세포의 염색질을 염색하지 않습니다. 오히려, 세포사멸 동안 발생하는 특정 변화는 응축된 세포사멸핵(apoptotic nuclei)15의 삽입(intercalation) 및 염색(staining)을 허용하는 것으로 보인다. AO 염색은 살아있는 배아의 신속한 세포사멸 분석이라는 장점이 있습니다. 그러나 세포사멸 세포 형성 및 제거의 동적 특성으로 인해 샘플의 문서화를 신속하게 수행해야 합니다. 반면에, 모든 샘플의 동시 고정은 모든 샘플에서 주어진 시간에 세포사멸의 스냅샷을 제공하며 이 시간 변수의 영향을 받지 않습니다. 따라서 AO 염색에 의한 세포사멸 세포 분석은 고정 배아와 호환되지 않기 때문에 Casp3 분석은 여러 샘플에 걸쳐 사진 문서화 및/또는 정량화가 필요한 실험에 선호됩니다.
프로토콜
1. 솔루션 준비
- 1x PBST(1x PBS, 0.1% Tween-20) 500ml를 준비하고 필터 멸균합니다. 1x PBST는 박테리아 성장의 징후가 없는 한 실온(RT)에서 무기한 보관할 수 있습니다.
- 주의: 50°C에서 60°C에서 1x PBS에 분말 PFA를 1시간 동안 용해하고 알루미늄 호일로 덮어 화학 후드에 4% 파라포름알데히드(PFA) 50ml를 준비합니다. 4°C에서 1개월 동안 보관하거나 -20°C에서 2년 동안 보관하십시오.
- 신선한 1x PDT(1x PBST, 0.3% Triton-X, 1% DMSO) 500ml를 준비합니다. 1x PDT는 4°C에서 최대 한 달 동안 보관할 수 있습니다.
- 블로킹 버퍼(PBST 1개, 열 불활성화 소 태아 혈청 10%, 소 혈청 알부민 2%) 50ml를 준비합니다. 10ml 분취액을 만들고 -20°C에서 최대 1년 동안 보관합니다. 해동된 차단 버퍼는 4°C에서 최대 48시간 동안 보관할 수 있습니다.
- 물 30ml를 80°C로 가열하여 4% 메틸셀룰로오스 100ml를 준비합니다. 뜨거운 물에 메틸셀룰로오스 4g을 넣고 실온의 교반판에서 교반봉을 사용하여 섞습니다. 철저한 혼합은 일반적으로 4시간에서 하룻밤 사이에 걸립니다. 남은 (가열하지 않은) 물을 넣고 4°C에서 1시간 동안 섞습니다. RT에 보관하십시오.
- 꼬리새싹 단계와 32hpf 사이에 배아를 사용하는 경우 10mg/ml 프로나제 50ml를 준비하고 4°C에서 최대 1주일 동안 보관합니다.그렇지 않으면 -20°C에서 10ml 분취액에 최대 1년 동안 보관하십시오.
- -20 °C에서 50 % 메탄올 100ml를 놓습니다.
- 60g의 인스턴트 오션 씨솔트를 증류수 2L에 녹여 계란수 2배를 준비합니다(Westerfield16에서와 같이). 1x 스톡을 탈이온수에 희석하여 계란 물 60개를 준비합니다.
2. 배아의 준비
- 4세포 단계와 32hpf 사이의 1x 계란 물에 페트리 접시에 제브라피시 배아를 수집합니다.
- 4-세포와 꼬리 새싹 단계 사이의 배아의 경우 2.2단계로 진행합니다.
- 꼬리새싹 단계와 32hpf 사이의 배아의 경우, 100ml의 1x 난수 10ml에 100μl의 프로나제를 배아에 첨가하여 맥락막을 제거합니다.
- 참고: 프로나제 활성은 배치 간에 가변적일 수 있습니다. 따라서 최종 프로나제 농도는 새로운 배치를 얻을 때 탈호리온화를 위해 최적화되어야 합니다.
- 실온에서 30분 동안 배양합니다.
- 계란 물 / 프로나제 용액을 폐기물에 붓고 신선한 계란 물 1x를 천천히 다시 추가합니다.
- 기존 계란 물(및 자유롭게 떠다니는 코리온)을 부어 2번 헹구고 새 계란 물을 부드럽게 추가합니다.
- 참고: 이 시점에서 대부분의 합창을 제거해야 합니다. 이송 피펫을 사용하여 남아 있는 융모막이 제거될 때까지 배아를 위아래로 부드럽게 빨아줍니다.
- 최대 40개의 배아를 1.5ml 튜브에 이식합니다. 1x PBST 1ml로 2회 헹굽니다.
- PBST를 제거하고 배아 바로 위에 액체를 남깁니다(약 100μl 부피가 튜브에 남아 있어야 함). 4% PFA 1ml를 추가합니다. 운반이 용이하도록 적절한 크기의 용기(예: 페트리 접시 또는 피펫 상자 상단)에 튜브를 옆으로 눕히고(배아가 튜브 길이에 따라 퍼져 있도록) 하룻밤 또는 최대 일주일 동안 4°C의 부드러운 로커에 놓습니다.
- 4-cell and tailbud stage 사이에 있는 배아의 경우, 고정된 배아를 겸자로 수동으로 분리하십시오.
3. 면역형광 시술
- 튜브를 튜브 랙에 넣어 모든 배아가 튜브 바닥으로 가라앉도록 합니다. PFA(적절한 폐기물 용기로)를 제거하여 배아 수준 바로 위에 액체를 남겨둡니다. 고정 후(2.3단계), 배아는 배경 항체 염색을 방지하기 위해 공기에 노출되어서는 안 됩니다.
- 얼음처럼 차가운 100% 메탄올 1ml(투과성)를 적방울 방향으로 추가합니다. 배아는 이제 고정 후 취약하며, 이후의 모든 액체 제거/추가 중에 튜브 내에서 굴러떨어지지 않도록 각별한 주의를 기울여야 합니다. 튜브를 옆으로 눕히고 -20 °C에서 2 시간 동안 놓습니다. 또는 배아를 -20°C에서 최대 24시간 동안 방치할 수 있습니다.
- 튜브를 랙에 넣어 튜브 바닥에 있는 배아를 수집합니다. 메탄올을 제거하고 액체를 배아 수준 바로 위에 남겨 둡니다.
- 1ml 1x PDT를 조심스럽게 첨가합니다. PDT를 제거하고 새로운 1x PDT 1ml를 추가합니다. 튜브를 옆으로 눕히고 RT에서 30분 동안 부드럽게 흔듭니다. PDT를 제거하고 새 PDT로 30분 세척을 반복합니다.
- 액체가 배아 수준보다 약간 높아질 때까지 PDT를 제거하고 500μl 차단 완충액을 추가합니다.
- 배아를 운송 용기에 옆으로 눕히고 배아가 튜브 길이의 2/3 이상 이동하지 않도록 합니다. 그렇지 않으면 배아가 튜브 뚜껑과 액체 외부에 끼게 됩니다.
- 튜브가 있는 운송 용기를 RT에서 1시간 동안 매우 부드러운 로커에 조심스럽게 놓습니다.
- 튜브 랙에 튜브를 똑바로 세우고 모든 튜브를 열어 뚜껑에 붙어 있는 배아가 있는지 확인합니다. 뚜껑에 배아가 있는 튜브의 경우 상단을 닫고 손으로 튜브를 부드럽게 흔들어 모든 배아를 액체로 다시 가져옵니다.
- 1 μl rabbit anti-activated Caspase 3 항체(1:500 희석)를 추가합니다.
- 공동 표지 실험을 수행하는 경우, anti-activated Caspase 3 항체 외에 두 번째 nonrabbit 유래 항체를 적절하게 희석 하면 됩니다.
- 배아를 조심스럽게 옆으로 눕히고 실온에서 2시간 동안 부드럽게 흔듭니다. 또는 배아를 4°C에서 하룻밤 동안 배양할 수 있습니다.
- 튜브 랙에 튜브를 꽂습니다. 블록/항체 용액을 제거합니다. 1x PDT 1ml를 추가합니다. 튜브 뚜껑에 붙어 있는 배아를 채취하기 위해 손으로 튜브를 뒤집어야 합니다. 그런 다음 모든 튜브를 열어 뚜껑에서 모든 배아가 제거되었는지 확인합니다.
- 3.4단계를 반복합니다.
- 3.5-3.10단계를 반복하되, 항활성화 Caspase 3 항체를 청색광을 흡수하고 녹색 광을 방출하는 항토끼 형광단 접합 항체의 적절한 희석으로 대체합니다. 그러나, 사용자가 선호하는 흡수/방출 스펙트럼을 가진 모든 형광단 접합 항체를 여기에 사용할 수 있습니다. 2차 항체를 추가한 후에는 분석의 나머지 기간 동안 배아를 어두운 곳에 보관하는 것이 중요합니다. 배양 단계에서 운송 용기를 알루미늄 호일로 덮지만 완충액을 교체할 때 빛 노출에 대해 걱정하지 마십시오.
- 공동 라벨링 실험을 수행하는 경우 이 단계에서 상보적 형광단 접합 2차 항체의 적절한 희석을 추가하기만 하면 됩니다.
- 참고: 사용자가 활성-Caspase 3를 Gfp-발현 세포와 함께 표지하고자 하는 경우, 토끼 항-활성 Caspase 3 항체 다음에는 nongreen-fluorescing anti-rabbit secondary 항체가 와야 하고, anti-GFP 항체 다음에는 green-fluorescing non-rabbit secondary 항체가 뒤따라야 합니다. 이렇게 하면 배아 고정 후 일부 Gfp 형광이 계속 보이는 경우 혼동을 제거할 수 있습니다.
4. 형광 현미경에 의한 세포사멸 세포 분석
- 적절한 광 필터를 사용하여 형광 현미경으로 작은 페트리 접시 또는 유리 스폿 플레이트에서 1x PDT의 배아를 분석합니다. 양성 대조군이 최소한의 배경으로 밝은 형광을 보이는 경우 4.2단계로 진행합니다. (그렇지 않은 경우, 토론의 문제 해결 섹션을 참조하고 새 배아에 대해 프로토콜을 반복합니다.) 배아는 4°C에서 1x PDT로 최대 48시간 동안 보관할 수 있습니다.
- 4cm 페트리 접시에 3.5% 메틸셀룰로오스를 붓고 접시 바닥을 덮을 정도로만 붓습니다. 대안적으로, 유리 스폿 플레이트 또는 함몰 슬라이드는 함몰부에서 많은 양의 메틸 셀룰로오스와 함께 사용될 수 있습니다. 튜브 바닥의 배아를 조심스럽게 빨아들여 깨끗한 전달 피펫으로 넣고 시각화를 위해 페트리 플레이트로 옮깁니다.
- 각진 프로브를 사용하여 문서화를 위해 관심 있는 배아의 방향을 지정합니다. 동일한 샘플의 배아 간에 약간의 변동이 있을 수 있으므로 해당 샘플의 대다수 배아에서 관찰된 형광 강도와 패턴을 나타내는 이미지를 촬영하는 것이 중요합니다. 문서화는 비특이적 배경 형광의 축적을 방지하기 위해 분석 완료 후 48시간 이내에 수행해야 합니다. 잔류 4% 메틸셀룰로오스는 배아의 유전형 분석에 필요한 후속 PCR 반응을 방해하지 않습니다.
- 참고: 배아를 특정 각도로 고정하는 데 도움이 되려면 배아를 접시 바닥으로 부드럽게 밀어 난황 또는 배아의 다른 부분(원하는 보기에 따라 다름)이 접시 바닥에 놓이도록 하는 것이 도움이 됩니다. 그런 다음 프로브를 사용하여 배아 또는 바로 주변의 메틸셀룰로오스를 이동하여(동시에 현미경으로 시각화) 문서화를 위한 원하는 각도를 얻습니다.
결과
Casp3 분석은 4세포기부터 32 hpf까지 세포 사멸이 일어난 세포에 대한 명확한 증거를 제공합니다. 그림 2A는 Bim 또는 Noxa와 같은 강력한 pro-apoptotic bh3-only 단백질을 인코딩하는 고농도의 mRNA를 배아에 주입했을 때, 발생 4세포기까지 활성형 Caspase 3가 빠르게 생성됨을 보여줍니다. 이후 1 hr4 이내에 배아 사망이 발생합니다. 형광 강도는 중간 정도이지만 결과는 결정적이라는 점에 유의하십시오. 더 후기 단계에서는 형광 강도가 더 강력하게 나타납니다. 예를 들어, 그림 2B는 pro-apoptotic bh3-only 유전자인 puma를 인코딩하는 중간 수준의 독성4 mRNA가 주입된 구형 단계(sphere-stage) 배아에서 밝은 활성형 Caspase 3 양성 세포를 보여줍니다. puma mRNA 주입이 내인성 미토콘드리아 매개 경로를 통해 세포 사멸을 유도한다는 것을 증명하기 위해 anti-apoptotic bcl-2 유전자를 인코딩하는 메신저 RNA를 공동 주입하였습니다.
제브라피시에서 방사선 조사(IR)로 유도된 세포사멸은 다음과 같은 bh3-only 유전자의 p53 매개 전사를 필요로 한다. 퓨마5-6IR-유도 세포사멸의 지연은 그림 3 p53 매개 전사의 요구 조건과 일치합니다.
Casp3 프로토콜은 강력한 신호 대 잡음비(signal-to-noise ratio)를 나타내어야 합니다. 그림 4는 최적의 Casp3 분석 결과와 주요 단계가 제대로 수행되지 않았을 때 발생하는 두 가지 일반적인 비최적 결과를 비교하여 보여줍니다(토의 섹션 참조): 동물 조직의 배경 형광으로 인해 신호 대 잡음비가 약해진 경우와, 관심 신호를 방해하는 난황 형광이 발생한 경우입니다.
형질전환 GFP 발현 라인을 이용한 공동 염색 실험을 통해 세포 사멸이 진행 중인 조직을 근사적으로 확인하였습니다(그림 5).
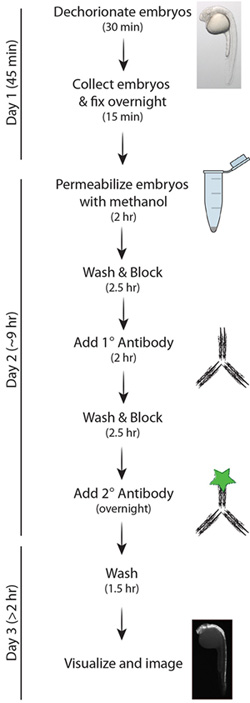
그림 1. Casp3 프로토콜의 단순화된 도식.

그림 2. (A) 4-세포기 배아의 세포사멸 분석. 발달 1-세포기 배아에 egfp (대조군) 또는 pro-apoptotic bh3-only 유전자인 bim 및 noxa를 인코딩하는 mRNA 50 pg를 주입하였다. 4-세포기(주입 후 약 1시간, hpi)에 면역형광법을 통해 활성화된 Caspase 3를 검출하여 배아를 분석하였다. Bim 및 noxa mRNA는 주입 직후 제브라피쉬 배아에서 급격한 세포사멸을 유도하며, 배아를 그대로 발달시킬 경우 2 hpi까지 사망에 이르게 한다. 비교를 위해 야생형 4-세포기 배아의 명시야 이미지를 함께 나타내었다. (B) 구형기 제브라피쉬 배아의 세포사멸 분석. 발달 1-세포기 배아에 50 pg egfp (대조군), 5 pg puma와 45 pg egfp (puma), 또는 5 pg puma와 45 pg bcl-2 (bcl-2)를 인코딩하는 mRNA를 주입하였다. 구형기(약 4 hpi)에 Casp3 분석법으로 배아를 분석하였다. 세포사멸 세포를 시각화하기 위해 측면 및 동물극 뷰를 모두 나타내었다. bcl-2에 의한 puma 유도 세포사멸의 회복은 puma mRNA 주입이 특히 내인성 미토콘드리아 매개 경로를 통해 세포사멸을 유도함을 나타낸다. 비교를 위해 야생형 구형기 배아의 명시야 이미지를 함께 나타내었다.

그림 3. 17-20 hpf 사이의 전리 방사선(IR) 유도 세포 사멸 시간 경과. 제브라피쉬 배아에 17 hpf에서 8 Gy IR을 조사하고, 0, 1.5, 2, 및 3 hr-post-IR (hpIR)에서 Casp3 분석을 통해 분석하였다. 20 hpf의 화살표는 3 hpIR에서 척수 내 세포 사멸 세포의 축적을 나타낸다. 비교를 위해 17-hpf 배아의 명시야 이미지가 제시되어 있다.
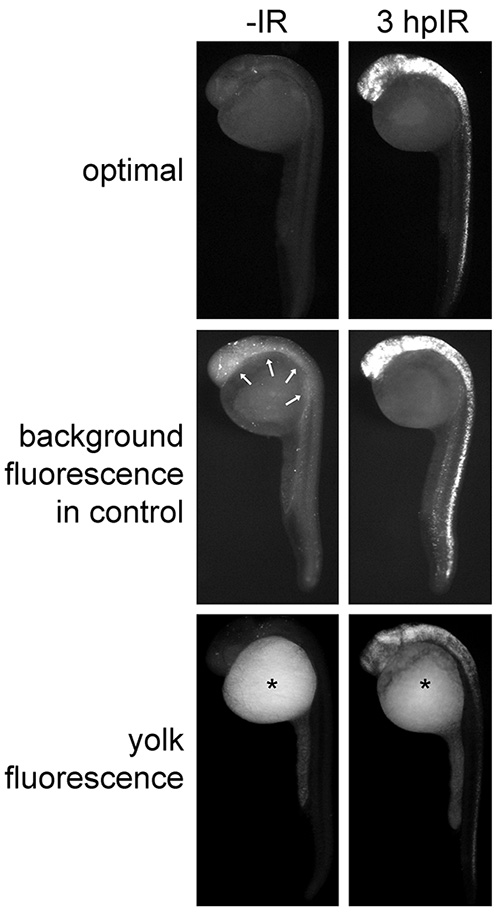
그림 4. 27 hpf 배아의 최적 및 비최적 Casp3 면역형광 결과. 제브라피시 배아를 24 hpf에 15 Gy로 조사(또는 미조사)한 후 Casp3 분석을 통해 분석하였다. "최적(optimal)" 그룹은 세포 사멸 세포가 밝게 형광을 띠고, 비사멸 세포와 난황의 배경 형광이 최소화된 이상적인 결과를 보여준다. "대조군 내 배경 형광(background fluorescence in control)" 그룹의 화살표는 대조군 배아의 동물 조직에서 나타난 과도한 배경 형광을 나타낸다. "난황 형광(yolk fluorescence)" 그룹의 별표는 난황에서 나타난 과도한 비특이적 형광을 보여준다.
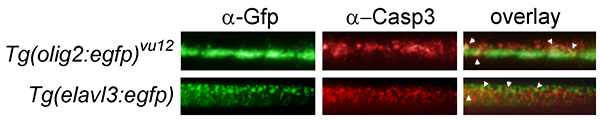
그림 5. 공동 라벨링 실험을 통한 IR 유도 세포 사멸의 조직 특이성 추정. Tg(olig2:egfp)vu12 형질전환 라인은 운동 신경세포와 희소돌기아교세포를 라벨링하며17, Tg(elavl3:egfp) 라인은 모든 분화 중인 신경세포를 라벨링한다18. 각 형질전환 라인을 24 hpf에 15 Gy로 조사하고 3시간 후에 마우스 anti-GFP 및 토끼 anti-active-Caspase 3 1차 항체를 사용하여 분석한 후, 각각 녹색 및 적색 형광 2차 항체를 처리하였다. 척수(27-hpf, 3-hpIR 배아의 난황 연장부 끝의 등쪽에 위치)의 확대 이미지가 표시되어 있다. 사멸 세포는 Tg(elavl3:egfp) 및 Tg(olig2:egfp)vu12 세포 집단 모두에 부분적으로 국소화되어 나타나며(오버레이의 화살표 표시 참조), 이는 신경세포와 희소돌기아교세포가 IR 유도 세포 사멸에 민감함을 시사한다.
토론
이 프로토콜에 제시된 Casp3 분석은 간단하며, 본원에 지시된 대로 수행되면 강력한 신호 대 잡음비를 발생시켜야 합니다. 이 프로토콜의 중요한 단계에는 모든 세척에 대해 신선한 1x PDT 완충액 사용, 1차 항체에서 배아를 배양한 후 PDT 완충액에서 충분한 길이의 세척 단계, 배아의 부드러운 취급, 프로토콜의 모든 단계에서 튜브 또는 이식 피펫 내의 모든 배아에 대한 세심한 설명이 포함됩니다.
우리의 경험에 따르면, 양성 대조군에 대한 신호가 부족한 가장 일반적인 이유는 다음과 같습니다: 1) 세척 단계에서 1x PBST가 1x PDT로 대체됨, 2) 1x PDT 완충액이 1개월 이상 오래됨, 3) 잘못된 2차 항체가 사용됨, 4) 배아가 32 hpf 이상인 경우 및/또는 5) 40개 이상의 배아가 하나의 튜브에서 분석되었습니다. 샘플 내에서 일관되지 않은 결과나 가변성이 발생하는 경우, 이는 일반적으로 1) 절차 중에 모든 배아가 항상 액체 내에 남아 있는지 확인하기 위한 주의를 기울이지 않았거나 및/또는 2) 배아가 충분한 흔들림 하에서 배양되지 않았기 때문입니다. 높은 수준의 배경 노이즈는 종종 배아의 동물 조직 전체에서 발생하는 일반적인 형광 연무로 시각화됩니다( 그림 4, "배경 형광" 참조). 열악한 신호 대 잡음비는 1) 1차 항체 후 충분한 시간 동안 배아를 세척하지 않았거나 및/또는 2) 배아를 권장 시간보다 더 오랫동안 PFA 또는 메탄올에 방치했을 때 발생할 수 있습니다. 분석이 끝날 때까지 배아가 손상되지 않는 경우: 1) PFA로 고정한 후 용액을 적방적으로 첨가하지 않았거나 2) 배양 단계 중 로커 속도가 너무 높게 설정되었습니다.
Casp3 분석에 내재된 전체 마운트 시각화는 세포사멸 세포의 공간적 국소화에 도움이 됩니다. 그러나 조직 특이성은 대략적인 것이며 세포사멸을 겪고 있는 세포의 정확한 정체를 정확히 찾아내기 위해 공동 표지 기술( 그림 5 참조) 및/또는 배아 절편에 의존할 가능성이 높습니다. 여기에 설명된 프로토콜에서 공동 표지는 분석에 사용되는 특정 토끼 유래 항체에 대한 요구 사항에 의해 제한됩니다. 우리는 제브라피쉬 배아에서 전체 마운트 면역형광에 의해 세포사멸 세포를 특이적으로 표지하는 상업적으로 이용 가능한 비토끼 유래 항활성화 카스파제 3 항체를 확인하지 못했습니다. 따라서, 토끼에서 배양되는 세포형 특이적 항체는 공동 표지 실험을 위한 Casp3 분석과 호환되지 않습니다. 한 가지 대안은 세포사멸 세포를 표지하기 위해 마우스 유래 항체가 필요한 TUNEL 분석을 수행하는 것입니다6. 그러나 우리는 제브라피쉬 배아에 대해 수행된 전체 마운트 TUNEL 분석이 TdT 효소의 농도, TdT 효소의 배아 배양 기간 및 튜브당 존재하는 배아 수를 포함하여 반응의 여러 변수에 매우 민감하다는 것을 발견했습니다(미발표 관찰). 따라서 결과에 대한 일관된 해석을 제공하는 효소의 균형을 찾는 것은 어렵습니다. 따라서 바람직한 대안은 특정 세포 유형에서 GFP와 같은 형광단(상업적으로 이용 가능한 강력한 항체 포함)을 발현하는 형질전환 제브라피쉬 배아에서 세포사멸 세포를 분석하는 것입니다. 그런 다음, 1차 마우스 항-Gfp 항체에 이어 녹색 형광 항-마우스 2차 항체를 사용하여 공동 표지 실험을 수행할 수 있습니다. 예를 들어 그림 5 를 참조하십시오.
Casp3 프로토콜은 4세포 단계부터 32hpf까지 배아의 세포사멸 세포에 강력하고 신뢰할 수 있는 염색을 제공하지만, 항체가 오래된 배아의 피부를 관통할 수 없기 때문에 32hpf 이상의 적용이 제한적입니다. 콜라게나제, 트립신, 아세톤 또는 에탄올을 사용한 처리를 포함하여 배아를 투과화하는 추가 기술은 잠재적으로 이 분석을 오래된 배아 분석에 적용하도록 최적화될 수 있습니다. 그러나 AO로 염색하는 것은 생후 최소 5일까지의 살아있는 제브라피쉬에 대해 수행할 수 있습니다.9. 따라서 AO 분석은 배아 단계 제한을 우회하고 세포사멸 세포(1-2시간)를 분석하기 위한 신속한 분석을 나타냅니다. 대조적으로, Casp3 분석은 배아의 하룻밤 고정이 필요하며 완료하는 데 2-4일이 걸립니다. AO 분석의 단점은 배아가 살아 있고 세포사멸 세포가 빠르게 형성되고 제거되기 때문에 여러 샘플로 배아의 효율적인 사진 문서화가 어려울 수 있다는 것입니다. 이는 문서화를 위한 특정 방향을 얻기 위해 배아를 장착해야 하는 경우 특히 문제가 될 수 있습니다. 또한, 우리는 PFA로 고정한 후 AO 염색이 감소하므로 면역형광을 포함하는 공동 표지 실험과 양립할 수 없음을 발견했습니다.
활성화된 카스파제 3의 정량적 분석은 문서화된 이미지의 형광 강도를 측정하는 소프트웨어 프로그램을 활용하여 수행할 수 있습니다. 우리는 신경 조직에서 IR 유도 세포사멸을 정량화했으며, 이 방법은 다른 곳에서 자세히 설명했습니다10. 실험에 따라 활성화된 카스파제 3의 정량 분석은 최적의 조직 분석을 위한 적절한 방향을 얻기 위해 평면 장착과 같은 배아의 추가 조작이 필요할 수 있습니다. 또한 분석의 선형성은 분석 중인 조직의 두께에 따라 달라집니다. 예를 들어, 우리는 뇌의 뉴런 밀도가 높은 조직이 아닌 척수의 얕은 신경 조직에서 활성-카스파제 3 면역형광을 측정하여 신경 조직에서 IR 유도 세포사멸을 분석했습니다4,10.
우리의 경험에 따르면 Casp3 분석은 분석에 문서화에 충분한 시간이 필요할 때 4세포 단계와 32hpf 사이의 제브라피쉬 배아에서 세포사멸을 분석하는 데 사용할 수 있는 가장 강력하고 신뢰할 수 있는 분석입니다. 특정 세포를 식별하기 위해 적절한 항체 또는 형질전환 라인을 사용할 수 있는 경우, 이 분석은 세포사멸을 겪고 있는 특정 세포 유형을 식별하기 위해 공동 표지에 매우 적합합니다.
공개 사항
저자는 공개할 것이 없습니다.
감사의 글
기금은 Huntsman Cancer Foundation (CJ, CT), American Cancer Society 보조금 #RSG-13-025-01-CSM (RS) 및 NIH T32 GM007464-36 (SS)에서 제공했습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1.5 ml 튜브 | Denville Scientific | c2170 | 비위험. 유사한 1.5m 플라스틱 튜브로 충분합니다. |
| 10x 인산염 완충 식염수(PBS) | Sigma Aldrich | P5493 | 위험하지 않음. |
| a-activated-human-Caspase-3 항체 | Fisher Scientific | BDB559565 | 흡입하거나 삼키면 해로울 수 있습니다. |
| a-GFP monoclonal 항체 (마우스) | Life Technologies | 33-2600 | 흡입하거나 삼키면 유해할 수 있음. |
| a-HuC/HuD 인간 신경 단백질, 마우스 IgG2b, 단클론 16A11 - UNCONJ | Life Technologies | A21271 | 하거나 삼키면 유해할 수 있습니다. |
| 알부민, 소 BSA 열 충격 절연 | Amresco | CAS 9048-46-8 | 위험하지 않습니다. Bioexpress를 통해서도 구매할 수 있습니다: 0332-1006 |
| Alexa Fluor 488 Donkey 안티-마우스 IgG | Life Technologies | A11029 | 1:200 희석에서 사용. 흡입하거나 삼키면 해로울 수 있습니다. |
| Alexa Fluor 488 당나귀 안티-래빗 IgG | Life Technologies | A21206 | 1:200 희석에서 사용. 흡입하거나 삼키면 해로울 수 있습니다. |
| Alexa Fluor 568 당나귀 안티-래빗 IgG | Life Technologies | A10042 | 1:200 희석에서 사용. 흡입하거나 삼키면 해로울 수 있습니다. |
| 디메틸 설폭 사이드 (DMSO) | 시그마 알드리치 | D8418 | 가연성. |
| Dumont #5 Inox 집게 (표준 팁/스트레이트) | Fine Science Tools | 11251-20 | Sharp! |
| FBS HyClone 소 태아 세럼 | 써모 피셔 | SH3091003 | 위험하지 않습니다. |
| Fisher Scientific Ocelot Rotator | Fisher Scientific | 05-450-21 | 수동 속도 제어 기능이 있는 모든 회전자가 적합합니다. |
| 인스턴트 오션 아쿠아리움 솔트 | Petco | 1373684 | 위험하지 않습니다. |
| 메탄올(아세톤 무함유) | Sigma Aldrich | M1775 | 가연성: 흡입, 섭취 및 접촉에 의해 독성 |
| 메틸셀룰로오스 | 시그마 알드리치 | M0387-1006 | 위험하지 않음. |
| 파라포름알데히드 | Sigma Aldrich | P6148 | 인화성: 흡입, 섭취 및 접촉에 의해 독성 |
| 프로브 (각도 80 짧은/15.5cm/0.15mm 팁 직경) | Fine Science Tools | 10140-02 | 샤프! |
| Pronase | Roche | 11459643001 | 위험하지 않습니다. |
| 파이렉스 스폿 플레이트 | Fisher Scientific | 13-748B | 위험하지 않음. |
| 트랜스퍼 피펫, Samco 범용 | Thermo-Scientific | 204 | 비위험. |
| Triton X-100 | Sigma Aldrich | T8787 | 자극성: 섭취 또는 접촉으로 인해 유해함. |
| Tween-20 | Sigma Aldrich | P7949 | 위험하지 않음. 다른 브랜드로는 VWR #97063-872가 있습니다. |
참고문헌
- Tait, S. W., Green, D. R. Mitochondria and cell death: outer membrane permeabilization and beyond. Nat. Rev. Mol. Cell Biol. 11, 621-632 (2010).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: controlled demolition at the cellular level. Nat. Rev. Mol. Cell Biol. 9, 231-241 (2008).
- Eimon, P. M., et al. Delineation of the cell-extrinsic apoptosis pathway in the zebrafish. Cell Death Differ. 13, 1619-1630 (2006).
- Jette, C. A., et al. BIM and other BCL-2 family proteins exhibit cross-species conservation of function between zebrafish and mammals. Cell Death Differ. 15, 1063-1072 (2008).
- Kratz, E., et al. Functional characterization of the Bcl-2 gene family in the zebrafish. Cell Death Differ. 13, 1631-1640 (2006).
- Sidi, S., et al. Chk1 suppresses a caspase-2 apoptotic response to DNA damage that bypasses p53, Bcl-2, and caspase-3. Cell. 133, 864-877 (2008).
- Zhao, X., et al. Interruption of cenph causes mitotic failure and embryonic death, and its haploinsufficiency suppresses cancer in zebrafish. J. Biol. Chem. 285, 27924-27934 (2010).
- Yager, T. D., Ikegami, R., Rivera-Bennetts, A. K., Zhao, C., Brooker, D. High-resolution imaging at the cellular and subcellular levels in flattened whole mounts of early zebrafish embryos. Biochem. Cell Biol. 75, 535-550 (1997).
- Furutani-Seiki, M., et al. Neural degeneration mutants in the zebrafish, Danio rerio. Development. 123, 229-239 (1996).
- Sorrells, S., et al. Ccdc94 Protects Cells from Ionizing Radiation by Inhibiting the Expression of p53. PLoS Genet. 8, (2012).
- Gavrieli, Y., Sherman, Y., Ben-Sasson, S. A. Identification of programmed cell death in situ via specific labeling of nuclear DNA fragmentation. J. Cell Biol. 119, 493-501 (1992).
- Cole, L. K., Ross, L. S. Apoptosis in the developing zebrafish embryo. Dev. Biol. 240, 123-142 (2001).
- Abrams, J. M., White, K., Fessler, L. I., Steller, H. Programmed cell death during Drosophila embryogenesis. Development. 117, 29-43 (1993).
- Beers Jr, R. F., Hendley, D. D., Steiner, R. F. Inhibition and activation of polynucleotide phosphorylase through the formation of complexes between acridine orange and polynucleotides. Nature. 182, 242-244 (1958).
- Delic, J., Coppey, J., Magdelenat, H., Coppey-Moisan, M. Impossibility of acridine orange intercalation in nuclear DNA of the living cell. Exp. Cell Res. 194, 147-153 (1991).
- Westerfield, M. The Zebrafish Book. , University of Oregon Press. Eugene, OR. (1993).
- Shin, J., Park, H. C., Topczewska, J. M., Mawdsley, D. J., Appel, B. Neural cell fate analysis in zebrafish using olig2 BAC transgenics. Methods Cell Sci. 25, 7-14 (2003).
- Park, H. C., et al. Analysis of upstream elements in the HuC promoter leads to the establishment of transgenic zebrafish with fluorescent neurons. Dev. Biol. 227, 279-293 (2000).
재인쇄 및 허가
