우리는 핵분열 효모 성 수명 주기의 장기 현미경을 위한 재현 가능한 기본 방법을 제공합니다. 설명된 사소한 조정과 함께 제시된 프로토콜은 생식 과정의 여러 단계에 대한 연구의 초점을 맞출 수 있도록 합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
분열 효모 성적 라이프 사이클의 현미경
* These authors contributed equally
이 논문에서
요약
초록
핵분열 효모 Schizosaccharomyces pombe는 유사분열 세포주기 진행의 조절, 세포 분열의 역학 및 세포 극성을 연구하는 데 매우 유용한 모델 시스템이었습니다. 더욱이, 유성 생식에 대한 고전적 실험은 DNA 재조합과 감수분열에 대한 현재의 이해에 중추적인 결과를 산출했습니다. 핵분열 효모 짝짓기에 대한 보다 최근의 분석은 외인성 자극 반응 메커니즘, 편광 세포 성장 및 세포-세포 융합에 대한 흥미로운 질문을 제기했습니다. 이러한 주제를 자세히 연구하기 위해 우리는 전체 성적 수명 주기의 현미경을 위한 간단한 프로토콜을 개발했습니다. 여기에 설명된 방법은 특정 결합 단계를 연구하기 위해 쉽게 조정할 수 있습니다. 간단히 말해서, 질소가 풍부한 배지에서 기하급수적 단계로 성장한 후, 세포 배양은 탐구될 성적 수명 주기의 단계에 적합한 기간 동안 질소가 결핍된 배지로 이동합니다. 그런 다음 세포는 이미징을 위해 쉽게 제작할 수 있는 맞춤형 아가로스 패드 챔버에 장착됩니다. 이 접근 방식을 사용하면 짝짓기 시작부터 포자의 최종 형성까지 세포를 모니터링할 수 있습니다.
서론
두 셀 간의 유전자 교환 유성 생식의 중앙 이벤트이지만, 그것은 세포 분화를 촉진 파트너의 선택을 허용, 세포 - 세포 융합을 수행하고 유전체의 안정성을 유지하는 일련의 사건에 의존한다. 따라서 성적 기간이 발달 스위치 관련 생물학적 질문들을 연구하는 모델 시스템 자체를 제시 분열 효모 이러한 현상을 연구 성적 사이클 탐색 등의 외적 자극 세포막 융합, 염색체 분리에 반응의 이점을 가져온다 모델 시스템의 강력한 유전학, 높은 처리량 방법과 정교한 현미경을 잘 설립. 분열 효모에서 섹스는 P-셀과 별개의 결합 유형의 M 세포 사이의 이형 이벤트입니다. 두 세포 유형은 차동 분비 P- 생산 및 M-페로몬, 페로몬 수용체 map3 체크하고 Mam2뿐만 아니라 페로몬 테아위한 포함한 유전자 1,2-들을 표현할SES Sxa1 및 Sxa2. 이러한 일반적으로 사용 H90 균주로서 Homothallic 균주, 단일 게놈 모두 결합 타입 유전 정보를 전달 및 세포 (참조. 3에서 검토) 분열주기에 걸쳐 결합 형 스위칭 복잡한 패턴을 겪는다. 거의 또는 전혀 결합 유형을 전환하지 heterothallic 분열 효모의 여러 균주는 일반적으로 가장 눈에 띄게, H + N (P 형) 및 시간 -S (M 형) 균주를 4를 사용한다.
분열 효모에서 성적 라이프 사이클에 진입 엄격한 영양 조절을 받고있다. 만 질소에 굶주린 분열 효모 세포 유사 분열 재생을 체포하고 짝짓기 파트너의 존재를 신호하고 (참조. 5에서 검토)의 성적 사이클의 추가 단계를 촉진 확산 성 페로몬을 생산하고 있습니다. 질소 부족의 발달 스위치 역할을하며 전자를 촉진 상대 Ste11의 주요 전사 조절을 드-억압페로몬 수용체와 페로몬 생산 유전자 6,7를 포함하여 특정 유전자 짝짓기의 xpression. 페로몬 수용체의 결합은 더욱 따라서 짝짓기 파트너 사이의 긍정적 인 피드백에 페로몬 생산을 증가, Ste11 전사 활동 8-10을 향상 수용체 결합 단백질 G 알파 및 다운 스트림 MAPK 신호를 활성화합니다. 페로몬 수준은 세포 극성의 Rho 가족는 GTPase Cdc42 (11)의 마스터 주최자를 조절하여 다른 세포 편광 상태를 유도하기에 매우 중요하다. 페로몬 낮은 농도에 노출시 활성 Cdc42은 세포 주위를 둘러 동적 패치 시각화하고, 어떤 세포 성장이 단계에서 관찰되지 않는다. 증가 페로몬 레벨 단일 영역과 편광 돌기의 성장에 Cdc42 활동의 안정화를 촉진 접촉 상대 세포를 제공 내가 어릴 때 좋아했던 연재 만화를 불린다. 이어서, 두 개의 반수체 결합 파트너 배체의 접합자를 형성하는 퓨즈. 최근 작품은 일을 계시상대 유도 formin FUS1 (12)에 의해 조립 융합에 필수적인 새로운 액틴 구조의 전자의 존재. 이 융합 포커스 따라서 세포 용해 (12)없이 세포막의 접촉을 허용하도록 칸막이 벽의 개장을 허용 타입 V 미오신 종속 프로세스 집중과 세포벽 분해 장치를 위치. 세포 - 세포 융합 후, 핵 접촉하고 karyogamy을 겪는다. 접합자 (말 꼬리 운동) 내부 핵의 눈에 띄는 네인 의존 전후 운동은 감수 분열 뒤에 염색체 상 동체 (13, 14)의 페어링을 촉진한다. 마지막으로, 감수 분열의 네 제품은 포자 동안 개별 포자로 포장됩니다.
때문에 복잡성과 관련된 수많은 단계, 상대의 상세한 모니터링에 도전하고있다. 두 주목할만한 문제는 전체 프로세스가 아니라 다섯 시간 이상을 소요하고 세포를 동기화하기 어려운 것이 있습니다. 이 라ifficulties은 단일 셀 현미경 접근 방식에 의해 피할 수 있습니다. 여기에 일반적인 프로토콜은 분열 효모의 성적 라이프 사이클이 제시 조사합니다. 약간의 조정으로,이 프로토콜은 프로세스의 모든 다른 단계, 상대 유전자 산물, 비 자매 파트너 짝짓기 형 스위칭 후 자매 세포 사이 사이에 셀 편광 및 페어링, 세포 - 세포 융합, 즉 유도의 연구를 허용, 및 사후 융합 말 꼬리 운동, 감수 분열과 포자. 이 방법은 쉽게 시각화 형광 동안 및 사후 융합, 시간 사전을 통해 단백질 태그)을 1로 할 수 있습니다; 2) 대향 결합 형 세포의 행동을 식별; 3) 측정 및 shmooing, 결합, 융합 또는 포자 효율과 같은 매개 변수를 정량화.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
분열 효모 유성 생식의 현미경 분석
1. 미디어 준비
- 포도당 : 10g의 /의 L, KH 2 PO 4 : 1g / L, 염화나트륨 : 다음과 같은 구성 요소가 혼합하여 최소 포자 형성 배지 (MSL-N) (15)을 준비 0.1 g / L, 황산 ·을 7H 2 O : 0.2 g / 엘. 추가 추적 요소 (10000) : 100 μL / L, 비타민 (1000 배) : 1 ㎖ / L, 0.1 M CaCl2를 ㎖ / L. 실온 (RT)에서 0.22 ㎛의 공극 크기의 필터를 사용하여 저장소 필터 살균.
- 다음과 같은 비타민을 사용 (1000 배) 재고 : 판토텐산 : 1 그램 /의 L, 니코틴산 : 10g / L, 이노시톨 : 10g / L, 비오틴 : 10 ㎎ / ℓ. 4 ℃에서 0.22 ㎛의 공극 크기의 필터를 사용하여 저장소 필터 살균.
- 붕소 산 : : 5g / L, MnSO 4 : 4 그램 /의 L, ZnSO 4 · 7H 2 O : 4g / L, 50ml을 2 · 6H 2 O : 2g / L 다음과 같은 미량 원소 (10000) 주식을 사용하여 ,을 MoO 3 : 0.4 그램 /의 L, KI : 1g / L, CuSO 4· 5H 2 O : 0.4 g / L, 구연산 : 10g / L. 4 ℃에서 0.22 ㎛의 공극 크기의 필터를 사용하여 저장소 필터 살균.
- 아가 로스를 0.2 g과 MSL-N 10ml를 조합하여 MSL-N 아가에게 (아가 패드 챔버를 만들기 위해 사용) 2 %를 준비한다. 마이크로 원심 튜브에 아가로 용해하고 0.5 ml의 분취 량까지 전자 레인지 고전력 ~ 2 분 동안 용융. 실온에서 보관하십시오.
- 1g / L, 류신 : 0.225 g / L, 아데닌 : 0.225 그램 /의 L, 우라실 (NH 4) 2 SO 4 추가하여 질소 MSL-N에서 (MSL + N)와 최소 포자 형성 매체를 준비 0.225 g / L를 . 0.22 ㎛의 공극 크기의 필터를 이용하여 필터 멸균. 실온에서 보관하십시오.
주 : 류신, 아데닌 및 우라실이 영양 요 구성 균주의 성장을 허용하기 위해 배지에 첨가된다. 사용 된 균주 (예를 his3Δ에 대한) 별개의 영양 요구를 전달하는 경우 추가 아미노산 보충이 포함되어야한다. 또한 완전히 prototroph 균주와 그 일을 양해 해 주시기 바랍니다 만 같이 추천이러한 균주는 높은 결합 효율을 수 있습니다. - 챔버 밀봉 200 ml의 VALAP을 준비합니다. 비커에 라놀린, 바셀린 (또는 다른 석유 젤리), 및 파라핀의 동일한 가중치를 추가합니다. 철저하게 혼합 될 때까지 열이 낮은 온도에서 혼합물 가끔 저어. 여러 개의 작은 배양 접시에 믹스를 나누어지는. 실온에서 보관하십시오.
짝짓기 실험 2. 배양 분열 효모 균주 (그림 1).
- 1 일, 저녁 :
MSL + N 3 ㎖를 포함하는 배양 튜브에 고체 배지에서 갓 줄무늬 균주를 접종한다. 약 2.5 cm 직경의 평면 바닥 튜브를 사용합니다. 적응 문화 볼륨과 다른 문화 튜브 또는 플라스크를 사용합니다. 밤새 품어 (O / N) 25 ° C, 200 rpm으로 진탕. heterothallic 균주로 작업하는 경우, 별도로 접종.- 문화가 광학 밀도가 저녁에 0.4-0.8의 600 nm의 (OD 600)에서 측정이 있는지 확인하기 위해 다음 아침에 미디어 세포 현탁액을 희석.
노트 :OD는 분열 효모 세포 농도의 프록시 (600)의 측정은 약 0.1 ~ 1.0의 범위에서 선형이다. 우리의 분광 광도계 OD 600 = 0.1 ml의 당 1.4 × 10 6 세포에 해당합니다. 초기 OD (600)는 읽는 경우 따라서, 샘플 신뢰할 수있는 측정을위한 농축 / 희석 할 필요가이 범위를 벗어납니다.
- 문화가 광학 밀도가 저녁에 0.4-0.8의 600 nm의 (OD 600)에서 측정이 있는지 확인하기 위해 다음 아침에 미디어 세포 현탁액을 희석.
- 2 일, 저녁 :
100 ㎖ 플라스크에서 600 = 0.025 중독하는 MSL + N 배지 20ml에 세포를 희석. 30 ° C, 200 rpm에서 균주 O / N을 품어.
참고 : 야생 형 세포 배양은 OD 600 ~ 0.8 다음 아침 (15 시간 이상)에 도달한다. 이상 발생 시간 균주로 작업하는 경우 그에 따라 희석을 조정합니다. - 3 일, 아침 :
문화가 OD 600 ~ 0.8의 세포 밀도가 있는지 확인하기 위해 OD 600을 측정합니다. heterothallic 균주로 작업하는 경우, 파트너 세포의 동일한 숫자를 혼합한다. 1.5 ml의 1,000 XG 및 전송에서 펠렛 세포튜브. MSL-N 매체의 1 ml의 세포를 세 번 씻는다. MSL-N 배지 3 ㎖에 세포를 다시 일시 중단 = 1.5 600 중독에 셀을 희석.- 직접 영상에 대한 세포를 장착 자매 세포 사이의 결합을 모니터링하려면 (프로토콜 2.4 절 참조). 결합 형 스위칭 질소 박탈 이후에 발생하는 유사 분열 분열 동안 열린다있는 homothallic H90 균주를 사용합니다. 아가로 오스 패드 세포의 직접 장착은 세포 분열 후, 자매 세포가 서로 옆에 남아 것을 보장한다.
- 셀 편광 (탐색 역학과 shmooing)를 모니터링 30 ° C, 영상에 대한 사전 설치 세포에 3 ~ 4 시간 동안 200 rpm으로 세포 배양의 1-3 ml에 품어합니다. 이 3 ~ 4 시간 내 마지막 유사 분열 부문 발생한 것입니다. 몇 세포는 편광을 시작했다하지만 그들의 탐색 편광 역학 시작됩니다 대부분.
- 세포 - 세포 융합 30 ° C에서 세포 배양의 1-3 ml에 품어 모니터링하려면, 200 rpm으로 4 ~ 6 시간의 PRI에 대한나에 이미징 세포를 장착.
- 모니터링하려면 포스트 융합 이벤트는 30 ° C에서 세포 배양의 1-3 ml의 이전 영상에 대한 세포를 장착 8 시간 동안 200 rpm으로 품어.
- (만 heterothallic 균주에 대한) 특정 페로몬 농도에 반응을 모니터링하기 위해 30 ° C에서 세포 배양 3 ㎖를 품어, 200 rpm으로 3 ~ 4 시간 동안 이미징 세포를 장착하기 전에.
- 95 ° C 열 블록의 MSL-N 함유 microcentrifuge 관을 제거 (프로토콜 섹션 2.4.1을 참조하십시오. 아래). 용융 MSL-N 아가로 오스에서 직접 원하는 농도로 P-인자 또는 M-요소를 추가합니다. 즉시 패드를 준비하기 전에 텍싱에 의해 잘 섞는다.
- 셀을 장착 한 후, 이전 영상 25 ° C에서 15 ~ 30 분 동안 패드를 품어. P-M-인자 및 인자 페로몬 메탄올 1 ㎎ / ㎖의 스톡 용액으로부터 사용 하였다.
참고 : 돌연변이와 함께 작업하는 배양 시간이 다를 수 균주합니다. 세포의 응집 액체 m에서 장기간 배양 후 발생할 수있는edia 일부 돌연변이 균주에 특히 강한 될 수있다. 응집되어 세포 단층을 아가 로스에서 패드 상에 발견함으로써 자동 초점 화상하기 어려운 수 없다. 광범위한 세포 응집되는 경우에는 즉시 세척 후 아가로 오스 패드에 세포를 장착하고 다시 정지를 질소 부족 미디어 (프로토콜 2.3.1 절에서와 같이.) 전에 영상 30 ° C에서 그들을 품어.
- 이미징을위한 세포 장착 :
- 10 ~ 15 분 동안 95 ° C 열 블록으로 나누어지는 용융 및 스페이서 (그림 1B)에 의해 분리 된 두 개의 유리 슬라이드 사이에 200 μl를 추가하여 MSL-N에게 아가로 오스 패드 (16)를 준비합니다. ~ 0.5 mm의 두께를 갖는 스페이서를 사용한다. 스페이서하려면 사용 스트립은 제한 효소로 전달 된 것과 같은, 판지에서 잘라.
- 1 분 동안 1,000 XG에서 세포를 100 μl를 펠렛 뜨는을 제거하고 잔류 2-4 μl의 배지에서 세포를 다시 일시 중지합니다. 그것이 지연으로하지 마십시오 신선한 매체에 다시 일시 중지교배.
- 2 ~ 3 분 후에 조심스럽게 스페이서 상단 유리 슬라이드를 제거합니다. 몇몇 균주가 장착되는 경우, 세포가 아가 로스 패드를 제조하기 전에 농축 물을 준비.
- 패드 세포의 1 μl를 추가하고 드롭 커버 슬립으로 덮고 VALAP로 밀봉하기 전에 (~ 1 분) 건조 시작할 때까지 기다립니다.
- 패드는 25 ° C 또는 RT에서 촬영하기 전에 적어도 30 분 동안 앉아 보자.
- 짝짓기의 다양한 단계에서 세포의 혼합물을 얻으려면, MSL-N (2.3 절을 참조하십시오.)에서 세척 후 즉시 패드를하고 18 ° CO / N (~ 15 시간)에 품어. 이 방법은 약한 신호 높은 시간 해상도가 필요하거나 샘플과 별개의 결합 단계에서 세포를 영상화하는 데 유용합니다.
상대 효모 세포의 3. 라이브 셀 이미징
- 이미지 인식 설정을 조정합니다.
참고 : 여기에 제시된 이미지 획득 설정은 사용자 정의 올림푸스 IX-71으로 구성된 DeltaVision 플랫폼에 최적화 된계획 아포 60X / 1.42 NA 또는 U-계획 아포 100X / 1.4 NA 목표, CoolSNAP HQ2 카메라와 인사이트 SSI 7 색 조합 단위 조명과 거꾸로 현미경. 하드웨어는 디지털 자동 초점을 가능하게 softWoRx의 v4.1.2에 의해 제어된다.- 장시간에 걸쳐 Z 드리프트 소프트웨어 자동 초점 시스템의 용량을 넘어 설 수 있기 때문에 오토 포커싱 간격이 15 분을 초과하지 않도록. 하드웨어 기반의 자동 초점 시스템을 이용하면, 큰 간격을 사용한다.
- 촬영 간격을 조정합니다. 형광 처음으로 단백질을 태그로 작업 할 때 시작점으로 15 시간 ~에 대한 이미지마다 10 분 가져 가라. 이 간격은 광범위한 표백 않고 전체 정합 프로세스의 양호한 개요를 제공한다.
- 이러한 융합으로 더 정확하게 시간 이벤트 5 분 간격으로 이하와 이미지. 짧은 간격으로 낮은 노출 시간과 약간의 표백을 가능하게 강한 형광을 필요로한다. 1 분 피하기 O / N 현미경 아래 간격 이미징프로토콜 섹션 2.4.6에 설명 된대로 대신 모두 결합 단계의 혼합물을 준비합니다.
- 이미지 노출 시간을 조정합니다. 50 ~ 300 밀리 초 사이의 시험 노출 시간. (일반적으로 100) 뚜렷한 신호와 시간 - 다수의 지점을 달성하도록 신호 대 잡음비 및 광표백 간의 균형을 목표로한다.
- Z-절편을 조정합니다. 섹션마다 0.3 ㎛의 피복이 5㎛ 좋은 촬상 깊이를 제공한다. (- 전체 표본 깊이의 단일 스위프 취득 광축 통합) OAI을 사용하여 최소화 할 수있는 Z-절편 더욱 증가 광 손상을 참고. 좋은 자동 초점 시스템은 많은 Z 섹션에 대한 필요성을 감소시키고, 추천된다.
- 팁 결합 형 특정 동작을 연구합니다 :
- heterothallic 균주, H- 사용하여 두 종류의 세포를 구별 할 수 있도록 H + 세포는 형광을 발현하는 별개. 어떤 유전자 인코딩 fluoropho를 사용하여우리가 sfGFP, GFP (17)의 빠른 접는 변형 좋은 성공이 있었다하지만, 내인성 단백질을 세포질 버전 또는 융합으로 표현 다시. 내인성 단백질은 일반적으로 상동 재조합 (14)에 의해 자신의 내생 게놈 궤적에 태그가 지정됩니다.
- homothallic 균주 각각 P 및 M 세포에서 발현을 유도하는 등 페로몬 수용체 유전자 map3 체크하고 mam2의 것과 결합 형 특이 적 프로모터의 제어하에 유전자 부호화 세포질 형광 단백질을 발현. map3 체크 및 mam2의 프로모터는 식물의 성장 기간 동안 비활성 질소 기아 (18, 19)에 유도된다. 이러한 프로모터의 통제하에 GFP 또는 세포질 mCherry의 발현을 구동 구조체는 일반적으로 성적주기 (12)의 정상적인 진행을 방해하지 않는 게놈 유전자좌 (ura4, leu1)에 통합된다.
- (프로토콜 3.2.2 절에서와 같이)를 사용하여 결합 형 특정 세포질 형광은 다른 하나의 파트너 세포에서 형광 신호의 전송으로 시각 세포 융합의 정확한 타이밍을 결정합니다.
결합 및 융합 효율성 4. 정량
- 위의 단계 2.3.1에서와 같이, MSL-N 아가로 오스 패드에 세척 직접 MSL-N 후 결합 및 융합 효율성 11, 12, 스팟 세포를 정량화하고, 25 ° C 전에 이미징 (그림 1A)에서 24 시간 동안 둡니다. 이 homothallic 야생형 균주의 결합 효율에 도달 프로토콜 ~ 60 % 융합 효율 99 % 사용. 돌연변이 균주에서 관찰이 값의 삭감 터미널 표현형 또는 지연을 반영 여부를 테스트하기 위해 36 시간의 배양 시간과 실험을 반복한다.
- 같은 결합 효율을 계산
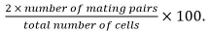 결합 쌍에서 확인 접합체, ASCI 및 융합 세포 쌍을 포함서로에 대한 그들의 위치와 성장.
- 같은 융합 효율을 계산
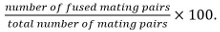
참고 융합 결합 쌍는 연구중인 돌연변이 포자 형성에 영향을주지 않는 것으로 알려져 있다면 포자를 형성하는 능력에 의해 식별된다. 포자는 판독으로 사용할 수없는 경우, 융합 파트너 모두에 하나의 결합 파트너 표현 세포질 마커의 확산을 관찰함으로써 결정된다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
질소 소스를 제거하면 분열 효모의 성장과 결합 역학
질소 기아는 분열 효모에서 유성 생식의 시작을위한 전제 조건이기 때문에, 야생형 homothallic H90 균주는 그림 1에 설명 된 프로토콜에 따라 질소가 풍부한 질소 박탈 매체 (그림 2)에서 변화에 따라 측정 하였다. 요약하면, 세포를 , MSL + N 매체에 지수 상 (OD = 0.5 (600))에 O / N 성장 수집, 세척 및 최종 OD 600 = 1.5 MSL-N 액체 배지에 재현 탁 하였다. 세포의 각 2 시간 씩 스테인드 CALCOFLUOR 및 (- D 그림 2A)을 이미지화했다.
CALCOFLUOR 염색...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
환경 조건, 영양 가용성은 특히 강하게 분열 효모의 생리에 영향을 미칩니다. 질소 기아는 유성 생식에 헌신 필요하고 초기에 유사 분열 세포주기 진행에 눈에 띄는 변화 (참조. 21 및 그림 2)에 연결됩니다. 기하 급수적으로 증가하는 인구에서 질소 제거 후, 부문 셀 크기가 빠르게 (도 2C) 감소하고 세포의 대부분은 새로 태어난 기하 급수적으로 성장 세포 (참조. 21,도 2D)의 길이보다 짧은 유사 분열 진행을 저지. 반대 짝짓기 종류의 세포가 유사 분열 진행을 체포으로 그들은 파트너 짝짓기 참여하고 접합체 및 sporulate (그림 2B, 2E, 2F)를 형성하기 위해 진행합니다. H90 세포를 60 % 이상의 야생형 세포의 2 차원 단층의 경우, 세포 융합 (도 2G를 받게 될 것이다 거의 모든 파트너와 결합하며 ...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 경쟁하는 금전적 이해관계가 없음을 선언합니다.
감사의 글
AV는 EMBO 장기 박사 친교에 의해 지원되었다. 마틴 실험실에서 연구 ERC 시작 부여 (GeometryCellCycle)과 SGM에 스위스 국립 과학 재단 (National Science Foundation) 부여 (31003A_155944)에 의해 투자된다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 포도 | 시그마-알드리치 | G8270-10KG | |
| KH2PO4 | Sigma-Aldrich | 1.05108.0050 | |
| NaCl | 시그마-알드리치 | 71381 | |
| MgSO4• 7H2O | Sigma-Aldrich | 63140 | |
| CaCl2 | Sigma-Aldrich | 12095 | |
| 판토텐산 | AppliChem | A2088,0025 | |
| 니코틴산 | AppliChem | A0963,0100 | |
| Inositol | AppliChem | A1716,0100 | |
| 비오틴 | AppliChem | A0967,0250 | |
| 붕산 | 시그마-알드리치 | B6768-1KG | |
| MnSO4 | AppliChem | A1038,0250 | |
| ZnSO4• 7H2O | 시그마-알드리치 | Z4750 | |
| FeCl2• 6H2O | AppliChem | A3514,0250 | |
| 몰리브덴 옥사이드(VI) (MoO3) | Sigma-Aldrich | 69850 | |
| KI | AppliChem | A3872,0100 | |
| CuSO4• 5H2O | AppliChem | A1034,0500 | |
| 구연산 | AppliChem | A2344,0500 | |
| 아가로스 | 프로메가 | V3125 | |
| (NH4)2SO4 | Merck | 1.01217.1000 | |
| L-Leucine | Sigma-Aldrich | L8000-100G | |
| 아데닌 헤미술파트 솔트, 미니 99% | Sigma-Aldrich | A9126-100G | |
| Uracil | 시그마-알드리치 | U0750 | |
| 라놀린 | 시그마-알드리치 | L7387 | |
| 바셀린 | 리액톨랩 | 92045-74-4 | |
| 파라핀 | 리액톨랩 | 7005600 |
참고문헌
- Mata, J., Bahler, J. Global roles of Ste11p, cell type, and pheromone in the control of gene expression during early sexual differentiation in fission yeast. Proc Natl Acad Sci U S A. 103 (42), 15517-15522 (2006).
- Xue-Franzen, Y., Kjaerulff, S., Holmberg, C., Wright, A., Nielsen, O. Genomewide identification of pheromone-targeted transcription in fission yeast. BMC Genomics. 7, 303(2006).
- Klar, A. J. Lessons learned from studies of fission yeast mating-type switching and silencing. Annu Rev Genet. 41, 213-236 (2007).
- Beach, D. H., Klar, A. J. Rearrangements of the transposable mating-type cassettes of fission yeast. EMBO J. 3 (3), 603-610 (1984).
- Merlini, L., Dudin, O., Martin, S. G. Mate and fuse: how yeast cells do it. Open Biol. 3 (3), 130008(2013).
- Mochizuki, N., Yamamoto, M. Reduction in the intracellular cAMP level triggers initiation of sexual development in fission yeast. Mol Gen Genet. 233 (1-2), 17-24 (1992).
- Sugimoto, A., Iino, Y., Maeda, T., Watanabe, Y., Yamamoto, M. Schizosaccharomyces pombe ste11+ encodes a transcription factor with an HMG motif that is a critical regulator of sexual development. Genes Dev. 5 (11), 1990-1999 (1991).
- Kjaerulff, S., Lautrup-Larsen, I., Truelsen, S., Pedersen, M., Nielsen, O. Constitutive activation of the fission yeast pheromone-responsive pathway induces ectopic meiosis and reveals ste11 as a mitogen-activated protein kinase target. Mol Cell Biol. 25 (5), 2045-2059 (2005).
- Obara, T., Nakafuku, M., Yamamoto, M., Kaziro, Y. Isolation and characterization of a gene encoding a G-protein alpha subunit from Schizosaccharomyces pombe: involvement in mating and sporulation pathways. Proc Natl Acad Sci U S A. 88 (13), 5877-5881 (1991).
- Toda, T., Shimanuki, M., Yanagida, M. Fission yeast genes that confer resistance to staurosporine encode an AP-1-like transcription factor and a protein kinase related to the mammalian ERK1/MAP2 and budding yeast FUS3 and KSS1 kinases. Genes Dev. 5 (1), 60-73 (1991).
- Bendezu, F. O., Martin, S. G. Cdc42 explores the cell periphery for mate selection in fission yeast. Curr Biol. 23 (1), 42-47 (2013).
- Dudin, O., et al. A formin-nucleated actin aster concentrates cell wall hydrolases for cell fusion in fission yeast. J Cell Biol. 208 (7), 897-911 (2015).
- Chikashige, Y., et al. Telomere-led premeiotic chromosome movement in fission yeast. Science. 264 (5156), 270-273 (1994).
- Bahler, J., et al. Heterologous modules for efficient and versatile PCR-based gene targeting in Schizosaccharomyces pombe. Yeast. 14 (10), 943-951 (1998).
- Egel, R., Willer, M., Kjaerulff, S., Davey, J., Nielsen, O. Assessment of pheromone production and response in fission yeast by a halo test of induced sporulation. Yeast. 10 (10), 1347-1354 (1994).
- Tran, P. T., Marsh, L., Doye, V., Inoue, S., Chang, F. A mechanism for nuclear positioning in fission yeast based on microtubule pushing. J Cell Biol. 153 (2), 397-411 (2001).
- Pedelacq, J. D., Cabantous, S., Tran, T., Terwilliger, T. C., Waldo, G. S. Engineering and characterization of a superfolder green fluorescent protein. Nat Biotechnol. 24 (1), 79-88 (2006).
- Kitamura, K., Shimoda, C. The Schizosaccharomyces pombe mam2 gene encodes a putative pheromone receptor which has a significant homology with the Saccharomyces cerevisiae Ste2 protein. EMBO J. 10 (12), 3743-3751 (1991).
- Tanaka, K., Davey, J., Imai, Y., Yamamoto, M. Schizosaccharomyces pombe map3+ encodes the putative M-factor receptor. Mol Cell Biol. 13 (1), 80-88 (1993).
- Motegi, F., Arai, R., Mabuchi, I. Identification of two type V myosins in fission yeast, one of which functions in polarized cell growth and moves rapidly in the cell. Mol Biol Cell. 12 (5), 1367-1380 (2001).
- Sajiki, K., Pluskal, T., Shimanuki, M., Yanagida, M. Metabolomic analysis of fission yeast at the onset of nitrogen starvation. Metabolites. 3 (4), 1118-1129 (2013).
- Miyawaki, A., Nagai, T., Mizuno, H. Mechanisms of protein fluorophore formation and engineering. Curr Opin Chem Biol. 7 (5), 557-562 (2003).
- Dyer, J. M., et al. Tracking shallow chemical gradients by actin-driven wandering of the polarization site. Curr Biol. 23 (1), 32-41 (2013).
- Beta, C., Bodenschatz, E. Microfluidic tools for quantitative studies of eukaryotic chemotaxis. Eur J Cell Biol. 90 (10), 811-816 (2011).
- Lee, S. S., et al. Quantitative and dynamic assay of single cell chemotaxis. Integr Biol (Camb). 4 (4), 381-390 (2012).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
