여기서는 대장균의 복제 분기점을 멈추고 붕괴시키기 위해 부위 특이적이고 가역적인 생체 내 단백질 블록을 사용하는 시스템을 설명합니다. 복제 블록의 설정은 형광 현미경으로 평가하고 중성 2차원 아가로스 겔 전기영동을 사용하여 복제 중간체를 시각화합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
이 논문에서
요약
초록
밀접하게 결합 단백질과 다양한 병변을 포함하여 DNA에 존재하는 장애물, 심각한 세포의 복제 기계의 진행을 억제 할 수 있습니다. replisome의 실속 복제 포크의 붕괴로 이어지는 염색체의 어느 부분 또는 전체의 해리가 발생할 수 있습니다. 이 붕괴로부터의 복구는 셀에 정확하게 완전한 염색체 복제 및 이후 분할에 대한 필요성이다. 복제를 DNA 포크를 복원하고 수 있도록 자리를 차지할 붕괴가 발생하면 따라서 세포가 진화하고 다양한 메커니즘은 높은 충실도 완료합니다. 이전에, 박테리아에서 이러한 복제 보수 경로는 알려진 위치에 국소 없다는 단점이 UV 손상을 이용하여 연구되었다. 이 원고 실속 복제 FO 붕괴를 유도 할 수있는 부위 특이 단백질의 블록을 생성하는 형광 리프레 조작 시스템 (FROS)을 이용하는 시스템을 개시대장균에서 RKS. 복제 상태는 형광 현미경 및 DNA 복제 중간체를 사용하여 하나의 살아있는 세포에서 가시화 될 수있는 방법을 프로토콜 세부 2 차원 아가로 오스 겔 전기 영동에 의해 분석 될 수있다. replisome 성분 (예 DnaBts)의 온도 민감성 돌연변이 복제 포크 동기 붕괴를 유도하는 시스템에 포함될 수있다. 더욱이, 이러한 프로세스에 관련된 재조합 단백질 및 헬리의 역할은이 시스템에서 유전자 녹아웃을 이용하여 연구 할 수있다.
서론
DNA 복제 동안 replisome 그 진행을 저해 DNA의 장애물에 직면하고있다. DNA 병변과 간격을 포함한 피해뿐만 아니라 비정상적인 구조는 1 진행에서 replisome를 방지 할 수 있습니다. 최근,이 DNA에 결합하는 단백질 포크 진행 2 복제 장애의 가장 일반적인 원인 인 것으로 밝혀졌다. 핵 단백질 블록과 replisome의 발생에 따라 이벤트의 기술은 이미 공지 된 위치에서 살아있는 세포의 염색체 이러한 블록을 유도하는 무능력에 의해 제한되었다. 시험 관내 분석은 운동 동작에 대한 이해를 강화했다 그것이 핵 단백질 막힘 3뿐만 아니라 4,5- replisome 자체의 기계적인 세부 사항을 충족하는 활성의 replisome. 복제의 수리 현재 이해는 일반적으로 생체 6-8에서 플라스미드 DNA를 사용하여 손상 에이전트로 자외선을 수행하고 연구한다 입니다. 그것은 일반적으로 이러한 연구로부터 이해되는 생체 핵 단백질 블록을 발견 한 후 복제 블록 내의 별개의 원인으로 인해 복구 경로 내에서 분자 수준의 변화가 아직 여전히 존재 여부, DNA의 복구에 관여 할 수있는 단백질 동안 결정한다.
여기서, 우리는 핵 단백질 블록 형광 리프레 조작 시스템 (FROS)를 이용하여 염색체의 특정 위치에 설정 될 수있는 시스템을 설명한다. 우리는 E.의 변형을 이용 염색체에 도입 구 (240) TETO 사이트의 어레이를 갖고 대장균. 어레이 내의 각 TETO 사이트는 어레이 내에 RECA 매개 재결합을 방지함으로써 배열의 안정성을 증가시키기 위해 측면 10 bp의 랜덤 시퀀스를 가진다. 이 배열하고, 그것의 변형이 원래 E.를 이해하는 데 사용 된 대장균 염색체 역학 10,11하지만 preve에 적응했다NT를 생체 내 복제 12. 어레이 안정적 유지하고 TetR (10, 12)에 의해 결합 될 때 복제 포크의 100 %에 가까운 차단하는 것으로 밝혀졌다. 22 사이트 복제의 90 %를 차단하기에 충분한 보유하면서이 짧은 배열 생체 13 덜 효과적 이었지만 체외 유사한 LACO 어레이의 사용은 몇으로 발견했다. 핵 단백질의 차단을 만들 배열을 적용하려면 리프레 서 단백질은 매우 그 다음로드 블록을 만들 배열에 결합 최적화 된 조건 하에서 과잉 생산해야합니다. 테트 리프레의 형광 태그 변형이 사용되는 경우, 막힘의 형성, 및 후속 릴리스는 형광 현미경을 사용하여 모니터링 할 수있다. 각 셀 복제 상태는 하나의 초점은 상기 어레이의 하나의 복사본 만이 상기 셀 내에 존재하는 다수의 초점 복제 활성을 나타내는 것을 의미한다 본 병소의 수에 의해 표시된다. 이 활성 재핵 단백질 막힘이 replisome 배열을 통해 진행을 위해 충분히 운영자 사이트 TetR의 결합 친 화성을 감소 무상 유도의 추가에 의해 반전 될 때 습곡 사용할 수 있습니다. 리프레 단백질은 여전히 배열 이제 여러 복사본이 가시화 될 수있는 충분히 높은 친화력을 가진 DNA에 결합 할 수있다.
핵 단백질 막힘의 이벤트의 더 복잡한 세부 중성 중립 이차원 아가 로스 겔 전기 영동 및 서던 하이브리드 14-16를 사용하여 발견 될 수있다. 이러한 기술은 인구 전체 DNA 구조의 분석을 허용한다. 잠재적 이벤트 동안 형성되고 복제 중간체는 가시화 될 수 있으며, 수리되지 않은 남아있다. 제한 효소 및 프로브 이용를 변화시킴으로써, 중간체는 어레이 영역뿐만 복제 포크 (17, 18)를 회귀 때 어레이의 업스트림뿐만 가시화 될 수있다. 그만큼회귀는 replisome 해리 이후에 일어난다; 선행 및 후행 초기 스트랜드 사방 DNA 구조 (a 할러데이 접합)에 생성 된 템플릿 가닥 동시에 재 어닐링으로 서로 주형 가닥과 어닐링 분리.
이 블록 (18)을 만나면 복제 포크 안정 아니라고 도시 된 본 시스템. 또한 replisome 부품의 온도 민감성 유도체가 붕괴되면 복제 포크 리로딩 방지하는데 이용 될 수있다. 블록이 설정되면, 스트레인은 replisome의 동기 비활성화 및 재로드의 제어 방지를 보장하기 위해 비 - 허용 온도로 이동시킬 수있다. 이 온도 - 유도 된 비활성화는 주어진 시간에 붕괴 집단 내의 모든 포크를 보장하고 replisome는 DNA를 처리하는 방법, 축소, 어떤 재 요구 될 때 발생하는 평가를 허용DNA 복제 과정을 시작한다.
여기에 설명 된 시스템의 장점은 핵 단백질 블록 완전히 가역적이다; 따라서, 핵 단백질 블록으로부터 복구하는 세포의 능력에 따라야 할 것이다. 세포에 anhydrotetracycline의 첨가는 복제 포크를 진행 할 수있게 꽉 리프레의 결합을 완화되고 세포 생존 능력을 회복. 막힘의 경감은 5 분 후에 중립 중립 이차원 아가로 오스 겔 전기 영동에 의해 가시화, 10 분 이내 현미경으로 할 수있다. 또한, 생존 분석 복제 막힘 회복 및 증식을 계속하는 균주의 능력을 표시 할 수있다.
여기에 설명 된 실험 절차에 사용되는 균주의 유전 적 배경을 변경함으로써, 막힘이 유형 복구 경로를 해명 할 수있다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
1. FROS와 복제를 차단
- 복제 막힘을 유도
- E.의 신선한 야간 문화를 희석 OD를 600 ㎚ = 희석 복합 배지에서 0.01로 TETO 어레이 pKM1 18 실시 대장균 (0.1 % 트립 톤, 0.05 % 효모 추출물, 0.1 %의 NaCl이 0.17가 M KH 2 PO 4, 0.72 MK 2 HPO 4) 항생제는 필요 선택.
참고 :이 시스템과 호환되지 않습니다으로 선택을 위해 테트라 사이클린을 추가하지 마십시오. 필요한 샘플 당 10 ml의에 해당 문화의 볼륨을 확인합니다. 예를 들어,도 1의 실험 디자인 배양 부피 60 mL로한다. - OD 600 nm의 = 0.05-0.1까지 진탕 30 ° C에서 성장. 유도되지 않은 제어 역할을하고 pKM1에서 TetR-YFP의 생산을 유도하기 위해 남아있는 문화를 0.1 % 아라비 노스를 추가하는 10 ml의 샘플을 제거합니다. 유도되지 않은 및 유도 모두 계속 증가문화. 1 시간 후, (섹션 2 참조) 형광 현미경을 이용하여 유도 배양 각 셀 내의 단일 초점의 존재를 확인한다.
- 유도 세포 (세포의 70 % 이상이 단일 초점을) 차단이 확인되면, OD600nm에서 기록 및 2-D 젤 (섹션 3 참조)에 의해 분석을 위해 7.5 ml의 샘플을 채취. 유도되지 않은 제어 문화에서 동등한 샘플을 가져 가라.
- E.의 신선한 야간 문화를 희석 OD를 600 ㎚ = 희석 복합 배지에서 0.01로 TETO 어레이 pKM1 18 실시 대장균 (0.1 % 트립 톤, 0.05 % 효모 추출물, 0.1 %의 NaCl이 0.17가 M KH 2 PO 4, 0.72 MK 2 HPO 4) 항생제는 필요 선택.
- 복제 막힘 해제
- 복제 블록을 해제 차단 된 세포의 10 ml의 샘플에 무상 유도의 anhydrotetracycline (AT)의 100 NG ml의 -1을 추가합니다. 10 분 동안 30 ° C에서 성장과 세포 밀도 (1 ㎖), 현미경 분석 (10 μL) 및 중립 중립 2 차원 아가 로스 젤 (7.5 ㎖)에 대한 샘플을 계속합니다.
- Replisome의 축소를 유도
- 세포는 dnaB의 TS 또는 dnaC 시액으로 온도에 민감한 대립 유전자를 포함하는 경우 그 deactiva이 필요합니다기 42 ° C로 차단 된 세포를 포함하는 플라스크를 이동합니다. 필요한 시점에서 분석을 위해 샘플을 채취 (예, 1 시간 배양 후). 세포를 1 시간 동안 42 ° C에서 배양 한 후, 10 분 (도 1 참조), 30 ° C로 세포 이동.
주 : 세포 재시작 분석 30 ° C로 전환 될 수있다.
- 세포는 dnaB의 TS 또는 dnaC 시액으로 온도에 민감한 대립 유전자를 포함하는 경우 그 deactiva이 필요합니다기 42 ° C로 차단 된 세포를 포함하는 플라스크를 이동합니다. 필요한 시점에서 분석을 위해 샘플을 채취 (예, 1 시간 배양 후). 세포를 1 시간 동안 42 ° C에서 배양 한 후, 10 분 (도 1 참조), 30 ° C로 세포 이동.
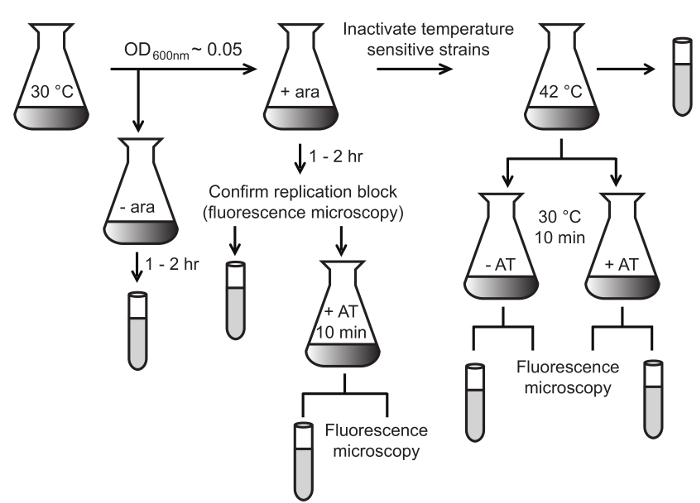
그림 1 :. FROS 복제 블록 및 릴리스 실험 절차의 개요 E. Teto의 배열을 운반하는 대장균 균주는 30 ° C에서 성장하고 있습니다. 세포는 0.05 위의 OD를 600 ㎚에 도달 할 때, TetR-YFP 생산은 아라비 노스로 유도된다 (아라; 0.1 %). 유도되지 않은 세포의 모집단이 30 ° C에서 컨트롤 역할을 할 성장을 계속합니다. 2 시간 (2.1 참조) - 유도 된 세포 샘플 하나 후 형광 현미경을 통해 분석된다. 복제가 있다면차단 확인, 시료 시험관 (3.1 참조)로 나타낸 2-D 겔 분석 (옵션) 생존력 실험에 대해 수행된다. 복제가 차단 (AT; 0.1 μg의 / ㎖) anhydrotetracycline 제거 할 수 있고, 세포를 10 분 이상으로 하였다. 세포 (예 dnaB TS) 온도에 민감한 대립 유전자를 운반하는 경우,이 적절한 분석을 위해 42 ° C로 차단 된 세포를 이동하여 비활성화 할 수 있습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
2. 형광 현미경
- 현미경 슬라이드 상에 용융 아가로 오스 (물 1 %)의 500 μl를 피펫 팅하여 아가로 오스 패드를 준비; 아가로 오스 응고되기 전에 즉시 coverslip에 오버레이. 필요할 때까지 4 ° C에서 젖은 조직에서 슬라이드 (들)을 저장합니다.
- 아가로 오스가 고형화되면, 아가 패드 피펫으로부터 박테리아의 10 μl를 커버 슬립을 제거패드의 중심 상에 시각화 배양시 세포의 이동을 방지한다. 시료 (약 5 분) 건조되면, 커버 슬립을 교체합니다. 커버 슬립에 침지 기름 한 방울을 놓고 광학에서 슬라이드를 배치합니다.
- 100X 배율에서 위상 현미경을 사용하여 세포를 시각화합니다.
- 이미징 소프트웨어 내에서 획득 대화 상자에서 100 밀리 초에 노출되는 시간을 설정합니다. 획득을 선택하여 이미지를 캡처합니다. 무대를 이동하지 마십시오. 획 득 대화 상자에서 카메라에 연결된 외부 셔터의 조명으로 YFP을 선택합니다. 1000 밀리 초에 exporsure 시간을 설정합니다. 무대 조명의 전원을 끄십시오. 획득을 선택하여 형광 이미지를 캡처.
참고 : 시간은 사용하는 광원, 현미경과 카메라에 따라 다를 수 있습니다. - 위상 및 형광 이미지를 오버레이, 컬러 디스플레이 메뉴 내에서 결합을 선택합니다. 색으로 대화 상자를 결합 녹색 성분 및 BL 같이 위상 이미지로 YFP 이미지를 선택UE 구성 요소입니다. 결합 색상을 클릭합니다. 인구가 성공적으로 세포의 대부분은 세포 당 하나의 포커스가 있는지 여부를 설정하여 복제 차단했다 여부를 결정합니다.
참고 : 시각적으로 EYFP 생산의 차이를 식별에 추가 아라비 노스없이 컨트롤에서 샘플 비교에 유용합니다.
- 이미징 소프트웨어 내에서 획득 대화 상자에서 100 밀리 초에 노출되는 시간을 설정합니다. 획득을 선택하여 이미지를 캡처합니다. 무대를 이동하지 마십시오. 획 득 대화 상자에서 카메라에 연결된 외부 셔터의 조명으로 YFP을 선택합니다. 1000 밀리 초에 exporsure 시간을 설정합니다. 무대 조명의 전원을 끄십시오. 획득을 선택하여 형광 이미지를 캡처.
3. DNA 추출 / 아가로 오스 플러그
- 단계 1.1.3과 1.2.1에서 7.5 ml의 배양 샘플에 아 지드 화 나트륨 (0.1 %의 최종 농도)를 추가합니다. 적어도 5 분 동안 얼음에서 인큐베이션.
주 : 아 지드 화 나트륨은 매우 독성이다. 작업을 시작하기 전에 안전 보건 자료 (MSDS)를 참조하고 모든 안전 예방 조치 문구를 읽고 이해하기 전에는 그것을 처리하지 않습니다. - 10 분 펠릿 세포에 대한 세포에게 5,000 XG를 원심 분리기. 뜨는을 취소하고 페트 IV (PIV) 버퍼 200 μL에 펠렛을 재현 탁 (10 mM 트리스 : 염산 (PH 8.0), 1 M의 NaCl). 마이크로 원심은 (13, 2 분 동안 000 XG)는 세포 펠렛합니다. 디뜨는을 scard. 이 단계, -20 ° C에서 펠렛 더 공정 또는 상점에서.
- 50 ° C에서 50 μL의 PIV 및 장소에서 가장 낮은 세포 밀도로 세포를 재현 탁. 최종 세포 밀도가 각 튜브에서 동일하므로 다른 모든 샘플은, PIV의 볼륨을 조절 (50 μL에 재현 탁 예 샘플 1 (OD를 600 ㎚ = 0.128), 샘플 2 54 μL에 재현 탁 (OD를 600 ㎚ = 0.138)).
- PIV 갓 제조 된 0.8 % 아가 용액을 같은 부피 추가 (최종 농 0.4 %. 예를 들어, 샘플 1 내지 50 ㎕의 샘플이 54 μL). 샘플, 아가로 오스와 PIV가 응고를 방지하기 위해 50 ° C 이상인지 확인합니다.
- 적절한 유리 발수 또는 실리콘 솔루션의 40 μL와 현미경 슬라이드를 취급합니다. 이 건조 될 때까지 휴지로 슬라이드를 문질러.
주 :이 사전에 수행 할 수 있고, 처리 된 슬라이드를 실온에서 장기간 보관. - t의 20 μl의 방울을 배치그는 슬라이드 셀 / 아가로 오스 서스펜션은 반구형이다 플러그를 생성한다.
참고 : (50 μL의 PIV에 재현 탁) 첫 번째 샘플은 하나의 슬라이드에 5 플러그를 생성합니다. - 플러그 고화 한 경우에는, 미세 원심 분리 관에 부드럽게 밀어 1 mL의 세포 용해 완충액 (10 mM 트리스 - 염산 [pH를 8, 1 M의 NaCl, 100 mM의 에틸렌 디아민 산 (EDTA), 0.2 % 나트륨 데 옥시 콜레이트, 0.5 %를 추가 N-Lauroylsarcosine 나트륨 염 (Sarkosyl), 100 μg의 용액에 1 - 리소자임, 50 μg의 ml로 - 하나의 RNase A). 2 시간 동안 37 ° C에서 품어.
- 세포 용해 완충액을 제거하고 1 ㎖의 EDTA / Sarcosyl / 테 K (ESP) 용액 (0.5 M EDTA, 1 % N-Lauroylsarcosine 나트륨 염 (Sarkosyl), 1 mg의 용액 1 - 테 K)를 추가한다. 하룻밤 또는 플러그가 투명 할 때까지 50 ° C에서 품어. 제 밤새 배양이 필요한 경우, 약 18 시간 후 새로운 버퍼와 ESP 솔루션을 대체.
- 제거ESP 버퍼 각각의 세척과 30 분의 평형을 허용, 12 ml의 트리스 EDTA (TE) 버퍼 (10 mM 트리스 - 염산, 1 mM의 EDTA, pH를 8.0)와 플러그 5 회 반복한다. 1 ml의 TE 버퍼 4 ° C에서 보관.
4. 중립 중립 2 차원 젤 전기 영동
- 신선한의 microfuge 튜브에 단계 3.8에서 아가로 오스 플러그를 전송하고 제한 효소 버퍼 (1 배 농도)의 150 μl를 추가합니다. 제한 효소 25-100 추가 유닛 (EcoRV로의 예를 들면, 60 단위 ()도 3a 참조). 6 ~ 8 시간 동안 37 ° C에서 다이제스트.
- 4 ° C에서 약 25 × 25 cm의 젤 트레이에 1X 트리스 / 붕산염 / EDTA (TBE)의 0.4 % 아가 로스 젤 (300 ml)에 붓는다. 약 웰 플러그의 지름과 동일한 폭 있도록 빗살입니까. 겔이 설정되면, 빗살를 제거하고 실온으로 겔을 이동.
- t 웰의 측면에 대해 플러그의 평탄한 슬라이드 위치 잘로 소화 아가 플러그를 밀어그는 DNA는 젤을 입력합니다. 매 초마다 우물에 동일한 방식으로 하나의 플러그를 삽입합니다.
- 위치에 플러그를 밀봉하는 웰에 0.4 % 아가로 용융 피펫.
- 비어있는 웰에 부하 1킬로바이트의 DNA 사다리 다시 사다리와 샘플 사이의 간극을두고, 실온에서 밤새도록 1X TBE에에서 (16 시간, 55 V)을 겔을 실행.
- 20 분 동안 에티 디움 브로마이드 (0.3 μg의 용액 -1)를 함유하는 수욕에서 겔 얼룩.
참고 : 에티 디움 브로마이드가 강력한 돌연변이와 독소로 간주됩니다. 작업을 시작하기 전에 안전 보건 자료 (MSDS)를 참조하고 모든 안전 예방 조치 문구를 읽고 이해하기 전에는 그것을 처리하지 않습니다. - 심지어 레인의 양측에 과잉 아가 로스를 포함 최소화 잘라 긴 파장의 UV transilluminator가 갖는 DNA를 시각화하고 직선과 각 레인 단편을 잘라.
주 : 관심의 단편을 5.5 킬로바이트 인 경우, 예를 들어, approximat 5 킬로바이트에서 DNA 단편을 포함하는 7.5 cm 단편을 잘라엘리 12킬로바이트 (그림 3A 참조). - DNA 이동의 방향에 90 °로 겔 트레이에서 적출 젤 레인을 놓습니다.
참고 : 3 젤 조각의 두 행은 25 × 25 2cm 젤 트레이에 들어갈 수 있습니다. 겔 레인의 첫 번째 행은 12.5 cm에서 트레이 번째 행의 상부에있다. - 두 번째 차원 젤 (0.3 μg의 ㎖의 -1 에티 디움 브로마이드와 1X TBE 0.9 %)에 대한 아가로 오스 300 ml의를 준비합니다. 아가로 오스가 50 ° C로 냉각 될 때, 자신의 위치를 응고 겔 조각 주위에 용융 아가 피펫. 겔 슬라이스로 적어도 레벨 깊이로 트레이에 남아있는 아가로 오스를 따르십시오.
- 젤이 응고되면 DNA가 약 10cm를 마이그레이션 할 때까지, 220 V에서 0.3 μg의 ㎖의 -1 에티 디움 브로마이드를 포함하는 1 배 TBE 4 ° C에서 electrophorese.
4 시간이 5.5 kb의 단편 충분하지만 작은 조각은 적은 시간이 필요합니다 있습니다. - 게놈 DNA는 본 U 인 블록 절제(도 3c 참조)도 표시되지 않은 DNA를 포함하도록 상기 겔을 포함하는 금속 눈금자의 가장자리 부를.
5. 남부 하이브리드
- 솔루션 준비
- 본 antibody 완충액 (0.125 M HCl 용액)을 준비한다.
참고 :이 버퍼가 다시 최대 1 개월 실온에서 안정 될 수있다. - 변성 버퍼 (1.5 M의 NaCl, 0.5 M 수산화 나트륨)를 준비합니다.
주 : 변성 버퍼가 다시 한번 실온에서 최대 3 개월 동안 안정 할 수있다. - 중화 완충액 (1.5 M의 NaCl, 0.5 M 트리스)을 준비한다. HCl로 pH를 7.5로 조정합니다.
주 : 중화 완충액 번 다시 실온에서 최대 3 개월 동안 안정 할 수있다. - 단계 5.2.4과 5.2.6에 사용 - 10 배 염 나트륨 시트르산 (SSC) 버퍼 (8 0.15 M 트라이 구연산 나트륨, 1.5 M의 NaCl은, pH가 7) 준비합니다. 이 버퍼에서 (단계 5.2.9에서 사용하기 위해) 2 배 SSC 주식을합니다.
참고 : 10 배의 SSC와 배 SSC a를3개월 동안 실온에서 안정한 재. - 수정 교회 및 길버트 혼성화 완충액 19 준비 (0.5 M 인산 완충액 [pH가 7.2, 7 % (/ v)의 소듐 도데 실 설페이트 (SDS), 10 mM의 EDTA w). 사용하기 전에 완전히 용해 65 ° C에서 둡니다.
- 본 antibody 완충액 (0.125 M HCl 용액)을 준비한다.
- 이전
- 로커 또는 궤도 쉐이커상에서 RT에서 10 분 동안 본 antibody 용액 절제된 겔 블록을 헹군다. 아가로 오스 블록의 손상을 방지하기 위해 낮은 교반 속도를 유지합니다.
- 30 분 동안 변성 버퍼 짧게 증류수 후 겔 블록을 헹군다. 증류수에 다시 잠시 헹군 후, 실온에서 교반과 함께 30 분 동안 중화 완충액 겔 블록을 배양한다.
- 겔 (들)의 정확한 크기를 나일론 막 잘라. 미래의 단계로 막을 배향을 지원하기 위해 오른쪽 상단 모서리에 별명을 잘라.
참고 : 두 젤 블록 (6 샘플)은 하나의 막에 가시화 될 수있다. - 그럴 필요로 충분히 10 배 SSC를 부어님은 밤새 건조하지 않도록. 약 5cm 버퍼의 수준 이상으로 플랫폼을 만듭니다. 플랫폼에 10 배 SSC와 장소 3MM 크로마토 그래피 용지 3 매를 포화. 가에 막 젤 들어갈만큼 충분히 긴 양쪽 끝에서 버퍼에 몰입 할 넓은되도록 크로마토 그래피 종이를 잘라.
- 포화 크로마토 그래피 종이 위에 젤 (들)을 놓습니다. 에 의해 통과 전송 중에 젤을 버퍼를 방지하기 위해 플라스틱 랩과 젤을 잡습니다. 조심스럽게 겔 (들)의 상단에 절단 막을 누워. 부드럽게 막에 걸쳐 병 또는 혈청 학적 피펫을 롤링하여 막과 젤 사이에 기포를 제거합니다.
- 멤브레인과 동일한 크기로 3MM 크로마토 그래피 용지 세 장을 잘라. 배 SSC로 크로마토 그래피 용지 포화 멤브레인의 상부에 배치했다. 형성 공기 방울을 제거합니다.
- 스택 종이 고체 지지체 다음에 블로 팅 페이퍼의 상단에 적어도 5cm 높은 수건 (아프로23 × 16 센티미터 막에 대한 1kg의 ximate 무게). 전송이 밤새 진행 할 수 있습니다.
- 막에 DNA를 가교 UV의 1,200 J / m 2 막 (DNA면을 위로)를 노출. 이 단계 이전에 세척하지 마십시오.
- 오점 이미지에 높은 배경을 방지하기 위해 2 배 SSC에서 철저하게 막을 씻어. 4 ° C에서 플라스틱 포장 및 저장에 포장, 하이브리드에 대한 즉시 얼룩을 사용하여 (5.3 참조) RT 그것을 건조.
- 이종 교잡
- 예열 하이브리드 오븐 및 55 ° C에 병입니다.
- 100 μg의 ml의 추가 -1 소 혈청 알부민 (BSA), 10 μg의 ml로 -1 비특이적 DNA (예를 들어 연어 정자 DNA)을 미리 가온 혼성화 버퍼.
- 하이브리드 버퍼의 경우에도 적용이 가능하도록 막을 올리고 경우, 위쪽으로 향하게 멤브레인의 DNA 바인딩면 메쉬 나일론의 비슷한 크기의 사각형에 오점을 배치합니다. 긴 가장자리를 따라 오 롤. 슬라이드오점가 / 하이브리드 병 내부에 메쉬. 오점을 풀다하기 위해 예열 하이브리드 버퍼의 적절한 금액을 추가 (예 : 23 X 16cm 2 막 30 ㎖).
- 1 시간 동안, 병을 회전 예열 된 오븐에서 인큐베이션.
- 13 μL의 부피를하기 클레 나우 단편 및 H 2 O에 대한 버퍼를 관심 영역으로 정제 된 PCR 생성물 상동 50 ng의 랜덤 헥사 머 프라이머 (150)의 NG를 혼합함으로써 상기 프로브를 준비한다. 3 분 후 얼음에 즉시 배치 끓인다. 1 ㎜의 dCTP / dGTP의 / dTTP를 믹스 1 μL, 알파 인산염 (α 32 P-으로 dATP)에 클레 나우 단편 (5U) 50 μCi를의 데 옥시 아데노신 5'- 삼인산 방사성 표지 1 μl를 추가합니다.
- 1 시간 동안 실온에서 품어. 밀리미터의 dNTP 믹스 1의 1 μL와 클레 나우 단편의 1 μl를 추가합니다. 실온에서 20 분을 품어.
- 5 분 동안 프로브를 끓여 및 하이브리드 튜브에 바로 추가 할 수 있습니다. 회전, 55 ° C에서 하룻밤 하이브리드.
- 홍보를 가만히 따르다막에서 OBE.
주 : 프로브 번 재사용 될 수있다. - 예열 낮은 엄격 세척 완충액으로 간단히 막을 린스 (2 × SSC, 0.1 % (W / V) SDS). 신선한 낮은 엄격 세척 버퍼를 추가하고 회전 55 ° C에서 5 분 동안 품어. 반복.
- 중간 엄격 세척 완충액으로 두 번 씻어 (1X SSC, 0.1 % (W / V) SDS) 회전으로 55 ° C에서 10 분 동안.
- 높은 엄격 세척 버퍼에 두 번 씻으 (0.1X의 SSC 0.1 % (W / V) SDS) 회전에 55 ° C에서 5 분.
- 초과 액체를 제거하기 위해 조직과 막과 DAB를 제거합니다. 사전 블랭킹 저장 형광체 화면에 노출 카세트에 플라스틱 포장과 장소에 남아있는 습기가없는 보장 플라스틱 랩에 싸서. 카세트를 닫고 형광체 이미 저를 사용하여 시각화하기 전에 적어도 2 시간 동안 노출.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
FROS는 살아있는 세포의 12, 18 시각화 복제 중간체 있도록 유도 성, 부위 특이 적 핵 단백질 블록이다. 세포를 채취하는 일반적인 실험 디자인은도 1에 도시된다. 유전 적 배경 샘플링 및 변화의 타이밍이 같은 블록의 복구를위한 연구 다기능 시스템을 만든다. 회로도는 이전에 18 사용 된 같은 dnaB 시액 및 dnaC의 TS 등 온도에 민감한 돌연변이가이 시스템에 이용 될 수있는 방법을 보여줍니다.
FROS의 유도는 E.을 실시 하였다 도 1에 도시 된 바와 같이, 대장균 균주 비 온도에 민감한 균주에 대한. 핵 단백질 블록이 설립했다 세포를 0.1 % 아라...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
염색체 복제 중에 복제 기계는 진행을 방해하는 다양한 장애물에 직면하게 됩니다. 전체 단일 기원 염색체가 복제되도록 하기 위해 박테리아는 DNA 복구를 위한 수많은 경로를 가지고 있으며, 이를 통해 레플솜을 다시 로드할 수 있습니다20,21. 병변, 단일 가닥 절단, 이중 가닥 절단 및 DNA에 단단히 결합된 단백질은 각각 전용 경로를 사용하여 처리할 수 있지만 이러한 경로에는 상당한 중복이 있을 수 있습니다. 살아있는 세포에서 레플리좀에 대한 가장 흔한 장애물은 핵단백질 블록2입니다. 그러나 레플리좀과 핵단백질 차단의 충돌을 연구하는 데 있어 두 가지 오랜 어려움은 사건을 염색체의 알려진 위치에 국소화하는 방법과 자세한 분석을 허용할 수 있을 만큼 사건을 자주 만드는 방법이었습니다. 대 장균 이 정체/붕괴된 복제 포크에 어떻게 대처하는지에 대한 지식의 대부분은 UV를 DNA 손상제로 사용하는 것에서 비롯됩니다.
여기에 설...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 경쟁하는 금전적 이해관계가 없음을 선언합니다.
감사의 글
이 연구는 호주 연구 위원회(Australian Research Council)[DP11010246]의 지원을 받았습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 트립톤 | 시그마-알드리치 | 16922 | 성장 매체 성분 |
| 염화나트륨 | VWR | 27810.364 | 성장 매체 성분 |
| 효모 추출물 | 시그마-알드리치 | 92144 | 성장 매체 성분 |
| 인산칼륨 일염기성 | 시그마-알드리치 | P9791 | 성장 배지 성분; 칼륨 완충제 성분 |
| 산칼륨 이염기성 | 시그마-알드리치 | P3786 | 성장 매체 성분; 칼륨 완충 성분 |
| L-Arabinose | Sigma-Aldrich | A3256 | TetR-YFP 생산 유도용 |
| Anhydrotetracycline hydrochloride | Sigma-Aldrich | 37919 | 복제 블로키지 |
| 릴리스 Axioskop 2 형광 현미경 | Zeiss | 452310 | 세포 |
| eYFP 필터 세트 | Chroma Technology | 41028 | 의 시각화YFP |
| CCD 카메라의 | Hamamatsu | Orca-AG | 세포 시각화 |
| MetaMorph 이 | SDR Scientific | 31282 | 버전 7.8.0.0 |
| Agarose | Bioline | BIO-41025 | 아가 로즈 플러그 및 젤 전기 영동 |
| Original Glass Water Repellent (Rain-X) | Autobarn | DIO1470 | For agarose plug manufacture |
| TRIS | VWR | VWRC103157P | TE, TBE buffer component |
| 에틸렌 디아민 테트라 아세트산 | Ajax Finechem | AJA180 | 0.5 M EDTA 디 소듐 염 용액을 NaOH로 pH 8.0으로 조정했습니다. |
| 아지드 나트륨 | : 시그마 -알드리치 | S2002 | 정균제 |
| 염산 | 시그마 알드리치 | 258148 | TE 완충 성분 |
| : 나트륨 데 옥시 콜레이트 | 시그마 -알드리치 | D6750 | 세포 용해 완충 성분 |
| N- 라우로 일 사르코신 나트륨 염 (사르 코실) | 시그마 - 알드리치 | L5125 | 세포 용해 및 ESP 완충 성분 |
| Rnase A | Sigma-Aldrich | R6513 | 세포 용해 완충액 성분 |
| Lysozyme | Amresco | 6300 | 세포 용해 완충액 성분 |
| Proteinase K | Amresco | AM0706 | ESP 완충액 성분 |
| Sub-Cell Model 192 Cell | BioRad | 1704507 | 전기영동 시스템 |
| UV transilluminator 2000 | BioRad | 1708110 | DNA |
| 의 시각화에티듐 브로마이드 | BioRad | 1610433 | DNA의 시각화 |
| 붕산 | VWR | , PROL20185.360 | TBE 구성 요소 |
| Hybond-XL, 나일론, memrbane | Amersham | RPN203S | Zeta-Probe, Memrbane (BioRad 1620159)도 사용할 수 있습니다 |
| , 3MM, Whatman 크로마토 그래피 종이 | GE Healthcare, Life Sciences, | 3030690 | Southern blotting |
| HL-2000, Hybrilinker | UVP | 95-0031-01/02 | DNA와 혼성화 |
| 디옥시리보 핵산 | Sigma-Aldrich | 31149 | 혼성화 완충액 성분 |
| 수산화나트륨 | Sigma-Aldrich | S5881 | 변성 완충액 성분 |
| 구연산 삼나트륨 이수화물 | VWR | PROL27833.363 | 전달 완충액 |
| 데실황산나트륨(SDS) | Amresco | 227 | 세척 완충액 성분 |
| 소 혈청 알부민 | 시그마 - 알드리치 | A7906 | 혼성화 완충액 성분 |
| 무작위 헥사머 프라이머 | Bioline | BIO-38028 | |
| Klenow 단편 | New England BioLabs | M0212L | |
| dNTP 세트 | Bioline | BIO-39025 | |
| 아데노신 5'- 삼인산 -< sup>32P-ATP | PerkinElmer | BLU502A | |
| 스토리지 형광체 스크린 | GE Healthcare Life Sciences | GEHE28-9564-76 | BAS-IP MS 3543 E 다목적 표준 35cm x 43cm 스크린 |
| Typhoon FLA 7000 | GE Healthcare Life Sciences | 28-9558-09 | 블롯 |
| 하이브리드화 병 | UVP | 07-0194-02 | 35mm x 300mm |
참고문헌
- Mirkin, E. V., Mirkin, S. M. Replication fork stalling at natural impediments. Microbiol Mol Biol Rev. 71 (1), 13-35 (2007).
- Gupta, M. K., et al. Protein-DNA complexes are the primary sources of replication fork pausing in Escherichia coli. Proc Natl Acad Sci U S A. 110 (18), 7252-7257 (2013).
- McGlynn, P., Guy, C. P. Replication forks blocked by protein-DNA complexes have limited stability in vitro. J Mol Biol. 381 (2), 249-255 (2008).
- Tanner, N. A., et al. Single-molecule studies of fork dynamics in Escherichia coli DNA replication. Nat Struct Mol Biol. 15 (2), 170-176 (2008).
- Hamdan, S. M., Loparo, J. J., Takahashi, M., Richardson, C. C., van Oijen, A. M. Dynamics of DNA replication loops reveal temporal control of lagging-strand synthesis. Nature. 457 (7227), 336-339 (2009).
- Rudolph, C. J., Upton, A. L., Lloyd, R. G. Replication fork stalling and cell cycle arrest in UV-irradiated Escherichia coli. Genes Dev. 21 (6), 668-681 (2007).
- Jeiranian, H. A., Courcelle, C. T., Courcelle, J. Inefficient replication reduces RecA-mediated repair of UV-damaged plasmids introduced into competent Escherichia coli. Plasmid. 68 (2), 113-124 (2012).
- Le Masson, M., Baharoglu, Z., Michel, B. ruvA and ruvB mutants specifically impaired for replication fork reversal. Mol Microbiol. 70 (2), 537-548 (2008).
- Wang, X., Liu, X., Possoz, C., Sherratt, D. J. The two Escherichia coli chromosome arms locate to separate cell halves. Genes Dev. 20 (13), 1727-1731 (2006).
- Lau, I. F., et al. Spatial and temporal organization of replicating Escherichia coli chromosomes. Mol Microbiol. 49 (3), 731-743 (2003).
- Gordon, G. S., et al. Chromosome and low copy plasmid segregation in E. coli: visual evidence for distinct mechanisms. Cell. 90 (6), 1113-1121 (1997).
- Possoz, C., Filipe, S. R., Grainge, I., Sherratt, D. J. Tracking of controlled Escherichia coli replication fork stalling and restart at repressor-bound DNA in vivo. EMBO J. 25 (11), 2596-2604 (2006).
- Payne, B. T., et al. Replication fork blockage by transcription factor-DNA complexes in Escherichia coli. Nucleic Acids Res. 34 (18), 5194-5202 (2006).
- Brewer, B. J., Fangman, W. L. The localization of replication origins on ARS plasmids in S. cerevisiae. Cell. 51 (3), 463-471 (1987).
- Jeiranian, H. A., Schalow, B. J., Courcelle, J. Visualization of UV-induced replication intermediates in E. coli using two-dimensional agarose-gel analysis. J Vis Exp. (46), (2010).
- Southern, E. M. Detection of specific sequences among DNA fragments separated by gel electrophoresis. J Mol Biol. 98 (3), 503-517 (1975).
- Courcelle, J., Donaldson, J. R., Chow, K. H., Courcelle, C. T. DNA damage-induced replication fork regression and processing in Escherichia coli. Science. 299 (5609), 1064-1067 (2003).
- Mettrick, K. A., Grainge, I. Stability of blocked replication forks in vivo. Nucleic Acids Res. , (2015).
- Church, G. M., Gilbert, W. Genomic sequencing. Proc Natl Acad Sci U S A. 81 (7), 1991-1995 (1984).
- Michel, B., Grompone, G., Flores, M. J., Bidnenko, V. Multiple pathways process stalled replication forks. Proc Natl Acad Sci U S A. 101 (35), 12783-12788 (2004).
- Michel, B., Boubakri, H., Baharoglu, Z., LeMasson, M., Lestini, R. Recombination proteins and rescue of arrested replication forks. DNA Repair (Amst). 6 (7), 967-980 (2007).
- Carl, P. L. Escherichia coli mutants with temperature-sensitive synthesis of DNA. Mol Gen Genet. 109 (2), 107-122 (1970).
- Nawotka, K. A., Huberman, J. A. Two-dimensional gel electrophoretic method for mapping DNA replicons. Mol Cell Biol. 8 (4), 1408-1413 (1988).
- Cole, R. S., Levitan, D., Sinden, R. R. Removal of psoralen interstrand cross-links from DNA of Escherichia coli: mechanism and genetic control. J Mol Biol. 103 (1), 39-59 (1976).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
