추적 eyeblink 클래식 컨디셔닝 (ECC) 평가 하는 데 사용 되었다 hippocampal 종속 연관 학습 했다 성인 쥐에 투여 초기 신생아 두뇌 개발 하는 동안 알코올의 높은 농도 (11.9 %v / v). 일반적으로, ECC 절차는 많은 심리적, 생물 의학 설정을 통해 뇌 기능 장애를 탐지 하기 위한 사운드 진단 도구입니다.
방법 논문
태아 알코올 스펙트럼 장애의 쥐 모델에서 Hippocampal 기능 장애를 평가 하기 위해 추적 Eyeblink 클래식 컨디셔닝의 사용
이 논문에서
요약
초록
신생아 쥐 관리 되었다 4-9, 산 후 시절 에틸 알코올 (11.9 %v / v)의 상대적으로 높은 농도 태아 뇌 조직의 급속 한 변화를 겪 습 비슷합니다 시간 가속 인간의 세 번째 임신 기간 중 발생 하는 뇌 변경. 태아 알코올 스펙트럼 장애 (FASDs)의이 모델 생산 양과-술자리 일부 임산부 알콜에 나타나는 패턴을 흉내 낸 심각한 뇌 손상. 우리 추적 eyeblink 클래식 컨디셔닝 (ECC), 일반적으로 알코올 노출 성인 자손에 본 장기 hippocampal 기능 장애를 평가 하기 위해 연관 학습의 더 높은 순서 이체를 사용 하 여를 설명 합니다. 나이의 90 일, 설치류 수술 기록 준비 되었고 자극 전극 측정 시 (EMG) 왼쪽된 눈 꺼 풀 근육에서 활동을 깜박 하 고 가벼운 충격 후부 왼쪽된 눈에 각각 전달. 5 일 복구 기간 후, 그들은 추적 연관 학습의 차이점 알코올 노출와 쥐 제어를 결정 하는 ECC의 6 회를 받았다. 추적 ECC 수정할 수 있는 쉽게 같은 장비 및 소프트웨어를 사용 하 여 서로 다른 신경 시스템 평가 될 수 있다 그래야 많은 가능한 ECC 절차 중 하나입니다. ECC 절차 일반적으로 서로 다른 뇌 시스템 및 두뇌를 모욕 하는 다른 조건에 신경 병리학을 탐지 하기 위한 진단 도구로 사용할 수 있습니다.
서론
의료 서비스에 대한 접근성과 보건 의료 수준이 향상된 현대 사회에서도 알코올 남용이 여전히 전 세계적인 주요 보건 문제로 남아 있다는 사실은 상상하기 어렵습니다. 불행히도, 다량의 알코올을 섭취한 임산부는 태아 알코올 증후군(fetal alcohol syndrome, FAS)1,2,3 환자들에게서 나타나듯, 평생 지속되는 심각한 뇌 손상 및 신경 발달 장애를 가진 아이를 출산할 수 있다는 것이 밝혀졌습니다. 임신 중 알코올 사용 이력이 확인된 여성의 경우, 발달 중인 태아는 혈중 알코올 농도에 다양한 차이를 만드는 소량의 알코올이나 서로 다른 알코올 섭취 패턴에도 영향을 받기 쉽습니다. 후자의 경우, 아이들이 FAS 환자만큼 심각한 형태학적 또는 신경 행동학적 장애를 보이지는 않더라도, 경증에서 중증에 이르는 평생의 인지 장애와 정서적 불안을 겪을 수 있습니다3,4. 종합적으로 FAS와 덜 심각한 형태의 태아기 알코올 매개 장애들은 태아 알코올 스펙트럼 장애(fetal alcohol spectrum disorders, FASDs)라는 범주를 형성합니다. FASDs가 완전히 예방 가능하다는 점은 당연한 일이지만, 놀랍게도 알코올 남용이 흔한 인구 집단에서는 FASDs가 신경 및 인지 장애의 주요 비유전적 원인으로 남아 있으며, 미국과 프랑스, 스웨덴 같은 유럽 국가의 어린 아이들 중 약 2%에서 5%에게 영향을 미치는 것으로 추정됩니다. 미국 내 FAS만의 발생률을 살펴보면, 출생아 1,000명당 2~7명꼴로 나타나며5, 이는 FASDs의 전체 발생률이 FAS보다 훨씬 높음을 시사합니다.
FASD 아동을 대상으로 실시한 신경영상 연구에 따르면, 이들은 얇은 뇌량6, 더 작은 소뇌 전충부 벌레7, 그리고 더 작은 해마8와 같은 뇌 이상을 보이는 것으로 나타났습니다. 이러한 뇌 이상은 FASD 아동에게서 관찰되는 일부 장기적인 신경인지적 장애의 근본 원인이 됩니다. 모체의 알코올로 인한 뇌 변화의 변이와 특정 신경인지적 손상의 프로파일(즉, 유형, 정도)의 변이를 연결하는 정확한 연관성은 아직 명확하게 밝혀지지 않았습니다. 하지만 시작 단계로서, 해마는 태아기 알코올 영향에 대한 감수성을 결정하기 위한 훌륭한 후보입니다. 실제로 FASD 아동은 장소 학습9,10 및 지연된 대상 회상11과 같은 해마 매개 행동에서 결함을 보입니다.
태아알코올스펙트럼장애(FASD)의 설치류 모델은 FASD 아동에게서 나타나는 신경인지적 장애를 유발하는 기전을 규명하는 데 매우 귀중한 도구임이 입증되었습니다. 본 연구에서 채택한 잘 확립된 폭음 노출 모델은 생후 4~9일 차의 쥐에게 알코올을 투여하는 방식을 포함합니다.12,13뇌가 급격한 시냅스 및 수상돌기 접촉 형성을 겪는 시기로, 이는 인간 태아의 24주 차와 유사하며 3주 차까지 이어지는연구 및 개발 삼분기14,15,16,17이 특정 모델은 해마 뉴런의 상당한 손실을 유도합니다.18,19 및 소뇌와 같은 다른 많은 뇌 영역의 뉴런들12,13,14,15,16,17,18,19,20,21,22,23, 여러 영역에 걸친 심각한 인지 기능 손상이 동반됩니다21,24,25쥐의 조기 알코올 노출로 인한 인지 기능 장애는 여러 가지 방법으로 평가할 수 있으며, 특히 다음을 통해 가능합니다. 눈깜빡임 고전적 조건 형성 (ECC). ECC는 학습의 근본적인 기초를 과학적으로 조사하기 위해 한 세기 넘게 활용되어 온 패러다임입니다.26,27 따라서 이는 태아기 알코올 노출로 인한 부정적인 신경인지적 결과에 대해 더 깊이 이해할 수 있는 유용한 방법을 제공합니다. 이는 매우 유연한 패러다임으로, 연구자가 다양한 ECC 절차를 사용할 수 있게 하며, 이러한 절차들은 계통 발생학적 척도에 따라 (생쥐부터 인간까지) 다양한 포유류 종과 뇌 발달의 서로 다른 단계에 걸쳐 조사될 수 있습니다.28,29,30,31또한, 이 패러다임에서 연합 학습을 매개하는 기본 신경 회로는 동일한 종들에 대한 실험 및 신경심리학적 보고들에 의해 뒷받침됩니다.26,32,33,34,35,36,37.
ECC의 한 형태인 trace ECC가 본 논문(그림 1)에서 시연됩니다. 맥락을 제공하기 위해, 이를 더 전통적인 형태인 delay ECC와 비교합니다. ECC 패러다임은 노벨상 수상 생리학자인 Ivan Pavlov가 처음 수행한 개를 이용한 고전적 조건 형성 모델을 따랐습니다. Pavlov는 톤(tone)과 같은 특정 자극이 자연적으로 타액 분비를 유발하지는 않지만, 톤이 음식 제공에 앞서 발생하고 겹칠 때, 이 톤-음식 연관성이 유지된다는 전제하에 두 자극의 반복적인 제시에 의해 타액 반응이 강화될 수 있음을 발견했습니다. 이는 delay ECC의 예시로, 두 자극 사이의 즉각적인 시간적 인접성에 의해 연합 강도가 매개되어 동물에게 최적의 학습 조건이 된다는 개념입니다. 그는 또한 톤을 끄고 음식을 제공하기 전까지 "흔적(trace)" 기간을 두는 것과 같은 톤-음식 연관성의 다른 변형들을 테스트했습니다. 이 두 자극이 충분히 불연속적일 때, 개들이 음식 제공 전에 타액 분비 반응을 보이는 것이 훨씬 더 어려워졌습니다. 톤이 꺼진 시점과 음식 제공 사이의 불연속성은 trace ECC의 예시가 됩니다. 설치류는 음식의 존재에 자연적으로 타액을 분비하지 않으므로, 대신 가벼운 전기 충격과 같이 종에 더 적합한 자극이 사용됩니다. 또한 설치류는 톤에 대해 자연적으로 방어적 눈깜박임 반응을 보이지 않습니다. 이러한 배경에서, 설치류 ECC 절차는 특정 데시벨 수준의 톤을 제시하고, 이를 안검근(orbicularis oculi) 또는 temporalis 근육에 가하는 가벼운 전기 충격과 어떤 방식으로든 짝지어 눈깜박임 반응을 유도하는 과정을 포함합니다. 톤은 조건 자극(CS)으로 간주되며, 전기 충격은 무조건 자극(US)으로 간주됩니다. delay ECC에서는 CS가 먼저 제시되며, 이 자극은 일정 기간 유지됩니다. 그 후 US가 제공됩니다. 이 두 자극은 일정 기간 겹치며, 이후 동시에 종료됩니다. US로 인해 유발된 결과적인 눈깜박임 반응은 무조건 반응(UR)으로 간주됩니다. 이 절차에서 설치류는 혐오 자극을 예상하기 위해 CS가 제시된 후 어느 시점, 즉 US 바로 직전에 눈깜박임 반응을 보이도록 학습합니다. 학습된 눈깜박임 반응을 조건 반응(CR)이라고 합니다. trace ECC의 경우, CS와 US는 trace 간격이라고 알려진 자극이 없는 시간적 기간으로 분리됩니다. 이들은 delay ECC에서처럼 시간적으로 겹치지 않습니다. 이 간격 동안 동물은 자극 간의 연합 요구 사항을 해결하는 과제를 수행하게 됩니다. delay ECC와 유사하게, 동물이 CS가 꺼진 후 US가 제공되기 직전에 일관되게 깜박임 반응을 보일 때 학습이 일어납니다. 일정량의 습득 훈련(CS와 US를 짝지음)을 거치면 학습 곡선(즉, 서로 다른 CR 측정치 기반)이 형성됩니다. 병변 및 신경 영상 연구에 따르면, delay ECC의 성공적인 학습은 온전한 소뇌-뇌줄기 신경 회로에 의존하는 반면38,39,40, trace ECC는 해마41,42,43,44 및 기타 피질 구조45,46의 추가적인 신경 참여가 필요한 고차원적 절차입니다. trace CR을 성공적으로 습득하기 위해 필요한 타이밍 관련 요구 사항 때문에, 이 과제는 (정상 피험자에게조차) 학습하기가 더 어렵습니다.
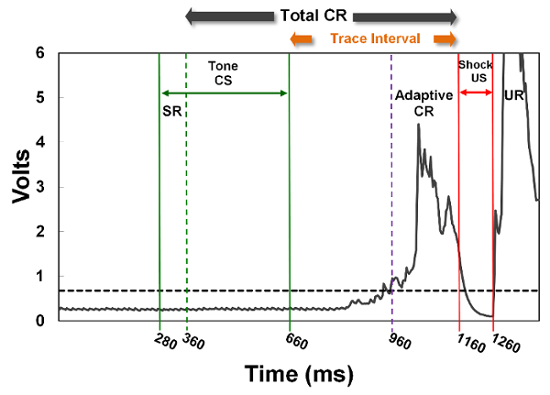
그림 1: 흔적 눈깜빡임 고전적 조건형성. 비삽관 대조군(UC) 그룹의 성체 쥐를 대표하는 실제 파형이 제시되어 있다. 먼저 톤 CS (85 dB, 2.8 kHz)가 380 ms 동안 제시된다. 이어서 자극이 없는 500 ms의 흔적 구간(trace interval)이 이어진다. 그 후 충격 US (1.6 mA)가 100 ms 동안 전달된다. 이 과제에서 학습이 성공적으로 이루어지면, 조건 반응(CR) 시간 창(Total CR period) 동안 눈깜빡임의 빈도(%) 또는 진폭(volts 단위)이 여러 번의 훈련 세션을 거치며 증가한다. 특히 해마가 온전한 설치류는 일반적으로 충격 US가 시작되기 직전(200-ms 창 이내)에 더 적절한 타이밍의 CR(Adaptive CRs)을 나타낸다. 톤 CS 시작 후 첫 80 ms 동안의 놀람 반응(SRs)과 무조건 반응(URs) 또한 측정된다. 잘 훈련된 설치류에서 비연합적 SRs는 일반적으로 낮거나 나타나지 않는 반면, URs는 빈도와 진폭이 높을 것으로 예상된다. 이 과제는 설치류가 CS 종료와 US 시작 사이의 연합(흔적 구간 동안)을 연결하는 법을 배워야 하므로, 지연 ECC에 비해 습득하기가 본질적으로 더 어렵다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
본 연구에서는 폭음과 유사한 방식으로 투여된 신생아기 알코올 노출의 부정적인 기능적 결과를 입증합니다. 이는 85 dB 톤의 조건 자극(CS, 2.8 kHz)을 380 ms 동안 제공하고, 500 ms의 추적 기간(trace period) 후 1.6 mA의 충격 무조건 자극(US)을 100 ms 동안 제공하는 추적 ECC 절차를 통해 평가되었습니다. 당사는 신생아기 알코올 노출의 영향을 완화하기 위한 콜린 개입 및 철분 보충을 조사한 이전 연구들에서 이 행동 분석법의 유용성을 보고한 바 있습니다18,47. 실제로 추적 ECC는 신생아기 알코올로 유발된 해마 병증을 평가하는 진단 도구로 사용될 수 있습니다. 지연 ECC에 비해 가지는 장점은 태아 알코올 스펙트럼 장애(FASD) 환자에게서 손상되는 해마 기능의 교란을 탐지하는 데 더 민감하다는 점입니다.
ECC의 시연 범위는 태아 알코올 증후군 분야를 훨씬 넘어섭니다. ECC의 다양한 변형(예: 지연, 추적, 복합, 반전)은 발달 과정 전반에 걸친 학습의 발생학적 차이, 일반 포유류의 연합 학습에 대한 신경생물학적 기초뿐만 아니라, 기형 발생 물질, 환경 독소, 외상성 뇌 손상, 신경퇴행성 질환 및 정신과적 상태를 포함하여(단, 이에 국한되지 않음) 다양한 도전 요인에 대한 서로 다른 뇌 시스템의 취약성을 규명하는 데 사용될 수 있습니다.
프로토콜
참고: 모든 절차는 East Carolina University IACUC에서 정한 정책에 따라 승인 및 수행되었습니다. Long-Evans 쥐는 암컷과 수컷 번식 쥐를 교배하여 생성하였습니다. 세 가지 처리군(1.1 참조)의 새끼들은 모두 동일한 어미의 한 배y에서 생성되었습니다. 총 5배의 새끼를 얻었으며, 출생 후 3일(PD 3)에 각 배당 8마리로 수를 맞추었습니다. 각 배에서 남은 두 마리의 새끼는 별도의 실험에 할당되었습니다. 수컷과 암컷 자손(노출 그룹당 1마리) 모두 연구에 포함되었습니다. 본 연구에서는 총 N = 27마리의 성체 자손을 조사하였으며, ECC 훈련 1일 차에 수리가 불가능한 3T 와이어 리드 단선(3.1.1 참조)으로 인해 3마리의 쥐를 제외하였습니다.
1. 그룹, 재료 및 용액의 준비
- PD 3에 새끼 쥐를 어미로부터 분리하여 체온 유지를 위해 온도 조절 수조 가열 패드 위에 둡니다. 무작위 선택 절차를 사용하여 새끼 쥐를 다음 세 그룹 중 하나에 배치합니다: (1) 알코올 삽입(AI) 군; (2) 가짜 삽입 대조(SI) 군; 또는 (3) 비삽입 대조(UC) 군. 번호 부여 체계에 따라 30G x 1/2 in 바늘로 발에 [무독성] 잉크 문신을 새기는 등의 승인된 식별 절차를 수행합니다. 문신 작업이 끝나면 새끼 쥐를 어미에게 돌려보냅니다.
- 폴리에틸렌(PE) 50 및 10 사이즈를 사용하여 위강 내 삽입 튜브를 준비합니다. 이 튜브의 전체 길이는 사용자에 따라 달라지며 적절히 조정할 수 있습니다.
- 미세 해부 가위를 사용하여 PE-50 튜브 3 in 조각과 PE-10 튜브 6 in 조각을 자릅니다.
- PE-50 튜브를 멸균된 22 G x 1 in 피하 주사 바늘에 조심스럽게 부착합니다.
- PE-10 튜브의 한쪽 끝을 PE-50 튜브의 열린 끝에 삽입합니다. PE-10 튜브를 PE-50 튜브 내부로 유도하기 위해 PE-10 튜브 끝부분을 대각선으로 잘라야 할 수도 있습니다.
- PE-50 튜브의 작은 조각(약 2-3 mm)을 잘라 PE-10 튜브의 열린 끝에 끼웁니다. 이는 시각적 스토퍼 역할을 합니다.
- 완성된 위강 내 삽입 튜브를 멸균 상태로 유지하기 위해 신선한 70% isopropyl alcohol에 보관합니다.
- 무균 절차를 수행하여 50 mL 병에 스톡 우유 용액을 준비합니다. 스톡 우유 용액은 West 등(1984)48이 처음 확립한 식이 제형을 기반으로 합니다. 사용 전까지 병을 -18 °C에서 보관합니다. 사용 전에 따뜻한 물을 사용하여 우유 두 병을 해동합니다.
- 멸균 주사기를 사용하여 95% ethyl alcohol (USP) 7.16 mL를 뽑아 50 mL 우유 병 하나에 넣습니다. 이렇게 하면 하루의 처음 두 번의 급여 동안 새끼 쥐에게 전달되는 11.9% v/v 알코올 용액이 됩니다(2.1.1 참조). 알코올의 총 일일 투여량은 5.25 g/kg/day입니다. 이는 농축 우유 용액 내의 부피(회당 0.0278 mL/g)로 알코올을 전달하도록 설계되었습니다.
참고: 이 양은 한 배의 크기와 3-4일 동안의 예상 사용량에 따라 조정할 수 있습니다. 11.9% v/v 용액을 만들기 위해 첨가되는 알코올의 양 또한 조정되어야 합니다. - 이 병을 잘 흔들고 적절하게 라벨을 붙입니다(예: 11.9% v/v Ethyl Alcohol in Milk).
- 두 번째 우유 병(알코올을 추가하지 않은 병)에 적절하게 라벨을 붙이고(예: Milk-Only), 2.1.1에 명시된 보충 급여용으로 사용합니다.
- 두 우유 병을 모두 냉장고에 보관합니다.
- 멸균 주사기를 사용하여 95% ethyl alcohol (USP) 7.16 mL를 뽑아 50 mL 우유 병 하나에 넣습니다. 이렇게 하면 하루의 처음 두 번의 급여 동안 새끼 쥐에게 전달되는 11.9% v/v 알코올 용액이 됩니다(2.1.1 참조). 알코올의 총 일일 투여량은 5.25 g/kg/day입니다. 이는 농축 우유 용액 내의 부피(회당 0.0278 mL/g)로 알코올을 전달하도록 설계되었습니다.
2. 신생아 알코올 노출 (출생 후 4-9일)
- PD 4부터 AI 및 SI 새끼 쥐에게 하루 총 4회의 삽관을 실시한다. 각 삽관 사이에는 2시간의 간격을 둔다. AI 새끼 쥐는 실제 용액을 삽관하므로, 각 삽관을 급식으로 간주한다.
- 하루의 처음 두 번의 급식 동안에는 AI 새끼 쥐에게 11.9% v/v Ethyl Alcohol in Milk 용액을 삽관하고, 성장을 보충하기 위해 마지막 두 번의 급식 동안에는 Milk-Only 용액을 삽관한다.
- SI 새끼 쥐는 AI 새끼 쥐가 겪는 것과 동일한 기간 동안 PE-10 튜브에 노출되도록 2시간마다 용액 없이 4회 삽관한다. UC 그룹은 삽관을 실시하지 않는다.
- 새끼 쥐를 어미 쥐로부터 분리하여 온도가 조절되는 온수 패드 위에 올려 체온을 유지한다. 각 새끼 쥐의 체중을 측정하여 기록한다(단위: g). 미리 작성된 급식 표를 참조하여 각 AI 새끼 쥐의 삽관 용량을 결정하고 이를 기록지에 기재한다.
- 11.9% v/v Ethyl Alcohol in Milk 용액을 온수조에 넣고 잘 흔들어 섞는다.
- 위장내 삽관 절차:
- 70% isopropyl alcohol에 보관했던 위장내 삽관 튜브를 온수로 깨끗이 씻어낸다.
- 멸균된 1 mL 주사기를 사용하여 정확한 양의 용액을 추출한다.
- 삽관 튜브의 끝(PE-10 끝단)을 신선한 corn oil에 담근다(이는 삽입을 용이하게 한다).
- 새끼 쥐의 입부터 위까지의 PE-10 튜브 길이를 측정한다. PE-50 스토퍼를 조정하여 정지 지점의 가이드로 삼는다.
- PE-10 튜브를 새끼 쥐의 입안으로 조심스럽게 삽입하여 식도를 따라 내려가 위식도 괄약근을 약간 지나 위 속으로 진입시킨다. 새끼 쥐의 상태를 확인하고 고정한 후, 주사기 플런저를 눌러 용액을 투여한다. 이때 천천히 투여한다.
참고: 튜브가 실수로 기관으로 삽입되는 것을 방지하려면, 앞으로 진행하기 전에 먼저 튜브가 곡선을 그리며 연구개에 닿도록 유도한다. 튜브가 이 부위에서 자연스럽게 굴절되어 식도로 안내되므로 연구개를 가이드로 사용한다. 그렇지 않고 팁이 복측으로 크게 벗어나면 기관으로 진입할 수 있다. 진입 위치가 불확실한 경우에는 튜브를 제거하고 삽관을 진행하지 않는 것이 좋으며, 다음 시도 때 튜브를 올바르게 다시 삽입한다. - PE-10 튜브를 조심스럽게 제거하고, 새끼 쥐에게 용액의 역류, 출혈 또는 물리적 손상이 있는지 확인한다. 상태가 양호하면 새끼 쥐를 형제 쥐들과 함께 둔다. 전체 삽관 절차는 새끼 쥐 한 마리당 약 1분 미만이 소요되며, 한 배의 삽관 처리 쥐 4마리(AI 2마리, SI 2마리) 총 약 4분이 소요된다.
- SI 새끼 쥐의 위장내 삽관 절차: AI 새끼 쥐와 동일한 PE-10 삽입 절차를 따르되, 용액 없이 동일한 시간(1분) 동안 실시한다.
- 한 배의 마지막 새끼 쥐까지 절차를 마친 후 즉시 모든 새끼 쥐를 어미 쥐에게 돌려보낸다. 어미 쥐를 다음 급식 세션(2시간 후)까지 사육실로 돌려보낸다.
- 위장내 삽관 튜브를 멸균 온수로 씻어낸 후 보관을 위해 70% isopropyl alcohol에 넣는다. 매 급식 세션 전에 튜브를 물로 충분히 세척한다.
- 두 번째 급식 세션을 위해 2.2(체중 측정 제외)부터 2.2.2.9까지의 과정을 반복한다. 마지막 두 번의 급식에서는 2.2에서 결정된 것과 동일한 삽관 용량으로 AI 새끼 쥐에게 Milk-Only 용액을 삽관한다.
- 대표 성장 곡선을 얻기 위해 PD 15(개안 시), PD 21(이유 시), PD 30, PD 60, PD 90(수술 시) 등 정기적인 간격으로 쥐의 체중을 측정한다.
3. 전극의 제작 및 수정
- 각 쥐를 위한 근전도(EMG) "헤드스테이지"를 하나씩 제작합니다(Figure 2). 헤드스테이지는 눈깜빡임 시스템(Figure 4)을 통해 눈깜빡임 반응의 기록을 가능하게 합니다.
- 3T 크기의 폴리테트라플루오로에틸렌(PTFE) 코팅 스테인리스강 와이어 2개(각 5 cm), 10T 크기의 PTFE 코팅 스테인리스강 와이어 1개(5 cm), 수형 접촉 핀 3개, 그리고 3개의 구멍으로 절단된 마이크로 스트립 소켓 절연체 1개(3.1.4 참조)로 구성된 헤드스테이지를 제작합니다.
- 톱니 모양의 고정밀 핀셋으로 10T 와이어의 중앙을 잡고, 매끄러운 고정밀 핀셋으로 양방향의 코팅을 제거하여 PTFE 코팅을 벗겨냅니다. 이 와이어에서 모든 코팅 흔적이 제거되었는지 확인하십시오.
- 톱니 모양 플랫폼 치과용 플라이어로 10T 와이어의 한쪽 끝을 접촉 핀에 압착합니다. 이는 접지선 역할을 합니다. 매끄러운 고정밀 핀셋으로 3T 와이어의 한쪽 끝에서 1~1.5 mm 떨어진 지점을 조심스럽게 잡습니다. 나머지 코팅은 그대로 둔 채 1~1.5 mm의 PTFE 코팅을 벗겨냅니다. 노출된 3T 와이어 끝에 접촉 핀을 압착합니다.
- 두 번째 3T 와이어에 대해서도 동일한 절차를 수행합니다. 두 와이어는 EMG 기록 전극의 양극 및 음극 리드 역할을 하게 됩니다.
- 모든 와이어에 대해 당김 테스트(tug test)를 수행하여 핀에 단단히 고정되었는지 확인합니다. 와이어가 굽거나 손상되지 않도록 주의하십시오.
- 와이어 스트리퍼의 절단 날을 사용하여 소켓 절연체 스트립의 한 세그먼트를 3.5개의 구멍(네 번째 구멍의 중간까지)으로 자릅니다. 이 세그먼트를 정확히 3개의 전체 구멍 크기로 줄이고, 필요한 경우 양쪽 면을 샌딩 처리합니다. 이는 3개의 전체 구멍을 확실히 확보하기 위함입니다. 압착된 끝부분이 절연체 세그먼트의 하단 가장자리와 일치할 때까지 핀-와이어 유닛을 마이크로 스트립의 세 구멍에 삽입합니다. 10T 조립체는 마이크로 스트립의 중앙이 아닌 바깥쪽 구멍 중 하나에 위치해야 합니다.
- 양극 자극 전극을 수정합니다(Figure 2).
- 각 쥐에게 양극 자극 전극을 하나씩 할당합니다. 이 전극은 ECC 동안 충격 US로서 자극 절연기(눈깜빡임 시스템 참조)를 통해 소량의 전류를 가합니다. 전극은 제조사로부터 꼬인 형태로 구매하며 차폐 처리되어 있습니다.
- 두 금속 리드를 2~3회 풀어 V자 모양(5 mm 간격)으로 만든 다음, 매끄러운 고정밀 핀셋을 사용하여 각 "프롱(prong)"을 가능한 한 곧게 폅니다. 면도날을 사용하여 각 프롱 팁의 차폐재 1 mm를 (전체적으로) 긁어냅니다. 각 프롱에 불규칙한 부분이나 휜 곳이 없는지 검사하고, 추가로 차폐재를 긁어내지 않고 필요한 경우 이를 교정합니다.
- EMG 헤드스테이지와 양극 전극을 95% 에틸 알코올로 세척하여 제조 오일과 이물질을 제거합니다. 건조시킨 후 오토클레이브로 멸균합니다.
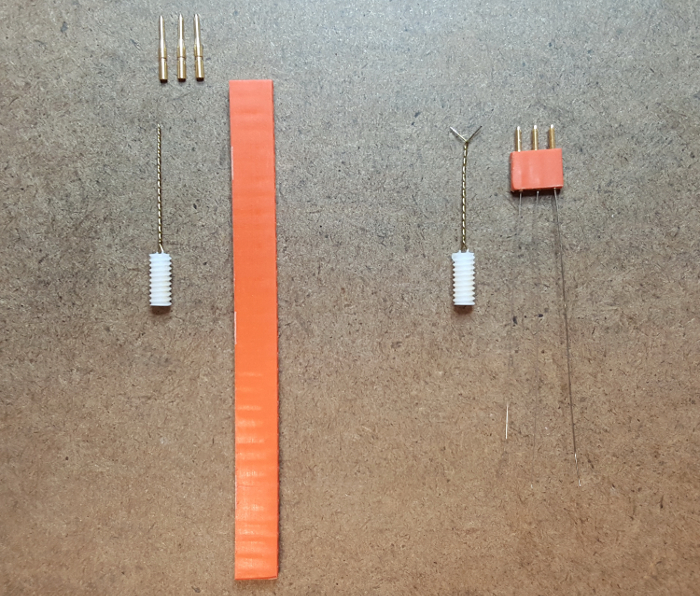
그림 2: 근전도(EMG) 기록 전극 및 양극 전극. 완성된 EMG 헤드스테이지(오른쪽, 주황색)는 3개의 수형 접촉 핀, 2개의 3T PTFE 코팅 와이어, 1개의 10T PTFE 코팅 와이어 및 수정된 마이크로 스트립으로 구성됩니다. 세 개의 와이어는 각각 약 5 cm이며 접촉 핀에 압착되어 있습니다. 완성된 양극 전극(오른쪽, 흰색)은 꼬임을 풀고 다시 곧게 펴서 V자 모양(5 mm 간격)으로 성형되었습니다. 두 갈래 끝부분의 차폐재는 제거되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
4. 눈꺼풀 수술 절차 (생후 90일)
- 재료(상세 공급 정보는 Materials 참조), 동물, 수술 및 비수술 구역 준비:
- 수술 도구 및 소모품을 오토클레이브로 멸균합니다. 괄호( ) 안의 숫자는 성체 쥐 한 마리당 또는 측정당 필요한 대략적인 수량을 나타냅니다: 수술 도구(ECU IACUC 승인 기준 쥐 4마리당 1세트), 거즈 패드(3-4개), 면봉(5-6개), 20 x 20 랩(수술 세션당 4개), 자기 도가니(1개), 스테인리스 스틸 마이크로 스패튤라(1개), 0.9% 식염수(세척병 1개), 페트리 접시(1개), 0-80 스테인리스 스틸 나사(쥐당 3개).
- 기타 필요한 멸균 소모품: 10번 수술용 칼날(쥐 4마리당 1개), 수술용 드레이프(쥐당 1개), 수의용 안연고, 포비돈-아이오다인(세척병 1개), 26G x 3/8" 피하 주사 바늘(2개), #55 드릴 비트가 장착된 니켈 도금 핀 바이스, 니켈 도금 일자 정밀 드라이버(블레이드 1.8-2 mm).
- 승인된 연구/의료 등급 소독제를 사용하여 모든 수술 도구와 소모품을 위한 멸균 보관 구역을 준비합니다. 구역이 준비되면 재료를 이 공간에 배치합니다.
- 승인된 연구/의료 등급 소독제를 사용하여 멸균 수술 공간을 준비합니다. 이 공간에는 온도 조절 수중 가열 패드, 쥐 마취 마스크가 장착된 정위 고정 장치, 유리 비드 멸균기, 그리고 (마취용) 이소플루란 가스 기화기가 포함됩니다. 기화기에는 마취 마스크로 연결되는 튜브와 비멸균 동물 준비 절차를 위해 별도의 공간에 위치한 유도 챔버로 연결되는 튜브가 있으며, 각 튜브는 전용 밸브로 제어됩니다.
- 항균 비누로 손과 팔을 철저히 씻습니다. 멸균 파우치나 랩으로 포장된 품목은 내부를 만지지 않고 미리 개봉합니다. 무균법을 사용하여 멸균 장갑을 착용하고 모든 관련 품목을 수술 구역으로 옮깁니다. 핀 바이스에 드릴 비트를 적절한 깊이(~ 2 mm)로 설정하고 드라이버를 준비합니다. 수술 시작 전까지 멸균 재료를 멸균 랩으로 덮어 둡니다.
- 전자저울, 전기 제모기, 26G x 3/8 in 바늘이 장착된 멸균 1 mL 주사기(쥐당 1개), 수술 기록지, 그리고 0.1 mL/100 g으로 투여할 부프레노르핀(농도 0.03 mg/mL)이 준비된 비멸균 공간을 마련합니다.
주의: 부프레노르핀은 DEA 스케줄 III 반합성 오피오이드이므로, 반드시 잠금 장치가 있는 곳에 보관하고 적절히 기록해야 합니다. - 이소플루란 기화기의 가스 레벨이 적절한지 확인하고, 부족하면 가스를 더 충전합니다. 가스 흐름 및 혼합 노브는 현재 꺼진 상태로 둡니다. O2 탱크를 켜고 모든 수술에 충분한 가스가 있는지 확인합니다.
- 각 쥐의 체중을 측정하여 수술 기록지에 기록합니다. 부프레노르핀 주입 표를 사용하여 적절한 주입량을 결정합니다.
- 유도 챔버로 연결되는 기화기 밸브를 켜고, 수술 마스크로 연결되는 밸브는 끕니다. 혼합비는 3, 유량은 3으로 설정합니다(100% O2를 운반 가스로 하여 3% 이소플루란을 3 L/min의 부피로 공급).
- 쥐를 유도 챔버에 넣고 적절한 마취 단계(느린 호흡, 발 반사 소실, 눈 깜빡임 반사 소실)에 도달할 때까지 기다립니다. 마취 단계에 도달하면 쥐를 챔버에서 꺼냅니다.
- 제모기를 사용하여 머리를 깎아 절개 부위와 왼쪽 눈꺼풀에 충분한 피부가 드러나게 합니다. 필요한 경우, 제모를 재개하기 전에 다시 유도 챔버에 넣어 마취 단계에 도달하게 합니다.
- 이소프로필 알코올과 포비돈-아이오다인을 교대로 세 번 문질러 노출된 피부를 소독합니다. 필요한 경우, 수술대로 옮기기 전에 다시 유도 챔버에 넣어 마취 단계에 도달하게 합니다.
- 수술
- 마취 마스크로 연결되는 기화기 밸브를 켜고 유도 챔버 밸브를 끕니다. 혼합비를 2.5, 유량을 2로 조정합니다(100% O2를 운반 가스로 하여 2.5% 이소플루란을 2 L/min의 부피로 공급). 쥐를 정위 고정 장치로 옮기고 표준 절차에 따라 절치 바와 이어 바에 머리를 고정합니다(예시는 Geiger et al., 200849 참조).
- 쥐에게 부프레노르핀을 수술 전 피하 주사(SC)하고, 사용한 바늘(캡을 씌우지 않은 상태)은 손상성 폐기물 함에 주의해서 버립니다. 쥐에게 멸균 수술용 드레이프를 덮어 수술 부위만 노출시키고 신체의 나머지 부분과 격리합니다.
- 수술용 마스크, 수술모, 수술복, 고글 및 IACUC에서 요구하는 기타 개인 보호 장구를 착용합니다. 항균 비누로 손과 팔을 철저히 씻고 문지릅니다. 멸균 절차에 따라 멸균 장갑을 착용합니다.
- 눈이 건조해지는 것을 방지하기 위해 면봉을 사용하여 양쪽 눈에 소량의 안연고를 도포합니다.
- 쥐가 적절한 마취 단계에 도달하면 수술을 진행합니다. 수술 내내 쥐를 지속적으로 모니터링하고 주기적으로 이소플루란 레벨을 확인합니다. 마취에 대한 쥐의 반응에 따라 수술 중 유량 및 혼합 노브를 적절히 조정합니다.
- 메스 칼날을 사용하여 두개골 정중선을 따라 전후방 절개를 가합니다. 이 절개는 눈 앞쪽(즉, 전두골이 노출됨)과 람다 봉합선 약간 뒤쪽까지 충분한 영역이 노출되어야 합니다.
- 과도한 출혈이 발생하지 않도록 주의하며 두개골 상단의 골막을 긁어냅니다. 면봉으로 과도한 결합 조직과 혈액을 닦아냅니다.
- 핀 바이스의 도움을 받아 드릴 비트로 한쪽 두정골의 관상 봉합선 바로 뒤쪽에 구멍을 뚫습니다. 면봉으로 혈액과 골 파편을 제거합니다. 스플린터 포셉으로 0-80 나사의 나사산을 잡고 정밀 드라이버로 구멍에 고정합니다. 뇌 피질 조직을 손상시키지 않을 정도로만 나사를 조입니다(보통 3-4바퀴 완전 회전).
- 4.2.8에 설명된 것과 동일한 절차를 따라 두개골에 0-80 나사 두 개를 더 고정합니다. 하나는 반대편 두정골의 관상 봉합선 바로 뒤에, 다른 하나는 오른쪽 람다 봉합선 바로 앞에 고정합니다. 네 번째 나사(왼쪽 람다 봉합선 앞쪽)는 바이폴라 전극의 배치를 방해하므로, 치과용 시멘트를 두개골에 고정하는 데(4.2.18 참조)는 나사 3개면 충분한 것으로 확인되었습니다.
- 페트리 접시에서 EMG 헤드스테이지를 꺼냅니다. 10T 와이어가 쥐의 오른쪽에 오도록 헤드스테이지를 향하게 합니다. 10T 와이어를 위로 구부려 마이크로 스트립의 하단 가장자리와 평행하게 만듭니다. 와이어가 전후방 0-80 나사를 감쌀 수 있도록 오른쪽으로 약간 구부립니다. 손이 닿는 가까운 곳에 따로 둡니다.
- [오른손잡이라고 가정할 때] 왼손에 3인치 드레싱 포셉을, 오른손에 4인치 드레싱 포셉을 잡습니다. 4인치 드레싱 포셉으로 왼쪽 눈 절개 부위의 상단 피부를 잡고 3인치 드레싱 포셉을 이 눈의 구석으로 향하게 하여 구석의 피부를 잡습니다. 3인치 드레싱 포셉으로 잡은 상태를 유지하면서 4인치 드레싱 포셉을 놓습니다.
- 26G x 3/8 in 바늘 하나를 가져와 눈꺼풀 구석을 통해 삽입합니다. 바늘의 사면(bevel)이 위를 향하도록 회전시킵니다. 플랫폼이 있는 마이크로 해부 포셉을 사용하여 중간 3T 와이어를 바늘 구멍에 삽입합니다. 완전히 밀어 넣지 말고 구멍을 통해 몇 센티미터 밀어 넣습니다. 이 와이어가 음극 리드입니다.
- 4.2.11 및 4.2.12에 설명된 절차를 수행하여 바깥쪽 3T 와이어를 눈꺼풀 중간 부분에 삽입합니다. 이 와이어가 양극 리드입니다.
- 한 손으로는 두 바늘을 잡고 다른 손(또는 포셉)으로는 헤드스테이지를 잡습니다. 한 번의 연속적인 동작으로 헤드스테이지를 같은 방향으로 안내하면서 바늘을 눈꺼풀에서 끌어냅니다. 필요한 경우, 10T 와이어가 동물의 오른쪽 눈을 향하도록 헤드스테이지를 회전시킵니다. 3T 와이어가 서로 교차되지 않도록 합니다. 미세 팁 포셉을 사용하여 양극 리드가 눈꺼풀 중앙에 있는지 다시 한번 확인합니다.
- 헤드스테이지가 양 눈 사이에 중앙에 오고, 양측으로 삽입된 나사의 앞쪽 전두골 위 최적의 위치에 오도록 조정합니다. 한 손으로 헤드스테이지를 잡고 다른 손으로 3인치 드레싱 포셉을 잡습니다. 10T 쪽의 나사 하나 또는 둘 모두에 10T 와이어를 감습니다.
- 한 손에 3인치 드레싱 포셉을, 다른 손에 4인치 드레싱 포셉을 잡습니다. 3인치 드레싱 포셉을 사용하여 왼쪽 관자놀이 쪽 절개 부위의 피부를 잡습니다. 4인치 드레싱 포셉을 사용하여 피부(즉, 표층 근막)를 측두근에서 분리하여 작은 "포켓"을 만듭니다. 홍채 가위(iris scissors)를 사용하여 왼쪽 눈 구석 방향으로 더 많은 결합 조직을 잘라내어 이 포켓의 크기를 키웁니다. 너무 깊게 들어가거나 혈관을 자르지 않도록 주의하십시오.
- 바이폴라 전극을 가져와 와이어 리드가 측두근의 곡선을 따라 맞도록 모양을 잡습니다. 이때 두 개의 프롱은 왼쪽 눈의 뒤쪽(등쪽 및 배쪽)에 위치하고(비디오 참조), 바이폴라 전극의 하단 끝은 두개골 바로 위에 위치할 수 있게 합니다. 커뮤테이터 케이블 플러그(그림 3)가 방해 없이 연결될 수 있도록 헤드스테이지와 이 전극 사이에 충분한 거리를 둡니다.
- 도가니에 치과용 시멘트 가루를 붓습니다. 먼저 도가니의 약 1/3 정도를 채운 후 필요에 따라 양을 조절합니다. 점도가 묽어질 때까지 액체 성분을 추가하고 스패튤라로 섞습니다. 시멘트의 점도가 높아지면 절개 부위에 도포하며, 피부의 모든 가장자리를 최소 1/8 in 너비의 경계로 덮습니다.
- 쥐가 양쪽 눈을 감는 것을 방해하지 않으면서 헤드스테이지와 바이폴라 전극을 고정할 수 있을 만큼 충분한 시멘트를 도포합니다. 쥐의 털 중 원치 않는 부위에 떨어진 시멘트는 빠르게 닦아냅니다.
- 바이폴라 플러그를 돌려서 끼울 수 있도록(그림 3) 바이폴라 전극의 나사산이 최소 4-5개는 시멘트에 덮이지 않고 남도록 합니다. 헤드스테이지에서 과도한 시멘트를 제거합니다. 마이크로 스트립의 상단과 3개의 접촉 핀은 깨끗해야 합니다. 시멘트는 빠르게 굳으며, 이 전극들이 커뮤테이터 케이블 플러그에 완전히 결합되는 것을 쉽게 방해할 수 있습니다. 스플린터 포셉을 사용하여 부분적으로 굳은 과도한 시멘트를 제거합니다.
- 시멘트가 투명하게 굳을 때까지 기다립니다. 마이크로 해부 가위를 사용하여 두 개의 3T 와이어에서 여유분 몇 센티미터를 남기고 남은 길이를 잘라냅니다.
- 왼손에는 플랫폼이 있는 마이크로 해부 포셉을, 오른손에는 미세 팁 마이크로 해부 포셉을 잡습니다. 왼쪽 포셉으로 눈꺼풀 약간 앞쪽의 3T 와이어 하나를 잡습니다. 오른쪽 포셉으로 눈꺼풀을 밀어 올려 3T 와이어가 더 많이 드러나게 하여 고정합니다. 왼쪽 포셉을 놓고 왼손으로 헤드스테이지를 잡습니다(이 시점에서 단단히 고정되었는지 확인하십시오). 오른쪽 포셉을 사용하여 PTFE 차폐재의 일부를 벗겨내어 와이어가 orbicularis oculi(안륜근) 근육과 접촉할 수 있게 합니다.
참고: 3T 와이어를 너무 세게 잡아당기면 접촉 핀에서 분리될 수 있으니 주의하십시오. 와이어가 분리되면 굳은 시멘트가 뼈 파손 없이 두개골에서 쉽게 떨어지지 않으므로 접촉 핀을 교체할 수 없습니다. - 두 번째 3T 와이어에 대해서도 4.2.21의 단계를 수행하여 과도한 PTFE를 벗겨냅니다.
- 4.2.21에서 언급한 대로 두 개의 마이크로 해부 포셉(왼쪽 플랫폼, 오른쪽 미세 팁)을 잡습니다. 오른쪽 포셉이 눈꺼풀 바로 앞에 위치할 공간을 남겨두고, 왼쪽 포셉을 3T 와이어 하나보다 약간 앞쪽에 위치시킵니다. 두 포셉으로 와이어를 잡습니다.
- 오른쪽 포셉은 가만히 유지하고 왼쪽 포셉을 눈꺼풀 쪽으로 위로 돌려 감아 "훅(hook)"을 만듭니다. 이 동작은 한 번에 수행합니다. 오른쪽 포셉을 조심스럽게 놓고, 그다음 왼쪽 포셉을 놓습니다.
참고: 전극을 눈꺼풀에 훅 형태로 고정하면 각막에 쓸릴 가능성을 최소화하는 데 도움이 됩니다. 이는 또한 행동 테스트 단계의 어느 시점에서든 와이어가 끊어질 가능성을 최소화합니다. 훅 고정이 모든 동물의 각막 마찰을 완전히 방지하지는 못하지만, 일반적으로 높은 눈 깜빡임 진폭(5.1.7에서 디지털 오실로스코프로 측정)과 수술 후 매일 건강 관찰(과도한 눈물, 부분적인 눈꺼풀 폐쇄, 눈 손상으로 인한 가동성 저하 없음)에서 나타나듯 눈 손상의 징후를 보이지 않습니다. 쥐가 초기 불편함을 보이면 이소플루란으로 마취하고(4.1.10 참조) 전극을 재검사 및/또는 재배치합니다. 각막이 건조해지는 것을 막기 위해 안연고를 도포합니다. 수술 후 눈 합병증이 있는지 매일 관찰하며, 증상이 지속될 경우 수의 진료를 받습니다. 전극 재배치나 수의학적 치료로 교정할 수 없는 심각한 눈 합병증을 보이는 쥐는 ECU IACUC의 표준 운영 절차에 따라 인도적으로 안락사시킵니다.
- 오른쪽 포셉은 가만히 유지하고 왼쪽 포셉을 눈꺼풀 쪽으로 위로 돌려 감아 "훅(hook)"을 만듭니다. 이 동작은 한 번에 수행합니다. 오른쪽 포셉을 조심스럽게 놓고, 그다음 왼쪽 포셉을 놓습니다.
- 두 번째 3T 와이어에 대해서도 4.2.23의 단계를 수행합니다. 마이크로 해부 가위를 사용하여 남은 와이어를 잘라냅니다.
- 한 손으로 쥐의 몸을 지탱하면서 다른 손으로 이어 바에서 쥐를 풀어줍니다. 머리에 혈액이나 파편이 있는지 확인하고 필요한 경우 세척한 뒤, 부프레노르핀을 수술 후 주사합니다.
- 회복을 돕기 위해 열원(온도 조절 수중 가열 패드 등)이 있는 회복통에 쥐를 넣습니다. 수술 기록지에 수술 종료 시간과 수술 중 쥐에 대한 특이 사항을 기록합니다. 쥐의 호흡이 적절한지 모니터링하고, 쥐가 흉골 복와위(sternal recumbency)를 취하거나 움직이기 시작하면 홈 케이지로 돌려보낼 수 있습니다.
- (손상될 수 있는 마이크로 해부 포셉을 제외한) 도구들을 비드 멸균기로 재멸균하고 수술 구역이 무균 상태로 유지되도록 하며, 여러 건의 눈꺼풀 수술을 수행할 경우 무균 절차를 반복합니다.
5. 눈깜빡임 고전적 조건 형성 절차
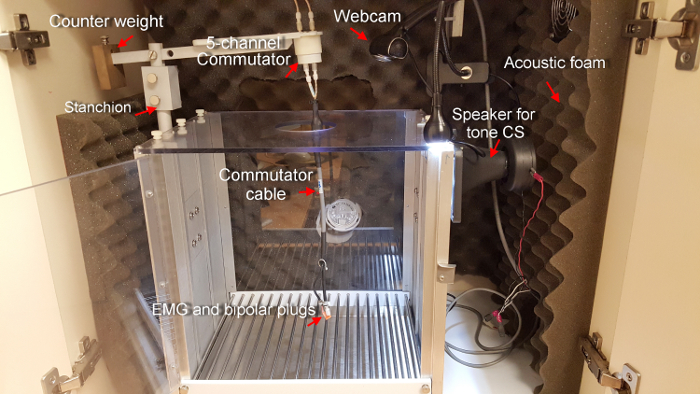
그림 3: 눈깜빡임 조건화를 위해 수정된 조작적 조건 형성 상자. 쥐는 자유롭게 움직이는 포유류이므로, 머리에 부착된 EMG 및 바이폴라 플러그의 전기 신호 접촉을 유지하기 위해 회전식 커뮤테이터를 사용합니다. 커뮤테이터는 스탠션의 암에 부착되며, 쥐에게 가해지는 압력을 완화하기 위해 카운터웨이트가 적용되었습니다. 피에조 트위터(스피커)는 85 dB의 2.8 kHz 톤을 출력하며, 이 값들은 정기적으로 교정됩니다. 흡음폼은 주변 소음을 감쇠시키는 역할을 합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
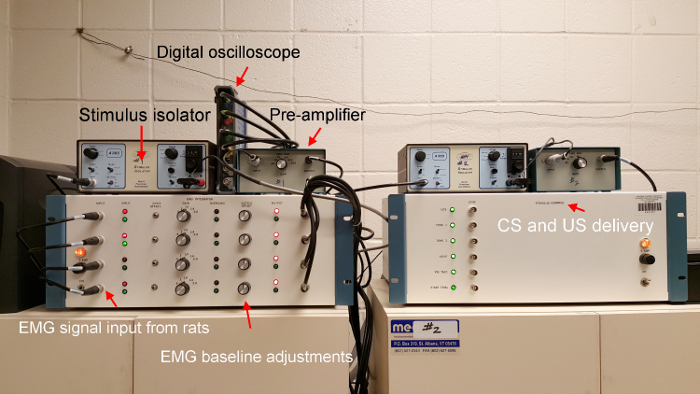
그림 4: 눈깜빡임 조건화 시스템. 이 맞춤 제작 시스템은 쥐로부터 들어오는 신호를 필터링하고 증폭하는 EMG 적분기 유닛, 톤과 충격 외에 다양한 자극을 전달하는 자극 제어 유닛, EMG 신호 이득을 높이기 위해 각 조작 상자에 설치된 전치 증폭기, 그리고 각 조작 상자용 자극 절연기로 구성됩니다. 이 시스템은 다양한 충격 레벨(mA 단위)을 제공합니다. 디지털 오실로스코프(표준 눈깜빡임 시스템의 일부가 아님)는 습관화 및 획득 과정 중 진단 목적으로 사용됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
- 수술 5일 후 순화 및 습득 훈련을 시작한다. 각 쥐에게 더 큰 방음 챔버 내에 설치된 수정된 조작적 조건 형성 박스로 구성된 훈련 장치(그림 3)에 대한 하루의 핸들링 및 순화 시간을 제공하고, 이어서 6일간의 습득 훈련을 실시한다. 순화 및 습득 세션은 맞춤 제작된 눈깜박임 시스템(그림 4)을 사용하여 수행한다.
- 훈련 로그 파일을 생성하고 이를 출력하여 일일 기록 유지용으로 사용한다. 이 로그에는 의사 무작위(또는 다른 무작위화 방법)로 훈련 박스에 미리 배정된 쥐 그룹(squad)이 기재되어 있어야 한다.
- 눈깜박임 시스템과 컴퓨터의 전원을 켜고 눈깜박임 소프트웨어를 실행한다. 이 버전의 소프트웨어에는 독립적으로 실행되는 서로 다른 모듈(또는 애플리케이션)이 있다. Animal 모듈을 실행하여 피험자 정보(세션 번호, 동물 ID, 성별, 체중, 박스 번호)가 포함된 *.RAT 파일을 생성한다. 단일 RAT 파일은 최대 4마리의 쥐를 관리하며, 이는 피험자 한 그룹을 구성한다. 해당 값을 입력하고 파일을 저장한다. 훈련될 각 쥐 그룹별로 별도의 RAT 파일을 생성한다.
- 쥐를 사육실에서 테스트 룸으로 옮기고 문을 닫는다. 각 쥐를 5분 동안 핸들링한다.
- 쥐를 지정된 박스로 옮기고, 커뮤테이터 케이블의 EMG 및 양극 플러그를 머리에 있는 해당 EMG 헤드스테이지와 양극 전극에 연결한다.
참고: 커뮤테이터 케이블에 처음 노출되었을 때, 쥐가 저항하며 스트레스 징후를 보일 수 있다. 쥐를 조심스럽게 다루고, 스트레스를 완화하기 위해 연결에 실패했을 때는 중간에 휴식 시간을 준다. - 쥐가 박스 내에서 자유롭게 움직이는 동안 전기 신호의 전달/수신을 유지하며 360° 회전하는 커뮤테이터를 사용한다. 여기에는 원시 신호를 필터링하고 증폭하는 EMG 적분기 유닛으로 연결되는 5개의 채널(EMG 전극용 3개, 양극 전극용 2개)이 있다.
- 쥐가 자유롭게 움직이는지, 커뮤테이터 케이블 어셈블리나 지지대 암의 무게로 인해 방해를 받지 않는지 확인한다. 필요한 경우 지지대 뒷면의 카운터 웨이트를 조정한다. 모든 플러그가 단단히 고정되었는지 확인한 후 박스 문을 닫는다. 모든 쥐에 대해 동일한 연결/확인 절차를 수행한다.
- 오실로스코프를 사용하여 비정상적인 신호(예: 고주파 및/또는 고진폭 전기 활동)가 있는지 EMG 활동을 관찰하고, 가능하다면 비디오 감시 시스템을 사용하여 상태(예: 운동 활동, 환경 민감도, 통증 징후)를 확인한다. 관찰된 모든 문제는 훈련 로그에 기록한다.
- 쥐가 챔버에 10분 동안 순화되도록 한 후, 홈케이지로 돌려보낸다.
- 조작적 박스를 세척 및 소독하고, 바닥을 쓸고, 테이블을 닦는다. 매 세션 후에 이 절차를 수행한다.
- 습득 훈련은 6일 연속(세션)으로 진행된다.
- 1일 차: 쥐를 지정된 박스로 옮기고, 커뮤테이터 케이블의 EMG 및 양극 플러그를 머리에 있는 해당 EMG 헤드스테이지와 양극 전극에 연결한다. 5.1.6 및 5.1.7에 명시된 것과 동일한 절차를 수행한다.
- 자극 절연기를 켜고 전달될 전류를 0.4 mA(비디오에 표시된 10 mA의 4%)로 설정한다. 절연기는 양극 전극의 등쪽(dorsal)과 복측(ventral) 핀 사이에서 교대로(즉, 시행마다) 전류를 전달한다. 이는 반복적인 자극 전달 과정에서 (각 근육 부위의) 근섬유 피로를 줄이는 데 도움이 된다.
- 모든 쥐에 대해 각 시행에서 나타나는 모든 눈깜박임 반응과 내성을 관찰한다. 매 두 번째 시행마다 각 쥐의 전기 충격 US 강도를 0.4 mA씩 높여 1.6 mA에 도달할 때까지(시행 7 및 8에서) 증가시킨다. 모든 쥐가 박스 내에서 정상적으로 반응하는지, 모든 증폭 및 이득 설정이 일정한지, 그리고 전기 신호(즉, 낮거나 거의 없는 EMG 노이즈)가 제대로 전달되는지 재확인한다. 습득 훈련의 모든 기간 동안 1.6 mA의 전기 충격 US 강도를 사용한다.
참고: 쥐가 특정 충격 수준에서 통증 반응(예: 바닥에서 높이 뛰어오름, 벽을 탐, 주변을 뛰어다님)을 보이면 시행을 일시 중단하고, 두 번의 시행 동안 이전 mA 설정(0.4 mA 낮게)으로 되돌린다. 그 후, 쥐에게 다시 내성을 보이지 않았던 더 높은 충격 값을 부여하고, 내성을 보이면 1.6 mA에 도달할 때까지 값을 높인다. 어떤 값도 견디지 못하는 경우, 훈련 내내 견딜 수 있는 가장 낮은 값(0.4 단위로 증분)을 사용한다. - 오실로스코프를 사용하여 비정상적인 신호(예: 고주파 및/또는 고진폭 전기 활동)가 있는지 EMG 활동을 관찰하고, 비디오 감시 시스템을 사용하여 상태(예: 운동 활동, 환경 민감도, 통증 징후)를 확인한다.
참고: Trace ECC 설명: 캡처된 EMG 파형이 있는 대표적인 시행 에포크가 그림 1에 예시되어 있으며, trace ECC 절차는 비디오에서 자세히 설명한다. trace 조건 형성 훈련 파일은 평균 시행 간 간격 30 sec로 100회 시행(90회의 쌍을 이룬 CS-US 시행 및 매 10번째 시행마다 10회의 CS 전용 시행)을 전달하도록 설정되어 있다. 전체 훈련 세션은 약 52 min 동안 지속된다(중단이 없다고 가정할 때). 모든 쥐는 세션 1에서 미경험 상태(naïve)이며, 며칠간의 훈련이 진행됨에 따라 (CR의 발현으로 판단되는) 차별적 학습 곡선을 형성하게 된다. - 훈련 시작: Blink 소프트웨어 모듈을 실행한다. 프롬프트가 나타나면 올바른 RAT 파일과 "trace" 눈깜박임 조건 형성용 훈련 파일을 선택한다.
- 훈련 로그에 시작 시간과 실험자 이름을 기록한다. 이 시점에서 모든 활동을 모니터링한다: 적절한 EMG 신호, 전기 충격 US에 대한 양호한 깜박임 반응(즉, 높고 빈번한 UR), 동물의 건강 상태, 하드웨어의 적절한 기능 여부를 확인한다. 주목할 만한 사항은 훈련 로그에 기록한다.
- 데이터 수집은 소프트웨어에 의해 RAW 파일(쥐 한 마리당, 하루에 하나씩)로 자동 캡처된다. RAW 파일에는 놀람 반응(SR), UR 및 CR(전체 및 적응형)에 대한 EMG 진폭(volt 단위), 주파수 횟수, 잠복기 및 면적 데이터가 포함된다. 충격 아티팩트가 UR 기간의 처음 100 ms를 가리므로, UR 기간의 마지막 140 ms에만 UR 데이터가 포함된다.
- 훈련이 끝나면 소프트웨어가 자동으로 종료된다. 모든 쥐를 훈련 박스에서 꺼내 사육실로 돌려보낸다.
- 이후의 모든 훈련일에 대해 5.2.5 - 5.2.6 단계를 반복한다. 특정 날짜에 Blink 모듈을 시작하기 전, RAT 파일 내의 세션 번호를 업데이트한다. 이를 통해 해당 날짜의 모든 쥐에 대해 새로운 RAW 파일을 생성할 수 있다. 훈련에서 제외된 쥐가 없다고 가정할 때, 각 쥐는 6개의 RAW 파일을 가져야 한다.
- RAW 파일을 처리하고 통계 분석을 위해 필터링된 파일을 생성한다.
- Analysis 모듈을 실행한다. 각 쥐의 각 세션을 시행별로 검토하여 문제가 있는 시행을 확인한다. 이는 다양한 이유(예: 과도한 pre-CS 기선 활동, 과도한 움직임, 전극 탈락, 케이블/배선 문제)로 인해 손상되었을 수 있는 시행을 선별하기 위해 수행된다. 소프트웨어에는 실험자가 "불량 시행"을 감지하여 필터링된 데이터 세트에서 제거하는 것을 돕는 알고리즘이 있다.
- 필터링된 데이터를 스프레드시트 프로그램으로 가져와 관련 통계 분석을 수행한다.
결과
Eyeblink 소프트웨어는 다양 한 유형의 측정 데이터의 크고 포괄적인 세트를 제공 수 있습니다. 간결, 우리는이 연구에서 보고 대표 결과 학습 및 성능에 대 한 적응형 CR 비율, 적응형 CR 진폭, UR 비율 및 UR 진폭을 포함 하는 측정. 적응형 CR 기간 추적 ECC50,,5152중 해 마에서 향상 된 시 냅 스가 소성의 결과로 반복된 훈련을 통해 잘 초과 eyeblink 응답의 인수를 나타내는 선택 되었다. 통해 UR 대책 여부에 신생아 알코올 유발 학습 적자 추적 ECC 동기 또는 모터 차이 보다는 학습 치료 그룹 간의 차이 알 수 있습니다-우리 연관 학습 중단 또는 충격에 응답 중단 했다 명료 하 선정 됐다. 각 측정값에 대 한 데이터 반복 측정 요소로 세션 ANOVAs 혼합 2 (섹스) x 3 (Neonatal 그룹) x 6 (세션)을 사용 하 여 분석 되었다. 신생아 치료 위한 중요 한 주요 효과 했다 Tukey의 포스트 hoc 테스트를 사용 하 여 분석 하 고 중요 한 상호 작용은 간단한 효과 테스트를 사용 하 여 분석 되었다. 모든 통계 분석 0.05의 최소한 알파를 사용 하 여 실시 했다 및 그래프에 결과 평균 ± SEM.
적응형 CR 비율 측정부터, ANOVA 신생아 그룹, F(2,21)의 중요 한 주요 효과 표시 11.69, p = < 0.001, 하지만 섹스의 중요 한 주요 효력이 없다 (p = 0.71) 또는 이러한 요소 사이의 중요 한 상호 작용 (p = 0.20). CR 비율 적응 훈련, F(5, 105)의 6 개의 세션에 걸쳐 증가 예상 대로 81.15, p = < 0.001, 그리고 신생아 그룹 간의 차이 일정 수준의 세션, F(10, 105)에 의존 했다 4.58, p = < 0.001. 전혀 다른 중요 한 상호 작용 세션 요소를 포함 했다. 마찬가지로 적응 CR 진폭, 거기 했다 다시 신생아 그룹, F(2,21)의 중요 한 주요 효과 22.32, p = < 0.001, 하지만 섹스의 중요 한 주요 효력이 없다 (p = 0.21) 또는 이러한 요소 사이의 중요 한 상호 작용 (p = 0.48). CR 진폭 또한 훈련, F(5, 105)의 6 개의 세션에 걸쳐 크게 증가 59.27, p = < 0.001, 그리고 신생아 그룹 간의 차이 일정 수준의 세션, F(10, 105)에 의존 했다 4.31, p = < 0.001. 전반적으로, 두 CR 조치 그룹 의미와 훈련의 다른 세션에서 크게 구분이 의미 간의 중요 한 차이 보였다. 확인 하려면 그룹 크게 달랐다, Tukey의 포스트 hoc 테스트는 알코올 intubated (AI) 쥐 수행 크게 악화 (UC) unintubated-제어 및 가짜 intubated (SI) 쥐 보다 두 CR 조치에 나타났다 (p < 0.01 CR 비율; p < CR 진폭 0.001)는 서로 다를 하지 않았다 (p> 0.05). 간단한 효과 테스트 AI 쥐 CRs 세션 2에서 시작 하 고 세션 6 들고 UC와 시 쥐에 비해 인수에 더 크게 손상 되었다 확인 두 CR 조치에 대 한 상호 작용 세션 x 상당한 Neonatal 그룹에 수행 (모든 p< 0.05)는 6 개의 세션에 걸쳐 서로 다 하지 않았다. 유일한 예외는 적응형 CR 진폭 시 쥐 세션 3까지 AI 쥐에서 크게 다를 시작 하지 않았다 했다. 이러한 결과 그림 5A, 5B에 표시 됩니다.
섹스, 신생아 그룹, 또는 세션 요소와 이러한 요소의 상호 작용 통해 UR 대책에 상당한 차이가 있었다. 이러한 부정적인 결과 표시 각 그룹은 동등 하 게, 충격 eyeblink 응답 우리 방출할 수 동기 또는 모터 차이 (그림 6A, 6B) 점멸에 의해 영향을 학습 적자 AI 쥐에서 관찰 되지 않았습니다.
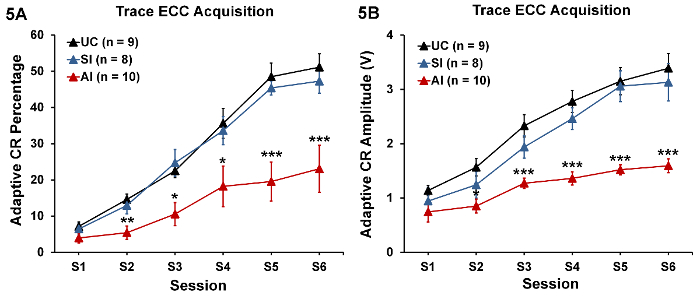
그림 5 : 추적의 인수 조건 응답 (평균 ± SEM). 초기 알콜 노출 (AI 그룹) 적합 조건 반응 (CR) 비율 (A)와 (B) 진폭의 인수를 크게 영향을 받습니다. 추적 ECC는 본질적으로 얻기 어렵다, 따라서 조치는 모든 그룹-지연 ECC에 대 한 상대적으로 낮은, 백분율 FASD21,53의 설치류 모델에서 80-85%에 도달할 수 있습니다. 그럼에도 불구 하 고, 추적 ECC 절차는 쉽습니다 알코올 효과 초기 두뇌 발달 동안에 해 마, 부담 스러운 더 많은입니다. p 를 = < 0.05, * * p = < 0.01, * * * = p < UC 및 AI 쥐; 사이 0.001 샘플 크기는 괄호에 제공 됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
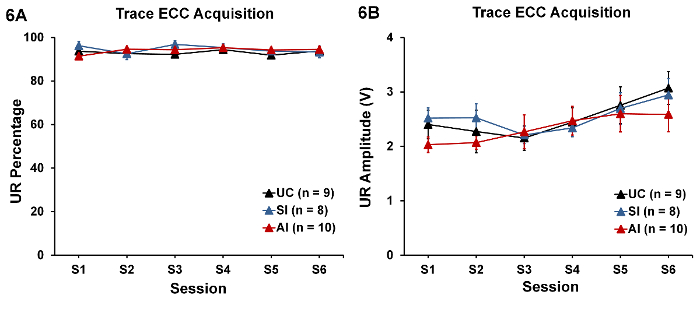
그림 6 : Unconditioned 응답 (± SEM을 의미)의 인수. Eyeblink 성능 (UR 비율과 UR 진폭) 그룹 중 크게 다른 아니었다. 차이의 부족 수집 훈련 중에 사용 하는 충격 강도 차동 AI 쥐 동기 부여를 변경 하지 않았다 또는 그들의 생산 능력을 방어 깜박 모두 제어 그룹 (UC 및 SI)에 비해 충격에 대 한 응답을 나타냅니다. 샘플 크기는 괄호에 제공 됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
토론
출생 후 일 4-9 중 에틸 알코올을 받은 신생아 쥐 새끼 추적 eyeblink 성인에서 장애를 컨디셔닝 전시. 이러한 연구 결과 알코올 hippocampal 기능에 해로운 효과 지속으로 기형 발생 물질은 아이디어를 지원 합니다. 전반적으로, 조건 응답 추적 절차에 있던 두 컨트롤 그룹에 있는 쥐에 비해 알코올에 노출 된 쥐를 위해. 알코올에 노출 된 쥐에 연관 학습 장애 동기 또는 모터 차이 의해 영향을 받지 했다 (즉., 깜박이 충격 미국 강도 차이가).
추적 ECC elucidating 도전 유도 hippocampal neuropathology에 대 한 유용한 진단 도구입니다, 하는 동안이 메서드의 결과 적절 한 문맥에 배치 되어야 합니다. 첫째,이 데모의 핵심 절차 요소 개발 두뇌 하 시 활동의 기록을 허락 한다 충격, 위에서 언급 한 하드웨어, 그리고 관심의 인지 기능을 평가 하는 학습 패러다임을 사용 하 여 후속 동물 테스트의 외과 이식 전극 하드웨어의 제작에 대 한 취약성의 알려진된 창 동안 알코올의 대상된 배달 관련. 과정에서 각 단계에서 해야 합니다 주의 쥐 주제에 의도 하지 않은 불필요 한 피해를 발생 하지 하 고 그들의 건강 징후를 정기적으로 모니터링 합니다. 그들의 행동 결과 인지 "창"을 제공, 정확 하 게는 심리적 구조 설명 때 그들의 건강 알코올 주입, 하드웨어 결함, 또는 수술 주입을 포괄 하는 실험적인 오류에 의해 손상 되지. 따라서, 연구 과정에서 절차 상의 각 요소 간에 발견에 ECC에서 결과 추정 수 있도록 사운드 방식으로 구현 되어야 합니다. 둘째, ECC 패러다임 연관 학습의 본질에 통찰력을 제공 하지만 해야 합니다 주의 하지이 접근을 사용 하 여 결과 확장 하 고 광범위 하 게 다른 인지 도메인-작업 메모리, 단기/장기 기억, 의식-등을 돌리다 한 실험적인 디자인으로 ECC 연구 내에서이 도메인의 일부 일 면을 통합 했다 하지 않는 한. 예를 들어이 데모 추적 ECC 학습의 수집 단계를 검사 하지만 그들은 훈련을 완료 한 후 쥐에 메모리 보존을 조사 하지 않았다. 메모리는 이렇게 학습 이외에 평가 해야 하는 독립적인 심리적 프로세스입니다. 디자인, 하나 중 단기 또는 장기 메모리 능력을 평가 하기 위해 메모리 보존 간격을 통합할 수 있습니다. 셋째, 병렬 메모리 시스템54 동작을 동기, 경험, 그리고 호르몬 요인 함께 동시에 작동 하지 않을 수 있습니다 인정 (ECC) 동안 연관성은 이해 하지만 "좋은" 또는 "가난한" 학습에 대해 공개 하는 많은 프로세스 중 하나에 대 한 필수적입니다. 마지막으로, 추적 ECC 아니다 순전히 hippocampal 종속 작업, 다른 뇌 영역 크롬의 몇 가지 구성 요소를 중재할 수 있습니다. 따라서, 다른 신경 회로 및 자극 매개 변수를 연구에 활용, 의미 개별 결과에 따라 때에 고려 한다 유형 사이 상호 작용의 이해. 소 뇌, 예, 또한 추적 ECC, 어디 그것 영향 CR와 타이밍, 특히 ISI는 짧은 기간에 크롬의 지형 특성에 기여. 추적 ECC 긴 추적 간격 (1000 ms), 테스트는 인간 소 뇌 손상에 영향을 받지 않습니다 하지만 그는 짧은 추적 간격 (400 ms)34에 영향을. 또한, 마우스에 이전 대상 및 중간 agranular 영역을 대상으로 등 쪽 내측 전 두 엽 피 질 (mPFC)의 양측 병 변 비슷한 결과46를 생산 하는 토끼에서 꼬리 mPFC의 파괴 하는 동안 추적55, CRs 인수를 방지 합니다. 이러한 연구 결과 또한 고려 소 뇌-뇌 전 두 엽 기여에 종 차이 줄기 추적 ECC와 같은 구동된 연관 학습의 중요성을 강조. 성인 500 ms 추적 CRs의 PD 4-9에 부정적인 영향을 중 신생아 알코올 노출 쥐이 연구 등에서47,56, 이것은 하지 알콜 (5 g/kg)57, 알코올에 노출 된 쥐에 추적 장애 추적 간격의 기간에 따라 달라 집니다 제안의 상대적으로 높은 복용량에 도전 하는 경우에 300 ms 추적 간격을 경험 하는 신생아 알코올에 노출 된 쥐에 대 한 같은 경우.
본이 연구에서는 해 마 신경 관련 손상 장애 추적 CRs의 취득에 의해 반영 된 전시 vitally 중요 추적 ECC, 중재에 대 한 신생아 알콜 노출에 의해 도전 되 고 강조 했다. 그러나 그것은,, 소 뇌-뇌 줄기 회로, 특히 interpositus 핵, ECC, 수집, 식, ECC 작업 포함 추적 ECC36,40,55,,5859의 종류에 따라 CR의 지형 기능 등의 다양 한 측면에 대 한 필수적입니다 경고 해야 합니다. 실제로,이 신경 회로 추적 ECC60등 ECC의 더 높은 순서 형태 동안 CRs의 식 구동을 위한 해 마와 상호 작용 합니다. 여부 알코올 노출 초기 두뇌 발달 동안 구체적으로 영향을 미치는 hippocampal 기능 추적 ECC에에서 완전히 명확 하지 않습니다. 많은 다른 두뇌 지구는 mPFC, 소 뇌, 그리고 해 마18,19,23,47,,6162를 포함 하 여 초기 알코올 모욕에 취약 하 고 알코올 많은 ECC 절차에 걸쳐 이러한 구조를 다양 한 각도 변화, 하지만 기능적으로 중요 한 차이의 기능 방해 매우 높습니다. 추적 ECC 연구에서 결과의 해석에 관한 함정, 불구 추적 CRs의 성공적인 인수 표시 되었습니다 적어도 그대로 해 마에 의존 하는 동물 병 변 연구42,44,63,,6465에 의해 지원. 이 프로시저는 추적 조건 때문에, 기본 신경 회로 훨씬 더 나은 응답을 발달 알코올 노출 사이의 링크 모리스 물 미로에 장소 학습 등 다른 hippocampal 종속 작업 보다 소설 개체 인식, 이해 위한 매우 귀중 한 접근에 따라서 남아 있다 및 콘텐츠 및 컨디셔닝 공포 추적.
"시험" 인식, 행동 방법으로 ECC 발달 neuroteratology의 분야에서 광범위 한 적용을 있다. 실제로, 우리의 실험실에서 최근 연구 결과 개발 해 마는 다른 중재 전략18,47에 의해 완화 될 수 있습니다 알코올 효과에 매우 민감한 개념 지원. 여기에 주요 장점은 그 알코올 유발 추적 ECC 학습 적자의 더 나은 이해, 그들은 수 있습니다 연관 학습-외부 기반 hippocampal 기능에서 다른 문제의 예측 같은 hippocampal neurocircuitry에 의해 중재 될 것으로 알려져 특히 그입니다.
응용 프로그램 추적 ECC 및 그것의 다른 변종 (예를 들어, 지연, 반전, 차별, 복합) neurobiological 메커니즘 및 신경 시스템 연관 학습에 관련 된 명료 하의 태아 알코올 연구의 분야를 넘어 확장할 수 있습니다. 예를 들어이 패러다임에 인간의 경우 정신 분열 증66,67같은 정신 조건, 알 츠 하이 머 병68,69, 같은 신경 퇴행 성 질환의 동물 모델 및 약물 남용70,,7172의 많은 관심을 받았습니다. Neurocognitive 기능 부전을 평가 하는 연구 방법으로 그 혜택은 따라서 신경 과학을 비롯 한 많은 심리적, 생물 의학 분야에 걸쳐 분명 있습니다.
공개 사항
저자는 공개 없다.
감사의 글
이 작품은 지원 교부 금에 의해 TDT에서는 알콜 음료 의료 연구 재단 (ABMRF).
재료
NameCompany카탈로그 번호CommentsEMG Headstage Fabrication and Bipolar Electrode 로 . 사이에 어떤 든 개 포함Roboz 수술 기구 우유 Roboz 수술 NC9358575 [Fisher Scientific]은 는 는 , PC 컴퓨터, MS Windows OS를 실행하는 모든
사용하지 마십시오. 이든 . 량 저울을 사용하는 데 사용할 수 있습니다. 모든
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| <강한>신생아 알코올 노출 | |||
| 190 증명 에틸 알코올 (USP) | Pharmco-AAPER | 225-36000 [ECU 의료 저장실] | 로 대체할 수 있으며; USP여야 합니다; 200 proof 에틸 알코올 |
| 용기/바구니를 강아지용으로 | |||
| 어떤 옥수수 기름 | 어떤 음식 등급 | ||
| 의 가열 물 치료 펌프가 있어야 합니다. 패드 | Gaymar | TP-500 | 강아지를 따뜻하게 유지하기 위해; 대체될 수 있습니다. |
| 하이포더믹 바늘 22G x 1 인치, 멸균 | 모든 | ||
| 피하 주사 바늘 30G x 1/2 인치, 멸균 | 이 | ||
| 소프로필 알코올 70% | EMD Millipore | PX1840-4 [Fisher Scientific] | 로 대체할 수 있습니다; 시약 등급 www.fishersci.com |
| Long-Evans Rats (Female and Male Breeders) | Charles River Laboratories | N/A [ECU Dept. of Comparative Medicine] | 나이와 체중을 지정해야 합니다. 가격은 이러한 요인에 따라 다릅니다 www.criver.com |
| Micro Dissecting Scissors, 3.5 in, 23 mm Blades | Biomedical Research Instruments | 11-2200 | PE 튜빙 절단용 brisurgical.com |
| 폴리에틸렌 10 튜빙(0.011인치) 신분증; 0.024 에. O.D.) | BD 진단 시스템 | 22-204008 [Fisher Scientific] | 대체 가능 www.fishersci.com |
| Polyethylene 50 Tubing (0.023 in. 신분증; 0.038 에. O.D.) | BD 진단 시스템 | 22270835 [Fisher Scientific] | 대체 가능 www.fishersci.com |
| 조절 온수기 또는 아기 우유 병 워머 | 모든 | 선택 사항; 차가운 우유 용액을 따뜻하게 도와줍니다 | |
| 투베르쿨린 주사기, 멸균, 1.0 ml | 모든 | ||
| 투베르쿨린 주사기, 멸균, 10 ml | 모두 | 에틸 알코올을 추출하거나 적절한 크기의 마이크로 파이프 계 | |
| 해상도가 좋아야 합니다 (그램 단위) | |||
| 개질 | |||
| 양극 전극, 2채널 SS 트위스트 | 플라스틱 One, Inc. | MS303/2-B/SPC SS 선출 2C TW .008" | 반드시 받침대 아래 20mm의 사용자 정의 길이를 지정해야 합니다 www.plastics1.com |
| Centi-Loc 스트립 소켓 절연체(즉, 마이크로 스트립) | ITT Cannon / ITT Interconnect Solutions | CTA4-IS-60* 또는 CTA4-1S-60* | *공급업체에 따라 다름; www.onlinecomponents.com 또는 www.avnetexpress.avnet.com |
| 치과 플라이어, 톱니 | CMF Medicon | 390.20.05 참조 | 대체될 수 있습니다; 남성 접촉 핀에 와이어를 압착하는 데 사용하십시오 www.medicon.de |
| 마이크로 해부 가위, 3.5 인치, 23 mm 블레이드 | 생물의학 연구 기구 | 11-2200 | 3T 와이어를 절단하는 데만 사용하십시오; 10T 와이어를 절단하면 블레이드가 손상됩니다 - 대신 와이어 스트리퍼의 블레이드를 사용하십시오 brisurgical.com |
| PTFE 코팅 스테인리스 스틸 와이어, 10T (베어 직경 .010 in) | Sigmund Cohn-Medwire | 316SS10T | www.sigmundcohn.com |
| PTFE 코팅 스테인레스 스틸 와이어, 3T (베어 직경 0.003 in) | Sigmund Cohn-Medwire | 316SS3T | www.sigmundcohn.com |
| Razor Blade | Any | To strip 1 mm from prongs of bipolar electrode | |
| Relia-Tac Socket Contact Pin, Male | Cooper Interconnect | 220-P02-100 | See Allied Electronics Cat # 70144761 www.alliedelec.com |
| 트위저, 고정밀, 톱니 모양, 4 3/4 인치 | 전자 현미경 과학 | 78314-00D | 부드러운 핀셋으로 PTFE를 벗겨내면서 10T 와이어를 단단히 잡으려면 www.emsdiasum.com |
| 트위저, 고정밀, 매끄러운, 4 3/4 인치 | 전자 현미경 과학 | 78313-00B | www.emsdiasum.com |
| 트위저, 초미세 팁, 4 3/4 인치 | 전자 현미경 과학 | 78510-0 | 3T 와이어의 한쪽 끝에서 1mm의 PTFE를 벗겨냅니다. 부드러운 핀셋으로 차폐 부분을 잡으십시오 www.emsdiasum.com |
| 와이어 스트리퍼, 16-26 AWG | 모든 | 블레이드 끝을 사용하여 마이크로 스트립을 절단하십시오 | |
| Name< | strong>Company | 카탈로그 번호 | Comments |
| >Eyelid Surgery | |||
| 수술 기구 (고품질 스테인리스 스틸) | |||
| 2 x 드레싱 집게, 4 인치 톱니 모양의 | 생물 의학 연구 기기 | 30-1205 | 대체 할 수 있습니다. 수술 트레이 외부의 전극 / 나사를 잡기위한 여분의 집게 brisurgical.com |
| 드레싱 집게, 3 인치 톱니 모양의 | 생물 의학 연구 기기 | 30-1200 | 대체 가능 brisurgical.com |
| Instrument Tray | Biomedical Research Instruments | 24-1355 | 대체 가능 brisurgical.com |
| Knife Handle No. 3, 5 in | Biomedical Research Instruments | 26-1000 | 대체 가능 brisurgical.com |
| Micro Dissecting Forceps, 3.5 in, Fine Points | Biomedical Research Instruments | 10-1630 | 대체 가능 brisurgical.com |
| Micro Dissecting Forceps, 3.5 in, Smooth Platform (0.3 x 5 mm) | Biomedical Research Instruments | 10-1720 | brisurgical.com |
| 마이크로 해부 가위, 3.5 인치, 매우 섬세한, 15 mm 블레이드 | 생물 의학 연구 도구 | 11-2000 | 교체 가능 brisurgical.com |
| Plain 스플린터 펜치, 3.5 인치 | 생물 의학 연구기구 | 30-1600 | 대체 가능 brisurgical.com |
| #10 스테인리스 스틸 수술용 블레이드 #3 핸들, 멸균 | 모든 | 것으로 대체 가능 | |
| 0-80 x 0.125 in 스테인리스 스틸 나사 | Plastics One, Inc. | 0-80 x 0.125 | 대체 가능 www.plastics1.com |
| Alcohol Prep Pads, Sterile | Fisher Scientific | 22-363-750 [Fisher Scientific | 대체 가능 www.fishersci.com |
| Betadine Povidone-Iodine | Purdue Frederick Co. | 6761815101 [Fisher Scientific] | 대체 가능 www.fishersci.com |
| Betadine Povidone-Iodine Prep Pads | Moore Medical | 19-898-946 [Fisher Scientific] | 대체 가능 www.fishersci.com |
| Cotton-Tipped Swabs, | Any | Autoclavable일반적으로 7.6 cm 또는 15.2 cm 길이의 | |
| 핀 바이스용 드릴 비트, #55 (0.052 인치) | 모든 | 금속은 부식 및 부식에 저항해야 합니다 | |
| 거즈 패드, 2 인치 x 2 인치 | Fisher Scientific | 22-362-178 [Fisher Scientific] | 대체 가능 www.fishersci.com |
| 범용 라텍스/니트릴/비닐 장갑 | 모두 | ||
| 유리 구슬 살균기 | 수술 | 살균 기구 | |
| 가열된 물 치료 펌프 w/ 패드 x 2 | Gaymar | TP-500 | 대체 가능; 별도의 펌프가 권장됩니다 - 수술용 1개, 회복용 1 |
| 피하 주사 바늘 26G x 3/8 인치, 멸균 | 모든 | ||
| 이소플루란 | Vedco | NDC 50989-150-12 | Manfacturer를 대체할 수 있습니다. 수의사 승인이 필요할 수 있습니다 |
| . Isoflurane 기화기 시스템, 탁상, 비호흡 | Parkland Scientific | V3000PK | 대체 가능 www.parklandscientific.com |
| Jewelers 스크루드라이버 w/ 1.8-2 mm 블레이드 | 모든 | 금속은 녹과 부식에 저항해야 합니다 | |
| . Ortho-Jet BCA 패키지(치과용 시멘트) | Lang Dental | B1334 | 분말 (1 lb) 및 액체 < br / > < href = "http://www.langdental.com/">www.langdental.com< / a > |
| 압력 조절기가있는 산소 탱크, 대형 | 현지 공급 업체 | ||
| 도자기 도가니, 고형, 유약, 10 ml | CoorsTek, Inc. | 07-965C [Fisher Scientific] | Fisher FB-965-I Wide-Form Crucible www.fishersci.com |
| Puralube Veterinary Ophthalmic Ointment, Sterile | Henry Schein Company | NC0144682 [Fisher Scientific] | 로 대체 가능 www.fishersci.com |
| Quatricide PV-15로 대체 가능 | Pharmacal | PV-15 | 항균 소독제; 대체 가능 www.pharmacal.com |
| Rat 가스 마취 마스크 스테레오택시 수술용 | Stoelting Company | 51610 | www.stoeltingco.com |
| Rat 스테레오택시 장치 w/ 이어바 (45도) | 고막 손상을 방지하기 위해 어떤 45도 바도 사용이 권장됩니다. | ||
| 대체할 수 있습니다. 오토 클레이브 중 윤활 기기 www.fishersci.com< / A > | |||
| 설치류 헤어 트리머 | 모든 | ||
| 염화나트륨 | Fisher Scientific | S641-500 [Fisher Scientific] | 0.9 % 식염수를 만들기 위해; 시약 등급; USP www.fishersci.com |
| 스테인리스 스틸 마이크로스패튤라 (블레이드: 0.75 L x 0.18 in. W) | Fisher Scientific | 21-401-15 [Fisher Scientific] | 대체 가능 www.fishersci.com |
| Starrett Pin Vise, 0.000 인치 - 0.055 인치 | 모든 | 니켈 도금 또는 이에 상응하는 것으로 녹과 부식을 저항하는 것이 좋습니다 | |
| . 멸균 수술용 장갑 | 모든 | ||
| 멸균 랩, 20 인치 x 20 인치, 오토클레이브 가능 | Propper Manufacturing | 11-890-8C [Fisher Scientific] | 수술 중 멸균 가능한 물품 및 멸균 현장을 포장하는 데 유용합니다 www.fishersci.com |
| 수술용 드레이프, 멸균/오토클레이브 가능 | 모든 | 쥐를 위해 크기를 잘라야 할 수 있습니다. | |
| 수술 가운* | Any | *IACUC 수술 마스크에 의해 필요한 경우 | |
| 모든 | |||
| 투베르큘린 주사기, 멸균, 1.0ml | 모든 | ||
| 계량 저울 | 해상도가 좋아야 합니다(그램 단위) | ||
| Name | Company | 카탈로그 번호 | Comments |
| Eyeblink 시스템 및 구성 요소(4-설치류 시스템을 가정) | |||
| 5 채널 정류자 x 4 | Plastics One, Inc. | SL2 + 3C | www.plastics1.com |
| 양극 전극 케이블, 이중 305 x 4 | 플라스틱 One, Inc. | 305-305 80CM TT2 (C) | 쥐와 정류자에 양극 전극에 플러그 끝을 제공합니다; 수정해야합니다 www.plastics1.com< / a> |
| Cable, 5 채널, 차폐, 26 AWG x 4 | 정 | 류 케이블을 제조하려면; 이것은 | |
| 조작 테스트 상자 (내부 : 24 H x 23 W x 14 D in) x 4 | Med-Associates | 대체될 수 있습니다; 내부 치수는 음향 폼을 위한 공간이 있는 조작 테스트 박스에 편안하게 맞아야 합니다; 팬과 함께 맞습니다 - 55-60 dB www.med-associates.com | |
| Eyeblink 시스템 및 소프트웨어 | JSA 디자인 | N/A | 독점 및 연구 실험실 |
| 을 위해 맞춤화되었습니다.열 수축 튜빙 (3/16 인치, 1/4 인치, 3/8 인치, 1/2 인치 직경) | Any | 수정된 정류자 케이블 납땜 끝과 접합을 보호하기 위해 | |
| 멜라민 트리플 피크 음향 폼 w/블랙 하이팔론 (24 x 48 인치) | McMaster-Carr | 9162T5 | 대체 가능; 4개의 하우징 챔버에 맞게 잘라내기 www.mcmaster.com |
| 작동 테스트 박스(외부 12.5 L x 10 W x 13.5 in H), 완전한 x 4 | Med-Associates | ENV-007 맞춤형 패키지 | , 스테인리스 스틸 그리드 바닥 및 맞춤형 상단 포함(정류자 케이블용 중앙에 3인치 구멍) www.med-associates.com |
| 오실로스코프(옵션) | Any | 권장 최소 사양: 200MHz 아날로그 대역폭, 1GS/s 실시간 샘플링, 4채널; 참조 www.picotech.com /td> | |
| Piezo Tweeters (Speakers) x 4 (7 x 3 in) | MCM Electronics | 53-805 | eyeblink system (2500 Hz - 25 KHz)의 주파수 범위 사양과 일치해야 합니다 www.mcmelectronics.com |
| 납땜 스테이션, 땜납, 플럭스, 틴너 | 없음 | 26 AWG 케이블을 여성 소켓(남성 relia-tac 접촉 핀에 맞음) 및 바이폴라 플러그에 납땜하기 위해 | |
| Stimulus Isolators x 4 | WPI International | A365 | 이 장치는 16-9V 알카라인 배터리로 작동하며, 적합한 충전식 버전(A365R)을 사용할 수 있습니다 www.wpiinc.com |
| Tripolar 전극 케이블 SL3C 정류자 x 4 | 플라스틱 1개, 주식회사 | 335-335 80cm TT3 C | 쥐와 정류자의 EMG 헤드스테이지에 플러그 끝을 제공합니다; 수정해야 합니다 www.plastics1.com |
| USB LED 라이트 x 4 | 모든 | USB 기반 조명은 쥐로부터의 EMG 신호로 전기 "잡음"을 일으키지 않습니다 www.plastics1.com | |
| 웹캠 x 4, 감시 소프트웨어 | 모든 | ||
| 컴퓨터 |
참고문헌
- Jones, K. L., Smith, D. W. Recognition of the fetal alcohol syndrome in early infancy. Lancet. 2, 999-1001 (1973).
- Stratton, K. R., Howe, C. J., Battaglia, F. C. Fetal alcohol syndrome: Diagnosis, epidemiology, prevention, and treatment. , National Academy Press. (1996).
- Streissguth, A. P., Barr, H. M., Martin, D. C., Herman, C. S. Effects of maternal alcohol, nicotine, and caffeine use during pregnancy on infant mental and motor development at eight months. Alcohol Clin Exp Res. 4 (2), 152-164 (1980).
- Streissguth, A. P., O'Malley, K. Neuropsychiatric implications and long-term consequences of fetal alcohol spectrum disorders. Semin Clin Neuropsychiatry. 5 (3), 177-190 (2000).
- May, P. A., et al. Prevalence and epidemiologic characteristics of FASD from various research methods with an emphasis on recent in-school studies. Dev Disabil Res Rev. 15 (3), 176-192 (2009).
- Sowell, E. R., et al. Mapping callosal morphology and cognitive correlates: Effects of heavy prenatal alcohol exposure. Neurology. 57 (2), 235-244 (2001).
- Sowell, E. R., et al. Abnormal development of the cerebellar vermis in children prenatally exposed to alcohol: Size reduction in lobules I-V. Alcohol Clin Exp Res. 20 (1), 31-34 (1996).
- Autti-Ramo, I., et al. MRI findings in children with school problems who had been exposed prenatally to alcohol. Dev Med Child Neurol. 44 (2), 98-106 (2002).
- Hamilton, D. A., Kodituwakku, P., Sutherland, R. J., Savage, D. D. Children with Fetal Alcohol Syndrome are impaired at place learning but not cued-navigation in a virtual Morris water task. Behav Brain Res. 143 (1), 85-94 (2003).
- Uecker, A., Nadel, L. Spatial but not object memory impairments in children with fetal alcohol syndrome. Am J Ment Retard. 103 (1), 12-18 (1998).
- Uecker, A., Nadel, L. Spatial locations gone awry: object and spatial memory deficits in children with fetal alcohol syndrome. Neuropsychologia. 34 (3), 209-223 (1996).
- Goodlett, C. R., Lundahl, K. R. Temporal determinants of neonatal alcohol-induced cerebellar damage and motor performance deficits. Pharmacol Biochem Behav. 55 (4), 531-540 (1996).
- Goodlett, C. R., Kelly, S. J., West, J. R. Early postnatal alcohol exposure that produces high blood alcohol levels impairs development of spatial navigation learning. Psychobiol. 15, 64-74 (1987).
- Bayer, S. A., Altman, J., Russo, R. J., Zhang, X. Timetables of neurogenesis in the human brain based on experimentally determined patterns in the rat. Neurotoxicol. 14 (1), 83-144 (1993).
- Dobbing, J., Sands, J. Quantitative growth and development of human brain. Arch Dis Child. 48 (10), 757-767 (1973).
- West, J. R. Fetal alcohol-induced brain damage and the problem of determining temporal vulnerability: A review. Alcohol Drug Res. 7 (5-6), 423-441 (1987).
- Zecevic, N., Rakic, P. Differentiation of Purkinje cells and their relationship to other components of developing cerebellar cortex in man. J Comp Neurol. 167, 27-48 (1976).
- Rufer, E. S., et al. Adequacy of maternal iron status protects against behavioral, neuroanatomical, and growth deficits in fetal alcohol spectrum disorders. PLoS One. 7 (10), e47499(2012).
- Tran, T. D., Kelly, S. J. Critical periods for ethanol-induced cell loss in the hippocampal formation. Neurotoxicol Teratol. 25 (5), 519-528 (2003).
- Pierce, D. R., Goodlett, C. R., West, J. R. Differential neuronal loss following early postnatal alcohol exposure. Teratology. 40 (2), 113-126 (1989).
- Tran, T. D., Jackson, H. J., Horn, K. H., Goodlett, C. R. Vitamin E does not protect against neonatal ethanol-induced cerebellar damage or deficits in eyeblink classical conditioning in rats. Alcohol Clin Exp Res. 29 (1), 117-129 (2005).
- Goodlett, C. R., Peterson, S. D., Lundahl, K. R., Pearlman, A. D. Binge-like alcohol exposure of neonatal rats via intragastric intubation induces both Purkinje cell loss and cortical astrogliosis. Alcohol Clin Exp Res. 21 (6), 1010-1017 (1997).
- Green, J. T., Tran, T. D., Steinmetz, J. E., Goodlett, C. R. Neonatal ethanol produces cerebellar deep nuclear cell loss and correlated disruption of eyeblink conditioning in adult rats. Brain Res. 956, 302-311 (2002).
- Cronise, K., Marino, M. D., Tran, T. D., Kelly, S. J. Critical periods for the effects of alcohol exposure on learning in rats. Behav Neurosci. 115 (1), 138-145 (2001).
- Tran, T. D., Cronise, K., Marino, M. D., Jenkins, W. J., Kelly, S. J. Critical periods for the effects of alcohol exposure on brain weight, body weight, activity and investigation. Behav Brain Res. 116 (1), 99-110 (2000).
- Steinmetz, J. E. Brain substrates of classical eyeblink conditioning: A highly localized but also distributed system. Behav Brain Res. 110 (1-2), 13-24 (2000).
- Thompson, R. F. The neurobiology of learning and memory. Science. 233 (4767), 941-947 (1986).
- Ivkovich, D., Eckerman, C. O., Krasnegor, N. A., Stanton, M. E. Eyeblink classical conditioning: Vol. 1 Applications in humans. Woodruff-Pak, D. S., Steinmetz, J. E. , Kluwer Academic Publishers. 119-142 (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume I - Applications in humans. , Kluwer Academic Publishers. (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume II - Animal models. , Kluwer Academic Publishers. (2000).
- Kishimoto, Y., et al. Implicit Memory in Monkeys: Development of a Delay Eyeblink Conditioning System with Parallel Electromyographic and High-Speed Video Measurements. PLoS One. 10 (6), e0129828(2015).
- Chen, L., Bao, S., Lockard, J. M., Kim, J. K., Thompson, R. F. Impaired classical eyeblink conditioning in cerebellar-lesioned and Purkinje cell degeneration (pcd) mutant mice. J Neurosci. 16 (8), 2829-2838 (1996).
- Freeman, J. H. Jr, Carter, C. S., Stanton, M. E. Early cerebellar lesions impair eyeblink conditioning in developing rats: Differential effects of unilateral lesions on postnatal day 10 or 20. Behav Neurosci. 109 (5), 893-902 (1995).
- Gerwig, M., et al. Trace eyeblink conditioning in patients with cerebellar degeneration: Comparison of short and long trace intervals. Exp Brain Res. 187 (1), 85-96 (2008).
- LaBar, K. S., Disterhoft, J. F. Conditioning, awareness, and the hippocampus. Hippocampus. 8 (6), 620-626 (1998).
- McCormick, D. A., Steinmetz, J. E., Thompson, R. F. Lesions of the inferior olivary complex cause extinction of the classically conditioned eyeblink response. Brain Res. 359 (1-2), 120-130 (1985).
- Clark, R. E., Zola, S. Trace eyeblink classical conditioning in the monkey: a nonsurgical method and behavioral analysis. Behav Neurosci. 112 (5), 1062-1068 (1998).
- Anderson, B. J., Steinmetz, J. E. Cerebellar and brainstem circuits involved in classical eyeblink conditioning. Rev Neurosci. 5 (3), 251-273 (1994).
- Thompson, R. F., Krupa, D. J. Organization of memory traces in the mammalian brain. Annu Rev Neurosci. 17, 519-549 (1994).
- Miller, M. J., et al. fMRI of the conscious rabbit during unilateral classical eyeblink conditioning reveals bilateral cerebellar activation. J Neurosci. 23 (37), 11753-11758 (2003).
- Geinisman, Y., et al. Remodeling of hippocampal synapses after hippocampus-dependent associative learning. J Comp Neurol. 417 (1), 49-59 (2000).
- Ivkovich, D., Stanton, M. E. Effects of early hippocampal lesions on trace, delay, and long-delay eyeblink conditioning in developing rats. Neurobiol Learn Mem. 76 (3), 426-446 (2001).
- Moyer, J. R. Jr, Deyo, R. A., Disterhoft, J. F. Hippocampectomy disrupts trace eye-blink conditioning in rabbits. Behav Neurosci. 104 (2), 243-252 (1990).
- Solomon, P. R., Vander Schaaf, E. R., Thompson, R. F., Weisz, D. J. Hippocampus and trace conditioning of the rabbit's classically conditioned nictitating membrane response. Behav Neurosci. 100 (5), 729-744 (1986).
- Kronforst-Collins, M. A., Disterhoft, J. F. Lesions of the caudal area of rabbit medial prefrontal cortex impair trace eyeblink conditioning. Neurobiol Learn Mem. 69 (2), 147-162 (1998).
- Weible, A. P., McEchron, M. D., Disterhoft, J. F. Cortical involvement in acquisition and extinction of trace eyeblink conditioning. Behav Neurosci. 114 (6), 1058-1067 (2000).
- Thomas, J. D., Tran, T. D. Choline supplementation mitigates trace, but not delay, eyeblink conditioning deficits in rats exposed to alcohol during development. Hippocampus. 22 (3), 619-630 (2012).
- West, J. R., Hamre, K. M., Pierce, D. R. Delay in brain growth induced by alcohol in artificially reared rat pups. Alcohol. 1 (3), 213-222 (1984).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Christian, K. M., Thompson, R. F. Neural substrates of eyeblink conditioning: acquisition and retention. Learn Mem. 10 (6), 427-455 (2003).
- Kishimoto, Y., Nakazawa, K., Tonegawa, S., Kirino, Y., Kano, M. Hippocampal CA3 NMDA receptors are crucial for adaptive timing of trace eyeblink conditioned response. J Neurosci. 26 (5), 1562-1570 (2006).
- Shors, T. J., et al. Neurogenesis in the adult is involved in the formation of trace memories. Nature. 410 (6826), 372-376 (2001).
- Tran, T. D., Stanton, M. E., Goodlett, C. R. Binge-like ethanol exposure during the early postnatal period impairs eyeblink conditioning of short and long CS-US intervals in rats. Dev Psychobiol. 49 (6), 589-605 (2007).
- Mizumori, S. J., Yeshenko, O., Gill, K. M., Davis, D. M. Parallel processing across neural systems: Implications for a multiple memory system hypothesis. Neurobiol Learn Mem. 82 (3), 278-298 (2004).
- Siegel, J. J., et al. Trace Eyeblink Conditioning in Mice Is Dependent upon the Dorsal Medial Prefrontal Cortex, Cerebellum, and Amygdala: Behavioral Characterization and Functional Circuitry(1,2,3). eNeuro. 2 (4), (2015).
- Murawski, N. J., Jablonski, S. A., Brown, K. L., Stanton, M. E. Effects of neonatal alcohol dose and exposure window on long delay and trace eyeblink conditioning in juvenile rats. Behav Brain Res. 236 (1), 307-318 (2013).
- Lindquist, D. H. Hippocampal-dependent Pavlovian conditioning in adult rats exposed to binge-like doses of ethanol as neonates. Behav Brain Res. 242, 191-199 (2013).
- Ivarsson, M., Svensson, P. Conditioned eyeblink response consists of two distinct components. J Neurophysiol. 83 (2), 796-807 (2000).
- Woodruff-Pak, D. S., Lavond, D. G., Thompson, R. F. Trace conditioning: abolished by cerebellar nuclear lesions but not lateral cerebellar cortex aspirations. Brain Res. 348 (2), 249-260 (1985).
- Takehara-Nishiuchi, K. The Anatomy and Physiology of Eyeblink Classical Conditioning. Curr Top Behav Neurosci. , (2016).
- Mattson, S. N., Schoenfeld, A. M., Riley, E. P. Teratogenic effects of alcohol on brain and behavior. Alcohol Res Health. 25 (3), 185-191 (2001).
- Goodfellow, M. J., Abdulla, K. A., Lindquist, D. H. Neonatal Ethanol Exposure Impairs Trace Fear Conditioning and Alters NMDA Receptor Subunit Expression in Adult Male and Female Rats. Alcohol Clin Exp Res. 40 (2), 309-318 (2016).
- Beylin, A. V., et al. The role of the hippocampus in trace conditioning: Temporal discontinuity or task difficulty? Neurobiol Learn Mem. 76 (3), 447-461 (2001).
- Port, R. L., Romano, A. G., Steinmetz, J. E., Mikhail, A. A., Patterson, M. M. Retention and acquisition of classical trace conditioned responses by rabbits with hippocampal lesions. Behav Neurosci. 100 (5), 745-752 (1986).
- Weiss, C., Bouwmeester, H., Power, J. M., Disterhoft, J. F. Hippocampal lesions prevent trace eyeblink conditioning in the freely moving rat. Behav Brain Res. 99 (2), 123-132 (1999).
- Brown, S. M., et al. Eyeblink conditioning deficits indicate timing and cerebellar abnormalities in schizophrenia. Brain Cogn. 58 (1), 94-108 (2005).
- Sears, L. L., Steinmetz, J. E. Effects of haloperidol on sensory processing in the hippocampus during classical eyeblink conditioning. Psychopharmacology. 130 (3), 254-260 (1997).
- Kronforst-Collins, M. A., Moriearty, P. L., Schmidt, B., Disterhoft, J. F. Metrifonate improves associative learning and retention in aging rabbits. Behav Neurosci. 111 (5), 1031-1040 (1997).
- Woodruff-Pak, D. S., Finkbiner, R. G., Sasse, D. K. Eyeblink conditioning discriminates Alzheimer's patients from non-demented aged. Neuroreport. 1 (1), 45-48 (1990).
- Oristaglio, J., Romano, A. G., Harvey, J. A. Amphetamine influences conditioned response timing and laterality of anterior cingulate cortex activity during rabbit delay eyeblink conditioning. Neurobiol Learn Mem. 92 (1), 1-18 (2009).
- Scavio, M. J., Clift, P. S., Wills, J. C. Posttraining effects of amphetamine, chlorpromazine, ketamine, and scopolamine on the acquisition and extinction of the rabbit's conditioned nictitating membrane response. Behav Neurosci. 106 (6), 900-908 (1992).
- Fortier, C. B., et al. Delay discrimination and reversal eyeblink classical conditioning in abstinent chronic alcoholics. Neuropsychology. 22 (2), 196-208 (2008).
재인쇄 및 허가
