단백질 복합물의 건축은 그들의 기능을 위해 필수적입니다. 다양 한 대량 spectrometric 기법을 결합 하 여 그들의 어셈블리를 공부 하는 강력한 입증. 우리 화학 cross-linking 및 네이티브 질량 분석에 대 한 프로토콜을 제공 하 고 어떻게 이러한 상호 보완적인 기술을 다 소 단위 단백질 어셈블리의 구조를 명료 하 게 도움이 보여.
방법 논문
화학 Cross-linking 및 여러 소 단위 단백질 어셈블리의 건축을 그대로 단백질 복합물의 질량 분석
* These authors contributed equally
이 논문에서
요약
초록
단백질은 다양 한 세포 기능을 수행 하는 형태로 활성 및 동적 어셈블리에 그들의 ligands와 상호 작용. 이러한 상호 작용을 elucidating 따라서 세포질 과정의 이해에 대 한 근본 이다. 그러나, 많은 단백질 복합물 동적 어셈블리 이며 기존의 구조적 기법에 의해 액세스할 수 있습니다. 이러한 어셈블리의 구조 조사에 기여 하는 질량 분석 그리고 특히 다양 한 대량 spectrometric 기술의 조합 그들의 구조 배열에 대 한 귀중 한 통찰력을 제공 합니다.
이 문서에서는, 우리는 응용 프로그램 및 두 개의 상호 보완적인 대량 spectrometric 기술의 조합 설명, 즉 화학 cross-linking 및 결합 된 질량 분석 기본 질량 분석. 화학 cross-linking 화학 시 약을 사용 하 여 근접에서 아미노산의 공유 결합을 포함 한다. 프로 테아 제, 소화 후 복사해올된 디 펩 티 드 질량 분석에 의해 식별 하 고 단백질 상호 작용 사이트 적용 되지 않습니다. 네이티브 질량 분석은 다른 한편으로 질량 분석기의 가스 단계에서 그대로 단백질 어셈블리의 분석 이다. 그것은 단백질과 리간드 상호 작용으로 단백질 stoichiometries를 보여준다. 두 기술을 따라서 단백질-리간드 어셈블리 및 그들의 조합 이전 연구에서 강력한 입증의 구조에 대 한 보완 정보를 제공 합니다.
서론
단백질 어셈블리의 구조 조사 세포질 과정의 이해에 대 한 특히 중요 되고있다. 따라서, 많은 기술을 개발 하 고 되었습니다 구조 생물학1에 향상. 그러나, 이러한 기술은 때로는 크기, 유연성, 또는 조사를 받고 단백질 복합물의이 그들의 응용 프로그램에 제한 됩니다. 질량 분석 이러한 문제를 해결할 수 있습니다 그리고, 따라서, 구조 생물학2,3,,45에 강력한 도구로 등장. 그러나 질량 분석의 가장 큰 장점은, 복잡 하 고 이질적인 혼합물6에 단백질을 명확 하 게 식별 하는 기능입니다. 이 위해 단백질은 일반적으로 endoproteinases로 소화 하 고 결과 펩 티 드 혼합물은 액체 크로마토그래피에 의해 분리 및 질량 분 서 계에 직접 eluted. 펩 티 드 질량 결정 이후에 고 선구자 이온은 펩 티 드의 추가 조각화에 대 한 선택 됩니다. 단백질 다음 검색 펩 티 드 및 알려진된 데이터베이스에 대해 해당 조각 대 중에 의해 식별 됩니다. 이 절차는 뿐만 아니라 전조 펩 티 드 및 수정7운반 조각 이온의 질량 변화를 일으킬 그들의 포스트 번역 상 수정 단백질/펩 티 드의 id를 허용 한다. 구조 질량 분석에 많은 기술 중 일부는이 원리4,8을 기반으로 합니다. 예를 들어, 수소 중수소 교환9,10등 기법 라벨, 화학 라벨 전략11,12또는 수 산 기 과격 한 발 인쇄13,14 , 특정 조건 하에서 단백질의 표면 접근에 통찰력을 제공.
또 다른 기술은 이다 (화학) 그들의 기능 그룹을 통해 가까운 근접에서 아미노산의 공유 결합을 포함 하는 교차 연결. 이 위해, 화학 시 약, UV 활성화 시 약, 또는 아미노산 고용된15,16이다. Cross-linking, 후 단백질은 프로 테아 제와 분해 일반적으로 하 고 상호 연결 된 디 펩 티 드 액체 크로마토그래피 결합 질량 분석에 의해 분석 된다. 그러나 데이터베이스 검색, 상호 상품의 식별은, 전문된 소프트웨어는 다양 한 단백질과 이질적인 지역17,,1819의 펩 티 드 시퀀스를 연결 하 여 사용을 해야 합니다. 화학 cross-linkers 사용 하 여 장점이 그것의 거의 모든 단백질 복합물을 채택 될 수 있다 하 고 호스트 세포의 단백질을 표현 하는 때에 달성 될 수 있는 UV 가능한 아미노산의 결합을 필요로 하지 않습니다. 이와 같이, cross-linking는 다양 한 도구 및 대형 단백질 어셈블리20의 많은 구조 연구에 성공적으로 고용 되었다.
그대로 단백질 복합물 ('기본' 질량 분석), 다른 한편으로의 질량 분석 펩 티 드에 그대로 단백질이 수 분해 없이 단백질 복합물의 분석을 포함 한다. 그것은 구성,이 질, 산출할, 토폴로지 및 소 단위 단백질 단지21,22의 상호 작용을 보여준다. 함께 이온 이동성, 네이티브 질량 분석 추가 그들의 구조23,24의 결정을 허용 한다. 이것은 기존의 구조적 기법으로 평가 하기 어려운 단백질 복합물의 구조상 조사를 위한 강력한 도구. 그러나, 네이티브 질량 분석 분석 버퍼를 분무 이온화 동안 비 공유 단백질 상호 작용을 유지 하는 필요 합니다. 이것은 일반적으로 암모늄 아세테이트25같은 수성, 휘발성 버퍼를 사용 하 여 달성 된다. 또한, 악기 수정 질량 분 서 계26의 가스 단계에 전송 하는 동안 분리를 방지 하기 위해 필요 하다. 이 방법으로 적용, 많은 (큰) 단백질 복합물 분석 되었다. 인상적인 그대로 리보솜27, ATP synthases28또는 바이러스29의 연구는 있습니다.
네이티브 질량 분석 그리고 cross-linking의 조합 이전 연구에서 특히 성공적 이었다. 예를 들어, 예기치 않은 Hsp70 이합체를 포함 한 보호자 단지의 stoichiometries 얻을 수 그대로 단백질 복합물의 질량 분석 실험에서 화학 cross-linking 공개에 단백질의 준비 하는 동안은 어셈블리30,31 다른 연구에서의 복잡 한 그대로 ATP synthase에 포스트 번역 상 수정 결과 공부 했다. 네이티브 질량 분석 인 산화 또는 acetylation32,33의 유무에서 단백질 복잡 한 안정성에 대 한 통찰력을 제공합니다. 비교 상호 전략34 는 다음 다른 조건 하에서 복잡 한 단백질의 구조적 변화를 밝혔다.
여기, 우리가 질량 분석, (화학) cross-linking 및 네이티브 질량 분석, 데이터 분석 및 해석 (그림 1)를 포함 하 여 단백질 식별 프로토콜 제공 합니다. 두 잘 특징이 단백질 복합물의 도움으로이 방법에서 얻은 보완 결과의 조합은 시연된35입니다. 우리의 프로토콜 특정 순도 농도에 순화 될 수 있는 어떤 단백질 어셈블리에 적용할 수 있습니다. 접근은 데이터 분석의 cross-linking 데이터, 즉, 데이터베이스의 크기에 의해 제한 하는 어떤 경우에 고용, 필요한 검색 공간 및 시간을 결정 하. 또한, 확인된 상호 링크의 수동 유효성 검사 자주 필수 이며 출력 줄어듭니다. 네이티브 질량 분석 샘플 품질, 예를 들어, 버퍼에 의해 주로 제한 됩니다 및 adducts 수성 및 휘발성 버퍼에 의해 교환 하 정화 가능성 중에 사용 된. 그러나, 일반적으로 구조 분석을 위해 순화 하는 단백질 복합물은 우리의 프로토콜 성공적인 분석에 필요한 품질을가지고.
프로토콜
1입니다. 단백질 복합물의 정화
- 최적화 된 표준 프로토콜에 따라 복잡 한 단백질을 준비 합니다.
참고: 프로토콜은 여기 함께 시연 RvB1/B2 복잡 한 Chaetomium thermophilum 및 대장균에서 carbamoyl 인산 염 synthase (CPS). RvB1/b 2와 CPS 설명된36,37로 순화 했다. 모든 단백질 복잡 한 개별 정화 프로토콜을 필요합니다. 프로토콜을 적절 하 게 조정 합니다. 인산 염 버퍼 식 염 수 (PBS) 또는 2-[4-(2-hydroxyethyl)piperazin-1-yl]ethanesulfonic (HEPES) 같은 아민 무료 버퍼 화학 cross-linking에 사용 되어야 한다. 정화 하는 동안 버퍼를 가능 하면 교체 합니다.
주의: 메서드 또는 복잡 한 단백질의 네이티브 어셈블리를 방해 하는 시 약 적용 되지 않습니다.
2. 질량 분석 기반 단백질 식별
-
젤 전기 이동 법
참고: 다른 젤 시스템 사용할 수 있으며 모든 실험실 자체 설치를 사용 하 여. 젤 시스템에 따라 조건을 조정 합니다. 착용 장갑 및 프로토콜을 통해 실험실 코트로 keratins 가장 일반적인 오염 물질 중 대량 spectrometric 분석.- 20 µ L 단백질 샘플 7.5 µ L 4 x 샘플 버퍼와 3 µ L 10 배 감소 시키는 대리인 (최종 농도 50 m m dithiothreitol (DTT)) 적용. 10 µ M CPS 또는 2.5 µ M RvB1/b 2를 사용 합니다. 16200 × g 및 70 ° c.에서 10 분 동안 열에서 1 분 동안 스핀 다운
참고: 때 필요한 볼륨 및 난방 온도 조정 다른 젤 시스템을 사용 하 여. - 4-12% 그라데이션 젤 전기 이동 법에 대 한 준비. 실행 버퍼 20 배 물으로 희석 하 고 전기 영동 챔버를 입력 합니다. 사용 2-작은 분자량 (2-200 kDa)와 3의 단백질을 위해 버퍼 (N-morpholino) ethanesulfonic 산 (MES)-(N-morpholino) propanesulfonic 산 (MOPS) 더 큰 단백질 (14-200 kDa)에 대 한 버퍼. 내부 챔버에 항 산화 0.5 mL를 추가 합니다.
참고: 때 실행 버퍼와 제조 업체의 프로토콜에 따라 젤 준비 다른 젤 시스템을 사용 하 여. - 첫 번째 구멍에 적합 한 단백질 마커 (미리 스테인드, 흠 없는, 다른 분자 크기)를 로드 하 고 나머지 구멍에 단백질 샘플을 로드.
- 35 분 (MES) 또는 200 V 50 분 (MOPS) 별도 단백질.
참고: 전기 이동 법 회 및 다른 젤 시스템 전압을 조정 합니다. - 단백질 밴드를 얼룩, 얼룩 상자 젤으로 젤을 전송 하 고 솔루션 얼룩 물 기반 Coomassie 젤 커버. 밤새 고 가로 젤 통에 실 온에서 품 어.
- 물으로 얼룩 솔루션을 대체 하 여 젤을 destain. 이 단계를 반복이 여러 번 (약 3-5 회) 젤 배경 분명 나타날 때까지.
- 20 µ L 단백질 샘플 7.5 µ L 4 x 샘플 버퍼와 3 µ L 10 배 감소 시키는 대리인 (최종 농도 50 m m dithiothreitol (DTT)) 적용. 10 µ M CPS 또는 2.5 µ M RvB1/b 2를 사용 합니다. 16200 × g 및 70 ° c.에서 10 분 동안 열에서 1 분 동안 스핀 다운
-
젤 소화
참고: 오염을 피하기 위하여 HPLC 학년 용 소화 프로토콜을 통해 및 모든 다음 단계 (즉, 대량 spectrometric 분석)에 대 한 사용 합니다. 이전에 사용 하 고 여과 액 물과 염화 중 탄산염 모든 솔루션을 준비 합니다.- 컷 단백질 밴드 블루 Coomassie에 의해 시각화 메스를 사용 하 여 젤에서 얼룩. 조심 스럽게 잘라 단백질 밴드의 약 1 m m × 1 m m. 린스 작은 조각으로 다른 단백질 밴드 사이의 물으로 메스. 워시 물과 이기 (ACN) 젤 밴드.
- DTT와 이황화 결합, iodoacetamide와 시스테인 잔류물 및 앞에서 설명한38;으로 트립 신 다이제스트 단백질 알 일반적으로 1:1: 100까지 20의 효소: 단백질 비율이 사용 됩니다. 소화 프로토콜 중 100 m m 염화 중 탄산염을 사용 합니다.
- 2 단계에서 펩 티 드를 압축을 풉니다.
- 먼저 염화 중 탄산염 및 ACN, 젤 조각 품 어와 포함 하는 펩타이드 상쾌한을 수집 합니다. 둘째, 5% (v/v) 포 름 산와 ACN 젤 조각 품 어. 각 단계에서 15 분 동안 품 어. 두 supernatants 결합. 진공 원심 분리기에서 용 매를 증발 하 여 추출 된 펩 티 드를 건조.
참고: 말린된 펩 티 드 저장할 수 있습니다-20 ° C에서 몇 달 동안.
- 먼저 염화 중 탄산염 및 ACN, 젤 조각 품 어와 포함 하는 펩타이드 상쾌한을 수집 합니다. 둘째, 5% (v/v) 포 름 산와 ACN 젤 조각 품 어. 각 단계에서 15 분 동안 품 어. 두 supernatants 결합. 진공 원심 분리기에서 용 매를 증발 하 여 추출 된 펩 티 드를 건조.
-
액체 크로마토그래피 결합 질량 분석
- 2 %ACN/0.1% 포 름 산에 말린된 펩 티 드를 분해. 에 용 해 2-3 분 및 스핀 쥡니다 목욕에 펩 티 드 내려 30 분 이전에 16200 x g에서 원심 분리기 샘플 autosampler 튜브로.
참고: 단백질 양에 따라 볼륨을 조정 합니다. 잘 묻은 Coomassie 밴드에 대 한 우리 20 µ L을 사용합니다. - 나노-LC-MS/MS 시스템 autosampler는을 사용 하 여 샘플의 5 µ L을 주입. 반대 위상 C18 사전 열 (C18, 150 µ m 아이디, 2 cm, 5 µ m 기 공 크기) desalt 펩 티 드 온라인 집중 하에 펩 티 드 혼합물을 로드 합니다.
- 0.1% (v/v) 포 름 산을 사용 하 여 모바일 위상 A와 모바일 80 %ACN/0.1% (v/v) 포 름 산 단계 B. 별도 반전 단계 C18 분석 열 (C18, 75 아이디 µ m, 50cm, 3 µ m 기 공 크기)에 펩 티 드로 300 (0.1% 개미 산을 포함 하는) 4-80 %B 그라디언트를 사용 하 여 nL / 65 분 이상 민입니다.
참고: nanospray 이온 소스는 eluted 펩 티 드 질량 분석기로 전송 하는 데 사용 됩니다. - (일반) MS 조건 사용: 스프레이 1.6의 전압 kV; 모 세관의 온도 250 ° C; 30의 정규화 된 충돌 에너지입니다. 데이터 종속 모드에서 질량 분석기를 작동 합니다.
- (예를 들어, orbitrap) 질량 분석기에서 MS 스펙트럼을 취득 (m/z 350−1, 600) 70, 000와 3 x 10⁶의 자동 이득 제어 대상의 해상도 함께. 1 x 10⁵의 자동 이득 제어 대상에서 HCD 조각화에 대 한 가장 강렬한 이온의 20을 선택 합니다. 동적으로 제외 이전 선택 이온 단독으로 인식할 수 없는 충전 상태와 이온으로 이온 충전 30 s. 제외.
참고: 질량 스펙트럼의 내부 캘리브레이션 잠금 대량 옵션39를 사용 하 여 수행 되었다.
- 2 %ACN/0.1% 포 름 산에 말린된 펩 티 드를 분해. 에 용 해 2-3 분 및 스핀 쥡니다 목욕에 펩 티 드 내려 30 분 이전에 16200 x g에서 원심 분리기 샘플 autosampler 튜브로.
-
데이터베이스 검색
참고: 다른 소프트웨어가입니다 데이터베이스 검색에 사용할 수 있는. 예를 들어, MaxQuant40은 자유롭게 사용할 수 있습니다.- PXtract 변환 도구 (http://pfind.ict.ac.cn/downloads.html)를 사용 하 여.mgf 파일을.raw 파일을 변환 합니다.
- 일반적인 검색 매개 변수를 사용 하 여 데이터베이스 검색 수행: 데이터베이스, swissprot; 펩 티 드 대량 관용, 10 ppm; 조각 대량 공차, 0.5 다; 효소, 트립 신; 놓친된 분열 사이트, 2; 변수 수정, carbamidomethylation (시스테인)과 산화 (메티오닌)
참고: 실험 설정에 따라 검색 매개 변수를 변경 합니다. - 데이터베이스 검색 결과 검사 합니다. 단백질 점수, 펩 티 드 식별 번호, 펩 티 드 점수, 및 대량 정확도 평가 시퀀스 범위 식별 단백질 범위를 반환 합니다.
참고: 모든 검색 엔진은 개별 점수 알고리즘을 있다. 탠덤 질량 스펙트럼 관찰의 품질 시스템을 채 점 하는 펩 티 드를 평가 합니다. 좋은 스펙트럼의 주요 신호 (완전 한) 이온 시리즈 확인 된 펩 티 드를 확인 표시 합니다. 일반적으로 펩 티 드 점수는 확률 기반, 즉, 펩 티 드 점수 확인 된 펩 티 드 순서 얻은 스펙트럼을 일치 하는 가능성에 대 한 측정 이다. 단백질 점수 펩 티 드 점수에서 일반적으로 파생 된 고 단백질 확인 된 단백질의 목록에 순위를 결정 하는 데 사용 됩니다.
3. 그대로 단백질 복합물 (네이티브 질량 분석)의 질량 분석
- 분무 이온화를 위한 골드 코팅 미터의 준비
- Micropipette 끌어당기는 사람을 사용 하 여 유리 모 세관 앞에서 설명한25,41에서 nanoflow 미터를 준비. 0.78 m m 내부 직경을 가진 붕 규 산 모 세관을 사용 합니다.
참고: 바늘을 당기에 대 한 매개 변수를 변경 하 여 팁 모양과 크기 수정 고는 샘플에 대 한 조정. 모 세관 다른 내부 직경 및 벽 두께 함께 사용할 수 있습니다. - 전도성 소재 (예, 금 또는 팔라듐); 유리 모 세관 코트 스퍼터 coater 골드 플라즈마 생성의 사용은 일반적 이다. 좋은 품질 코팅을 제조업체의 지침을 따릅니다.
참고: 코팅 일반적인 모 세관 전압 (아래 참조)를 적용할 때 안정적인 스프레이를 충분히 충분 해야 한다.
- Micropipette 끌어당기는 사람을 사용 하 여 유리 모 세관 앞에서 설명한25,41에서 nanoflow 미터를 준비. 0.78 m m 내부 직경을 가진 붕 규 산 모 세관을 사용 합니다.
- 기본 질량 분석을 위한 시료 준비
참고: 소금, 세제, 또는 글리세롤의 다량은 분무 이온화와 호환이 없습니다. 따라서, 정수 버퍼는 휘발성, 수성 버퍼에 의해 교환 된다. 200 m m 염화 아세테이트는 일반적으로 사용 된다. 크기 배제 스핀 열 이나 한 장치를 사용 하 여 버퍼 교환. 경우에 따라 복잡 한 안정성 또는 활동 수도 영향을 받을 버퍼 교환. 질량 스펙트럼을 신중 하 게 평가 하 고 복잡 한의 활동을 확인 합니다. 필요한 경우 공동 인자 또는 첨가물 분석 버퍼에 추가 합니다.- 크기 배제 스핀 열을 사용 하 여 빠른 버퍼 교환. 1000 x g에서 원심 분리 하 여 저장 버퍼를 제거 하 고 1 분에 4 ° C 삭제를 통해 흐름. 500 µ L 200 m m 염화 아세테이트, 원심 분리 하 여 다음을 추가 하 여 세 번 씻어. 열과 4 분 1000 x g와 4 ° C 원심 분리기에 단백질 견본의 20 µ L을 로드 합니다.
참고: 복잡 한 단백질의 농도 1-10 µ M 이어야 한다. 절차 수 비 휘발성 구성 요소 분석을 아직도 방해 경우 반복. - 단백질 견본을 집중 하 고 같은 버퍼를 교환 하려면 실험 원심 필터를 사용 합니다. 기 공 크기 50%의 여과 막 단백질 분석의 크기 보다 더 작은 사용 합니다.
- 단백질 견본 여과 장치에 전송 하 고 200 m m 염화 아세테이트를 추가 합니다. 15000 x g에 아래로 회전 하 고 삭제를 통해 흐름. 200mm 암모늄 아세테이트를 추가 하 고는 원심 분리를 반복 합니다. 이 단계를 여러 번 반복 합니다. 원심 분리 속도 대 한 제조업체의 지침을 따릅니다. 4 ° c.에 원심 분리를 수행
주의: 막 단백질 막 필터 장치에 침전 해 경향이 있다.
- 단백질 견본 여과 장치에 전송 하 고 200 m m 염화 아세테이트를 추가 합니다. 15000 x g에 아래로 회전 하 고 삭제를 통해 흐름. 200mm 암모늄 아세테이트를 추가 하 고는 원심 분리를 반복 합니다. 이 단계를 여러 번 반복 합니다. 원심 분리 속도 대 한 제조업체의 지침을 따릅니다. 4 ° c.에 원심 분리를 수행
- 크기 배제 스핀 열을 사용 하 여 빠른 버퍼 교환. 1000 x g에서 원심 분리 하 여 저장 버퍼를 제거 하 고 1 분에 4 ° C 삭제를 통해 흐름. 500 µ L 200 m m 염화 아세테이트, 원심 분리 하 여 다음을 추가 하 여 세 번 씻어. 열과 4 분 1000 x g와 4 ° C 원심 분리기에 단백질 견본의 20 µ L을 로드 합니다.
- 그대로 단백질 복합물의 대량 spectrometric 분석
참고: 기본 질량 분석, 예를 들면, 4 중 극 시간의 비행 (Q-ToF) 질량 분석기 또는 orbitrap 질량 분석기에 대 한 수정할 수 있는 다른 제조자에서 질량 분석기의 종류 있다. 아래에 설명 된 프로토콜 Q ToF 악기에서 수행 되었다.- 모 세관 홀더에서 골드 코팅 모 세관을 놓고 1-4 µ L 단백질 샘플의 모 세관 채우기. 트위터와 바늘의 팁을 엽니다.
- 나노-분무 소스와 모 세관 홀더를 연결 하 고 모 세관의 위치를 조정. 모 세관의 팁의 위치를 0.5-1.5 cm 콘 구멍을. 80-150 L/h nanoflow 가스를 사용 하 여 스프레이 시작 하 고 안정적인 스프레이 유지 하기 위해 가스 흐름을 조정.
- Q ToF 악기의 조정 페이지에 매개 변수를 조정 합니다. 전형적인 시작 조건: 모 세관 전압, 1.50 k v; 콘 전압, 80 V; RF 렌즈 1 에너지, 80 V; 충돌 에너지, 20 V; 조리개 3, 13.6 대 좋은 질량 스펙트럼을 얻기 위해 이러한 매개 변수를 수정 합니다. "취득" 버튼을 클릭 하 여 인수를 시작 하 고 좋은 질량 스펙트럼을 얻기 위해 가능한 많은 검사를 결합.
참고: 적어도 100 검사를 결합 하 여 것이 좋습니다.
- 그대로 단백질 복합물의 탠덤 질량 분석
- (프로토콜 섹션 3.3) 위에서 설명한 대로 질량 스펙트럼을 취득 합니다. 복잡 한 단백질의 선구자 이온을 선택 합니다.
- MS에서 인수 파일에 MS/MS 모드로 변경 합니다. 전조에 MS/MS 선택 설정 질량.
- 낮은 충돌 에너지에 수집을 시작 합니다. 올바른 전조의 선택을 확인을 여러 가지 검사 (약 20 스캔) 결합 질량. 복잡 한 단백질 분리 될 때까지 충돌 에너지를 증가. 얻으려면 좋은 질량 스펙트럼 적어도 500 검사를 결합 한다.
참고: 제거 단지 때때로 낮은 강도 있다. 가능한 많은 검사를 결합 하는 것은 해상도 신호 대 잡음 비율을 증가할 수 있습니다.
- 그대로 단백질 복합물의 솔루션에서 분리
참고: 단백질 복합물 내의 단백질 상호 작용에 추가 통찰력을 얻기 위해 솔루션에서 분리 수행할 수 있습니다.- (섹션 3.2) 위에서 설명한 대로 단백질 샘플 준비. 단백질 견본에 용 매를 추가 하거나 하위 복합물으로 그대로 단지 해리를 pH를 변경 합니다. 전형적인 용 매는 메탄올, 소 프로 파 놀, ACN; 아세트산 또는 암모니아 솔루션의 추가 의해 암모늄 아세테이트의 pH를 변경 합니다. (섹션 3.3 및 3.4) 위에서 설명한 대로 질량 스펙트럼을 취득 합니다.
- 용 매 또는 다양 한 하위 단지 생성 하 pH 범위 다. 일반적으로, 용 매의 양은 5-50% (최종 농도) 이며 전형적인 pH 범위는 4-9. PH에 약간의 변화 또는 용 매 (5%)의 낮은 농도 및 질량 스펙트럼 (섹션 3.3 참조)을 취득.
- 솔벤트 양을 증가 하거나 하위 단지 솔루션에서 생성 됩니다 때까지 stepwise pH를 변경 합니다. 하위 단지 분석에 질량 스펙트럼을 취득.
- 데이터 보정
참고: 인수 질량 스펙트럼 세 슘 요오드 화물 (CsI) 솔루션을 사용 하 여 외부 보정 됩니다.- 100 mg CsI 1 mL 물에 용 해.
- CsI의 질량 스펙트럼을 취득. 위의 분석 복잡 한 단백질으로 동일한 m/z 범위 CsI 클러스터를 충돌 에너지를 다.
주의: CsI 빨리 미터 끝에 침전 하 고 원추를 오염. 만큼만 취득 충분 한 스펙트럼을 얻을 하는 데 필요한 검색. 완료 되 면 소스에서이 미터를 제거 합니다. - 인수 질량 스펙트럼을 사용 하 여 보정 파일 및 CsI 참조 파일을 확인 합니다.
- 교정 인수 질량 스펙트럼에 적용 됩니다.
주의: 보정 질량 스펙트럼의 원시 데이터의 영구 변경 수 있습니다. 비 보정 스펙트럼, 필요한 경우 파일의 백업 복사본을 만듭니다.
- 데이터 처리 및 분석
참고: 기본 질량 스펙트럼;의 데이터 분석을 위한 많은 자유롭게 사용할 수 있는 소프트웨어 도구가 있다 예를 들어, Massign42 또는43UniDec. 프로토콜 아래의 악기 소프트웨어의 도움으로 복잡 한 샘플에 대 한 Massign 사용 하 여 수동 데이터 분석을 설명합니다. 이 소프트웨어는 복잡 한 질량 스펙트럼의 분석에 적합. 온라인 프로그램 (http://massign.chem.ox.ac.uk/)의 사용을 위해 제공 하는 지침을 따릅니다.- 데이터 분석을 위해 부드럽게 매개 변수를 조정 하 여 스펙트럼을 부드럽게. 매개 변수를 조정 하 여 중심 스펙트럼입니다. 계산 하는 복잡 한 단백질의 2 개의 인접 한 봉우리에서 복잡 한 대 중 ' 피크 봉투 악기 소프트웨어 도구를 사용 하 여.
주의: 너무 집중 스무 딩 데이터 손실 (예를 들어, 바인딩된 ligands의 손실) 발생할 수 있습니다. - Massign42와 분석에 대 한 질량 스펙트럼에 대 한 피크 목록을 생성 합니다. 데이터 포인트와 부드러운 스펙트럼의 선형화 다양 한 소프트웨어 도구를 사용 하 여 할당 하는 단백질 복합물, 복잡 한 구성, 계산 또는 복잡 한 피크 봉투 시뮬레이션.
- 데이터 분석을 위해 부드럽게 매개 변수를 조정 하 여 스펙트럼을 부드럽게. 매개 변수를 조정 하 여 중심 스펙트럼입니다. 계산 하는 복잡 한 단백질의 2 개의 인접 한 봉우리에서 복잡 한 대 중 ' 피크 봉투 악기 소프트웨어 도구를 사용 하 여.
4입니다. 질량 분석으로 결합 cross-linking 화학
참고: 수많은 상호 전략 유효한 있다. 여기, 우리는 Bis (sulfosuccinimidyl) suberate (BS3), 일반적으로 단백질 단백질 상호 작용을 공부 하는 데 사용 되는 아민 반응 cross-linker의 사용을 설명 합니다.
- 1.43 mg BS3 25 m m 재고 솔루션을 준비 하는 100 µ L 물에 용 해.
참고: disuccinimidyl suberate (DSS) 같은 다른 시 약 수용 하는 일반적으로 디 메 틸 sulfoxide (DMSO)에 용 해. 일부 cross-linkers 무거운 isotopically 표시 된 형태로 사용할 수 있습니다. 무거운 안정 동위의 MS 스펙트럼에 상호 연결 된 디 펩 티 드의 피크 쌍 생성 데이터 평가 중 도움이 차동을 사용 하 여 cross-linkers 라는, 두 이체의 재고 솔루션 준비 되며 1:1 혼합.
주의: DMSO에 의해 단백질 복합물의 분리를 방지 하는 매우 집중된 재고 솔루션은 준비 하며 가교 반응 이전 버퍼 또는 물으로 희석. - 복잡 한 단백질을 BS3를 추가 합니다. 다양 한 양의 BS3 0.5-5에서까지 사용 하 여 최적의 cross-linker 농도 식별 하는 mM. thermomixer에서 1 h 25 ° C에서 반응 혼합물을 품 어. 4-12% 그라데이션 젤을 사용 하 여 고 SDS-페이지 (예를 들어 그림 2 참조) 상호 결과 평가를 수행 합니다.
참고: 단일 subunits 보입니다 (그림 2)는 높은 분자 무게 단백질 밴드, 크로스 연결 된 컨트롤에 표시 되지 않습니다, SDS 페이지 동안 얻을 수 있습니다 때 BS3의 최적 농도 도달입니다. - 최적의 BS3 농도와 가교 반응을 반복 합니다. thermomixer에서 1 h 25 ° C에서 반응 혼합물을 품 어.
참고: 일부 단백질 복합물은 실내 온도에 안정. 가교 반응 얼음;에 수행할 수 있습니다. 그러나, 반응 시간 조정 될 필요가 있다. -
가교 반응 아민 버퍼 (예를 들어, 50-100 mM Tris 버퍼, pH 7.5, 최종 농도)를 추가 하 여 담금질 하거나 어떤 잔여 가교 시 약을 제거 하 에탄올 강수량 수행 합니다.
- 200 µ L. 추가 600 µ L 얼음 에탄올과 20 µ L 3 M 아세트산 나트륨, pH 5.3의 최종 볼륨을 도달 하는 반응 혼합물에 물 또는 버퍼를 추가 합니다. 철저 하 게 혼합 하 고 2 시간 또는 하룻밤 동안-20 ° C에서 품 어.
참고: 또는, 단백질 수 수 시 켰 던 30 분 동안 또는 액체 질소에 80 ° C에서. - 16200 x g에 아래로 회전 하 고 30 분에 4 ° C를 조심 스럽게 제거는 상쾌한.
- 1 mL 차가운 80% (v/v) 에탄올과 펠 릿을 세척. 16200 x g에 아래로 회전 하 고 30 분에 4 ° C를 조심 스럽게 제거는 상쾌한. 진공 원심 분리기에 펠 릿을 건조.
- 200 µ L. 추가 600 µ L 얼음 에탄올과 20 µ L 3 M 아세트산 나트륨, pH 5.3의 최종 볼륨을 도달 하는 반응 혼합물에 물 또는 버퍼를 추가 합니다. 철저 하 게 혼합 하 고 2 시간 또는 하룻밤 동안-20 ° C에서 품 어.
- 교차 결합 된 단백질 SDS-PAGE를 수행 합니다. 젤 밴드 고 (섹션 2.1 및 2.2) 위에서 설명한 대로 젤에 단백질을 소화.
그러나 참고: 솔루션에서 소화를 수행할 수 있습니다,, 그것은 일반적으로 필요 합니다 추가 분리 단계 (예를 들어, 크기 배제 크로마토그래피 소화 펩 티 드의). -
(섹션 2.3) 위에서 설명한 대로 액체 크로마토그래피 결합 질량 분석을 수행 합니다. 교차 결합 된 펩 티 드 일반적으로 풍부한 낮은, 복사해올된 샘플의 분석 깊이 증가 질량 spectrometric 분석에 다음 변화를 적용.
- 액체 크로마토그래피 분리 하는 동안 더 이상 그라디언트를 사용 하 여 (예를 들어, 65 분 대신 90 분 위 참조).
- HCD 조각화에서 이중 청구 펩 티 드를 제외 합니다.
참고: 이중 청구 펩 티 드는 보통 intra-교차 연결 된 펩 티 드 ("루프 펩 티 드" 또는 "유형 1" 크로스 링크). - 사용 하 여 차동 가교 시 약, 분류 분석, 즉중 "최대 따기" 옵션을 사용 하 여, HCD 조각화 정의 대량 다름 질량 스펙트럼의 피크 쌍의 존재에 의해 트리거됩니다.
참고: "최대 따기" 옵션 모든 질량 분석기에서 사용할 수 않을 수 있습니다.
- 사용 pLink 소프트웨어18 복사해올된 디 펩 티 드의 식별을 위해. 최소화 된 데이터베이스를 사용 하 여 식별에 대 한. 일반적인 검색 매개 변수는: 악기 스펙트럼, HCD; 효소, 트립 신; 최대. 놓친된 분열 사이트, 3; 변수 수정, 산화 (메티오닌) 및 carbamidomethylation (시스테인); cross-linker, BS3; 펩 티 드 분 길이, 4; 최대. 펩 티 드 길이, 100; 분 펩 티 드 질량, 400 다; 최대. 펩 티 드 질량, 10000 다; 루즈벨트, 1%
참고: 사용 하 여 차동 cross-linkers 표시 된, 경우 링커로 인 한 대량 증가 구성할 필요 합니다. 또한 상호 식별, 예를 들어, xQuest17,19MassMatrix 또는 XlinkX15을 위한 다른 일반적으로 사용 되는 소프트웨어가입니다. - 조각화 스펙트럼의 품질에 의해 데이터베이스 검색 결과 평가 합니다. 상호 링크의 허용 스펙트럼 적당 한 신호 대 잡음 비율에 두 펩 티 드 (4 인접 한 이온)의 이온 시리즈를 표시 해야 합니다.
참고: 지금까지 사용 하 여 차동 가교 시 약 분류 때에 MS 스펙트럼에 피크 쌍 추가 품질 관리로 사용할 수 있습니다. - 필요한 경우, 단백질 상호 작용 네트워크 소프트웨어 (예를 들어, XVis, XiNET) 도구를 사용 하 여 상호 결과 시각화. 사용 또는 순환 플롯 바 단백질 상호 작용의 시각화에 대 한 플롯합니다.
참고: 두 소프트웨어 도구는 웹 서버에서 자유롭게 사용할 수 있습니다. 각각의 웹사이트 (https://xvis.genzentrum.lmu.de/ 및 http://crosslinkviewer.org/)에 대 한 자세한 지침을 따릅니다.
결과
단백질 및 그들은 단지의 구조 분석은 그들의 기능을 이해 하기 위한 기본적 이다. 질량 분석에 그것의 크기에 관계 없이 거의 모든 단지에 적용 될 수 또는 샘플 구조 조사에 상당히 기여 합니다. 우리 두 잘 특징이 단백질 복합물;를 사용 하 여 프로토콜을 예증 첫째, C. thermophilum 및 두 번째, 대장균에서 복잡 한 이종 octameric CPS hetero-dodecamer RvB1/B2.
첫째, 우리는 두 단지의 단백질 구성 요소 식별. 이 단백질은 SDS 페이지 (그림 2) 구분 및 젤 밴드는 젤에서 삭감. 젤 소화 단백질의, 후에 펩 티 드 혼합물은 액체 크로마토그래피 결합 질량 분석에 의해 분석 하 고 펩 티 드 및 조각 대 중 데이터베이스 검색 대상이 됐다. 이 워크플로 따라 우리는 자신감과 높은, 즉, 두 단지의 모든 단백질 소 단위 식별 합리적인 펩 티 드와 펩 티 드의 높은 수 저조한 모든 단백질 소 단위 (표 1에 대 한 높은 시퀀스 범위 관찰 되었다 ).
우리는 다음 기본 질량 분석 (그림 3A)으로 그대로 RvB1/b 2 복잡 한 분석. 질량 스펙트럼 밝혀 두 종, 약 8000 m/z 에 한 약 11000-12000 m/z에서 또 다른 종. 이 종족에 대 한 계산된 대 중 hexameric (RvB1)3(RvB2)3 링 (약 310 kDa)와 dodecameric 더블 반지 (RvB1)6(RvB2)6 (약 620 kDa)에 해당합니다. 두 피크 시리즈 보기 두 인구; 이 단지에서 그의 태그 및 태그 RvB2 subunits의 혼합물에서 유래. RvB1/B2 복잡 한에 대 한 결정 구조36 얻은 이전 하 고 더블 반지 (그림 3B)의 배치를 보여줍니다. 네이티브 질량 스펙트럼 따라서 그대로 dodecamer의 산출할 확인 하 고 또한 안정적인 하위 복잡 한을 계시 한다. 또한, 공동 기존의 인구 식별 됩니다.
RvB1/b 2의 복잡 한 단백질 상호 작용 사이트를 식별 하려면 우리는 화학적 BS3 cross-linker와 순화 된 복잡 한 십자가. 우리는 먼저 가교 반응 최적 농도 결정 하는 동안 BS3 양의 적정. BS3은 아민 전용 및 covalently 링크 리 사이드 체인으로 단백질의 N termini. 가교 반응 SDS 페이지 (그림 2A)으로 뒤를 이었다. 교차 연결 된 복잡 한 RvB1 및 RvB2 소 단위를 보였다. 높은 분자량에서 단백질 밴드의 결과로 단백질의 공유 결합을 발생 BS3 반응 혼합물에 추가 합니다. SDS 젤 크로스 연결 비 단백질 소 단위는 감소 하는 동안 증가 양의 BS3 복사해올 종의 더 높은 금액을 얻을 보여줍니다. 우리는 다음 젤에서 단백질 밴드를 잘라 고 단백질 상호 작용 사이트를 식별 하려면 위에 제공 된 프로토콜을 따 랐 다. 교차 연결 된 디 펩타이드의 예제 스펙트럼 (그림 3C) 표시 됩니다. 스펙트럼 표시 두 펩 티 드를 확인 하는이 단백질 상호 작용의 y 이온 시리즈 합니다. 전체에서 우리가 얻은 subunits RvB1 및 RvB2 및 RvB2의 두 복사본 간의 두 크로스 링크 사이 4 개의 크로스 링크를 포함 하 여 14 단백질 상호 작용, (표 2). Cross-linking BS3에서 결과 다른 소 단위 사이 상호 작용 분자 내 상호 작용을 보여주는 상호 작용 네트워크 (그림 3D)에서 시각화 됩니다. 내부 분자 상호 링크 RvB1 및 RvB2 소 단위 N와 C 맨끝 도메인 가까이 있는 방식으로 이동 것이 좋습니다. 참고, 그 내부 분자 상호 작용 수 없습니다 구분할 수 같은 소 단위의 간 분자 상호 작용에서이 경우에. 2 개의 소 단위 사이 분자 간의 상호 링크 또한 관찰 되었다. 이들의 RvB1와 RvB2 사이 두 분자 간의 상호 링크 상호 접근의 유효성을 검사 하는 구조에서 구상 될 수 있습니다. 다른 간 분자 상호 링크는 결정 구조에 포함 되지 않은 유연한 루프에 있습니다. 우리는 또한 포함 하는 동일한 펩 티 드 순서 RvB2에 두 상호 링크 확인. 이 크로스 링크 명확 하 게 분류할 수 있습니다으로 간 분자 같은 단백질 (그림 3D)의 두 복사본에서 발생 해야 합니다. 우리의 상호 실험 또한 기존 결정 구조 (그림 3B)에 의해 확인 될 수 있는 그들의 구조 배열에 대 한 통찰력을 제공 하는 단백질 소 단위 내에서 뿐만 아니라 단지 내에 단백질 상호 작용 사이트 공개.
우리가 공부 하는 두 번째 단백질 복잡 한 CPS를 했다. 네이티브 질량 스펙트럼 (그림 4A) 6000 그리고 12000 m/z사이 3 개의 단백질 복합물을 계시 했다. 640 kDa의 가장 큰 복잡 한 그대로 hetero octamer에 해당합니다. 작은 단지 대표 두 하위 복합물; 크고 작은 CPS subunits (160 kDa) 및 각 소 단위 (320 kDa)의 두 복사본을 포함 하는 이종 tetramer 이합체. 이 하위 단지 단백질 어셈블리;에 대 한 첫 번째 통찰력 제공 즉, 크고 작은 소 단위에 직접 접촉 (로 hetero-이합체에 의해 밝혀) 있고는 tetramer 두 이합체의 제품일 수도 있습니다. 복잡 한 그대로 CPS에 구조 배열에 대 한 더 많은 정보를 얻으려면, 우리는 이종 octamer와 이종 tetramer 탠덤 질량 분석 (MS/MS) 수행. 두 경우, 작은 소 단위 어셈블리 (그림 4B)의 주변에 위치 하 고 전조 제안에서 해리 작은 소 단위. 실제로, 작은 소 단위는 사용 가능한 크리스탈 구조 (그림 4C)44에서 주변.
화학 cross-linking BS3 cross-linker를 사용 하 여 또한 수행 되었다. 금액 증가 사용 하 여 CPS subunits의 공유 결합 향상 되었습니다. 소화 단백질의 펩 티 드 위에서 설명한 대로의 분석 후에, 큰 소 단위와 작은 소 단위에 1 개의 상호 많은 단백질 상호 작용 (표 2)을 획득 했다. 또한, RvB1/B2 복잡 한 마찬가지로 우리가 큰 CPS 소 단위의 2 개의 사본 사이 2 분자 간의 상호 링크 발견. 이 크로스 링크 그들의 C-터미널 측면에서 서로 마주보 고 두 큰 소 단위를 놓습니다. 이전 연구에서 우리는 가장 가능성이 큰 소 단위에 의해 확인의 2 개의 사본의 인터페이스에서 발생 한 큰 소 단위에서 3 개의 추가 상호 작용을 식별 구조 질량 분석 및 전산 모델링35, 결합 크리스탈 구조와 얻은 모델 (그림 4C 와 표 2). 이러한 상호 작용 CPS 코어의 배열은 4 개의 큰 소 단위 구성 된 복잡 한 수 있습니다. 그러나, 작고 큰 소 단위 사이 아무 간 소 단위 상호 링크 관찰 되었다. 사용 가능한 결정 구조 (그림 4C)를 검사 하 여 큰 소 단위와 주변 작은 소 단위 구성 된 복잡 한의 tetrameric 코어 사이 상호 작용 표면은 매우 작은 어떤 설명할 수 있습니다 명백한 된다 간 소 단위 상호 작용의 부재입니다. 이 작은 소 단위 쉽게 가장 작은 바인딩 인터페이스 때문일 그대로 단지에서 dissociates 보여준 기본 질량 분석에 의해 확인 된다. 그럼에도 불구 하 고, CPS 복잡 한 결합 화학 cross-linking를 기본 질량 분석 상호 작용 단백질 그들의 구조 배열 (그림 4D) 추론 수 있습니다.
함께 찍은, 네이티브 질량 분석 및 화학 cross-linking 복사해올된 펩 티 드 대량 spectrometric 식별과 결합의 조합의 두 예 단지의 구조 배열 재구성을 수 있습니다. 화학 cross-linking 공개 단백질 소 단위, 예를 들어 상호 작용 RvB1와 RvB2 사이 또는 CPS의 tetrameric 코어 내에서 배열 하는 동안 네이티브 질량 분석 전달 단백질 stoichiometries 그대로 단지의 고 유행 subcomplexes입니다. CPS는 두 개의 소 단위 사이 아무 상호 분자 상호 작용은 화학 cross-linking에 의해 관찰 될 수 있었다 경우 네이티브 질량 분석 각 큰 소 단위 하나의 작은 소 단위 (그림 4D)와 상호 작용 하 나왔다. 탠덤 질량 분석 복잡 한에 두 소 단위 사이 작은 인터페이스 작은 소 단위의 주변 위치를 제안 했다.
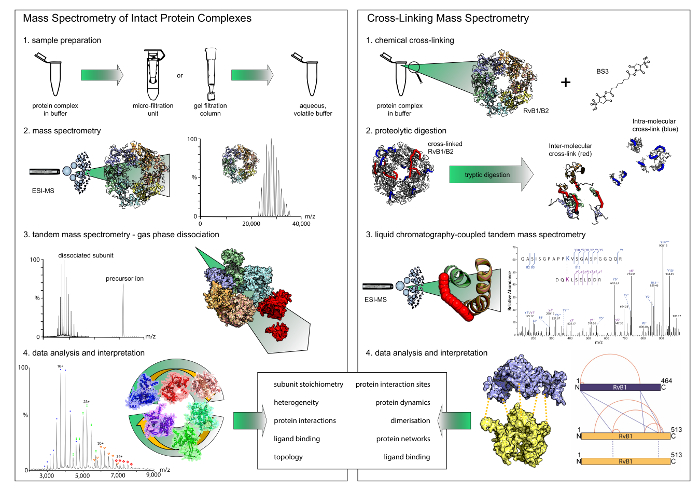
그림 1: 기본 질량 분석 및 교차 연결의 워크플로. 두 기술을 보완 결과 제공합니다. 네이티브 질량 분석 보여준다 stoichiometries 및 상호 작용 모듈, 동안 복합물 내의 단백질 상호 작용 사이트에 대 한 통찰력 제공 교차 연결 합니다. Note는 바이너리 상호 작용을 보여 화학 cross-linking만. (A) 네이티브 질량 분석의 첫 번째 단계는 필터 또는 젤 여과 열을 사용 하 여 휘발성과 수성 버퍼를 버퍼 교환. 그대로 단백질 복합물의 질량 분석에는 다음 그들의 산출할을 보여준다. 탠덤 질량 분석 실험에서 주변 소 단위는 해리 했다. (B) 화학 cross-linking에 대 한 복잡 한 단백질 incubated 가교 시 약으로. 교차 결합 된 단백질은 액체 착 색 인쇄기 결합 질량 분석에 의해 연속적으로 분석 하는 펩 티 드로 다음 소화 된다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.

그림 2: SDS-페이지의 RvB1/b 2 (A) 및 CPS (B) 단지 십자가. (A) 2.5 µ M RvB1/B2 젤 레인 당 로드 했다. BS3의 농도 변화 했다. 비 크로스 연결 RvB1/b 2는 약 50 kDa에 두 개의 단백질 소 단위를 보여줍니다. BS3의 추가 단백질 소 단위 단백질 밴드 더 높은 분자량에서 결과의 공유 결합을 발생 합니다. 교차 연결 된 종 양의 높은 BS3 농도 함께 증가 된다. 최적의 상호 조건은 강조 표시 (빨간색)입니다. (B) 10 µ M CPS 젤 레인 당 로드 되었습니다. 대형 (90 kDa)과 소형 (40 kDa) CPS subunits 얻을 수 있습니다. BS3의 추가 단백질 소 단위 단백질 밴드 더 높은 분자량에서 결과의 공유 결합을 발생 합니다. 최적의 상호 조건은 강조 표시 (빨간색)입니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.

그림 3: 기본 질량 분석 및 복잡 한 RvB1/b 2의 cross-linking 화학. (A) 네이티브 질량 스펙트럼 밝혀 두 종의 RvB1/B2; 약 11000 ~ 12, 000 m/z 와 hexameric에 그대로 dodecamer (즉, (RvB1)6(RvB2)6) 반지 (RvB1)3(RvB2)3 약 8000 m/z. 두 종의 그의 태그 및 태그 RvB2에서 유래 하는 두 개의 인구를 보여줍니다. 스펙트럼은35에서 수정 되었습니다. RvB1/b 2의 (B) 결정 구조 (PDB ID 4WVY) 표시 됩니다. RvB1 그리고 RvB2 소 단위 2 hexameric 반지를 형성 한다. (C)는 상호 연결 된 디 펩 티 드의 조각화 스펙트럼. RvB1의 N terminus는 상호 연결 된 RvB1. K23과 y 이온 시리즈 (빨강과 녹청) 두 펩 티 드에 대 한 가져온. (D) 내부 및 남북 protein 상호 작용 RvB1/b 2 단지에서 얻은. Intra 교차 링크 inter-cross-links 파란색에서 표시는 빨간색으로 표시 됩니다. 삽입 결정 구조 (녹색, 삽입)에 구상 될 수 있는 RvB1 및 RvB2 소 단위 사이 두 분자 간의 상호 링크를 보여 줍니다. 두 개의 RvB2 복사본에서 발생 하는 상호 작용은 파란색 점선으로 표시 됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.

그림 4: 기본 질량 분석 및 CPS의 cross-linking 화학. (A) CPS 쇼의 네이티브 질량 스펙트럼 3 단지. Hetero-이합체 (160 kDa), 이종 tetramer (320 kDa)와 이종 octamer (640 kDa). 스펙트럼은35에서 수정 되었습니다. (B) 협동 tetrameric 및 octameric CPS 복잡 한 계시 분리의 작은 CPS 소 단위의 질량 분석. CPS의 (C) 결정 구조 (PDB ID 1BXR) 표시 됩니다. 큰 소 단위 tetrameric 코어를 형성 하 고 작은 소 단위 복합물의 주변에 있습니다. 큰 소 단위의 두 복사본 간의 간 분자 상호 링크 (녹색)이 표시 됩니다. 크고 작은 CPS subunits의의 (D) 상호 네이티브 질량 분석 subcomplexes 그리고 작은 소 단위의 주변 위치를 건의 한다. 화학 상호 링크는 CPS의 tetrameric 코어에서 준비를 나타냅니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭 하십시오.
표 1: 데이터베이스 검색 결과. 단백질은 액체 착 색 인쇄기 결합 질량 분석 및 데이터베이스 검색에 의해 발견 됐다. 단백질 이름, 가입 수, 설명 뿐만 아니라 단백질 질량 주어진 다. 단백질 점수, 단백질, 당 관찰 된 스펙트럼의 수와 관찰 된 펩 티 드 순서의 수 나열 됩니다. 최고의 마스코트 펩 티 드와 5 개의 펩 티 드 각 단백질 소 단위에 대 한 나열 됩니다. 이 파일을 다운로드 하려면 여기를 클릭 하십시오.
표 2: 상호 링크 RvB1/b 2와 CPS에서 관찰. 단지와 상호 연결 된 잔류물의 소 단위를 받는다. 상호 연결의 유형 (내부-또는 간 분자) 겹치는 펩 티 드 순서 또는35이전 연구 밝혀졌다. 이 파일을 다운로드 하려면 여기를 클릭 하십시오.
토론
프로토콜은 다 소 단위 단백질 복합물의 질량 분석 기반 구조 분석을 위해 제공 됩니다. 프로토콜에 설명 된 두 가지 기술을 대부분 보완 결과 제공 하 고 단백질에서 구조적 배열에 대 한 통찰력을 얻을 수 있다 (-ligand) 단지 기존의 구조 기술을 하 여 공부 하기 어려운. 네이티브 질량 분석 subcomplexes 및 안정적인 상호 작용 모듈을 분석 하 여 상호 작용 단백질으로 서 단백질 stoichiometries에 대 한 통찰력을 제공 합니다. 교차 연결, 다른 한편으로, 직접 접촉 사이트에 대 한 정보를 얻을 수 있습니다. 사용 cross-linker 따라 특정 유연성 수 또는 분석에 포함 되어야 합니다.
제공 된 프로토콜 수행 하기 쉽고 하지 시간이 일반에 있습니다. 전체 프로토콜 일주일 내에서 실행 될 수 있습니다 하 고 있지만, 복잡 한 단백질의 일정 금액은 성공적인 분석에 필요한 거의 모든 단백질 복합물에 적용할 수 있습니다. 샘플 준비 간단 하 고 구체적으로 순화 된 단백질 복합물을 필요 하지 않습니다. 그러나, 하나의 범하기 오염 샘플의 질량 분석 기반 단백질 식별에 대 한 샘플 준비 중입니다. 대부분의 경우에서 이러한 오염 먼지, 피부, 또는 머리에서 기인 하는 keratins를 포함 합니다. 따라서, 장갑 및 실험실 외 투를 입고 같은 여분 배려, 수성 버퍼도 고 순도 용 매를 사용 하 여 취해야 한다 질량 분석 기반 단백질 식별에 대 한 샘플 준비 중. 선호도 태그를 사용 하는 경우 보호자 등 다른 오염 단백질은 일반적으로 단백질 정화, 예를 들면, 동안 소개 합니다. 이러한 경우에 단백질 정화 개선 되어야 합니다, 예를 들어 세척 단계를 증가 시켜. 어떤 경우에, 단백질 오염 샘플에는 쉽게 식별 데이터베이스 검색 동안 분류 필터를 생략 하 여 (즉, 모든 종에서 단백질에 대 한 검색). 경우에 몇 가지 펩 티 드 관찰 된다 (즉, 낮은 단백질 범위 얻어질 수), 비록 충분 한 샘플을 사용할 수 있는 그것은 다른 성분을 사용 하 여 소화 하는 동안 해야 할 수도 있습니다. 트립 신 펩 티 드;의 충분 한 번호를 생성 하는 일반적 그러나, 경우에 따라 막 단백질 또는 단백질의 막 도메인 등 tryptic 분열 사이트의 수는 감소 하 고 소수 성 아미노산을 대상으로 하는 다른 효소는 더 나은 선택 키를 누릅니다.
계측, 측면에서 특히 수정 된 악기는 가스 상으로 전송 하는 동안 공유 비 상호 작용을 유지 하는 기본 질량 분석에 대 한 필요 합니다. 여러 악기 종류, Q ToF orbitrap 악기를 포함 하 여 도입 되었습니다. 수정된 Q ToF 질량 분석기를 상업적으로 사용할 수 있는 기본 질량 분석에 대 한 몇 년 이후 후자 최근에 소개한 고 대부분의 경우에서 특수 수정45필요. 그러나, 고해상도 악기의 응용 프로그램 공부 하는 여러 개의 ligands 및 그들의 부 량46,47 바인딩을 허용 하 고 미래의 어플리케이션을 위해 유망.
액체 크로마토그래피 결합 질량 분석에 의해 상호 연결 된 디 펩 티 드를 식별 하기 위해 몇 가지 수정 된 표준 절차를 적용할 수 있습니다. 그러나, 데이터베이스 검색 제한 하는 요인이 전문된 소프트웨어는 거의 큰 데이터베이스를 다룰 수 있는 그리고 감소 된 데이터베이스는 복합물의 단백질 소 단위를 포함 하는 필요 이다. 최근 연구 질량 분석 쪼갤 cross-linkers 사용 전체 세포 lysates48,49상호 작용 단백질을 대상으로. 탠덤 질량 분석 실험에서 주로 조각 화학 cross-linkers 사용 하 여 선형 펩 티 드 (는 cross-linker에 의해 수정), 추가 조각화로 식별 될 수 및 데이터베이스 검색 선형 펩 티 드, 그리고이 감소 검색 시간과 전산 검색 공간입니다. 그러나, 이러한 실험을 수행 하는 이온 트랩 질량 분석기 또는 이온 함정으로 하이브리드 질량 분석기가 필요 합니다. 일반적으로, 거짓인 중요 한 문제는, 교차 결합 된 펩 티 드의 질량 스펙트럼 종종 유효성이 검사 됩니다 수동으로 데이터 분석 시간을 엄청나게 확장 그들의 조각 스펙트럼의 품질에 의해. 추가 유효성 검사 단계는 그러므로 잠재적인 미래의 응용 프로그램 없이 적용 될 수 있는 강력한 득점 시스템을 개발. 데이터 분석을 개선 하 고 가양성의 수를 줄이는 한 가지 방법은 틀린 발견 비율 계산 및 그들의 응용 프로그램 데이터 세트50cross-linking를 소개 했다.
일반적으로, 여기서 설명 질량 분석 기술을 더 보충 될 수 있다 (예를 들어, 공유 라벨) 분석에서 출력을 높일. 다른 수정 및 프로토콜의 개선 쉽게 구현할 수 있습니다. 같은 비교 가교34 단백질 조립에 구조적 변화를 unravels. 네이티브 질량 분석에서 더 개발 요즘 막 단백질51,52 의 분석 및 지질28,,5253,54 와 그들의 상호 작용 허용 . 기본 질량 분석에 대 한 고해상도 질량 분석기의 새로운 개발 응용 프로그램 및 ligand 바인딩 예, 지질 막 단백질의 바인딩 확장, 지금 분석45, 에 포함 될 수 있습니다. 46. 전산 모델링 접근법과 함께, 이러한 기술을 다양 한 해상도55의 구조 모델을 제공할 수 있습니다. 없는 크리스탈 구조 그대로 복잡 한 또는 단일 하위 단위에 사용할 수 있는 경우에, 질량 분석 단백질 상호 작용 및 알 수 없는 복잡 한 토폴로지에 첫 번째 통찰력을 제공할 수 있습니다. 사용 하는 기법에 따라 얻은 결과, 알 수 없는 복잡 한 저해상도 모델56,,5758얻어질 수 있다. 크리스탈 구조 또는 상 동 모델을 사용할 수 경우 질량 분석에서 받은 구조 정보도 근처 기본 모델59를 얻을 수 있습니다.
다른 구조 기법을 비교 하 여 질량 분석 장점이 낮은 샘플 금액 필요, 그것은 이기종 샘플을 취급할 수 있다 하 고 무제한 크기의 단백질 복합물에 적용 됩니다. 또한, 질량 분석 동적인 단백질 시스템의 조사 수 있습니다. 솔루션에 존재 하는 단백질 또는 단백질 복합물의 다른 인구 일반적으로 함께 분석 하 고 따라서 달리 특정 집단의 선택이 필요한 다른 구조 기술로 모든 conformations 유지 됩니다 동안 분석 하 고 한 실험에서 평가할 수 있는 있습니다. 정량적 상호 접근 최근에 소개 된34,,6061 고 다른 조건 하에서 구조적 변화를 설명 하는 미래의 응용 프로그램에 대 한 약속.
공개 사항
저자는 공개 없다.
감사의 글
우리는 유용한 논의 위해 우리의 동료를 감사합니다. 우리 또한 단백질 복합물을 제공 하기 위한 Ilme Schlichting 그리고 칼 피터 Hopfner을 감사 합니다. 우리는 교육 및 연구를 위한 연방 내각에서 자금을 인정 (BMBF, ZIK 프로그램, 03Z22HN22), 유럽 지역 개발 기금 (EFRE, ZS/2016/04/78115)와 MLU C.S. 및 Wellcome 트러스트 (109854/658에서에서 자금 할레 비 텐 베르크 Z/15/Z) 하 되
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| <강>화학, 시약, 소모품 | |||
| 2-[4-(2-hydroxyethyl)piperazin-1-yl]ethanesulfonic acid (HEPES) | Sigma Aldrich | H4034 | buffer |
| 아세트산 | Sigma Aldrich | 695092 | pH |
| Acetonitrile Optima LC/MS | Fisher Chemicals | A955-1 | 용매 |
| Amicon Ultra centrifugal 장치(다른 MWCO) | Millipore | , 즉 UFC500396 | 완충액 교환, 농도 |
| 아세트산 암모늄 용액 | Sigma Aldrich | A2706 | 네이티브 MS |
| 중탄산암모늄 | Sigma Aldrich | 9830 | 겔 내 분해 |
| 암모늄 용액 | Sigma Aldrich | 9859 | pH |
| Bis(Sulfosuccinimidyl)suberate-d0 (BS3-d0) | Thermo Scientific | 21590 | 가교제 |
| Bis(Sulfosuccinimidyl)suberate-d4 (BS3-d4) | Thermo Scientific | 21595 | 가교제 |
| 요오드화 세슘 | 시그마 알드리치 | 203033 | 보정 |
| 염화칼슘 | 시그마 알드리치 | C5670 | 인젤 소화 |
| 모세혈관 (1.0 OD × 0.78 ID × 100 L mm) | Harvard Apparatus | 30-0038 | 네이티브 MS |
| 디숙시니미딜 수산염(DSS) | Thermo Scientific | 21655 | cross-linker |
| DL-Dithiothreitol | Sigma Aldrich | D5545 | in-gel digestion |
| DMSO (dimethyl sulfoxide) | Sigma Aldrich | D8418 | 용매 |
| 에탄올 | Fisher Chemicals | BP2818 | 용매 |
| 포름산 Optima LC/MS | Fisher Chemicals | A117-50 | 솔벤트 보충제 |
| 인스턴트 블루 Coomassie 염색 용액 | expedeon | ISB1L | 염색 용액 겔 전기 영동 |
| Invitrogen NuPAGE 4-12 % Bis-Tris 젤 (1mm, 10 well) | 생명 기술 | NP0323BOX | 젤 전기 영동 |
| 요오도 아세트 아 | 시그마 Aldrich | I1149 | 인 젤 소화 |
| 이소 프로필 알코올, HPLC 등급 | Fisher Chemicals | P750717 | 용매 |
| 메탄올 | 피셔 화학 물질 | A456-212 | 용매 |
| Micro BioSpin 6 열 | BioRad | 732-6222 | 버퍼 교환 |
| NuPAGE 산화 방지 | invitrogen | NP0005 | 실행 버퍼, 겔 전기 영동 |
| NuPAGE LDS 샘플 버퍼 (4 ×) | invitrogen | NP0007 | 겔 전기영동용 시료 로딩 버퍼(비환원) |
| NuPAGE MES SDS Running buffer | life technologies | NP0001 | gel 전기영동 |
| NuPAGE MOPS SDS Running buffer | life technologies | NP0001 | gel 전기영 |
| NuPAGE 시료 환원제 (10 ×) | 겔 전기영동용 | 인비트로겐 | NP0004 |
| PBS - 인산염 완충 식염수 | 시그마 알드리치 | P4417 | 완충제 |
| SeeBlue Plus2 사전 염색 표준 단백질 마커 | 겔 전기영동용 인 | 비트로젠 | LC5925 |
| 아세트산나트륨 | 시그마 알드리치 | S2889 | 에탄올 침전 |
| 트리스(하이드록시메틸)아미노 메탄 (트리스) | 시그마 알드리치 | 252859 | 버퍼 |
| 트립신 | 시그마 알드리치 | TRYPSEQ-RO (11418475001) | 인 젤 분해 |
| 비바스핀 원심 장치 (다른 MWCO) | Sartorius | 즉 VS0101 | 버퍼 교환, 농축 |
| HPLC 용 물 | 시그마 알드리치 | 270733-2.5L-M | 용매 |
| < 강> 이름 < / 강> | Company | 카탈로그 번호 | 코멘트 |
| Instruments | |||
| Centrifuge Heraeus Fresco 21, 벤치탑 원심분리기 | Thermo Scientific | 75002425 | |
| Flaming / Brown Micropipette puller Model P-1000 | Sutter Instruments | P-1000 | |
| 겔전기영동 챔버 Xcell SureLock MiniCell | Invitrogen | EI0001 | |
| Gold Coater Quorum Q150R S | Quorum Technologies Ltd. | Q150RS | |
| 수평 겔 쉐이커 Rotamax 120 T | Heidolph Instruments | 544-41200-00 | |
| Q-TOF Ultima 질량 분석기, MS Vision 고질량 업그레이드 | Waters(마이크로매스) | - | |
| 역상 C18 분석 컬럼 Acclaim PepMap(C18, 75mm I.D., 50cm, 3mm 공극 크기) | Thermo Scientific | 164570 | |
| 역상 C18 프리 컬럼 (C18, 150 mm I.D., 2 cm, 5 mm 공극 크기) | Thermo Scientific | 164213 | |
| 메스 | Fisher Scientifc | 10463989 | |
| SpeedVac SPD121P 진공 원심분리기 | Thermo Scientific | SPD121DP-230 | |
| Thermomixer C | Eppendorf | 5382000015 | |
| 핀셋 AA | Sigma Aldrich | Z680184-1EA | |
| 초음파 세척기 USC-TH, 초음파 처리 수조 | VWR | 142-0084 | |
| UltiMate Dionex 3000 나노-LC 시스템, Q-Exactive plus 하이브리드 질량 분석기 (nano-ESI 소스) | 에 결합Thermo Scientific | 0726030+ | |
| Name | Company< | strong>카탈로그 번호 | Comments |
| Software, Software Tools, Database search | |||
| Mascot | www.matrixscience.com | ||
| Massign | http://massign.chem.ox.ac.uk | ||
| MassLynx | Micromass | ||
| MassMatrix | Xu, H. J Proteome Res. 9 (2010) | ||
| MaxQuant | Cox, J. Nat. Biotechn. 26 (2008) | ||
| pLink | Yang, B. Nat Methods 9 (2012) | ||
| pXtract 변환 도구 | http://pfind.ict.ac.cn/downloads.html | ||
| UniDec | Marty, M.T. Anal. Chem. 87 (2015) | ||
| XCalibur | Thermo Scientific | ||
| XiNET | http://crosslinkviewer.org | ||
| XLinkX | Liu, F. Curr op struct Biol 35 (2015) | ||
| xQuest | Rinner, O. Nat Methods 5 (2008) | ||
| Xvis | https://xvis.genzentrum.lmu.de |
참고문헌
- Campbell, I. D. Timeline: the march of structural biology. Nat Rev Mol Cell Biol. 3 (5), 377-381 (2002).
- Liko, I., Allison, T. M., Hopper, J. T., Robinson, C. V. Mass spectrometry guided structural biology. Curr Opin Struct Biol. 40, 136-144 (2016).
- Robinson, C. V. From molecular chaperones to membrane motors: through the lens of a mass spectrometrist. Biochem Soc Trans. 45 (1), 251-260 (2017).
- Lossl, P., van de Waterbeemd, M., Heck, A. J. The diverse and expanding role of mass spectrometry in structural and molecular biology. EMBO J. 35 (24), 2634-2657 (2016).
- Wang, L., Chance, M. R. Protein Footprinting Comes of Age: Mass Spectrometry for Biophysical Structure Assessment. Mol Cell Proteomics. 16 (5), 706-716 (2017).
- Steen, H., Mann, M. The ABC's (and XYZ's) of peptide sequencing. Nat Rev Mol Cell Biol. 5 (9), 699-711 (2004).
- Olsen, J. V., Mann, M. Status of large-scale analysis of post-translational modifications by mass spectrometry. Mol Cell Proteomics. 12 (12), 3444-3452 (2013).
- Schmidt, C., Robinson, C. V. Dynamic protein ligand interactions--insights from MS. FEBS J. 281 (8), 1950-1964 (2014).
- Marcsisin, S. R., Engen, J. R. Hydrogen exchange mass spectrometry: what is it and what can it tell us? Anal Bioanal Chem. 397 (3), 967-972 (2010).
- Zhang, Z., Smith, D. L. Determination of amide hydrogen exchange by mass spectrometry: a new tool for protein structure elucidation. Protein Sci. 2 (4), 522-531 (1993).
- Leitner, A., Lindner, W. Current chemical tagging strategies for proteome analysis by mass spectrometry. J Chromatogr B Analyt Technol Biomed Life Sci. 813 (1-2), 1-26 (2004).
- Leitner, A., Lindner, W. Chemistry meets proteomics: the use of chemical tagging reactions for MS-based proteomics. Proteomics. 6 (20), 5418-5434 (2006).
- Kiselar, J. G., Chance, M. R. Future directions of structural mass spectrometry using hydroxyl radical footprinting. J Mass Spectrom. 45 (12), 1373-1382 (2010).
- Xu, G., Chance, M. R. Hydroxyl radical-mediated modification of proteins as probes for structural proteomics. Chem Rev. 107 (8), 3514-3543 (2007).
- Liu, F., Heck, A. J. Interrogating the architecture of protein assemblies and protein interaction networks by cross-linking mass spectrometry. Curr Opin Struct Biol. 35, 100-108 (2015).
- Rappsilber, J. The beginning of a beautiful friendship: cross-linking/mass spectrometry and modelling of proteins and multi-protein complexes. J Struct Biol. 173 (3), 530-540 (2011).
- Rinner, O., et al. Identification of cross-linked peptides from large sequence databases. Nat Methods. 5 (4), 315-318 (2008).
- Yang, B., et al. Identification of cross-linked peptides from complex samples. Nat Methods. 9 (9), 904-906 (2012).
- Xu, H., Hsu, P. H., Zhang, L., Tsai, M. D., Freitas, M. A. Database search algorithm for identification of intact cross-links in proteins and peptides using tandem mass spectrometry. J Proteome Res. 9 (7), 3384-3393 (2010).
- Leitner, A., Faini, M., Stengel, F., Aebersold, R. Crosslinking and Mass Spectrometry: An Integrated Technology to Understand the Structure and Function of Molecular Machines. Trends Biochem Sci. 41 (1), 20-32 (2016).
- Heck, A. J. Native mass spectrometry: a bridge between interactomics and structural biology. Nat Methods. 5 (11), 927-933 (2008).
- Sharon, M., Robinson, C. V. The role of mass spectrometry in structure elucidation of dynamic protein complexes. Annu Rev Biochem. 76, 167-193 (2007).
- Goth, M., Pagel, K. Ion mobility-mass spectrometry as a tool to investigate protein-ligand interactions. Anal Bioanal Chem. , (2017).
- Uetrecht, C., Rose, R. J., van Duijn, E., Lorenzen, K., Heck, A. J. Ion mobility mass spectrometry of proteins and protein assemblies. Chem Soc Rev. 39 (5), 1633-1655 (2010).
- Hernandez, H., Robinson, C. V. Determining the stoichiometry and interactions of macromolecular assemblies from mass spectrometry. Nat Protoc. 2 (3), 715-726 (2007).
- Sobott, F., Hernandez, H., McCammon, M. G., Tito, M. A., Robinson, C. V. A tandem mass spectrometer for improved transmission and analysis of large macromolecular assemblies. Anal Chem. 74 (6), 1402-1407 (2002).
- Rostom, A. A., et al. Detection and selective dissociation of intact ribosomes in a mass spectrometer. Proc Natl Acad Sci U S A. 97 (10), 5185-5190 (2000).
- Zhou, M., et al. Mass spectrometry of intact V-type ATPases reveals bound lipids and the effects of nucleotide binding. Science. 334 (6054), 380-385 (2011).
- Uetrecht, C., et al. High-resolution mass spectrometry of viral assemblies: molecular composition and stability of dimorphic hepatitis B virus capsids. Proc Natl Acad Sci U S A. 105 (27), 9216-9220 (2008).
- Morgner, N., et al. Hsp70 forms antiparallel dimers stabilized by post-translational modifications to position clients for transfer to Hsp90. Cell Rep. 11 (5), 759-769 (2015).
- Schmidt, C., Beilsten-Edmands, V., Robinson, C. V. The joining of the Hsp90 and Hsp70 chaperone cycles yields transient interactions and stable intermediates: insights from mass spectrometry. Oncotarget. 6 (21), 18276-18281 (2015).
- Schmidt, C., Beilsten-Edmands, V., Mohammed, S., Robinson, C. V. Acetylation and phosphorylation control both local and global stability of the chloroplast F1 ATP synthase. Sci Rep. 7, 44068(2017).
- Schmidt, C., et al. Comparative cross-linking and mass spectrometry of an intact F-type ATPase suggest a role for phosphorylation. Nat Commun. 4, 1985(2013).
- Schmidt, C., Robinson, C. V. A comparative cross-linking strategy to probe conformational changes in protein complexes. Nat Protoc. 9 (9), 2224-2236 (2014).
- Schmidt, C., et al. Surface Accessibility and Dynamics of Macromolecular Assemblies Probed by Covalent Labeling Mass Spectrometry and Integrative Modeling. Anal Chem. 89 (3), 1459-1468 (2017).
- Lakomek, K., Stoehr, G., Tosi, A., Schmailzl, M., Hopfner, K. P. Structural basis for dodecameric assembly states and conformational plasticity of the full-length AAA+ ATPases Rvb1 · Rvb2. Structure. 23 (3), 483-495 (2015).
- Mareya, S. M., Raushel, F. M. A molecular wedge for triggering the amidotransferase activity of carbamoyl phosphate synthetase. Biochemistry. 33 (10), 2945-2950 (1994).
- Shevchenko, A., Wilm, M., Vorm, O., Mann, M. Mass spectrometric sequencing of proteins silver-stained polyacrylamide gels. Anal Chem. 68 (5), 850-858 (1996).
- Olsen, J. V., et al. Parts per million mass accuracy on an Orbitrap mass spectrometer via lock mass injection into a C-trap. Mol Cell Proteomics. 4 (12), 2010-2021 (2005).
- Cox, J., Mann, M. MaxQuant enables high peptide identification rates, individualized p.p.b.-range mass accuracies and proteome-wide protein quantification. Nat Biotechnol. 26 (12), 1367-1372 (2008).
- Kirshenbaum, N., Michaelevski, I., Sharon, M. Analyzing large protein complexes by structural mass spectrometry. J Vis Exp. (40), (2010).
- Morgner, N., Robinson, C. V. Massign: an assignment strategy for maximizing information from the mass spectra of heterogeneous protein assemblies. Anal Chem. 84 (6), 2939-2948 (2012).
- Marty, M. T., et al. Bayesian deconvolution of mass and ion mobility spectra: from binary interactions to polydisperse ensembles. Anal Chem. 87 (8), 4370-4376 (2015).
- Thoden, J. B., Wesenberg, G., Raushel, F. M., Holden, H. M. Carbamoyl phosphate synthetase: closure of the B-domain as a result of nucleotide binding. Biochemistry. 38 (8), 2347-2357 (1999).
- Rose, R. J., Damoc, E., Denisov, E., Makarov, A., Heck, A. J. High-sensitivity Orbitrap mass analysis of intact macromolecular assemblies. Nat Methods. 9 (11), 1084-1086 (2012).
- Gault, J., et al. High-resolution mass spectrometry of small molecules bound to membrane proteins. Nat Methods. 13 (4), 333-336 (2016).
- Mehmood, S., et al. Mass spectrometry captures off-target drug binding and provides mechanistic insights into the human metalloprotease ZMPSTE24. Nat Chem. 8 (12), 1152-1158 (2016).
- Kaake, R. M., et al. A new in vivo cross-linking mass spectrometry platform to define protein-protein interactions in living cells. Mol Cell Proteomics. 13 (12), 3533-3543 (2014).
- Liu, F., Rijkers, D. T., Post, H., Heck, A. J. Proteome-wide profiling of protein assemblies by cross-linking mass spectrometry. Nat Methods. 12 (12), 1179-1184 (2015).
- Walzthoeni, T., et al. False discovery rate estimation for cross-linked peptides identified by mass spectrometry. Nat Methods. 9 (9), 901-903 (2012).
- Barrera, N. P., Di Bartolo, N., Booth, P. J., Robinson, C. V. Micelles protect membrane complexes from solution to vacuum. Science. 321 (5886), 243-246 (2008).
- Barrera, N. P., et al. Mass spectrometry of membrane transporters reveals subunit stoichiometry and interactions. Nat Methods. 6 (8), 585-587 (2009).
- Laganowsky, A., et al. Membrane proteins bind lipids selectively to modulate their structure and function. Nature. 510 (7503), 172-175 (2014).
- Marcoux, J., et al. Mass spectrometry reveals synergistic effects of nucleotides, lipids, and drugs binding to a multidrug resistance efflux pump. Proc Natl Acad Sci U S A. 110 (24), 9704-9709 (2013).
- Politis, A., Schmidt, C. Structural characterisation of medically relevant protein assemblies by integrating mass spectrometry with computational modelling. J Proteomics. , (2017).
- Hall, Z., Politis, A., Robinson, C. V. Structural modeling of heteromeric protein complexes from disassembly pathways and ion mobility-mass spectrometry. Structure. 20 (9), 1596-1609 (2012).
- Pukala, T. L., et al. Subunit architecture of multiprotein assemblies determined using restraints from gas-phase measurements. Structure. 17 (9), 1235-1243 (2009).
- Politis, A., et al. Topological models of heteromeric protein assemblies from mass spectrometry: application to the yeast eIF3:eIF5 complex. Chem Biol. 22 (1), 117-128 (2015).
- Politis, A., et al. A mass spectrometry-based hybrid method for structural modeling of protein complexes. Nat Methods. 11 (4), 403-406 (2014).
- Fischer, L., Chen, Z. A., Rappsilber, J. Quantitative cross-linking/mass spectrometry using isotope-labelled cross-linkers. J Proteomics. 88, 120-128 (2013).
- Yu, C., et al. Developing a Multiplexed Quantitative Cross-Linking Mass Spectrometry Platform for Comparative Structural Analysis of Protein Complexes. Anal Chem. 88 (20), 10301-10308 (2016).
재인쇄 및 허가
