여기에서는 생체 내 갈색 지방 조직의 총 지방산 de novo 지방 형성 분석을 위해 산화중수소 및 가스 크로마토그래피 질량분석법(GCMS)을 활용하는 저렴한 정량 분석법을 제시합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
산화중수소를 사용한 갈색 지방 조직에서 de novo 지방산 합성의 정량적 측정
* These authors contributed equally
이 논문에서
요약
초록
지방산 합성은 전신 대사 항상성 및 기타 생리학적 및 병리학적 과정을 제어하는 데 중요한 기능적 역할을 하는 복잡하고 에너지가 많이 필요한 대사 경로입니다. 포도당 처리와 같은 다른 주요 대사 경로와 달리 지방산 합성은 일상적으로 기능적으로 평가되지 않아 대사 상태에 대한 불완전한 해석으로 이어집니다. 또한 해당 분야의 신규 이민자에게 적합한 공개적으로 사용 가능한 세부 프로토콜이 부족합니다. 여기에서는 생체 내 갈색 지방 조직에서 총 지방산 de novo 합성 분석을 위해 산화중수소 및 가스 크로마토그래피 질량분석법(GCMS)을 활용하는 저렴한 정량 분석법을 설명합니다. 이 방법은 탄소원과 독립적으로 지방산 합성효소 생성물의 합성을 측정하며, 거의 모든 조직, 모든 마우스 모델 및 외부 섭동 하에서 잠재적으로 유용합니다. GCMS 및 다운스트림 계산을 위한 샘플 준비에 대한 세부 정보가 제공됩니다. 우리는 높은 수준의 de novo 지방산 합성과 대사 항상성 유지에 중요한 역할로 인한 갈색 지방 분석에 중점을 둡니다.
서론
비만과 관련 대사 질환은 현재와 미래 세대를 위험에 빠뜨리는 전염병이다 1,2. 일반적으로 에너지 섭취와 소비 사이의 불균형의 결과로 단순화되는 비만과 관련된 대사 조절 장애는 환경 및 내인성 요인에 의해 조절되는 많은 대사 경로에 영향을 미친다3. 그러나 대사 조절 장애의 동물 모델에서 일상적으로 테스트되는 경로는 소수에 불과합니다.
예를 들어, 포도당 폐기는 포도당 및 인슐린 내성 검사에 의해 일상적으로 측정되는데, 이는 휴대용 혈당 모니터의 사용이 간편하기 때문일 수 있다4. 전신 포도당 및 지질 산화 상대 속도는 또한 간접 열량계 분석의 호흡 교환 비율을 기반으로 일상적으로 추정됩니다 5,6. 그러나 신진대사의 다른 모든 측면의 대부분은 일상적으로 기능적으로 평가되지 않습니다. 이로 인해 신진대사 상태에 대한 불완전한 해석과 치료 옵션을 놓치게 됩니다. 이러한 주요 경로 중 하나는 de novo lipogenesis입니다.
DNL(De novo lipogenesis)은 전구체에서 새로운 지방산이 생성되는 과정입니다. 포도당은 전신 DNL7에 기여하는 주요 전구체로 간주되지만, 아세테이트, 과당, 젖산 및 분지 사슬 아미노산과 같은 다른 전구체는 공간 및 조건에 따라 관련 탄소원으로 나타났습니다 8,9,10,11,12. DNL은 대사 항상성에 중요한 기여를 하며 정상적인 발달에 필수적이다13. 또한 DNL의 변화는 암14,15 및 대사16,17,18 및 심혈관 질환19,20과 관련이 있습니다.
DNL 경로는 핵심 효소 성분인 ATP 시트르산염 리아제(ACLY), 아세틸-CoA 카르복실라아제(ACC1/2) 및 지방산 합성효소(FAS)로 구성되며, 이들은 주로 16탄소 포화 지방산인 팔미테이트를 생성합니다. 그러나, 홀수 사슬 및 분지쇄 지방산은 또한 더 낮은 비율로 생산될 수 있다9. 엘롱가제(Elongase) 및 탈포화효소(desaturase)는 이러한 지방산을 추가로 변형시켜 다양한 기능(예: 장기 에너지 저장 및 막 유동성 조작)에 유용한 다양한 범위의 지방산 종을 생성합니다.
DNL 효소 기계의 발현은 소수의 전사 인자에 의해 제어됩니다. 현재까지 가장 잘 설명된 것은 스테롤 조절 요소 결합 단백질(SREBP) 계열, 탄수화물 반응 요소 결합 단백질(ChREBP) 및 간 X 수용체(LXR)21,22,23,24,25,26입니다. 기능의 명백한 중복에도 불구하고 세포 유형 우성 및 생리학적 또는 병리학적 조건에 기반한 개별 규정이보고되었습니다 21,22,27,28.
놀랍게도, DNL 경로의 선택된 단계에 대한 많은 억제제가 비만, 비알코올성 지방간 질환/비알코올성 지방간염(NAFLD/NASH) 및 심혈관 질환을 포함한 여러 질병에 대해 임상적 사용 승인을 받았거나 전임상 또는 임상 개발 단계에 있다29. 이러한 노력은 건강과 질병에 대한 DNL의 관련성을 강조합니다.
최근 몇 년 동안, de novo 지방산 합성을 정량적으로 평가하는 방법의 사용이 증가했다30. 이를 평가하는 가장 일반적인 방법은 DNL 기질 NAPDH, 아세틸-CoA 및 말로닐-CoA의 수소와의 중수소 교환을 통해 직접 및 간접적으로 합성하는 동안 무거운 표지된 수소가 아실 사슬에 통합되는 중질 표지수(D2O)를 사용하는 것입니다. 이 접근 방식이 인기를 얻고 있지만 이 분야의 신규 이민자에게 적합한 공개적으로 사용 가능한 세부 프로토콜이 부족합니다. 여기에서는 Lee et al.31이 이전에 개발한 계산을 사용하여D2O및 기체 크로마토그래피 질량분석법(GCMS)을 사용하여 FAS 생성물의 de novo 합성을 정량적으로 평가하는 방법을 간략하게 설명합니다. 이 방법은 탄소원과 독립적으로 de novo 지방산 합성을 측정하며, 거의 모든 조직, 모든 마우스 모델 및 외부 섭동 하에서 잠재적으로 유용합니다. 여기서는 DNL 수치가 높고 대사 항상성을 유지하는 데 중요한 역할을 하는 갈색 지방 조직(BAT)의 분석에 중점을 둡니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
모든 실험은 신시내티 아동 병원 메디컬 센터(Cincinnati Children's Hospital Medical Center)의 기관 동물 관리 및 사용 위원회(Institutional Animal Care and Use Committee)의 승인을 받았습니다.
1.D2O의 제조
알림: 실험 변동을 피하려면 실험 기간 동안 모든 마우스에 충분한 용액/식수를 준비하십시오.
- 복강 내 주사의 경우: D 2 O 리터당 9g의 NaCl을 용해시켜 0.9% w/v 식염수 D 2 O를 생성합니다.비발열성0.2μm 필터를 통해 여과하여 멸균합니다.
- D 2 O- 물 : 일반 음용수 920 mL 당80 mL의 D 2 O를 혼합하여 식수로 사용할 8 % v / v D2O 농축수를 생성합니다. 일반 식수는 마우스 시설에서 얻을 수 있습니다. 비발열성 0.2μm 필터를 통해 여과하여 살균합니다.
2. 온도 순응에 의한 BAT 활성 조절
- 온도 적응이 시작되기 2주 전에 케이지당 두 마리의 마우스가 있도록 마우스를 분리합니다. 생쥐가 모든 케이지에 적응하고 22°C를 유지할 수 있도록 물 공급을 물병으로 변경합니다.
- 온도 적응을 시작하기 1주일 전에 적절한 온도(열 중성의 경우 1°C, 실온의 경우 30°C, 저온 노출의 경우 22°C)를 설정하여 마우스 환경 챔버를 준비합니다.
- 온도 적응이 시작될 때 케이지를 환경 농축이 없는 새 케이지로 교체합니다(둥지를 피하기 위해). 케이지를 해당 온도로 이동합니다.
알림: 열 중성에 할당된 케이지는 30주 동안 4°C를 유지합니다. 실온에 할당된 케이지는 22주 동안 4°C를 유지합니다. 추위에 노출되도록 지정된 케이지는 첫 주에 18 °C, 두 번째 주에 14 °C, 세 번째 주에 10 °C, 네 번째 주에 6 °C로 매주 점진적으로 추워집니다. - 모든 조건에 대해 더러워진 케이지를 매주 교체하십시오. 또한 음식과 물병을 최소 24시간 동안 적절한 온도에서 미리 조정된 새 것으로 교체하십시오.
알림: 특히 추운 쥐의 경우 정상적인 조건에 비해 훨씬 더 많은 양의 음식을 섭취하기 때문에 매주 추가되는 음식의 양에 유의하십시오. 음식을 제공합니다.
3.D2O의 투여
- 1mL 주사기와 26G 바늘을 사용한 복강 내 주사를 통해 조직 채취 12시간-3일 전에 체중 35μL/g에서 각 동물에 0.9% w/v 식염수-D2O를 주입합니다.
참고: 적절한 라벨링 시간 선택에 대한 자세한 내용은 토론 섹션을 참조하십시오. - 물병을 8% v/v D2O-농축 식수가 들어 있는 병으로 바꾸십시오.
4. 혈장 및 조직 수집, 처리 및 보관
- 실험이 끝나면 승인된 방법론(예: 이산화탄소 과다 투여 후 자궁경부 탈구)을 사용하여 쥐를 희생합니다.
- 결과에 영향을 미칠 수 있는 안락사 전에 급격한 온도 변화를 피하기 위해 가열/냉각 패드 또는 기타 방법을 사용하십시오. 승인된 방법에 따라 쥐를 안락사시킵니다. 즉시 혈액 및 조직 채취를 진행하십시오.
- 26G 바늘을 사용하여 심장 천자를 통해 혈액을 채취하고 에틸렌디아민테트라아세트산 채혈 튜브에 보관합니다. 추가 처리가 될 때까지 혈액을 얼음에 보관하십시오.
- 흉강의 아래쪽 영역에서 목의 위쪽 부분까지 마우스 뒤쪽의 중간 선을 따라 피부를 자르고 피부 아래 조직에 영향을 미치지 않도록 피부를 위로 당깁니다. 견갑골 간 BAT는 견갑골 사이에 있는 얇은 백색 지방 조직 아래에 위치하며, 두 개의 피라미드 모양의 엽으로 구성되어 있습니다.
- 얼음처럼 차가운 인산염 완충 식염수(PBS)로 세척하여 조직을 청소합니다. 종이 타월을 두드려 과도한 액체를 제거하고 분석 저울로 무게를 측정한 다음 마이크로튜브에 모으십시오.
- 즉시 액체 질소를 사용하여 조직을 급속 동결합니다. 다른 BAT 저장소도 수집할 수 있습니다.
- 혈액 샘플을 10,000 x g 에서 4°C에서 10분 동안 원심분리합니다. 원심분리 후 적혈구 펠릿을 방해하지 않고 조심스럽게 혈장을 수집합니다. 얼음처럼 차가운 새 마이크로튜브로 옮기고 액체 질소에서 급속 동결합니다.
- 갈색 지방과 혈장 샘플은 사용할 때까지 -80°C에서 보관합니다.
5. 지방 조직에서 지질 추출
- 추출을 시작하기 전에
- 유리 바이알에 메탄올에 헥사데세노익-d31 산의 1mM 용액을 준비합니다. 이것은 내부 지방산 표준물질로 작용할 것입니다.
- 필요한 양의 클로로포름(CHCl3)과 메탄올(CH3OH)을 -80°C 냉동고 또는 드라이아이스에서 사전 냉각합니다.
참고 : 항산화 제 di-tert-butyl-4- 메틸 페놀 (BHT)은 불포화 지방산에서 이중 결합의 산화를 방지하기 위해 0.01 % w / v (2.5 mg / 25 mL)의 농도로 CHCl3 에 첨가 될 수 있습니다. - 각 조직 샘플에 대해 사전 라벨링된 미세 원심분리기 튜브와 블랭크 추출에 사용할 추가 튜브.
주의 : CH 3 OH및 CHCl3은 흡입 시 휘발성이 높고 독성이 있습니다. 흄 후드에만 사용하십시오.
알림: 마이크로 원심분리기 튜브의 브랜드마다 배경 팔미테이트 수준과 용매 누출 방지 기능이 다릅니다. 먼저 다양한 튜브를 테스트하여 용매 누출을 방지하고 튜브의 팔미테이트 오염 수준을 최소화하는 것이 좋습니다. 자세한 내용은 Yao et al.32 를 참조하십시오.
- 샘플을 냉동실에서 꺼내 드라이아이스 위에 놓습니다.
- 사전 라벨이 부착된 마이크로 원심분리기 튜브를 분석 저울에 놓고 저울을 갈로 갈아냅니다. 핀셋과 메스/강철 면도날을 드라이아이스 위에 올려 10-20초 동안 식힙니다.
- 핀셋을 사용하여 냉동 조직 샘플을 튜브에서 꺼내 플라스틱 계량 보트에 놓습니다. 계량 보트는 평평한 드라이아이스 블록 또는 다른 예냉된 표면에 놓을 수 있습니다.
- 메스 또는 강철 면도날을 사용하여 무게 5-15mg에 해당하는 조직의 작은 부분을 해부합니다. 마이크로 원심분리기 튜브에 넣고 정확한 무게를 기록합니다. 각 표본에 대해 반복합니다. 이 시점에서 샘플을 냉동실에 보관하거나 지질 추출을 위해 아래 단계로 진행할 수 있습니다.
알림: 메스가 70% 에탄올로 적절하게 세척되었는지 확인하십시오.ample 사이에 그리고 각 샘플 사이에 새 계량 보트가 사용됩니다.amp르.
- 각 샘플에 10mM 헥사데세노익-d 31(C16:0-d31) 산 1μL/mg을 추가합니다.
주의 : 다음 단계(5.4-5.8)는 용제의 흡입 위험으로 인해 흄 후드 아래에서 수행해야 합니다. - 3개의 5mm 스테인리스 스틸 비드를 사용하여 각 샘플에 250μL의 CH 3 OH, 250μL의 H2O 및 500μL의 CHCl3를 추가합니다. 분쇄기의 사전 냉각된 블록에 튜브를 놓고 25Hz의 진동 주파수에서 5분 동안 샘플을 혼합하거나 조직 샘플에 대해 제조업체에서 권장하는 지침을 사용합니다. 자석을 사용하여 구슬을 제거합니다.
- 샘플을 12,000 x g 에서 4°C에서 10분 동안 원심분리합니다.
참고: 원심분리 후 극성 대사 산물을 포함하는 상부 수성상과 지질 및 지방산을 포함하는 하부 유기상으로 명확한 이상 분리를 관찰해야 합니다. 분리가 보이지 않으면 250μL의H2O를 추가하고 와류 및 원심분리 단계를 반복합니다. - 마이크로피펫을 사용하여 각 샘플의 하단 단계에서 일정한 부피를 해당 라벨이 부착된 마이크로 원심분리기 튜브로 가져옵니다.
- 나머지 샘플에 500μL의 CHCl3 를 추가하고 5.6-5.7단계를 반복합니다.
- 완전히 마를 때까지 질소 가스 아래 또는 4°C의 CHCl3 내성 냉장 원심 진공 아래에 샘플을 놓습니다. 건조된 시료는 유도체화 준비가 될 때까지 -20°C에서 보관할 수 있습니다.
참고: 극성 대사 산물을 분석하기 위해 이 시점에서 각 샘플의 최상층을 수집하고 5.9단계에서와 같이 건조할 수도 있습니다.
6. 지방산 메틸 에스테르(FAME) 제조 및 GCMS 분석
- FAME를 제조하기 위한 산 촉매 에스테르화 및 에스테르 교환
주의 : 다음 단계는 용제의 흡입 위험으로 인해 흄 후드 아래에서 수행해야 합니다.- 샘플이 냉동실에 보관된 경우 물이 없는지 확인하기 위해 질소 아래에서 5분 동안 건조합니다.
- MS 등급 용매를 사용하여 98mL의 무수 CH3OH를 유리 배지 병에 피펫팅합니다. 흄 후드에 2mL의 무수 황산을 천천히 첨가하여 CH3OH에서 2 % H2SO4 를 만듭니다. 닫힌 병을 휘저어 섞는다.
- 500 μL의 2 % H2SO4 in CH3OH 용액을 각 샘플에 넣고 소용돌이 치십시오.
- 샘플을 50°C의 열 블록에서 2시간 동안 배양합니다.
- 히트 블록에서 샘플을 제거하고 각 샘플에 100μL의 포화 NaCl 용액과 500μL의 헥산을 추가합니다.
- 샘플을 실온에서 1분 동안 세게 소용돌이칩니다. 샘플을 1분 동안 그대로 두십시오. 이 다음에는 두 단계가 분명해야 합니다.
- 상부를 새 미세 원심분리기 튜브에 수집합니다(미세 원심분리기 튜브의 적절한 선택은 섹션 5.1.3의 참고 사항 참조).
- 수율을 최대화하려면 6.1.5-6.1.7 단계를 반복하여 두 번째 샘플을 동일한 라벨이 부착된 튜브에 수집합니다.
- 샘플을 질소 가스 아래 실온에서 건조시킵니다.
- 원래 조직 중량을 기준으로 20μL/mg의 헥산에 샘플을 재현탁시키고 유리 인서트를 사용하여 유리 GC 바이알로 즉시 옮깁니다.
알림: 증발을 최소화하기 위해 샘플을 옮기는 동안 빠르게 작업하십시오.
- GCMS 분석
- FAME 동위원소의 풍부도를 측정하려면 단일 사중극자 가스 크로마토그래피 질량분석기(GCMS)에 샘플을 주입합니다.
참고: 팔미테이트를 검출하기 위해 많은 컬럼 유형을 사용할 수 있지만, 재료 표에 자세히 설명된 대로 지방산 cis/trans 이성질체의 분리를 위해 개발된 GCMS 컬럼에 대해 다음과 같은 온도 프로그램이 설정되었습니다. 이 기둥의 길이는 50m이고 내경은 0.25mm입니다. - 헬륨을 운반 가스로 사용하여 270°C의 주입구 온도에서 1mL/min의 속도로 흐르는 분할/비분할 주입구에 1μL의 시료를 주입합니다. 총 유량이 19mL/분인 저농도 지방산의 경우 비분할 주입, 3mL/분의 격막 퍼지 및 0.75분에 15mL/분의 분할 벤트에 퍼지 흐름을 사용합니다. 10:1-40:1의 분할 비율을 사용하여 팔미테이트 및 올레산염과 같은 풍부한 지방산을 사용합니다.
- 다음 오븐 매개변수를 사용하십시오: 초기 온도 80°C; 20°C/min씩 증가하여 170°C까지 증가합니다. 1°C/min씩 증가하여 204°C까지 증가합니다. 250°C까지 20°C/min 단위로 증가; 그런 다음 250°C에서 10분 동안 유지합니다.
- 70eV의 전자 충격 이온화 모드와 1,562(u/s)의 스캔 속도 및 4.1 scans/s의 주파수로 50-400m/z 범위에서 스캔하는 MSD(질량 선택 검출기) 매개변수를 사용합니다. 280 °C에서 이송 라인, 230 °C에서 이온 소스, 150 °C에서 사중극자를 사용하십시오.
알림: 다른 열을 사용할 수 있지만 온도 프로그램은 다를 수 있습니다. - 샘플 시퀀스: 주입 샘플 순서를 무작위화하고 시퀀스 시작 부분에, 시퀀스 내 다섯 번째 샘플마다 2개 또는 3개 이상의 헥산 블랭크를 주입하고, 시퀀스 끝에 2개 또는 3개를 주입합니다.
- 기기별 소프트웨어 또는 Metabolite-Detector33과 같은 무료 오픈 액세스 소프트웨어를 사용하여 각 지방산 메틸 에스테르에 대해 표 1 의 이온을 적분합니다.
참고: 표 1 에서 M1-M5 동등성을 포함하는 이온을 설명했으며, 이 라벨링 창과 중수소 혼입의 양을 포함하는 것으로 나타났습니다. 그러나 de novo flux가 훨씬 더 높거나 더 긴 라벨링 시간이 사용되는 경우 이를 확장해야 할 수 있습니다. - 각 통합 이온의 풍부도를 사용하여 질량 동위원소 분포를 생성하고, 여기서 이온 강도는 질량 동위원소 분포의 합이 1이 되도록 분수 풍부도로 변환될 수 있습니다. 보충 파일의 예제 스프레드시트를 참조하십시오.
참고: 중수소 혼입을 정확하게 측정하기 위해서는 13C, 15N및 2H와 같은 자연 발생 동위원소의 존재를 허용하기 위해 자연 동위원소 풍부도의 보정을 사용해야 합니다. 이는 Fernandez et al.34,35에 의해 개략적으로 설명된대로 보정 매트릭스를 적용하여 수행되며, 라벨링된 대사산물에서 라벨링되지 않은 측정된 대사 산물의 MID를 빼서 수행할 수 없습니다. 실제로 fluxfix36, polyMID 37 또는 IsoCor38과 같은 무료로 사용 가능한 소프트웨어를 사용하여 원시 데이터를 분수 MID로 변환할 것을 권장하며, FAS의 메틸 에스테르 생성물에 대한 동위원소 보정 공식을 표 1에 제공했습니다. - 존재하는 팔미틴산염의 양을 결정하려면 다음 공식을 사용하십시오.
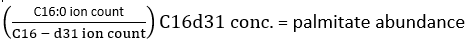
여기서 이온 수는 표 1에 적분된 모든 팔미테이트 동위원소의 합을 나타내고 C16:0-d31은 내부 표준물질인 헥사데세노익-d(31)를 나타낸다. 내부 표준물질은 내인성 팔미틴산염의 표준물질과 별도의 피크를 형성합니다. 다른 지방산의 상대적 존재량도 측정할 수 있지만, 지방산 특이적 동위원소 내부 표준물질(D2O혼입에서 관찰된 것보다 더 큰 질량 이동을 가짐) 또는 외부 표준물질 곡선을 사용하여 전체 정량을 측정해야 할 수도 있습니다. 추출된 빈 샘플을 사용하여 배경 팔미테이트의 양을 측정하고 이를 최종 조직 값에서 뺍니다. - 다음 방정식으로 팔미테이트의 몰 농축(ME)을 계산합니다.

여기서MI 는 팔미테이트 동위포올체의 정규화된 분수 풍부도이고, n은 가능한 팔미테이트 동위포올체의 수입니다. 예를 들어, 다음과 같은 분수 분포를 갖는 팔미틴산 염 분자의 ME는 M1 = 0.25, M2 = 0.08, M3 = 0.02이며, (0.025*1) + (0.08*2) + (0.02*3) = 0.245입니다( 보충 파일 참조).
- FAME 동위원소의 풍부도를 측정하려면 단일 사중극자 가스 크로마토그래피 질량분석기(GCMS)에 샘플을 주입합니다.
7. 체수 농축을 결정하기 위한 혈장 샘플의 중수소 아세톤 교환
- 반응
- 물에 0-9% v/v 범위의 10가지 중수소 표준물질을 준비합니다.
- 5.1.1단계의 표준물질을 포함하여 샘플당 4μL를 허용하는 5% v/v 아세톤/아세토니트릴 용액을 준비합니다.
- 라벨이 부착된 안전 잠금 마이크로 원심분리기 튜브에 각 혈장 시료 또는 표준물질 10μL, 10M NaOH 4μL, 5% 아세톤/아세토니트릴 4μL를 결합합니다. 각 샘플에 대해 이 작업을 세 번 수행합니다.
- 피펫팅으로 샘플을 부드럽게 혼합합니다. 샘플을 실온에서 밤새 배양합니다.
- 추출
- 배양 후 450-550mg의 Na2SO4 를 각 샘플에 첨가하십시오.
- 흄 후드에서 각 튜브에 600μL의 CHCl3 를 추가하고 15초 동안 격렬하게 소용돌이칩니다.
- 샘플을 300 x g에서 2분 동안 원심분리합니다.
- 흄 후드 아래에서 각 샘플의 상층액 80μL 분취액을 유리 인서트가 있는 라벨링된 유리 GCMS 바이알로 3번 옮기고 캡을 단단히 닫습니다.
- GCMS 분석
- 컬럼(30m, 0.25mm i.d, Agilent DB-35MS)에서 시료를 분리하고 부착된 질량분석기에서 분석합니다.
- 40:1의 분할 비율, 1mL/min의 헬륨 흐름, 270°C의 입구 온도로 분할/비분할 주입구에 1μL의 시료를 주입합니다.
- 초기 온도를 60°C로 설정하고 20°C/분 단위로 100°C로 증가시킨 다음 50°C/분씩 증가시켜 220°C로 높인 다음 220°C에서 1분 동안 유지하는 오븐 매개변수를 사용합니다.
- 다음 질량 선택성 검출기(MSD) 파라미터 사용: 70eV에서 전자 충격 이온화 모드와 58 및 59 m/z의 선택적 이온 모니터링. 280 °C에서 이송 라인, 230 °C에서 이온 소스, 150 °C에서 사중극자를 사용하십시오.
알림: 다른 저블리드, 결합, 가교, 중간 극성 컬럼을 사용할 수 있지만 온도 프로그램은 다를 수 있습니다.
- 액체 샘플러 방법을 CHCl 3 세척으로 시작한 다음 6개 샘플마다 추가 CHCl3 세척 단계를 포함하여 샘플의 무작위 시퀀스를 설정합니다.
참고: 아세톤을 오토샘플러의 니들 세척제로 사용하는 경우 CHCl 3 또는 헥산으로 교체하고 크로마토그램에서 오염된 아세톤 피크가 더 이상 나타나지 않을 때까지 여러 개의 빈 CHCl3 샘플을 주입합니다. - 이 방법을 사용하면 아세톤 피크가 약 1.25분에 용리됩니다. 표 1에 표시된 대로 58-60의 m/z 비율을 포함하는 피크를 분석하도록 조정하여 6.2.6-6.2.7단계에 따라 데이터를 통합하고 아세톤 농축의 분수 풍부도를 계산합니다.
- 표준물질을 사용하여 아세톤의 부분 농축을 기반으로 테스트 샘플의 체수분 농축(p) 백분율을 결정하는 표준 곡선을 생성합니다.
- 컬럼(30m, 0.25mm i.d, Agilent DB-35MS)에서 시료를 분리하고 부착된 질량분석기에서 분석합니다.
8. In vivo de novo lipogenesis 계산
- 다음 방정식을 사용하여 각 검체에서 FAS의 직접 산물(즉, 팔미테이트, 홀수 사슬 지방산 및 mmBCFA)인 새로 합성된 지방산(FNS)의 분율을 계산합니다.
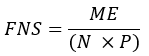
여기서 ME는 팔미테이트 분자의 평균 몰 농축(단계 6.2.9), p는 해당 혈장 샘플(단계 7.3.4)의 물 내 중수소 농축, N은 중수소가 혼입될 수 있는 팔미테이트 상의 교환 가능한 수소 원자의 수입니다. - Lee et al.31에 의해 확립된 아래 방정식을 사용하여 N을 결정합니다.
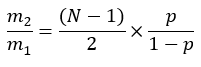
- 다음을 통해 새로 합성된 지방산(MNS)의 몰량을 측정합니다.
MNS = FNS x 총 지방산량(nmol/mg 조직).
참고: 예를 들어, 0.245의 팔미테이트 몰 농축(ME), 0.045의 체수분 중 중수소 농축(p) 및 계산된 N수 22를 얻는 경우 팔미틴산염의 분수 합성은 0.247입니다. 조직에 존재하는 팔미틴산염의 양이 2mmol/mg인 경우, 새로 합성된 팔미틴산염의 mmol은 0.494mmol/mg입니다( 보충 파일 참조).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
1단계에서 설명한 D 2 O 투여량에 따라 일반적으로 체수가2.5%에서 6% 범위로 농축되고 체수분 내 중수소 농축의 기준 수준이 1시간 내에 빠르게 달성되고 8% 농축 음용수를 통해 연구 기간 동안 유지됨을 알 수 있습니다(그림 1). 지속적인 정상 상태 체수 농축은 6단계에서 사용된 계산의 가정이므로 새로운 실험 모델에서 체수 농축 역학의 실험적 검증을 권장합니다.
우리는 de novo 합성 지방산의 양이 BAT의 열중성에 비해 실온에서 증가한다는 것을 발견했습니다(그림 2). D2O투여 3일 후 열중성 및 실온에서 마우스의 BAT에서 팔미테이트의 질량 동위원소 분포는 실온에서 더 높은 M1 및 M2 중수소 농축을 보여줍니다(그림 2A). 이러한 ...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
복잡한 대사 경로 간의 균형과 상호 작용을 이해하는 것은 대사 관련 질병의 생물학적 기초를 이해하는 데 없어서는 안될 단계입니다. 여기에서, 우리는 de novo 지방산 합성의 변화를 결정하기 위한 비침습적이고 저렴한 방법론을 보여줍니다. 이 방법은 지방산 중수소 농축(31)으로부터 새로운 합성 플럭스를 추정하기 위한 계산과 체수(39)에서D2O의 상대적 백분율을 결정하기 위한 중수소-아세톤 교환을 사용하기 위한 계산을 개발한 이전에 발표된 방법으로부터 채택된 것이다. 최근 몇 년 동안 우리는 여기에 설명 된 방법을 사용하여 지방 저장소, 뇌, 간 및 종양에서 다양한 지방산 합성의 변화를 밝히는 데 적용했습니다 9,22,40. ...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 공개할 것이 없습니다.
감사의 글
귀중한 토론을 해주신 Sanchez-Gurmacches와 Wallace 연구실 구성원에게 감사드립니다. 이 연구는 미국 심장 협회(18CDA34080527 JSG 및 19POST34380545 - RM), NIH(R21OD031907 - JSG), CCHMC Trustee Award, CCHMC Center for Pediatric Genomics Award, CCHMC Center for Mendelian Genomics & Therapeutics Award의 보조금으로 지원되었습니다. 이 연구는 신시내티에 있는 소화기 질환 연구 핵심 센터의 NIH P30 DK078392에 의해 부분적으로 지원되었습니다. 내용은 전적으로 저자의 책임이며 반드시 미국 국립보건원(National Institutes of Health)의 공식 견해를 나타내는 것은 아닙니다. RT와 MW는 UCD Ad Astra Fellowship의 지원을 받았습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 4mL 유리 바이알 | Fisher Scientific | 14-955-334 | |
| 0.2 &마이크로; m 필터 | Olympus 플라스틱 | 25-244 | |
| 26G 니델 주사기 | BD | 309597 | |
| 아세톤 | Merck | 34850 | |
| 아세토니트릴 | Merck | 900667 | |
| Blue GC 나사 캡(격막 포함 | Agilent | 5190-1599 | |
| 원심분리기 | Eppendorf | 5424R | |
| 클로로포름 | 시그마 | 366927 | |
| 중수소 산화물 | 시그마 | 151882 | |
| Di-tert-butyl-4-methylphenol (BHT) FAME 컬럼 선택 | Merck | B1378 | |
| Di-tert-butyl-4-methylphenol (BHT) FAME 컬럼 선택 | Agilent | CP7419 | |
| EDTA 튜브 | Sarstedt | 411395105 | |
| Ethanol | Merck | 51976 | |
| Hexadecenoic-d31 Acid | Larodan | 71-1631 | |
| Hexane | Merck | 34859 | |
| 메탄올 | Merck | 34860 | |
| 마이크로 원심분리기 튜브 | Olympus 플라스틱 | 24-282 | |
| 마우스 환경 챔버 | Caron | Caron Caron 7001-33 | |
| 염화칼 | 피셔 생물 시약 | BP366-500 | |
| 인산칼 | MP Biomedicals | 194727 | |
| SafeLock 마이크로 원심분리기 튜브 | Eppendorf | 30120086 | |
| Screw top amber GC 바이알 | Agilent | 5182-0716 | |
| 염화나트륨 | Fisher Bioreagents | BP358-212 | |
| 수산화나트륨 | Merck | S5881 | |
| 인산나트륨, 이염기 | 성 피셔 생물 시약 | BP332-500 | |
| 황산나트륨 | 머크 | 239313 | |
| 황산 | 머크 | 258105 | |
| 바이알 인서트 | 애질런트 | 5183-2088 |
참고문헌
- The Lancet, Diabetes Endocrinology. Childhood obesity: a growing pandemic. The Lancet. Diabetes & Endocrinology. 10 (1), 1(2022).
- Gonzalez-Muniesa, P., et al. Obesity. Nature Reviews Disease Primers. 3, 17034(2017).
- Müller, T. D., Blüher, M., Tschöp, M. H., DiMarchi, R. D. Anti-obesity drug discovery: advances and challenges. Nature Reviews Drug Discovery. 21 (3), 201-223 (2021).
- Virtue, S., Vidal-Puig, A. GTTs and ITTs in mice: simple tests, complex answers. Nature Metabolism. 3 (7), 883-886 (2021).
- Müller, T. D., Klingenspor, M., Tschöp, M. H. Revisiting energy expenditure: how to correct mouse metabolic rate for body mass. Nature Metabolism. 3 (9), 1134-1136 (2021).
- Virtue, S., Lelliott, C. J., Vidal-Puig, A. What is the most appropriate covariate in ANCOVA when analysing metabolic rate. Nature Metabolism. 3 (12), 1585(2021).
- Hellerstein, M. K. De novo lipogenesis in humans: metabolic and regulatory aspects. European Journal of Clinical Nutrition. 53 Suppl 1, S53-S65 (1999).
- Zhao, S., et al. Dietary fructose feeds hepatic lipogenesis via microbiota-derived acetate. Nature. 579 (7800), 586-591 (2020).
- Wallace, M., et al. Enzyme promiscuity drives branched-chain fatty acid synthesis in adipose tissues. Nature Chemical Biology. 14 (11), 1021-1031 (2018).
- Zhao, S., et al. ATP-citrate lyase controls a glucose-to-acetate metabolic switch. Cell Reports. 17 (4), 1037-1052 (2016).
- Green, C. R., et al. Branched-chain amino acid catabolism fuels adipocyte differentiation and lipogenesis. Nature Chemical Biology. 12 (1), 15-21 (2016).
- Zhang, Z., et al. Serine catabolism generates liver NADPH and supports hepatic lipogenesis. Nature Metabolism. 3 (12), 1608-1620 (2021).
- Chirala, S. S., et al. Fatty acid synthesis is essential in embryonic development: fatty acid synthase null mutants and most of the heterozygotes die in utero. Proceedings of the National Academy of Sciences. 100 (11), 6358-6363 (2003).
- Icard, P., et al. ATP citrate lyase: A central metabolic enzyme in cancer. Cancer Letters. 471, 125-134 (2020).
- Fhu, C. W., Ali, A. Fatty acid synthase: an emerging target in cancer. Molecules. 25 (17), 3935(2020).
- Lawitz, E. J., et al. Acetyl-CoA carboxylase inhibitor GS-0976 for 12 weeks reduces hepatic de novo lipogenesis and steatosis in patients with nonalcoholic steatohepatitis. Clinical Gastroenterology and Hepatology. 16 (12), 1983e3-1991e3 (2018).
- Smith, G. I., et al. Insulin resistance drives hepatic de novo lipogenesis in nonalcoholic fatty liver disease. The Journal of Clinical Investigation. 130 (3), 1453-1460 (2020).
- Imamura, F., et al. Fatty acids in the de novo lipogenesis pathway and incidence of type 2 diabetes: A pooled analysis of prospective cohort studies. PLoS Medicine. 17 (6), e1003102(2020).
- Lai, H. T. M., et al. Serial plasma phospholipid fatty acids in the de novo lipogenesis pathway and total mortality, cause-specific mortality, and cardiovascular diseases in the cardiovascular health study. Journal of the American Heart Association. 8 (22), e012881(2019).
- Ference, B. A., et al. Mendelian randomization study of ACLY and cardiovascular disease. The New England Journal of Medicine. 380 (11), 1033-1042 (2019).
- Herman, M. A., et al. A novel ChREBP isoform in adipose tissue regulates systemic glucose metabolism. Nature. 484 (7394), 333-338 (2012).
- Sanchez-Gurmaches, J., et al. Brown fat AKT2 Is a cold-induced kinase that stimulates ChREBP-mediated de novo lipogenesis to optimize fuel storage and thermogenesis. Cell Metabolism. 27 (1), 195e6-209e6 (2018).
- Wang, X., et al. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. II. Purification and characterization. The Journal of Biological Chemistry. 268 (19), 14497-14504 (1993).
- Briggs, M. R., Yokoyama, C., Wang, X., Brown, M. S., Goldstein, J. L. Nuclear protein that binds sterol regulatory element of low density lipoprotein receptor promoter. I. Identification of the protein and delineation of its target nucleotide sequence. The Journal of Biological Chemistry. 268 (19), 14490-14496 (1993).
- Yokoyama, C., et al. SREBP-1, a basic-helix-loop-helix-leucine zipper protein that controls transcription of the low density lipoprotein receptor gene. Cell. 75 (1), 187-197 (1993).
- Chen, G., Liang, G., Ou, J., Goldstein, J. L., Brown, M. S. Central role for liver X receptor in insulin-mediated activation of Srebp-1c transcription and stimulation of fatty acid synthesis in liver. Proceedings of the National Academy of Sciences. 101 (31), 11245-11250 (2004).
- Denechaud, P. D., et al. ChREBP, but not LXRs, is required for the induction of glucose-regulated genes in mouse liver. The Journal of Clinical Investigation. 118 (3), 956-964 (2008).
- Crewe, C., et al. SREBP-regulated adipocyte lipogenesis is dependent on substrate availability and redox modulation of mTORC1. JCI Insight. 5 (15), e129397(2019).
- Batchuluun, B., Pinkosky, S. L., Steinberg, G. R. Lipogenesis inhibitors: therapeutic opportunities and challenges. Nature Reviews Drug Discovery. 21 (4), 283-305 (2022).
- Wallace, M., Metallo, C. M. Tracing insights into de novo lipogenesis in liver and adipose tissues. Seminars in Cell & Developmental Biology. 108, 65-71 (2020).
- Lee, W. N., et al. In vivo measurement of fatty acids and cholesterol synthesis using D2O and mass isotopomer analysis. The American Journal of Physiology. 266 (5 Pt 1), E699-E708 (1994).
- Yao, C. H., Liu, G. Y., Yang, K., Gross, R. W., Patti, G. J. Inaccurate quantitation of palmitate in metabolomics and isotope tracer studies due to plastics. Metabolomics. 12, 143(2016).
- Hiller, K., et al. MetaboliteDetector: comprehensive analysis tool for targeted and nontargeted GC/MS based metabolome analysis. Analytical Chemistry. 81 (9), 3429-3439 (2009).
- Fernandez, C. A., Des Rosiers, C., Previs, S. F., David, F., Brunengraber, H. Correction of 13C mass isotopomer distributions for natural stable isotope abundance. Journal of Mass Spectrometry. 31 (3), 255-262 (1996).
- Midani, F. S., Wynn, M. L., Schnell, S. The importance of accurately correcting for the natural abundance of stable isotopes. Analytical Biochemistry. 520, 27-43 (2017).
- Trefely, S., Ashwell, P., Snyder, N. W. FluxFix: automatic isotopologue normalization for metabolic tracer analysis. BMC Bioinformatics. 17 (1), 485(2016).
- Jeong, H., et al. Correcting for naturally occurring mass isotopologue abundances in stable-isotope tracing experiments with PolyMID. Metabolites. 11 (5), 310(2021).
- Millard, P., et al. IsoCor: isotope correction for high-resolution MS labeling experiments. Bioinformatics. 35 (21), 4484-4487 (2019).
- Brunengraber, D. Z., et al. Influence of diet on the modeling of adipose tissue triglycerides during growth. American Journal of Physiology. Endocrinology and Metabolsim. 285 (4), E917-E925 (2003).
- Svensson, R. U., et al. Inhibition of acetyl-CoA carboxylase suppresses fatty acid synthesis and tumor growth of non-small-cell lung cancer in preclinical models. Nature Medicine. 22 (10), 1108-1119 (2016).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis: a technique for measuring biosynthesis and turnover of polymers. The American Journal of Physiology. 263 (5 Pt 1), E988-E1001 (1992).
- Hellerstein, M. K., Neese, R. A. Mass isotopomer distribution analysis at eight years: theoretical, analytic, and experimental considerations. The American Journal of Physiology. 276 (6), E1146-E1170 (1999).
- Kelleher, J. K., Masterson, T. M. Model equations for condensation biosynthesis using stable isotopes and radioisotopes. The American Journal of Physiology. 262 (1 Pt 1), E118-E125 (1992).
- Kelleher, J. K., Nickol, G. B. Isotopomer spectral analysis: utilizing nonlinear models in isotopic flux studies. Methods in Enzymology. 561, 303-330 (2015).
- Argus, J. P., et al. Development and application of FASA, a model for quantifying fatty acid metabolism using stable isotope labeling. Cell Reports. 25 (10), 2919.e8-2934.e8 (2018).
- Guilherme, A., et al. Control of adipocyte thermogenesis and lipogenesis through β3-adrenergic and thyroid hormone signal integration. Cell Reports. 31 (5), 107598(2020).
- Guilherme, A., et al. Neuronal modulation of brown adipose activity through perturbation of white adipocyte lipogenesis. Molecular Metabolism. 16, 116-125 (2018).
- Guilherme, A., et al. Adipocyte lipid synthesis coupled to neuronal control of thermogenic programming. Molecular Metabolism. 6 (8), 781-796 (2017).
- Lodhi, I. J., et al. Inhibiting adipose tissue lipogenesis reprograms thermogenesis and PPARgamma activation to decrease diet-induced obesity. Cell Metabolism. 16 (2), 189-201 (2012).
- McCormack, J. G., Denton, R. M. Evidence that fatty acid synthesis in the interscapular brown adipose tissue of cold-adapted rats is increased in vivo by insulin by mechanisms involving parallel activation of pyruvate dehydrogenase and acetyl-coenzyme A carboxylase. The Biochemistry Journal. 166 (3), 627-630 (1977).
- Trayhurn, P. Fatty acid synthesis in vivo in brown adipose tissue, liver and white adipose tissue of the cold-acclimated rat. FEBS Letters. 104 (1), 13-16 (1979).
- Negron, S. G., Ercan-Sencicek, A. G., Freed, J., Walters, M., Lin, Z. Both proliferation and lipogenesis of brown adipocytes contribute to postnatal brown adipose tissue growth in mice. Science Reports. 10 (1), 20335(2020).
- Schlein, C., et al. Endogenous fatty acid synthesis drives brown adipose tissue involution. Cell Reports. 34 (2), 108624(2021).
- Mottillo, E. P., et al. Coupling of lipolysis and de novo lipogenesis in brown, beige, and white adipose tissues during chronic beta3-adrenergic receptor activation. Journal of Lipid Research. 55 (11), 2276-2286 (2014).
- Adlanmerini, M., et al. Circadian lipid synthesis in brown fat maintains murine body temperature during chronic cold. Proceedings of the National Academy of Sciences. 116 (37), 18691-18699 (2019).
- Yu, X. X., Lewin, D. A., Forrest, W., Adams, S. H. Cold elicits the simultaneous induction of fatty acid synthesis and beta-oxidation in murine brown adipose tissue: prediction from differential gene expression and confirmation in vivo. FASEB Journal. 16 (2), 155-168 (2002).
- Kushner, D. J., Baker, A., Dunstall, T. G. Pharmacological uses and perspectives of heavy water and deuterated compounds. Canadian Journal of Physiology and Pharmacology. 77 (2), 79-88 (1999).
- Diraison, F., Pachiaudi, C., Beylot, M. Measuring lipogenesis and cholesterol synthesis in humans with deuterated water: use of simple gas chromatographic/mass spectrometric techniques. Journal of Mass Spectrometry. 32 (1), 81-86 (1997).
- Yang, D., et al. Assay of low deuterium enrichment of water by isotopic exchange with [U-13C3]acetone and gas chromatography-mass spectrometry. Analytical Biochemistry. 258 (2), 315-321 (1998).
- Fu, X., et al. Measurement of lipogenic flux by deuterium resolved mass spectrometry. Nature Communications. 12 (1), 3756(2021).
- Shah, V., Herath, K., Previs, S. F., Hubbard, B. K., Roddy, T. P. Headspace analyses of acetone: a rapid method for measuring the 2H-labeling of water. Analytical Biochemistry. 404 (2), 235-237 (2010).
- Argus, J. P., Yu, A. K., Wang, E. S., Williams, K. J., Bensinger, S. J. An optimized method for measuring fatty acids and cholesterol in stable isotope-labeled cells. Journal of Lipid Research. 58 (2), 460-468 (2017).
- Belew, G. D., Jones, J. G. De novo lipogenesis in non-alcoholic fatty liver disease: Quantification with stable isotope tracers. European Journal of Clinical Investigation. 52 (3), e13733(2022).
- Zhang, Z., Chen, L., Liu, L., Su, X., Rabinowitz, J. D. Chemical basis for deuterium labeling of fat and NADPH. Journal of the American Chemical Society. 139 (41), 14368-14371 (2017).
- Belew, G. D., et al. Transfer of glucose hydrogens via acetyl-CoA, malonyl-CoA, and NADPH to fatty acids during de novo lipogenesis. Journal of Lipid Research. 60 (12), 2050-2056 (2019).
- Diraison, F., Pachiaudi, C., Beylot, M. In vivo measurement of plasma cholesterol and fatty acid synthesis with deuterated water: determination of the average number of deuterium atoms incorporated. Metabolism. 45 (7), 817-821 (1996).
- Ajie, H. O., et al. In vivo study of the biosynthesis of long-chain fatty acids using deuterated water. The American Journal of Physiology. 269 (2 Pt 1), E247-E252 (1995).
- Schloerb, P. R., Friis-Hansen, B. J., Edelman, I. S., Solomon, A. K., Moore, F. D. The measurement of total body water in the human subject by deuterium oxide dilution; with a consideration of the dynamics of deuterium distribution. The Journal of Clinical Investigation. 29 (10), 1296-1310 (1950).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
