모델 유기체 Exaiptasia diaphana 에 대한 히스톤 마크 H3K4me3에 대한 염색질 면역침전(X-ChIP) 분석이 제시됩니다. 분석의 특이성과 유효성은 정량적 PCR과 차세대 염기서열분석(next-generation sequencing)으로 확인됩니다. 이 프로토콜은 말미잘 E. diaphana에서 단백질-DNA 상호 작용에 대한 연구를 증가시킬 수 있습니다.
방법 논문
Cnidarian Model System의 Chromatin Immunoprecipitation Exaiptasia diaphana
* These authors contributed equally
이 논문에서
요약
초록
히스톤 번역 후 변형(PTM) 및 기타 후성유전학적 변형은 전사 기계에 대한 유전자의 염색질 접근성을 조절하여 환경 자극에 반응하는 유기체의 능력에 영향을 미칩니다. 고처리량 염기서열분석(ChIP-seq)과 결합된 염색질 면역침전은 후성유전학 및 유전자 조절 분야에서 단백질-DNA 상호 작용을 식별하고 매핑하는 데 널리 활용되었습니다. 그러나 자포 동물 후성 유전학 분야는 적용 가능한 프로토콜의 부족으로 인해 방해를 받고 있으며, 부분적으로는 높은 수분 함량과 점액 양이 분자 방법을 방해하는 공생 말미잘(sea anemone) Exaiptasia diaphana와 같은 모델 유기체의 독특한 특징 때문입니다. 여기에서는 E. diaphana 유전자 조절에서 단백질-DNA 상호 작용의 조사를 용이하게 하는 특수 ChIP 절차를 제시합니다. 가교 결합 및 염색질 추출 단계는 효율적인 면역침전을 위해 최적화 된 다음 히스톤 마크 H3K4me3에 대한 항체를 사용하여 ChIP를 수행하여 검증했습니다. 그 후, 정량적 PCR을 사용하여 여러 구성적으로 활성화된 유전자 자리 주변에서 H3K4me3의 상대적 점유를 측정하고 게놈 전체 규모 분석을 위한 차세대 염기서열분석을 통해 ChIP 분석의 특이성 및 효과를 확인했습니다. 공생 말미잘 E. diaphana 에 최적화된 이 ChIP 프로토콜은 산호와 같은 공생 자포동물에 영향을 미치는 환경 변화에 대한 유기체 반응과 관련된 단백질-DNA 상호 작용의 연구를 용이하게 합니다.
서론
기후 변화에 관한 정부간 협의체(IPCC)의 2022년 보고서는 기후 변화에 대한 인식과 완화 노력이 증가하고 있음에도 불구하고 점점 더 강렬하고 빈번한 해양 열파로 인해 산호초가 향후 수십 년 이내에 광범위한 백화 현상과 대량 폐사의 높은 위험에 처해 있다고 강조합니다1. 산호초 보존 및 복원 노력에 정보를 제공하기 위해, 반응 및 회복력의 기본 메커니즘을 이해하기 위해 다양한 생물학적 수준에서 변화하는 환경 조건이 미치는 현재 및 예상 영향을 조사하고 있습니다2.
이러한 과제를 해결하기 위해서는 저서생물에 적용할 수 있는 조사 도구의 가용성이 매우 중요하며, 이러한 도구를 개발하기 위해서는 다른 분야에서 확립된 지식과 기술을 해양 생물에 이전하기 위한 적극적인 노력이 필요하다3. 많은 산호 종과 함께 작업하는 데 대한 장애물은 바다 말미잘(sea anemone) Exaiptasia diaphana (일반적으로 Aiptasia라고 함)4와 같은 모델 시스템을 사용하여 부분적으로 완화됩니다. 이 빠르게 성장하고 기능적으로 공생하는 말미잘은 실험실 환경에서 비교적 쉽게 보관할 수 있고, 유성생식과 무성생식을 모두 할 수 있으며, 탄산칼슘 골격이 없다5. E. diaphana의 개방형 참조 게놈5는 염기서열 분석이 필요한 후성유전학적 방법의 사용을 용이하게 합니다. 그러나 높은 수분 함량, 점액 생성 및 개체당 낮은 조직 양과 같은 특징은 복제 가능한 프로토콜의 확립에 대한 도전이며, 따라서 E. diaphana 및 유사한 기능을 가진 다른 자포동물에 대한 후성유전학적 연구를 억제합니다.
후성유전학적 변형은 염색질 관련 과정을 조절함으로써 유기체의 게놈 뉴클레오티드 서열을 변경하지 않고도 표현형을 변경할 수 있다6. 자포동물의 후성유전학적 조절은 주로 진화의역사와 발달7,8,9,10, 공생의 확립 및 유지11,12,13, 환경변화에 대한 반응14,15의 맥락에서 연구된다. 특히, 대부분의 경우 시토신 염기에 메틸기를 추가하는 DNA 메틸화 패턴의 변화는 온난화13 및 해양 산성화16와 같은 환경 조건의 변화에 대응하여 관찰되었다. DNA 메틸화 패턴은 또한 세대 간에 유전될 수 있는 것으로 나타났으며, 이는 환경 스트레스 요인에 대한 산호 순응에서 후성유전학의 역할을 강조합니다17. DNA 메틸화와 비교했을 때, 비암호화 RNA 11,18,19, 전사 인자 9,10 또는 자포동물에서 히스톤 번역 후 변형(PTM)과 같은 다른 중요한 후성유전학적 조절인자에 대한 연구는 상대적으로 적었다20. DNA 관련 단백질의 조사는 사용 가능한 방법이 연구 유기체의 참조 게놈에 대한 접근을 필요로 하고 큰 샘플 크기와 높은 특이성 항체가 필요하기 때문에 비용이 많이 들기 때문에 특히 까다롭습니다3. 특정 히스톤 잔류물에서 PTM을 형성하는 다양한 화학 그룹으로 인해 특히 임박한 환경 스트레스의 맥락에서 cnidarians의 염색질 변형 환경을 이해하는 것은 큰 과제로 남아 있습니다.
이 연구의 목적은 산호 모델 E. diaphana (Bodega et al.21의 원래 프로토콜)에 대해 최적화 된 염색질 면역 침전 (ChIP) 프로토콜을 제시함으로써 cnidarians의 히스톤 PTM, 히스톤 변이체 및 기타 염색질 관련 단백질의 연구를 발전시키는 것입니다. ChIP는 유전자좌 특이적 단백질-DNA 상호작용을 특성화하기 위해 정량적 PCR과 결합하거나 전체 게놈에서 이러한 상호작용을 매핑하기 위해 차세대 염기서열분석(NGS)과 결합할 수 있습니다. 일반적으로 단백질과 DNA는 가역적으로 가역적으로 가교되어 관심 단백질(POI)이 생체 내에서 연결된 것과 동일한 유전자좌에 결합된 상태로 유지됩니다. 포유류 모델 시스템에서 널리 사용되는 일반적인 가교 방법은 일반적으로 실온에서 15분 이하로 유지되지만, 가교 결합 방법은 포름알데히드가 E. diaphana에 의해 생성된 점액을 보다 효과적으로 통과할 수 있도록 최적화되었습니다. 그런 다음 조직을 액체 질소에서 급속 냉동하고 균질화한 다음 용해시켜 세포에서 핵을 추출합니다. 이 단계에서 물질의 손실은 하나의 용해 완충액 만 사용한 다음 염색질을 ~ 300 bp 길이의 단편으로 단편화하는 초음파 처리로 직접 이동하여 피할 수 있습니다. 이러한 단편은 POI에 특이적인 항체와 함께 PTM 수준의 정밀도로 배양됩니다. 항체-단백질-DNA 면역복합체는 1차 항체에 결합하는 자기 비드를 사용하여 침전되며, 이를 통해 POI와 관련된 DNA 세그먼트만 선택합니다. 침전물의 교차 결합 역전 및 세척 후, 수득된 DNA 세그먼트는 세그먼트를 참조 게놈에 매핑하고 POI와 연결된 유전자좌를 식별하기 위한 시퀀싱을 위한 qPCR 또는 DNA 라이브러리 구축에 사용할 수 있습니다. 각 단계에 대한 고려 사항에 대한 자세한 내용은 Jordán-Pla 및 Visa22에서 확인할 수 있습니다.
프로토콜
절차적 개요는 그림 1에 나와 있습니다. ChIP-Seq 데이터는 BioProject 코드 PRJNA931730(https://www.ncbi.nlm.nih.gov/bioproject/PRJNA931730)의 NCBI SRA(Sequence Read Archive)에서 사용할 수 있습니다.
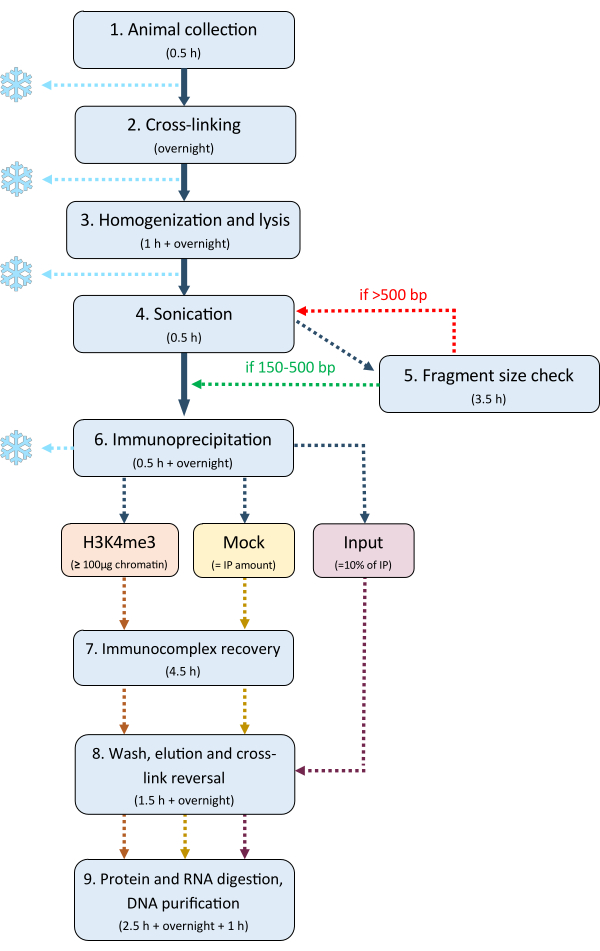
그림 1: ChIP 프로토콜 워크플로우. 각 단계의 예상 기간과 선택적 중지 지점을 포함한 ChIP 프로토콜 워크플로에 대한 개요입니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
1. 동물 수집
- 플라스틱 주걱을 사용하여 수족관 벽에서 페달 직경이 ~5mm 이상인 20개의 공생 E. 디아파나 (균주 CC7)를 부드럽게 분리하고 15mL 튜브에 피펫팅합니다.
참고: 말미잘의 크기와 의도된 IP 수에 따라 말미잘의 수를 최적화하는 것이 좋습니다. 말미잘은 액체 질소(LN2)에서 급속 냉동할 수 있으며 ChIP를 시작하기 전에 최소 80개월 동안 -1°C에서 보관할 수 있습니다. 그렇지 않으면 말미잘이 15mL 튜브의 벽에 가라앉는 것을 방지하기 위해 바로 진행하는 것이 좋습니다.
2. 가교(Cross-linking)
- 0.5% 가교 완충액 10mL를 준비합니다(표 1).
- 말미잘이 튜브 바닥에 가라앉게 하거나 원심분리기에서 몇 초 동안 회전시켜 실온에서 ~3,500 x g 까지 올린 다음 진공 펌프로 과도한 해수를 제거합니다. 매달아 1x DPBS로 세척한 다음 DPBS를 제거합니다.
- 핀셋이나 플라스틱 주걱을 사용하여 말미잘을 0.5% 가교 완충액으로 옮기면 불필요한 완충액이 옮겨지지 않습니다. 12 rpm 및 4 °C의 로테이터에서 1 시간 동안 배양합니다.
- 한편, 1% 가교 완충액 10mL를 준비한다(표 1).
- 2.2단계에서와 같이 0.5% 완충액을 제거하고 튜브에 1% 가교 완충액을 다시 채웁니다. 12 rpm 및 4 °C의 로테이터에서 밤새 배양합니다.
알림: 모든 말미잘이 매달려 있고 튜브를 부드럽게 뒤집어 서로 붙지 않도록 하십시오. - 다음날 2M 글리신 스톡에서 10mL의 담금질 완충액을 준비합니다(표 1).
- 단계 2.2에서와 같이 1% 가교 완충액을 제거하고, 담금질 완충액에 말미잘을 현탁시켜 가교 반응을 정지시킨다. 12 rpm 및 4 °C의 로테이터에서 20분 동안 배양합니다.
- 2.2단계와 같이 담금질 버퍼를 제거하고 말미잘을 DPBS에서 두 번 세척합니다. 여러 샘플을 취급하는 경우 샘플별로 3.2-3.4 단계를 수행하는 동안 말미잘을 DPBS에 매달아 두십시오.
참고: 이 시점에서 샘플을 스냅 냉동하고 -80°C에서 최대 1개월 동안 보관하면 실험을 일시 중지할 수 있습니다. 얼어 보관하기 전에 튜브를 종이 티슈에 비워 과도한 DPBS를 제거합니다.
표 1: ChIP 프로토콜에 사용되는 솔루션 및 버퍼. 성분 및 각각의 농도는 프로토콜에 사용된 각 완충액에 대해 나열되어 있습니다. 이 표를 다운로드하려면 여기를 클릭하십시오.
3. 균질화 및 용해
- 당일(샘플당 2mL) 용해 완충액(표 1)을 신선하게 준비하고(샘플당 2mL) 100x 프로테아제 억제제 칵테일(PIC, 재료 표 참조)을 최종 농도 1x에 추가합니다. 도자기 모르타르와 유봉을 에탄올로 청소하고 LN2로 모든 도구를 냉각하기 시작합니다.
- DPBS를 디캔팅하고 말미잘을 종이 티슈에 비워 가능한 한 많은 액체를 제거합니다. LN2를 모르타르에 붓고 핀셋을 사용하여 말미잘을 옮깁니다.
- 유봉을 사용하여 조직을 조심스럽게 부수는 것으로 시작한 다음 샘플이 미세한 가루가 될 때까지 갈아줍니다. 해동을 방지하기 위해 필요에 따라 LN2를 계속 보충하십시오.
- 용해 완충액 2mL를 얼음 위의 5mL 튜브에 넣습니다. 주걱을 사용하여 샘플을 채취하고 용해 버퍼로 옮겨 샘플이 버퍼에 용해되도록 합니다. 샘플을 얼음 위에 1분 동안 그대로 두었다가 반전에 의해 혼합합니다. 다른 모든 샘플에 대해 3.2-3.4단계를 반복하여 샘플 사이에 모든 장비를 에탄올로 철저히 청소합니다.
알림: 이 단계에서 가능한 한 샘플 손실을 최소화하십시오. - Dounce 조직 분쇄기( 재료 표 참조)를 용해 완충액으로 세척하고 샘플을 옮기고 단단한 유봉으로 20-30회 두드리십시오.
- 샘플을 다시 튜브로 옮기고 티슈 그라인더를 에탄올과 증류수로 세척한 다음 모든 샘플에 대해 3.5단계를 반복합니다.
- 밤새 ~14rpm 및 4°C의 로테이터에서 샘플을 배양합니다.
- Trypan blue를 사용하여 10μL의 샘플과 1:1 비율로 혼합하여 현미경(20배 확대)으로 성공적으로 용해되었는지 확인합니다. 염료가 핵을 관통하면 용해가 성공합니다.
참고: 이 시점에서 샘플을 최대 2개월 동안 -80°C에서 보관하여 실험을 일시 중지할 수 있습니다.
4. 초음파 처리
- 실온에서 ~2,000 x g 의 원심분리기에서 3-5초 동안 샘플을 잠시 회전시켜 캡과 벽에서 액체를 제거합니다.
- 용해물을 25G 바늘과 1mL 주사기에 10회 통과시켜 응집체를 분해합니다.
- 초음파 처리 중에 가능한 한 시원하게 유지하기 위해 샘플을 얼음 욕조에 넣으십시오.
- 초음파 처리 바늘을 에탄올로 청소하십시오. 바늘이 튜브 바닥에서 1cm 위에 있고 벽에 닿지 않도록 하여 샘플을 초음파 발생기( 재료 표 참조)에 놓습니다.
- 듀티 사이클을 50%로 설정하고 출력을 0으로 설정합니다. 초음파 발생기를 시작하고 샘플에서 거품이 생성되지 않는지 확인하십시오 (그렇지 않으면 바늘 위치를 중지하고 다시 조정하십시오). 출력 전력을 2로 천천히 올린 다음 2분 동안 초음파 처리합니다.
- 초음파 발생기를 끄고 출력 전력을 다시 0으로 설정 한 다음 샘플을 2 분 동안 쉬고 식히십시오.
- 샘플 당 총 4 개의 초음파 처리 및 냉각 세트에 대해 4.5-4.6 단계를 반복하십시오. 샘플을 제거하고 얼음 위에 보관한 다음 다른 샘플로 반복합니다. 샘플 사이와 끝 부분에 에탄올로 초음파 발생기 바늘을 청소하십시오.
참고 : 초음파 처리 강도 및주기 수는 150-500 bp 크기의 단편을 생성하면서 가장 낮은 초음파 처리 강도에 도달하도록 최적화해야 할 수도 있습니다.
5. DNA 추출 및 단편 크기 확인
참고: IP로 이동하기 전에 프래그먼트의 크기를 확인해야 합니다. 단편이 너무 크면 (>500 bp), 초음파 처리 주기의 수 및/또는 초음파 처리 강도를 증가시켜야 합니다. 너무 작으면(<150bp) 초음파 처리 시간 및/또는 강도를 줄여야 합니다.
- 샘플의 하위 집합에 대해 단편 크기 검사를 수행하는 동안 샘플을 얼음 위에 유지합니다. 100 μL subset을 새로운 1.5 mL 튜브에 옮깁니다.
- 8 μL의 RNase 칵테일을 추가하고( 재료 표 참조) 42°C에서 700rpm으로 흔드는 동안 30분 동안 배양합니다.
- 2 μL의 proteinase K를 추가합니다( 재료 표 참조). 55°C에서 700rpm으로 흔들면서 1시간 동안 배양합니다.
- 700rpm에서 흔들면서 95°C에서 최소 1시간 동안 배양하여 샘플을 역으로 교차 연결합니다.
- 1x TAE 완충액 및 0.01% 에티듐 브로마이드( 재료 표 참조) 또는 대체 겔 염색이 있는 1% 아가로스 겔을 준비합니다.
- 제조업체의 지침에 따라 정제 키트를 사용하여 샘플에서 DNA를 추출합니다( 재료 표 참조).
- 추출된 DNA의 단편화 크기를 확인하려면 아가로스 겔에 래더와 샘플을 로드합니다. 4 μL의 1 kbp ladder와 1 μL의 6 x purple loading 염료를 혼합하고 agarose gel의 웰 하나에 넣습니다. 20 μL의 DNA와 4 μL의 6x 보라색 로딩 염료를 혼합하여 최종 농도 1x를 만들고 피펫을 웰에 넣습니다. 모든 샘플에 대해 반복합니다.
- 겔을 100V에서 약 30분 동안 실행한 다음 겔을 트레이에 로드하고 겔 이미징 시스템에 놓고 해당 시스템 소프트웨어의 지침에 따라 겔을 이미징합니다( 재료 표 참조). 평균 150-500bp 사이여야 하는 단편화 크기에 따라 계속 진행할지 여부를 결정합니다(그림 2).
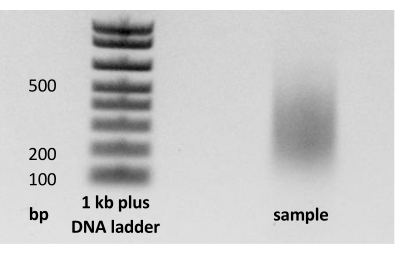
그림 2: 프래그먼트 크기 검사. 초음파 처리 후, 샘플의 하위 집합은 분리 가교, 정제 및 아가로스 겔에서 실행되어 염색질이 150-500 bp 사이의 단편 크기로 전단되었는지 확인합니다 . 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
6. 면역침전(IP)
- 피펫을 사용하여 DNA 추출 중 얼음 위에 보관된 주요 샘플의 부피를 확인합니다. 최종 농도 1%에 Triton X-100 10%를 첨가합니다.
- 4°C에서 20,000 x g 으로 10분 동안 샘플을 회전시킨 다음 피펫을 사용하여 상층액을 깨끗한 튜브로 옮깁니다.
참고: 여기에서 샘플을 최대 80°C에서 최대 2개월 동안 동결하여 실험을 일시 중지할 수 있습니다. 다음 IP 단계의 세부 정보는 각 실험에 맞게 조정하고 최적화해야 합니다. IP당 항체의 양을 최적화해야 할 수 있습니다. - 용해 완충액을 블랭크로 사용하여 사용 가능한 DNA 농도 측정 시스템의 지침에 따라 염색질 농도를 측정합니다( 재료 표 참조).
- 계획된 시료 부피 및 IP 수에 따라 최종 농도 1% 및 1x에 각각 10% Triton X-100 및 100x PIC( 재료 표 참조)를 추가하여 시료의 총 부피를 늘립니다. 총 1,000 μL의 부피에 100 μg의 크로마틴을 사용하는 것이 좋습니다.
- 각 IP에 대한 부피를 별도의 저머무름 1.5mL 튜브에 분배합니다( 재료 표 참조). ChIP-qPCR의 경우 모의 대조군으로 동일한 부피의 샘플을 다른 1.5mL 튜브에 넣습니다. IP 볼륨의 10%를 입력 컨트롤로 사용하고 -20°C에 보관합니다.
- 각각의 IP에 4 μg의 항체(여기서는 H3K4me3 항체, 재료 표 참조)를 추가합니다. 모의 객체에 아무 것도 추가하지 마십시오. IP 반응과 모의 반응을 튜브 로테이터에서 12rpm 및 4°C에서 밤새 배양합니다.
7. 자성 비드를 이용한 면역복합체의 회수
알림: 항상 마그네틱 비드를 건조시키지 마십시오. 액체로 덮어 두거나 가능한 한 빨리 용액을 보충하십시오. 항상 한 샘플에 대해 작업하십시오.
- 마그네틱 비드( 재료 표 참조)를 부드럽게 뒤집어 혼합합니다.
- 당일 신선하게 차단액 10mL(표 1)를 준비하여 부드럽게 섞는다.
- 피펫 팁의 끝을 잘라 직경을 늘리고 50μL의 마그네틱 비드를 별도의 튜브(IP당 튜브 1개, 모의 튜브 1개)에 옮깁니다.
- 각 튜브에 1mL의 차단 용액을 추가하고 12rpm 및 4°C의 회전기에서 30분 동안 배양합니다.
- 차단 용액에 있는 비드를 마그네틱 랙에 놓고 분리를 기다립니다. 한편, 실온에서 2,000-5초 동안 3-5 x g 에서 IP 반응을 회전시켜 벽에서 잔여물을 제거합니다.
- 피펫을 사용하여 차단 용액 상층액을 제거하고 버린 다음 샘플 중 하나 또는 모의 물질로 비드를 벽에서 씻어냅니다. 혼합물을 각각의 저머무름 튜브에 다시 넣고 다음 샘플로 이동합니다.
- 12rpm 및 4°C에서 3시간 동안 회전기의 모든 튜브를 배양합니다.
8. 세척, 용리 및 교차 연결 반전
- 면역복합체 회수 배양 중에 세척 완충액 및 TE 염 완충액(표 1)을 준비합니다.
- 배양 후 IP와 모의 동물을 마그네틱 랙에 놓고 자석이 분리될 때까지 약 10-20초 동안 기다립니다.
- 상층액을 버리고 저염으로 세척 완충액 1mL를 추가합니다. 모든 반응을 반복한 다음 마그네틱 랙에서 튜브를 제거하고 비드가 매달려 있을 때까지 혼합합니다.
- 12 rpm 및 4 °C의 로테이터에서 5분 동안 배양합니다.
- 튜브를 마그네틱 랙에 놓고 저염으로 세척 버퍼를 제거한 다음 고염으로 세척 버퍼 1mL를 추가하고 8.4단계와 같이 배양합니다.
- 8.3-8.5단계를 한 번 더 반복하여 저염과 고염을 번갈아 사용하여 총 4회 세척합니다.
알림: 고염 세척 버퍼는 매우 가혹하므로 각 세척 단계에서 정확히 5분 동안만 사용해야 합니다. - 피펫을 사용하여 상층액을 제거 및 버리고 1mL의 TE 염 완충액으로 세척합니다. 한 번 더 반복합니다. 두 번째 세척 후에는 튜브 캡에서 구슬을 씻어냅니다.
- 세척하는 동안 용출 완충액(표 1)을 만드십시오. 두 번째 TE 염 완충액 세척을 폐기한 후 각 반응에 210μL의 용출 완충액을 추가합니다.
- 마그네틱 비드를 매달고 65°C에서 용리하고 700rpm에서 15분 동안 흔듭니다.
- 반응물을 마그네틱 랙에 놓고 용리액을 수집한 다음 새 1.5mL 튜브에 넣습니다.
- 다른 210 μL의 용리 버퍼로 용출 공정을 반복하고, IP 및 mock당 420 μL의 용리액을 최종 부피를 얻기 위해 첫 번째 배치에 용리액을 추가합니다.
- 냉동고에서 투입물을 제거하고 총 부피 420μL까지 용리 버퍼를 추가합니다.
- 모든 용리액과 투입물을 65°C 및 700rpm에서 밤새 배양하여 역가교합니다.
9. 단백질 및 RNA 소화 및 DNA 정제
- 용리액에 420μL의 TE 염 완충액을 첨가하고 투입하여 SDS( 재료 표 참조) 농도를 0.5%로 희석합니다.
- RNA 분해를 위해 10μL의 RNase 칵테일( 재료 표 참조)을 추가하고 42°C에서 700rpm에서 30분 동안 배양합니다.
- 단백질 분해를 위해 8 μL의 proteinase K( 재료 표 참조)를 모두 추가하고 55°C에서 700rpm에서 1시간 동안 배양합니다.
- DNA 정제의 경우 "Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP"23 을 따라 몇 가지 사항을 조정하십시오.
- 실온에서 1분 동안 20,000 x g에서 겔을 튜브 바닥으로 회전시켜 Phase Lock 겔(재료 표 참조)로 튜브를 준비합니다.
- 흄 후드 아래에 하나의 샘플과 동일한 부피의 페놀:클로로포름:이소아밀 알코올(25:24:1)을 각 튜브에 추가합니다. 튜브를 세게 흔들고 거품이 많은 흰색 층을 형성할 때까지 잠시 소용돌이칩니다.
주의 : 혼합물은 독성, 부식성 및 건강에 해롭습니다. - 4 °C 및 20,000 x g에서 10 분 동안 회전합니다. 수성상이 깨끗한지 확인하십시오.
- 피펫을 사용하여 수성상을 새 튜브로 옮깁니다. 가능한 시료 부피에 따라 시료당 두 개의 새 튜브가 필요합니다. 이 경우 첫 번째 튜브에서 샘플의 절반을 두 번째 튜브로 옮깁니다.
- 3M 아세트산나트륨(예: 400μL 샘플의 경우 40μL)에 부피의 1/10을 추가하고 각 샘플에 10μL의 5mg/mL 선형 아크릴아마이드를 넣고 반전하여 혼합합니다.
- 100% 에탄올에 시료 부피의 2배(예: 400μL 시료의 경우 800μL)를 넣고 세게 흔듭니다. DNA를 손상시킬 수 있으므로 소용돌이치지 마십시오.
- -20 °C에서 밤새 또는 -80 °C에서 30분 동안 배양합니다.
- 원심분리기를 4°C로 냉각한 다음 15,000 x g 에서 30분 동안 샘플을 회전시켜 DNA를 펠릿화합니다.
- 조심스럽게 디캔팅한 다음 70% EtOH 1mL로 펠릿을 세척합니다. 5°C에서 4분 동안 최대 속도로 회전합니다.
- 조심스럽게 디캔팅한 다음 몇 초 동안 다시 회전합니다. 피펫을 사용하여 모든 에탄올을 제거하십시오. 약간의 조각이 남아 있으면 다시 회전하는 것이 도움이 될 수 있습니다.
- 펠릿을 30μL의 뉴클레아제가 없는 물에 재현탁시킵니다( 재료 표 참조).
참고: 샘플당 여러 개의 튜브가 있는 경우 하나의 펠릿을 30μL에 재현탁시키고 다음 튜브로 옮긴 다음 다음 펠릿을 동일한 30μL에 재현탁시킵니다.
- DNA 농도를 측정한 다음 샘플을 -20°C에서 보관합니다.
결과
위의 프로토콜에 따라, 히스톤 3 라이신 4 (H3K4me3)의 트리메틸화와 관련된 DNA를 면역침전시켰다. ChIP-seq 등급 항체는 이전에 말미잘인 Nematostella vectensis7 에 사용되었으며 여기에서 E. diaphana 조직 절편의 면역형광 염색을 통해 검증되었습니다(그림 3). DNA 수율은 투입 물질의 양에 따라 다르지만 일반적으로 약 100ng/μL였습니다. 얻어진 DNA 단편은 염기서열분석 및 qPCR( 보충 파일 1의 프라이머 목록)에 의해 분석하였다.
4,000만 회 읽기의 염기서열 분석 깊이는 ~1,760만 개의 고유하게 매핑된 읽기를 산출했습니다. 품질 검사 후, 원시 판독값을 잘라내고 Bowtie24를 사용하여 E. diaphana 게놈에 매핑했습니다(재료 표 참조). MACS(재료 표 참조)를 사용한 ChIP-Seq 데이터의 모델 기반 분석에서는 총 19,107개의 피크가 확인되었다25. H3K4me3에 대해 예상대로 대부분의 피크는 TSS(transcriptional start site) 근처에 위치했으며 피크 수 빈도는 TSS의 양쪽에서 특히 유전자체 쪽으로 급격히 감소했습니다(그림 4).
염기서열분석 데이터에서 TSS 주변에 높은 피크를 가진 3개의 유전자를 식별했으며, qPCR 프라이머는 이러한 유전자 내에서 높은 피크의 여러 위치를 표적으로 하도록 설계되었습니다. qPCR 데이터는 입력 방법의 백분율을 사용하여 정규화되었습니다(그림 5). 입력 및 모의 대조군에 비해 H3K4me3의 높은 농축이 관찰되었습니다. 투입 비율은 2.7%에서 10.7% 사이로 다양했으며, 유전자 간 및 동일한 유전자 내 다른 유전자좌 간에 농축의 차이가 관찰되었습니다.
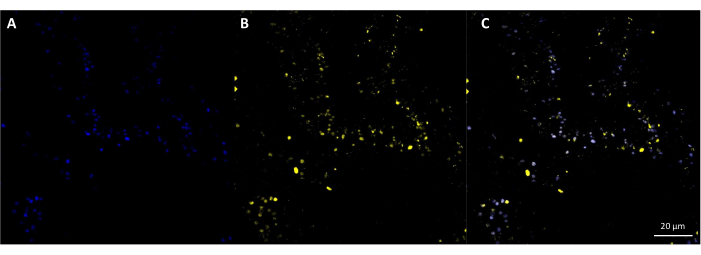
그림 3: H3K4me3의 면역형광 염색. E. diaphana 조직 절편은 (A) 청색 Hoechst 핵산 염색 및 (B) H3K4me3에 대한 1차 항체에 대한 노란색 형광단 표지 2차 항체로 염색했습니다. (C) A와 B 의 겹침은 핵에서 공동 국소화를 보여줍니다. 눈금 막대 = 20 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
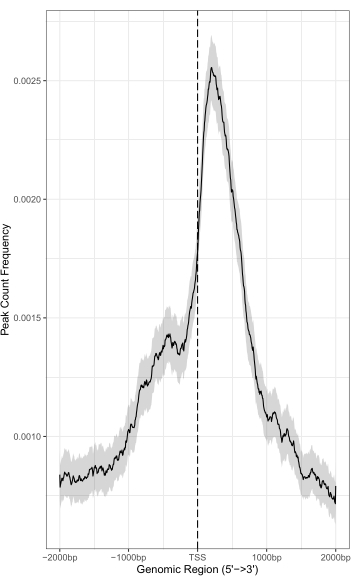
그림 4: 전사 시작 부위 주변의 높은 피크 수 빈도. 전사 시작 부위(TSS) 주변의 업스트림(-) 및 다운스트림(+) 2,000bp에 걸쳐 있는 H3K4me3 변형의 피크 수 빈도 분포. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
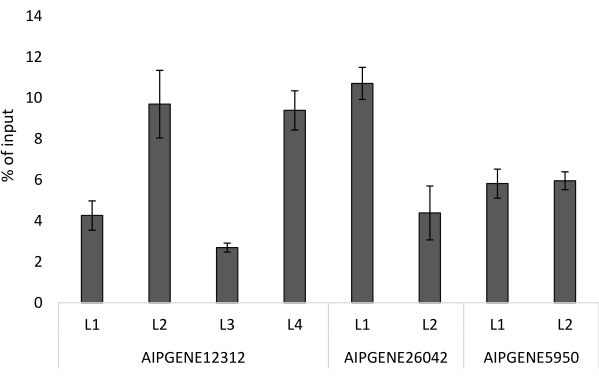
그림 5: 엑사이프타시아 디아파나에서의 H3K4me3 ChIP-qPCR. 결과는 입력의 백분율(%)로 표시됩니다. 각 유전자(AIPGENE12312, AIPGENE26042 및 AIPGENE5950)의 전사 시작 부위 근처의 유전자좌를 ChIP-qPCR에 대해 선택했습니다. 오차 막대는 반복실험 간의 표준 편차를 나타내며 n = 3입니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
보충 파일 1: qPCR에 사용되는 프라이머 목록. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
위의 프로토콜에 따라 얻어진 DNA를 ChIP-qPCR 및 ChIP-Seq에 성공적으로 사용하였다. 다른 유기체 26,27,28에서 이전에 보고된 H3K4me3에 대한 동일한 일반 피크 프로필이 여기에서 얻어졌으며, TSS 주변에서 가장 높은 피크와 ChIP-qPCR의 예상 위치에서 높은 농축을 보였습니다. ChIP-Seq 데이터에서 상대적으로 높은 수의 곱셈 매핑된 읽기는 PCR 중복으로 인해 발생했을 수 있습니다. PCR 중복을 줄이기 위해 DNA 라이브러리 준비 프로토콜을 변경함으로써 고유하게 매핑된 판독의 양을 늘릴 수 있습니다. ChIP-qPCR 데이터에는 여러 가지 정규화 방법이 있으며, 여기에 제시된 입력 방법의 백분율이 더 일반적으로 사용됩니다. 이 방법은 IP 및 모의 샘플을 입력으로 직접 정규화하지만, ChIP 중에 입력이 IP 및 모의 샘플과 다르게 처리되어 오류가 발생할 수 있다는 단점이 있습니다. 대안적인 폴드 인리치먼트 방법은 동일한 프라이머 세트를 사용하여 모의 객체의 신호에 기초하여 IP의 신호를 정규화하여 신호 대 배경 비율을 제공합니다. 그러나 모의 샘플의 신호 강도는 크게 변할 수 있으며, 이는 차례로 데이터에 큰 영향을 미칩니다. ChIP-qPCR 및 데이터 정규화에 대한 자세한 논의는 Haring et al.29에서 확인할 수 있습니다.
일반적인 ChIP 프로토콜과 비교하여 위에 제시된 방법의 주요 조정 사항은 히스톤 단백질의 경우 약 15분에서 하룻밤 배양까지 훨씬 더 긴 교차 결합 시간입니다. 이 조정의 주요 목적은 점액층을 통해 고정 포름알데히드가 E. diaphana의 더 깊은 조직으로 침투하는 것을 촉진하여 핵 내부의 단백질-DNA 상호 작용을 보존하는 것입니다. 이 단계의 최적화는 초음파 처리에 의한 염색질의 전단이 비효율적이 될 정도로 가교 결합하지 않고 단백질-DNA 상호 작용을 보존하기 위해 충분한 교차 결합을 보장하는 데 중요합니다. SDS와 같은 세제를 첨가하면 초음파 처리 효율도 높일 수 있습니다29. 또한, 포름알데히드로 장시간 배양하면 균질화 단계가 용이해지는 것으로 나타났으며, 가교 결합 단계 전에 균질화된 신선 또는 냉동 아네모네에 비해 더 미세하고 균일하게 분쇄된 샘플을 얻을 수 있었습니다. 단편 길이의 권장 범위는 100 bp에서 1,000 bp29,30 사이이며 표적 단백질에 따라 달라질 수 있습니다. 과도한 초음파 처리는 단백질을 변성시켜 IP31에 영향을 줄 수 있으므로 각 사용자가 가능한 한 적은 초음파 처리 전력으로 원하는 단편 길이에 도달하도록 초음파 처리 조건을 최적화하는 것이 중요합니다. ChIP의 또 다른 한계는 필요한 물질의 양이며, 이는 특히 말미잘과 같은 상대적으로 작은 유기체에 영향을 미칩니다. 이 문제는 단계 간 샘플 손실을 줄임으로써 해결되었습니다. 샘플을 균질화한 후 즉시 용해하여 몇 가지 일반적인 핵 준비 단계를 생략했습니다. 20개의 말미잘에서 얻은 샘플 풀에는 일반적으로 3개의 IP와 모의 및 입력 대조군 모두에 충분한 크로마틴이 포함되어 있습니다. 시작 물질의 양(즉, 말미잘의 수)은 특히 하나의 표적 단백질만으로 ChIP를 수행할 때 미래에 더 줄어들 수 있습니다. 의도된 다운스트림 방법에 따라 컨트롤을 조정해야 합니다. ChIP-qPCR의 경우, 추가적인 컨트롤(29)을 포함하는 것으로 간주되어야 하는 반면, ChIP-seq의 경우, 입력 컨트롤을 위해 mock을 생략할 수 있다.
항체 검증은 이 프로토콜의 범위를 벗어나므로 여기에서 간략하게만 다루었지만 ChIP를 수행하기 전에 중요한 단계입니다. 특히 무척추동물 종에 상업용 항체를 사용할 때 원하는 표적에 대한 특정 항체의 가용성은 제한이 될 수 있습니다. 첫 번째 단계에서, E. diaphana 및 제브라피시 및 마우스를 포함한 다른 모델 유기체의 H3 N-말단 꼬리 서열을 비교한 결과, 매우 보존된 것으로 확인되었다12. 그런 다음 핵산과 항체의 신호를 함께 국소화하는 면역형광을 사용하여 항체 특이성을 테스트했습니다. 염기서열분석 데이터에서 얻은 TSS 주변의 H3K4me3의 피크 프로필은 항체의 특이성에 대한 추가적인 확신을 제공합니다.
항체 특이성에 관한 또 다른 고려 사항은 E. diaphana와 다른 많은 anthozoans가 세포에 숙주하는 공생 와편모충과의 상호 작용 가능성입니다. Lingulodinium32 및 Symbiodinium33 속의 와편모류의 전사체 분석은 핵심 히스톤 H3 및 여러 H3 변이체를 포함한 히스톤 인코딩 유전자를 낮은 발현 수준에서 발견했으며 히스톤 코드의 기능적 보존 정도는 불분명합니다34. Marinov와 Lynch34는 와편모충 종 내 및 와편모충 종 간의 H3 변이체 N-말단 꼬리의 서열 보존을 비교했으며, Symbiodiniaceae 종은 특히 인접 아미노산과 라이신 4의 합동을 요인으로 고려할 때 꼬리 서열에서 라이신 4 주변에서 높은 발산을 보여주었습니다. 이 영역은 또한 E. diaphana12의 서열과 일치하는 Arabidopsis thaliana, Drosophila melanogaster 및 Saccharomyces cerevisiae와 같은 다른 모델 종에서 분기되는 것으로 나타났습니다. 따라서, H3K4me3에 대한 항체와 와편모류 H3의 의도하지 않은 상호작용의 위험은 낮다. 또한 염기서열은 E. diaphana 게놈에만 정렬되며, qPCR 프라이머는 E. diaphana 염기서열에 특이적이어야 하며, 의도하지 않게 침전된 염기서열에 대한 추가 여과 층을 제공해야 합니다.
제시된 ChIP 프로토콜은 qPCR 및 차세대 염기서열 분석을 위한 충분한 DNA를 생성하며, 각 사용자의 개별 최적화가 필요할 수 있지만, 공생 및 환경 변화의 맥락에서 저서 자포동물에서 단백질-DNA 상호 작용에 대한 연구를 증가시키기 위한 시작점을 제공합니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1 kb Plus DNA Ladder | Invitrogen | 10787018 | |
| 100% 에탄올 | |||
| 15 mL 팔콘 튜브 | |||
| 16% 포름알데히드 용액(w/v), 메탄올 무함유 | Thermo scientific | 28906 | |
| 5 mL 튜브 | |||
| 5PRIME 위상 잠금 튜브 | Quantabio | 2302820 | 위상 잠금 젤 - 라이트 |
| AGANI 바늘 25 G | Terumo | AN*2516R1 | |
| Agarose | |||
| 소 세럼 알부민 | Sigma-Aldrich | A7030 | |
| Bowtie | 오픈 소스, | ||
| https://bowtie-bio.sourceforge.net/index.shtml Branson sonifier 250 | Branson | Sonicator에서 사용 가능 | |
| 원심분리기 | Eppendorf | 5430 R | : 15 mL 및 1.5 mL 튜브용 로터 포함 |
| ChIP 등급 항체(여기서는 폴리클론 H3K4me3 항체) | Diagenode | , C15410003 | |
| Complete EDTA-free Protease Inhibitor Cocktail | Roche | 11873580001 | 2 tablets/mL water, for 100x stock |
| 커버 유리 | vwr | 48393 194 | |
| 일회용 주걱 | vwr | 80081-188 | |
| DNA 정제 키트(여기: QIAGEN QIAquick PCR 정제 키트) | QIAGEN | 28104 | |
| Dounce 조직 분쇄기 | Wheaton | tight pestle | |
| Dulbecco's Phosphate Buffered Saline (DPBS), 1x | gibco | 14190-094 | |
| Dynabeads Protein G | , Thermo Fisher Scientific | 10004D | |
| EDTA | , Sigma-Aldrich | 3609 | |
| EGTA | Sigma-Aldrich | 324626 | |
| 전기영동 시스템 | |||
| Ethidium bromide | |||
| FASTQC v0.11.9 | 소프트웨어 | ||
| Gel Doc EZ 문서화 시스템 | Bio-Rad | 1708270 | Gel 이미징 시스템 |
| Glycine | Sigma-Aldrich | 50046 | |
| Injekt-F 투베르쿨린 주사기 1 mL | B. Braun | 9166017V | |
| 선형 아크릴아미드(5 mg/mL) | Invitrogen | AM9520 | |
| 저잔류 1.5 mL 튜브 | |||
| 용 | 자기 분리 랙 | ||
| 현미경 | |||
| 현미경 슬라이드 | |||
| 모델 기반 분석 ChIP-Seq (MACS) | 오픈 소스 | ||
| 모르타르 및 절구, 도자기 | |||
| NanoDrop 2000c 분광 광도계 | Thermo scientific | ND-2000C | |
| N-lauroylsarcosine | Sigma-Aldrich | 61739 | |
| 뉴클레아제가 없는 물 | |||
| 파스퇴르 피펫 | |||
| 페놀:클로로포름:이소아밀 알코올 혼합물 (25:24:1) | Sigma-Aldrich | 77617 | |
| 단백질 분해 효소 K (20 mg/mL) | Ambion | AM2546 | |
| 보라색 로딩 염료 6x | New England BioLabs | B7024S | |
| Qubit 2.0 | 형 | ||
| RNase 칵테일 효소 혼합물 | Invitrogen | AM2286 | RNase A = 500 U/mL, RNase T1 = 20000 U/mL |
| 아세트산 | 나트륨 Sigma-Aldrich | S2889 | |
| 염화나트륨 | Sigma-Aldrich | S9888 | |
| 데옥시콜레이트 나트륨 | Sigma-Aldrich | 30970 | |
| SYBR 안전 DNA 겔 염색 | Invitrogen | S33102 | |
| TAE 완충기 | |||
| 써모믹서 | Eppendorf | 5384000012 | |
| Tris base | Sigma-Aldrich | 10708976001 | |
| Triton X-100 용액 | Sigma-Aldrich | 93443 | |
| Trypan Blue Stain (0.4%) | Gibco | 15250-061 | 위험: 암을 유발할 수 있음. 생식 능력 또는 태아를 손상시키는 것으로 의심되는 |
| 튜브 회전기 SB3 | 스튜어트 | ||
| UltraPure SDS 솔루션, 10% | Invitrogen | 15553027 | |
| 진공 펌프 |
참고문헌
- Pörtner, H. -O. 2022: Summary for Policymakers. Climate Change 2022: Impacts, Adaptation, and Vulnerability. Contribution of Working Group II to the Sixth Assessment Report of the Intergovernmental Panel on Climate Change. , Cambridge University Press. Cambridge, UK. (2022).
- Cziesielski, M. J., Schmidt-Roach, S., Aranda, M. The past, present, and future of coral heat stress studies. Ecology and Evolution. 9 (17), 10055-10066 (2019).
- Eirin-Lopez, J., Putnam, H. Marine environmental epigenetics. Annual Review of Marine Science. 11, 335-368 (2021).
- Rädecker, N. Using Aiptasia as a model to study metabolic interactions in cnidarian-Symbiodinium symbioses. Frontiers in Physiology. 9 (214), (2018).
- Baumgarten, S. The genome of Aiptasia, a sea anemone model for coral symbiosis. PNAS. 112 (38), 11893-11898 (2015).
- Strahl, B. D., Allis, C. D. The language of covalent histone modifications. Nature. 403 (6765), 41-45 (2000).
- Schwaiger, M. Evolutionary conservation of the eumetazoan gene regulatory landscape. Genome Research. 24 (4), 639-650 (2014).
- Zhang, X., Jacobs, D. A broad survey of gene body and repeat methylation in cnidaria reveals a complex evolutionary history. Genome Biology and Evolution. 14 (2), evab284(2022).
- Schwaiger, M. An ancestral Wnt-Brachyury feedback loop in axial patterning and recruitment of mesoderm-determining target genes. Nature Ecology & Evolution. 6 (12), 1921-1939 (2022).
- Ozment, E., et al. Cnidarian hair cell development illuminates an ancient role for the class IV POU transcription factor in defining mechanoreceptor identity. Elife. 10, e74336(2021).
- Baumgarten, S., et al. Evidence for miRNA-mediated modulation of the host transcriptome in cnidarian-dinoflagellate symbiosis. Molecular Ecology. 27 (2), 403-418 (2018).
- Li, Y. DNA methylation regulates transcriptional homeostasis of algal endosymbiosis in the coral model Aiptasia. Science Advances. 4 (8), eaat2142(2018).
- Rodriguez-Casariego, J. A., Cunning, R., Baker, A. C., Eirin-Lopez, J. M. Symbiont shuffling induces differential DNA methylation responses to thermal stress in the coral Montastraea cavernosa. Molecular Ecology. 31 (2), 588-602 (2021).
- Putnam, H. M., Davidson, J. M., Gates, R. D. Ocean acidification influences host DNA methylation and phenotypic plasticity in environmentally susceptible corals. Evolutionary Applications. 9 (9), 1165-1178 (2016).
- Weizman, E., Levy, O. The role of chromatin dynamics under global warming response in the symbiotic coral model Aiptasia. Communications Biology. 2, 282(2019).
- Liew, Y. J. Epigenome-associated phenotypic acclimatization to ocean acidification in a reef-building coral. Science Advances. 4 (6), eaar8028(2018).
- Liew, Y. J. Intergenerational epigenetic inheritance in reef-building corals. Nature Climate Change. 10 (3), 254-259 (2020).
- Liew, Y. J., et al. Identification of microRNAs in the coral Stylophora pistillata. PLoS One. 9 (3), e91101(2014).
- Huang, C., et al. Identification of long non-coding RNAs in two anthozoan species and their possible implications for coral bleaching. Scientific Reports. 7, 5333(2017).
- Rodriguez-Casariego, J. A., et al. Coral epigenetic responses to nutrient stress: Histone H2A.X phosphorylation dynamics and DNA methylation in the staghorn coral Acropora cervicornis. Ecology and Evolution. 8 (23), 12193-12207 (2018).
- Bodega, B., et al. A cytosolic Ezh1 isoform modulates a PRC2-Ezh1 epigenetic adaptive response in postmitotic cells. Nature Structural & Molecular Biology. 24 (5), 444-452 (2017).
- Jordán-Pla, A., Visa, N. Considerations on experimental design and data analysis of chromatin immunoprecipitation experiments. Chromatin Immunoprecipitation., edited by Visa, N., Jordán-Pla, A. Visa, N., Jordán-Pla, A. , Humana Press. Totowa, NJ. 9-28 (2017).
- ENCODE. Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP. , Stanford University. Available from: https://www.encodeproject.org/documents/ (2023).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biology. 10, R25(2009).
- Feng, J., Liu, T., Qin, B., Zhang, Y., Liu, X. S. Identifying ChIP-seq enrichment using MACS. Nature Protocols. 7, 1728-1740 (2012).
- Howe, F. S., Fischl, H., Murray, S. C., Mellor, J. Is H3K4me3 instructive for transcription activation. BioEssays. 39 (1), e201600095(2017).
- Zhang, Z., Shi, L., Dawany, N., Kelsen, J., Petri, M. A., Sullivan, K. E. H3K4 tri-methylation breadth at transcription start sites impacts the transcriptome of systemic lupus erythematosus. Clinical Epigenetics. 8, 14(2016).
- Li, X. High-resolution mapping of epigenetic modifications of the rice genome uncovers interplay between DNA methylation, histone methylation, and gene expression. The Plant Cell. 20, 2-276 (2008).
- Haring, M. Chromatin immunoprecipitation: optimization, quantitative analysis and data normalization. Plant Methods. 3, 11(2014).
- Landt, S. G. ChIP-seq guidelines and practices of the ENCODE and modENCODE consortia. Genome Research. 22 (9), 1813-1831 (2012).
- Raha, D., Hong, M., Snyder, M. ChIP-Seq: A method for global identification of regulatory elements in the genome. Current Protocols in Molecular Biology. Chapter 21, Unit 21.19.1-Unit 21.19.14 (2010).
- Roy, S., Morse, D. A full suite of histone and histone modifying genes are transcribed in the dinoflagellate Lingulodinium. PLoS One. 7 (4), e34340(2012).
- Bayer, T., et al. Symbiodinium transcriptomes: Genome insights into the dinoflagellate symbionts of reef-building corals. PLoS One. 7 (4), e35269(2012).
- Marinov, G. K., Lynch, M. Diversity and divergence of dinoflagellate histone proteins. G3 Genes, Genomes, Genetics. 6 (2), 397-422 (2016).
재인쇄 및 허가
