여기에서는 당뇨병성 신병증 치료에서 Jiawei Shengjiang San(JWSJS)의 작용 메커니즘을 탐구하기 위해 네트워크 약리학 및 분자 도킹 기술을 설명하는 프로토콜을 제시합니다.
방법 논문
당뇨병성 신병증의 쥐 모델에 대한 Jiawei Shengjiang San의 길항 효과: EGFR/MAPK3/1 신호 경로와 관련
* These authors contributed equally
이 논문에서
요약
초록
우리는 당뇨병성 신증을 치료하고 네트워크 약리학을 배포하기 위한 Jiawei Shengjiang San(JWSJS)의 조치를 뒷받침하는 메커니즘을 탐구하는 것을 목표로 했습니다. 네트워크 약리학 및 분자 도킹 기법을 사용하여 JWSJS의 활성 성분과 표적을 예측하고 세심한 "약물-성분-표적" 네트워크를 구축했습니다. 유전자 온톨로지(Gene ontology, GO) 및 교토 유전자 및 게놈 백과사전(Kyoto encyclopedia of genes and genomes, KEGG) 농축 분석을 활용하여 JWSJS의 치료 경로와 표적을 식별했습니다. 분자 도킹 검증을 위해 Autodock Vina 1.2.0을 배포하고, 도킹 결과를 확인하기 위해 100ns의 분자 역학 시뮬레이션을 수행한 후 in vivo 동물 검증을 수행했습니다. 그 결과, JWSJS는 당뇨병성 신증과 교차하는 227개의 표적을 공유하여 단백질-단백질 상호작용 네트워크 토폴로지를 구축한 것으로 밝혀졌습니다. KEGG 농축 분석은 JWSJS가 지질 및 죽상동맥경화증, PI3K-Akt 신호전달 경로, 세포사멸 및 HIF-1 신호전달 경로를 조절하여 당뇨병성 신병증을 완화하며, 미토겐 활성화 단백질 키나아제 1(MAPK1), MAPK3, 표피 성장 인자 수용체(EGFR) 및 세린/트레오닌 단백질 키나아제 1(AKT1)을 여러 경로의 집합적 표적으로 식별함으로써 당뇨병성 신병증을 완화하는 것으로 나타났습니다. 분자 도킹은 JWSJS의 핵심 구성 요소(퀘르세틴, 팔미톨레산, 루테올린)가 수소 결합을 통해 세 가지 핵심 대상(MAPK1, MAPK3 및 EGFR)과의 형태를 안정화할 수 있다고 주장했습니다. 생체 내 검사에서 JWSJS로 인한 체중 증가와 당혈청 단백질(GSP), 저밀도 지단백 콜레스테롤(LDL-C), 우리딘 삼인산(UTP) 및 공복 혈당(FBG) 수치의 감소가 눈에 띄게 나타났습니다. 헤마톡실린 및 에오신(HE) 및 주기적 산-쉬프(PAS) 염색과 결합된 전자 현미경은 p-EGFR, p-MAPK3/1 및 BAX의 다양한 감소와 치료된 쥐의 신장 조직에서 BCL-2 발현의 증가를 나타내며 다양한 범위로 신장 손상을 완화하는 데 있어 각 치료군의 잠재력을 강조했습니다. 결론적으로, 이러한 통찰은 당뇨병성 신증에 대한 JWSJS의 보호 효능이 EGFR/MAPK3/1 신호전달 경로의 활성화를 억제하고 신장 세포 사멸을 완화하는 것과 관련이 있을 수 있음을 시사합니다.
서론
당뇨병(Diabetes mellitus, DM)은 여러 시스템에 영향을 미치는 만성 질환으로, 당뇨병성 신증(DN), 망막병증, 신경병증 등 지속적인 고혈당증으로 인해 다양한 합병증을 유발할 수 있다1. DN은 말기 신장 질환(ESRD)의 약 30%-50%를 차지하는 DM의 심각한 합병증입니다2. 임상적 증상은 미세알부민뇨증으로, 사구체 부피 증가, 간막 기질 증식, 두꺼워진 사구체 기저막 등을 특징으로 하는 ESRD로 진행될 수 있다3. DN의 발병 기전은 복잡하며 완전히 밝혀지지 않았습니다. 혈당을 낮추고, 혈압을 조절하고, 단백뇨를 줄이는 등의 임상적 방법이 주로 진행을 지연시키는 데 사용되지만 효과는 일반적입니다.
현재로서는 DN4를 치료하는 특정 약물이 발견되지 않았습니다. 그러나 수 세기 동안 한약은 당뇨병과 그 합병증을 치료하는 데 널리 사용되어 왔으며5 환자의 임상 증상을 개선하고 질병 진행을 지연시켰다. multi-component, multi-target, multi-pathway effect의 장점으로 인해 한약은 DN6 치료를 위한 혁신적인 약물 공급원이 될 것으로 기대됩니다.
"Shengjiang san"은 명나라 의사 Gong Tingxian의 "Wanbing Huichun"에서 유래했습니다. "Neifu Xianfang"이라는 책은 Bombyx Batryticatus, Cicadae Periostracum, Curcumaelongae Rhizoma 및 Radix Rhei et Rhizome의 사용을 설명합니다. 이를 바탕으로 Hedysarum Multijugum Maxim, Epimrdii Herba, Smilacis Glabrae Rhixoma를 첨가 한 후 명료성을 높이고, 탁도를 낮추고, 정체 된 "열"을 방출하고, "기"와 혈액을 조화시키는 성강산의 기능을 발휘합니다 7,8. 또한 비장을 강화하고 신장을 강화하는 효과를 증가시킵니다. 그 효능은 "생명 에너지"의 결핍, 과도한 건조 및 "열", 트리플 에너자이저 7,8에 의한 "열"의 정체로 인해 DN의 "기"가 상승 및 하강하는 병인과 일치합니다.
이전 임상 연구에 따르면 중국 약초가 DM과 그 합병증을 치료하는 데 사용되었으며, jiawei shengjiang san(JWSJS)은 혈당과 지질을 조절하고 단백뇨를 줄이며 초기 DN7 환자의 임상 효능을 크게 향상시키는 것으로 나타났습니다. DN 쥐의 요로 단백질과 혈당 수치를 낮추는 JWSJS의 능력은 이전 연구에서 확인되었습니다. 이는 TXNIP/NLRP3 및 RIP1/RIP3/MLKL 신호전달 경로를 억제하고, podocyte pyroptosis를 감소시키며, DN rats의 신장 조직에서 괴사성 세포사멸을 예방하여 신장 보호를 달성함으로써 발생하는 것으로 보인다9. JWSJS는 네프린 및 포도신 단백질 발현을 상향 조절하고 DN 랫트의 족세포 손상을 줄일 수 있으며, 이는 JWSJS가 족세포 손상에 대한 억제 효과가 있음을 시사합니다. JWSJS는 안전성 프로필이 우수하고 특정 항DN 효과가 있지만 이에 대한 연구는 거의 없으며 이 연구는 주로 발열증 및 괴사성 세포사멸에 중점을 둡니다. 문헌이 충분히 깊거나 체계적이지 않다10. 우리의 이전 연구 결과는 JWSJS가 DN 쥐에서 단백뇨를 줄이고 신장 손상을 완화할 수 있음을 확인했다7. 그러나 DN 치료를 위한 JWSJS의 메커니즘에 대한 연구는 소수에 불과하며 이러한 연구는 깊이와 체계화가 부족합니다. 따라서 본 연구는 네트워크 약리학을 이용하여 DN 치료를 위한 JWSJS의 분자 물질 및 작용 기전을 분석하고 향후 연구를 위한 탄탄한 기반을 제공하는 것을 목표로 합니다.
네트워크 약리학은 화학정보학, 네트워크 생물학, 생물정보학 및 약리학을 포함하여 약물 작용의 메커니즘을 연구하는 새로운 방법입니다11,12. 네트워크 약리학 연구 설계는 중국 전통 의학의 전체론적 개념13,14과 매우 유사하며, 한약의 메커니즘을 연구하는 중요한 방법입니다. 분자 도킹은 분자 간의 상호 작용을 연구하고 분자의 결합 패턴과 친화도를 예측할 수 있습니다. 분자 도킹(molecular docking)은 컴퓨터 보조 약물 연구 분야에서 중요한 기술로 부상했다15. 따라서 본 연구는 네트워크 약리학 및 분자 도킹 방법을 통해 JWSJS-DN-target 상호 작용 네트워크를 구축하여 JWSJS를 사용한 DN 치료에 대한 추가 연구를 위한 신뢰할 수 있고 이론적인 기반을 제공합니다.
프로토콜
모든 동물은 미국 국립 연구 위원회(US National Research Council)의 실험동물 관리 및 사용 지침(US National Research Council Guide for the Care and Use of Laboratory Animals,8th Edition)에 따라 유지 및 사용되었으며, ARRIVE 가이드라인16,17에서 권장하는 대로 보고되었습니다. 이 연구는 중국 국가연구위원회(China National Research Council)의 실험동물 관리 및 사용 가이드(China National Research Council Guide for the Care and Use of Laboratory Animals)에 따라 수행되었으며 허베이 중의과대학(Hebei University of Chinese Medicine, DWLL2019030)의 동물 윤리 위원회(Animal Ethics Committee)의 승인을 받았습니다.
1. JWSJS 유효성분 및 목표 수집
- 의약 조성 JWSJS(Hedysarum Multijugum Maxim, Epimrdii Herba, Smilacis glabrae rhixoma, radix rhei et rhizome, Curcumaelongae rhizoma)를 전통 한약 시스템 약리학 데이터베이스 및 분석 플랫폼(TCMSP) 데이터베이스(18)에 입력하여 모든 화학 성분을 검색합니다. ADME(Absorption, Distribution, Metabolism, and Excretion)에 따르면 구강 생체이용률(OB) ≥ 30%, 약물 유사 특성(DL) ≥ 0.18 화학 성분19,20을 스크리닝합니다.
- TCMSP 데이터베이스(https://old.tcmsp-e.com/ tcmsp.php, 버전 2.3)를 사용하여 화학 성분의 해당 대상을 검색합니다.
- Bombyx Batryticatus 및 Cicadae Periostracum의 활성 성분은 Traditional Chinese Medicine and Chemical Composition 데이터베이스를 검색하여 얻을 수 있습니다21.
- 실험적 신뢰성을 위해 이 연구에 대한 CAS(Chemical Abstracts Service) 번호가 있는 화합물을 선택하십시오. 그런 다음 PubChem(https://pubchem.ncbi.nlm.nih.gov/, 2021년 업데이트)22에서 활성 성분의 2D 구조 다이어그램(.sdf 형식)을 다운로드합니다.
- SwissADME(www.swissadme.ch, 2021년 업데이트)23를 사용하여 ≥ 2개 항목이 '예'인 약물 유사성으로 위장(GI) 흡수율이 높은 성분(Lipinski, Ghose, Veber, Egan, Muegge)을 스크리닝합니다. 이로 인해 Bombyx Batryticatus 와 Cicadae Periostracum의 활성 구성 요소가 생겼습니다.
- 표적 단백질 예측을 위해 이를 TCMSP 데이터베이스로 가져옵니다(https://old.tcmsp-e.com/tcmsp.php, 버전. 2.3)18.
- UniProt 데이터베이스(https://www.uniprot.org, 2021년에 업데이트됨)의 대상을 검토 됨으로 설정하고 종을 Human24로 설정하여 표준화합니다.
2. DN 대응 대상 수집
- GeneCards(https://www.genecards.org/, 버전 5.1)25, OMIM(https://omim.org/, 2021년 업데이트)26, TTD(http://db.idrblab.net/ttd/, 2021년 업데이트)27, PharmGKB(https://www.pharmgkb.org/, 2021년 업데이트)28 및 DrugBank 데이터베이스(https://www.drugbank.ca/, 2021년 업데이트)29를 통해 당뇨병성 신병증을 검색합니다. 결합 및 중복 제거 후 DN의 대상을 얻습니다.
- JWSJS와 DN의 공통대상 스크리닝 및 네트워크 구축
- R 4.2.0 소프트웨어를 사용하여 JWSJS 및 DN의 공통 대상을 스크리닝하고 벤 다이어그램을 그립니다. JWSJS의 활성 성분 및 잠재적 표적을 Cytoscape 3.8.0 소프트웨어30 으로 가져와 약물, 성분, 표적 및 질병 간의 연결을 시각화하는 약물-성분-표적 네트워크 다이어그램을 구축합니다.
- 노드의 크기가 degree 값의 크기를 반영하도록 하며, degree 값이 높을수록 노드가 네트워크에서 더 중요하다는 것을 나타냅니다.
- PPI 단백질-단백질 상호작용 네트워크 구축 및 핵심 타겟 스크리닝
- 단백질-단백질 상호작용(PPI) 네트워크31을 구축하기 위해 온라인 플랫폼 STRING(버전:11.5)을 사용하여 교차하는 유전자를 분석한다. 다중 단백질 분석 모드를 사용하여 네트워크를 구성하고, 종을 호모 사피엔스로 설정하고, 필요한 최소 상호 작용 점수를 >0.930으로 설정합니다.
- Cytoscape 3.8.0을 사용하여 네트워크를 토폴로지적으로 분석하고, 각 노드에 대한 BC(betweenness centrality), CC(closeness centrality), DC(degree centrality), EC(Eigenvector centrality), LAC(Local Average Connectivity-based Method) 및 NC(Network Centrality) 값을 계산하고, 모든 값이 중앙값32보다 큰 6개의 노드를 선별합니다. DN 요법을 위한 JWSJS의 핵심 표적을 식별하기 위해 이 과정을 여러 번 반복합니다.
- GO 기능 분석 및 KEGG 경로 농축 분석
- GO 및 KEGG 농축 분석을 수행하여 JWSJS 및 DN의 공통 표적과 관련된 생물학적 과정, 분자 기능, 세포 구성 요소 및 경로를 식별합니다.
- org를 사용합니다 . Hs.eg.db 패키지를 사용하여 교차 대상의 ID를 가져오고 clusterProfiler, org를 사용합니다. 농축 분석을 위한 Hs.eg.db, Enrichplot 및 ggplot2 패키지33.
- P-값이 0.05로 보정된 상위 10개의 생물학적 적중< 대한 기능적 GO 농축 분석을 스크리닝하고 KEGG 분석을 위해 농축이 가장 높은 상위 30개 경로를 선택합니다.
3. 분자 도킹
- AutoDock Vina 소프트웨어를 사용하여 JWSJS 핵심 구성 요소와 DN요법 34의 핵심 타겟 간에 분자 도킹을 수행합니다.
- PubChem 데이터베이스에서 검색하여 JWSJS 핵심 구성 요소의 2D 구조에 대한 sdf 파일을 가져옵니다. ChemBio 3D Ultra14.0 소프트웨어를 사용하여 3D 구조를 생성 및 최적화하고, mol2 형식으로 저장하고, 리간드 파일로 사용할 수 있습니다.
- RCSB(Research Collaboratory for Structural Bioinformatics) PDB(Protein Data Bank) 데이터베이스에서 핵심 표적의 3D 구조의 pdb 형식을 찾아 다운로드합니다. Pymol 2.4.0 소프트웨어를 사용하여 단백질 구조에서 물 분자와 리간드를 제거하고 pdb 형식으로 저장한 다음 수용체 파일로 사용합니다.
- 수소화를 위해 수용체 pdb 파일을 AutoDockTools 1.5.7 소프트웨어로 가져오고, 수용체 단백질과 소분자 리간드를 모두 pdbqt 형식으로 변환하고, 간격 계수가 1로 설정된 수용체 단백질의 활성 포켓을 설정합니다.
- 분자 도킹을 위해 Autodock vina 1.2.0을 사용하고 결합 에너지를 계산하십시오. 친화도가 0< 경우 분자가 단백질과 자발적으로 결합한다는 점을 고려하면 친화도의 절대값이 클수록 단백질 간의 결합이 더 안정적임을 나타냅니다. 마지막으로 Pymol 2.3.0 및 LigPlot 2.2.5 소프트웨어를 사용하여 도킹 결과를 시각화합니다.
4. 분자 역학 시뮬레이션
- Desmond 소프트웨어를 사용하여 MD 시뮬레이션을 수행하려면 다음 단계를 따르십시오.
- 단백질-리간드 상호 작용의 안정성과 유연성을 평가하기 위해 2019-1 아카데믹 버전의 Desmond 소프트웨어를 사용합니다.
- 도킹 연구에서 파생된 가장 유망한 리간드 복합체 3종에 대한 분자 역학(MD) 조사를 수행합니다. 0.15M NaCl의 SPC 수성 환경에서 시뮬레이션을 수행하여 생리학적 이온 조건을 복제합니다. 시뮬레이션 박스는 용질이 경계에서 최소 10 Å 떨어져 있도록 설계되었습니다. 카운터이온은 시스템의 전하를 중화하기 위해 도입됩니다. 또한 OPLS 2005 힘 필드의 매개변수에 의해 제어되는 주기적 경계 조건이 적용됩니다.
- Desmond 기본 매개변수를 사용하여 100ps에 대한 에너지 최소화 단계를 시작합니다.
- 모든 생산 MD 시스템에서 Nosé-Hoover 체인 및 Martyna-Tobias-Klein 방법론을 통해 26.85°C(300K) 및 1.01325bar에서 온도 및 압력 안정화를 보장합니다. 분자 역학 시뮬레이션은 총 100ns의 기간 동안 2fs의 시간 단계로 실행되어 100ps마다 원자 좌표를 기록합니다.
- 시뮬레이션 상호 작용 다이어그램(SID) 모듈을 엽니다. 시뮬레이션 결과 데이터 파일을 모듈에 불러옵니다.
- 모듈에서 사용할 수 있는 옵션(예: RMSD(제곱 평균 제곱근 편차), RMSF(제곱 평균 제곱근 변동), 수소 결합 분석 등)에서 원하는 분석 유형을 선택합니다. 선택한 분석 유형에 필요한 추가 매개변수를 지정합니다.
- Analyze(분석) 또는 Start(시작) 버튼을 클릭하여 분석을 실행합니다.
- 분석이 완료되면 SID 모듈 인터페이스 내에서 결과를 보고 해석합니다. 추가 사용 또는 프리젠테이션을 위해 필요한 경우 결과를 내보냅니다.
5. 동물실험 검증
- 동물과 실험 설계
참고: 이 연구는 SPF 등급 동물 생산 시설에서 얻은 75마리의 수컷 Sprague-Dawley 쥐를 대상으로 했으며, 생후 8주령의 체질량은 150g ± 20g(동물 생산 증명서 번호 SCXK[Hebei] 2018-004)이었습니다.- SPF 수준의 동물 실험실에 쥐를 수용하고 적응 섭식 1주일 후 무작위로 정상 그룹과 모델 그룹으로 나눕니다. 정상 그룹에는 일반 식단을 제공하고 모델 그룹에는 고설탕 및 고지방 식단을 제공합니다. 4 주 후에는 쥐를 금식시키되 12 시간 동안 물을 빼앗지 마십시오.
- 모델군에 스트렙토조토신(STZ; 35mg·kg-1)의 복강내 주사를 주입합니다. 72시간 후 꼬리 정맥 혈액 샘플링을 통해 혈당 수치를 테스트합니다. 공복 혈당 수치가 ≥16.7mmol· L-1, 성공적인 당뇨병 모델로 확인하십시오.
- 쥐 신장의 조직병리학적 변화를 관찰하여 성공적인 DN 모델을 확인합니다.
- 성공적으로 복제된 모델을 4.37g/kg, 8.73g/kg 및 17.46g/kg(임상적 등가 용량의 3.2, 6.3 및 12.6배에 해당)으로 JWSJS를 받은 모델 그룹과 이르베사르탄 그룹(0.014g/kg)으로 무작위로 나눕니다. 각 그룹은 10마리의 쥐로 구성되었습니다. 하루에 한 번 경구 투여를 통해 모든 약물을 투여하십시오. 이 투여 요법을 4주 동안 일관되게 유지하십시오.
- 1% 펜토바르비탈 나트륨(50mg/kg)의 복강 내 주사를 사용하여 쥐를 마취하고 페달 철수 반사의 상실로 적절한 마취를 확인합니다. 안락사 전에 복부 대동맥에서 혈액 샘플을 채취합니다.
- 150mg/kg의 용량으로 펜토바르비탈 나트륨의 복강 내 주사를 사용하여 쥐를 안락사시킨 후 신장을 채취합니다.
참고: 동물들은 안락사에 대한 가장 업데이트된 미국 수의학 협회(AVMA) 지침(https://www.avma.org/resources-tools/avma-policies/avma-guidelines-euthanasia-animals)에 따라 인도적으로 안락사되었습니다.
- 신장 조직학 분석
참고 : 신장 조직을 4 % 파라 포름 알데히드에 고정하고 48 시간 후에 에탄올에서 탈수했습니다. 절편은 파라핀에 박혀 있었다. 절편을 헤마톡실린 및 에오신(HE) 및 주기적 산-쉬프(PAS) 염색을 위해 얇은(4μm) 조각으로 절단하고 광학 현미경으로 신장 조직학의 형태학적 변화를 관찰했습니다.- HE 염색:
- 탈왁스 및 수분 공급: 조직 절편을 크실렌 I 및 II(각 10분), 절대 알코올 I 및 II(각 3분)로 처리합니다. 그런 다음 조직 절편을 95%, 90%, 80% 및 70% 에탄올(각 2분)에 담근 다음 증류수를 5분 동안 세척합니다.
- 조직 절편을 헤마톡실린 염색제에 5분 동안 놓고 5초 동안 염산 알코올로 절편을 분화합니다.
- 섹션을 eosin 염색 용액에 3분 동안 넣습니다.
- 탈수, 청소 및 장착: 다양한 에탄올(70%,80%,90%,95% 및 절대 에탄올)에서 다양한 시간에 섹션을 탈수한 다음 크실렌 I 및 II로 청소한 다음 중성 검으로 장착합니다.
- PAS 염색:
- 5.2.1 단계에 설명 된 탈왁스 단계를 따르고 ~ 8 분 동안 주기적인 산성 염색 용액으로 섹션을 처리합니다.
- 절편을 증류수로 2분 동안 헹구고 어두운 곳에서 15분 동안 Schiff 시약으로 염색합니다.
- Schiff 시약으로 처리한 후 단면을 수돗물로 10분 동안 세척합니다.
- 헤마톡실린을 사용하여 절편을 1분 동안 대조염색한 다음 HCl-알코올로 30초 동안 분화합니다. 단면을 수돗물로 5분 동안 다시 세척하여 핵을 파란색으로 착색합니다.
- 전자 현미경:
- 샘플을 2.5% 글루타르알데히드에 3시간 동안 고정한 다음 PBS에서 3시간 동안 헹굽니다. 또한, 샘플을 1% 오스믹산으로 3시간 동안 처리한 다음 PBS에서 3시간 동안 다시 헹굽니다.
- 아세톤으로 끝나는 일련의 점진적인 알코올 목욕을 통해 탈수합니다(각 단계는 총 약 2시간 동안 지속됨).
- 에폭시 프로판과 에폭시 수지(1:1)의 혼합물로 실온(RT)에서 2시간 동안 샘플에 침투시킨 다음 37°C에서 순수 에폭시 수지를 추가로 2시간 동안 침투시킵니다.
- 그런 다음 절단하기 전에 36시간 동안 점점 더 높은 온도에서 샘플을 경화하고 경화시킵니다. 이 공정은 조직이 수지로 완전히 침투하도록 한 다음 전자 현미경을 위해 얇게 썰 수 있도록 경화시킵니다.
- 3% 우라닐 아세테이트와 납산으로 이중 염색하고 15분 이내에 전자 현미경으로 샘플을 관찰하고 사진을 찍습니다.
참고: 투과 전자 현미경(TEM) 설정은 고대비 모드(Zoom-1 HC-1)에서 7000배 확대, TEM 시스템에서 80.0kV의 가속 전압입니다.
- HE 염색:
- 면역조직화학(Immunohistochemistry)
- 탈왁스: 조직 절편을 크실렌 I과 II에 각각 10분 동안 놓습니다.
- 재수화: 탈랍된 조직 부분을 절대 에탄올 I과 II에 각각 3분 동안 연속적으로 배치한 다음 95, 90%, 80% 및 70% 에탄올을 각각 2분 동안 배치하여 재수화합니다.
- 항원 채취: 조직 절편을 고압 하에서 0.1M 구연산염-구연산 완충 용액에 약 5분 동안 담근 다음 RT로 냉각합니다.
- 차단: 항체의 비특이적 결합을 방지하기 위해 약 37°C에서 30분 동안 5% 정상 염소 혈청으로 조직 절편을 배양하여 차단합니다.
- 1차 항체 배양: 1차 항체 p-EGFR(1:200 희석) 및 p-MAPK3/1(1:200 희석)을 조직 절편에 첨가하고 가습 챔버 내에서 4°C에서 밤새 배양합니다.
- 2차 항체 배양: PBS로 절편을 3회 세척한 다음 비오틴 표지 2차 항체(제조업체의 지침에 따라 PBS에 희석)를 절편에 추가하고 37°C에서 30분 동안 배양합니다.
- 고추냉이 과산화효소 접합 스트렙타비딘 작업 용액을 37°C에서 조직 절편에 적용한 후 인산염 완충 식염수(PBS)를 사용하여 세 번 세척합니다.
- DAB 현상을 위해 DAB 현상 용액으로 섹션을 배양한 다음(RT의 어두운 곳에서 3분) 증류수로 헹굽니다. DAB는 산화 시 갈색으로 변하는 고추냉이 과산화효소(HRP)의 발색체 기질로 작용합니다.
- 약 2분 동안 카운터염색을 위해 헤마톡실린을 사용하고 5초 동안 1% 염산 알코올로 섹션을 구별한 다음 흐르는 물에 씻어 파란색으로 변합니다.
- 저농도에서 고농도까지 일련의 에탄올에 섹션을 연속적으로 배치하고 크실렌 I 및 II를 투명하게 하여 탈수하고 중성 검으로 섹션을 장착합니다.
참고: 이 절차는 하룻밤 동안의 1차 항체 배양을 포함하여 약 18-24시간이 소요됩니다. - 각 단면에 대해 3개의 시야(200×)를 무작위로 선택하고 이미지 분석 소프트웨어를 사용하여 단면의 염색 결과를 분석합니다. Image Pro Plus 6.0 소프트웨어는 아래 단계에 따라 사용되었습니다.
- 먼저 섹션의 이미지를 소프트웨어로 가져옵니다.
- 밀도 보정: 정확한 결과를 얻으려면 밀도 보정을 수행합니다.
- Measure > Calibration > intensity > new > std. optional density > options(선택적 밀도 옵션) > image(이미지)로 이동합니다. 그런 다음 이미지의 빈 영역을 클릭하여 배경 값을 기록하고 확인을 클릭하여 확인합니다.
- 측정 파라미터 설정: 측정 파라미터를 설정하여 면적 및 통합 광학 밀도(IOD)를 계산합니다.
- Measure > Count/Size > Measure를 클릭하고 측정값을 선택합니다>. Area(100)와 IOD를 선택한 후 OK를 클릭합니다.
- Options( 옵션)로 이동하여 Sample, 4-Connect Pre-Filter(샘플, 4-Connect Pre-Filter)에서 Dark Background(어두운 배경) 를 선택하고 OK(확인)를 클릭합니다.
- 색상 선택: 양성도를 정확하게 결정하려면 색상을 선택하여 얼룩진 영역과 염색되지 않은 영역을 감지합니다.
- 히스토그램 기반 > HSI> 색상 선택을 클릭합니다. S는 변경하지 않고 I는 0에서 배경 값 사이로 유지하면서 그림에 따라 H 값을 조정합니다. 그런 다음 닫기를 클릭하여 확인합니다.
- 데이터 수집 및 계산: 이름, Area(합계) 및 IOD(Sum)가 선택된 레이아웃> Measure > Data Collector 클릭하여 데이터 수집 및 계산을 수행합니다. 그런 다음 Count > Collect Now > Data List를 클릭하여 추가 분석 또는 저장을 위해 데이터를 내보냅니다.
참고: 그 결과 IOD/Area 측면에서 각 섹션의 단백질 발현을 반정량적으로 측정했으며, 이는 분석된 전체 면적에 비해 얼마나 많은 단백질이 존재하는지 나타냅니다.
- 웨스턴 블로팅
- 신장 조직을 구하여 조각으로 자릅니다. 이 조각을 1.5mL 원심분리기 튜브에 넣고 사전 냉각된 단백질 용해 용액(50mM Tris[pH 7.4],150mM NaCl, 1% Triton X-100, 1% 데옥시콜레이트 나트륨, 0.1% 도데실 설페이트나트륨[SDS])을 넣고 균질화합니다.
- 얼음 위에 30분 동안 두었다가 13400 x g 에서 4 °C에서 20분 동안 원심분리합니다. 결과 샘플을 -80 °C 냉동고에 보관하십시오.
- Bradford 방법을 사용하여 단백질을 정량화합니다.
- 시약과 증류수를 1:4의 비율로 혼합하여 Coomassie Brilliant Blue 작업 용액을 준비합니다.
- blank, standard protein group 및 sample protein group의 세 가지 그룹을 설정합니다. 각 그룹에 Coomassie Brilliant Blue 작업 용액 3mL를 추가하고 블랭크 그룹에는 생리식염수를, 표준 그룹에는 표준 단백질을, 샘플 그룹에는 추출된 상층액 단백질을 추가합니다.
- 혼합물을 5분 동안 그대로 둔 후 자외선 분광 광도계를 사용하여 흡광도 값을 측정합니다.
- 단백질 농도(mg/mL) = (시료 흡광도 값/표준 튜브 흡광도 값) x 표준 단백질 농도 x 5 공식을 사용하여 시료 농도를 계산합니다.
- 각 단백질 샘플에 동일한 부피의 6x 로딩 버퍼를 추가합니다. 분취하기 전에 100°C에서 5분 동안 끓이고 나중에 사용할 때까지 -20°C 냉동고에 보관합니다.
- 표준 전기영동, 블로팅 및 블로킹을 수행합니다.
- 12% 분해능 겔을 사용하여 표준 SDS-폴리아크릴아미드 겔 전기영동(PAGE)을 수행합니다. 염료 전면이 겔 바닥에 도달할 때까지 적층 겔에 100V, 분해 겔에 120V의 일정한 전압을 적용합니다.
- 습식 전달 시스템을 사용하여 4°C의 냉장실에서 100V에서 2시간 동안 폴리비닐리덴 디플루오라이드(PVDF) 멤브레인으로 단백질을 전달합니다.
- 단백질 전달 후 RT에서 1시간 동안 TBST에 5% 무지방 우유로 멤브레인을 차단합니다.
- TBST에서 1차 항체 EGFR(1:2,000), p-EGFR(1:2,000), MAPK3/1(1:2,000), p-MAPK3/1(1:2,000), Bcl-2(1:2,000), BAX(1:2,000) 및 CAPDH(1:5,000)를 5% BSA로 희석합니다. 이 희석된 1차 항체를 추가하고 4°C에서 부드럽게 교반하면서 밤새 멤브레인을 배양합니다.
- TBST로 멤브레인을 3회 세척한 후 희석된 2차 항체(1:5,000)를 첨가한 후 1시간 동안 배양합니다. 색상 개발 후 ImageJ 소프트웨어를 사용하여 대상 대역의 정량 분석을 수행합니다.
- qPCR 분석
- 그룹화 : 샘플을 그룹에 할당합니다 - Control, DN, Irbesartan, JWSJS-L, JWSJS-M, JWSJS-H.
- RNA 추출: 조직 균질화 및 RNA 추출을 수행한 후 제조업체의 지침에 따라 클로로포름 첨가, 원심분리 및 RNA 침전을 수행합니다.
- RNA 침전 및 세척: RNA를 이소프로판올로 침전시키고 에탄올로 세척합니다.
- RNA 용해: RNA 펠릿을 건조시키고 DEPC 처리된 물에 녹입니다.
- cDNA 합성: 제조업체의 지침에 따라 특정 반응 혼합물을 사용하여 역전사를 수행합니다.
- qPCR 증폭: qPCR에 대해 GAPDH, MAPK3, MAPK1 및 EGFR에 대한 특정 프라이머를 사용하고 제조업체의 지침에 따라 증폭을 수행합니다.
프라이머 서열은 다음과 같았다.
갭디: F-5'-GCAAGTTCAACGGCACAG-3', R-5'-CTCGCTCCTGGAAGATGG-3';
MAPK3 : F-5'-AGATCTGTGATTTTGGCCT-3', R-5'-TCAATGGATTTGGTGTAGC-3';
MAPK1 : F-5'-CCTCAAGCCTTCCAACCTC-3', R-5'-GCCCACAGACCAAATATCA-3';
EGFR: F-5'-GGGGATGTGATTATTTCTG-3, R-5'-ATTTTGGTCTTTTGATTGG-3'.
6. 통계적 방법
- 적절한 소프트웨어(예: SPSS)를 사용하여 분석을 수행하고 측정된 데이터를 표준 편차의 평균± 나타냅니다. 데이터가 정규 분포 및 분산 균질성의 기준을 충족하는 경우 일원 분산 분석을 사용하여 그룹 간에 비교하고 Bonferroni 방법을 사용하여 다중 비교를 수행합니다.
- 분산이 동질적이지 않은 경우 다중 비교에 T2 검정을 사용합니다. P < 0.05를 통계적으로 유의한 것으로 간주합니다.
결과
프로토콜에 따라 OB 및 DL의 설정된 표준에 따라 스크리닝 및 중복 제거 후 분석을 통해 JWSJS의 90가지 활성 성분을 최종적으로 얻었습니다. 여기에는 20 종의 Hedysarum Multijugum Maxim, 23 종의 Epimrdii Herba, 15 종의 Smilacis Glabrae Rhixoma, 16 종의 Radix Rhei et Rhizome, 4 종의 Curcumaelongae Rhizoma, 15 종의 Cicadae Periostracum 및 6 종의 Bombyx Batryticatus 성분이 포함되었습니다. JWSJS에는 많은 활성 성분이 있기 때문에 20개만 나열되어 있습니다( 표 1 참조). 중복 제거 후, JWSJS의 활성 성분에 해당하는 396개의 타겟을 최종적으로 획득했습니다.
질병 관련 유전자를 탐색한 결과, 병합 및 중복 제거를 거쳐 최종적으로 3035개의 DN 관련 타겟 유전자를 얻을 수 있었습니다. DN의 해당 타겟을 약물의 활성 성분 타겟과 비교하고 분석했습니다. 교차로가 결정되어 JWSJS와 DN의 227 개의 교차로 목표가 생성되었습니다. 그런 다음 Wayne 다이어그램이 그려졌습니다( 그림 1A 참조). "약물-성분-표적" 네트워크 다이어그램은 Cytoscape 3.8.0 소프트웨어( 그림 1B 참조)를 사용하여 구축되었으며 토폴로지 분석이 수행되었습니다. 각 노드는 차수 값에 따라 높은 순위에서 낮은 순위로 순위가 매겨졌습니다. 상위 5개 의약품 성분은 퀘르세틴, 팔미톨레산, 루테올린, 캠페롤, 나린제닌이며, 상위 5개 표적은 PTGS2, PTGS1, NCoA2, AR 및 ESR1이었습니다.
다음으로, JWSJS 및 DN 교차 대상을 위한 PPI 네트워크(평균 각도 값이 17.4인 196개의 노드 및 1714개의 에지)가 개발되었습니다. 또한, DN 치료를 위한 JWSJS의 주요 표적이 될 수 있는 7개의 주요 표적은 MAPK14, TP53, MAPK3, MYC, HIF1A, ESR1 및 MAPK1의 세 가지 스크리닝 후에 얻어졌습니다( 그림 1C 참조).
그런 다음, DN 처리에서 JWSJS 타겟의 생물학적 특성을 추측하기 위해 GO 농축 분석을 수행했습니다. BP, CC 및 MF 중에서 상위 10개의 강화 항목이 그림 1D에 표시되어 있습니다. 그 결과, JWSJS는 멤브레인 래프트(membrane rafts) 및 멤브레인 마이크로도메인(membrane microdomains)에서 전사인자(transcription factor) 및 단백질 키나아제(protein kinase)와 결합하여 세포 증식, 분화 및 세포사멸(apoptosis)을 조절할 수 있으며, 이로 인해 DN에 대한 치료 효과를 얻을 수 있음을 보여줍니다. DN에서 JWSJS의 잠재적 작용 경로를 탐색하기 위해 참여 대상에 대해 KEGG 경로 농축 분석을 수행했습니다. 상위 30개의 농축 경로는 그림 1E에 표시되어 있습니다. 그 결과, JWSJS의 DN 치료는 주로 지질 및 죽상동맥경화증, PI3K-Akt 신호전달 경로, 화학적 발암, 간염, 전립선암, 세포사멸, HIF-1 신호전달 경로 및 TNF 신호전달 경로를 포함하는 181개의 신호전달 경로에 작용할 수 있음을 보여줍니다.
처음 30개의 KEGG 농축 경로의 표적을 더 자세히 탐색하기 위해 Cytoscape 3.8.0 소프트웨어를 사용하여 JWSJS 처리된 DN에 대한 KEGG 신호 전달 경로 관계 네트워크 맵을 구축했습니다. MAPK1, MAPK3, EGFR 및 AKT1은 함께 작용하는 여러 경로의 표적인 것으로 밝혀졌으며( 그림 1F 참조), 이러한 단백질이 DN에 대한 JWSJS의 영향을 매개하는 데 중심적인 역할을 할 수 있음을 시사합니다.
DN 치료에서 JWSJS의 잠재적 표적을 추가로 검증하기 위해 다음으로 PPI 네트워크 및 KEGG 신호 전달 경로 네트워크에서 높은 degree 값을 가진 세 가지 주요 표적인 MAPK1, MAPK3 및 EGFR을 스크리닝했습니다. 이들은 DN 처리를 위해 JWSJS의 상위 3개 코어 구성 요소인 퀘르세틴, 팔미톨레산 및 루테올린과 분자적으로 도킹되었습니다. PDB ID를 선별하기 위한 조건은 다음과 같습니다: (1) 인간으로부터 유래해야 합니다. (2) 2.5Å≤ 구조적 해상도, 즉 가능한 한 작음; (3) 가능한 한 완전한 구조적 서열, 즉 구조 복합체는 소분자 리간드 정보를 가져야 합니다. (4) 결정질 pH 값은 인체의 정상적인 생리적 범위에 가능한 한 가까워야 한다(35). 마지막으로 MAPK1, MAPK3 및 EGFR의 PDB ID는 4QTA, 4QTB 및 7JXQ였습니다.
이 연구36에서 도킹 시스템에 대한 AutoDock 소프트웨어의 신뢰성을 확인하기 위해 먼저 MAPK1, Mapk3 및 EGFR의 세 가지 단백질을 재도킹했습니다. 3개의 표적 단백질의 원래 결정 구조에서 리간드 형태는 도킹 후 리간드와 중첩되었습니다(그림 2A). 그런 다음 도킹 후 리간드 형태와 원래 결정 구조 사이의 RMSD(Root-Mean-Square Deviation) 값을 계산했습니다. RMSD 값은 각각 1.129, 1.201 및 1.877 Å였으며 모두 2Å≤ 했습니다. 이는 도킹 방법이 신뢰할 수 있으며 다음 분자 도킹 검증에 사용될 수 있음을 보여주었습니다. 핵심 구성 요소의 억제 가능성을 비교하고 선언하기 위해 MAPK1, MAPK3 및 EGFR의 원래 리간드를 대조군으로 사용했습니다. 도킹 분석은 루테올린, 팔미톨레산, 퀘르세틴과 세 가지 핵심 표적 사이의 결합 에너지를 성공적으로 예측했습니다. 이들은 모두 음수였으며 -637 미만이었습니다. 표 2를 참조하십시오. 주목할 점은 루테올린과 MAPK1 사이의 분자 도킹이 캐비티 크기가 가장 크고 결합 에너지가 가장 낮다는 것입니다. 전반적으로 분자 도킹 결과는 루테올린, 팔미톨레산 및 퀘르세틴이 세 가지 핵심 표적에 대해 우수한 결합 활성을 갖는 것으로 나타났습니다(그림 2B,C).
RMSD는 기준 프레임과 관련하여 선택된 원자 그룹의 평균 변위 변화를 정량화하는 데 사용됩니다. 한편, RMSF는 단백질 사슬을 따라 국소적인 변화를 효과적으로 특성화합니다. RMSD 플롯(그림 2D)은 화합물 luteolin-MAPK1 복합체 및 quercetin-MAPK3 복합체의 RMSD 값이 5ns 이내에 안정화되었음을 보여줍니다. 루테올린-EGFR 복합체는 0-35 ns 범위의 변동하는 RMSD를 보여주었습니다. 이 값은 100ns MD 시뮬레이션이 끝날 때까지 35ns에서 안정화되었습니다. 모든 복합체는 100ns MD 시뮬레이션이 끝날 때 안정적으로 상호 작용했습니다. RMSF 값은 MD 시뮬레이션 궤적에서 평가되었습니다: 활성 부위의 원자와 변동이 최소화된 주쇄의 원자는 최소한의 구조적 변화를 의미하며, 이는 언급된 선도 화합물이 표적 단백질의 결합 포켓의 공동 내에 단단히 고정되어 있음을 시사합니다. RMSF 결과는 복잡한 구조에서 제한된 변동을 보여주었습니다.
마지막으로, 위의 결과를 생체 내에서 검증합니다. 먼저 모델군에서 랫트의 체중이 유의하게 감소하고 GSP, LDL-C, UTP 및 FBG가 유의하게 증가하는 것을 관찰했습니다(P < 0.05). 쥐의 체중은 모델 그룹에 비해 이르베사르탄 그룹과 각 JWSJS 그룹에서 유의하게 증가했다. GSP, LDL-C, UTP 및 FBG는 서로 다른 정도로 감소하였다(P < 0.05; 표 3 참조).
그런 다음 HE 염색을 통해 정상 그룹의 사구체가 정상 크기를 갖는 것으로 나타났습니다. 그들은 규칙적이고 구조가 명확했으며 매끄러운 기저막, 깔끔하게 배열된 신장 세뇨관, 염증성 세포 침투가 없었습니다. 모델 그룹에서, 사구체는 비대하고, 기저막은 두꺼워졌으며, 간막기질은 증가하였다. 간질은 염증 세포로 침투했습니다. 각 투여군의 병리학적 징후는 모델군과 비교하여 다른 정도로 완화되었다( 그림 3A 참조).
PAS 염색 결과 모델 그룹은 정상 그룹에 비해 사구체 부피가 증가하고 기저막이 두꺼워졌으며 간막 기질이 증가한 것으로 나타났습니다. 이러한 병리학적 징후는 각 투여군에 의해 유의하게 완화되었다( 그림 3B 참조). 투과 전자 현미경을 사용하여 모델 그룹의 사구체 기저막이 정상 그룹에 비해 두꺼워진 것을 발견했습니다. 간막기질(mesangial matrix)이 성장했고, 족세포(podocyte) 발 돌기가 광범위하게 융합되었다. 각 투여군에서 랫트의 현미경적 발현은 모델 투여군에 비해 다양한 정도로 완화되었다( 그림 3C 참조).
마지막으로, 총 EGFR, p-EGFR, MAPK3/1 및 p-MAPK3/1의 발현을 검출하여 JWSJS를 처리한 DN 랫트에서 변화 여부를 확인하였다. 모델군에서 총 EGFR과 MAPK3/1 발현량은 정상군에 비해 유의한 변화는 없었다. p-EGFR, p-MAPK3/1 및 BAX의 발현은 유의하게 증가하였고, BCL-2 발현은 유의하게 감소하였다. 모델 그룹에 비해 p-EGFR, p-MAPK3/1 및 BAX의 발현은 유의하게 감소했으며, BCL-2 발현은 각 투여 그룹의 쥐 신장 조직에서 다양한 정도로 유의하게 상향 조절되었습니다(그림 3D,E). 이 결과는 면역조직화학(immunohistochemistry)에 의해 확인되었다(그림 3F,G). 이 연구는 JWSJS가 p-EGFR, p-MAPK3/1, BAX 및 BCL-2 단백질의 발현을 조절하고 세포 사멸을 감소시킴으로써 DN 쥐의 신장을 보호할 수 있음을 보여주었습니다. 또한 qPCR을 사용하여 다양한 그룹에서 MAPK3, MAPK1 및 EGFR mRNA의 발현 수준을 평가했습니다. 그 결과, DN 그룹의 상대적 발현은 대조군과 Irbesartan, JWSJS-L, JWSJS-M 및 JWSJS-H 그룹에 비해 유의하게 높았습니다. 이 발견은 초기 결과를 더욱 확증합니다(그림 3H).
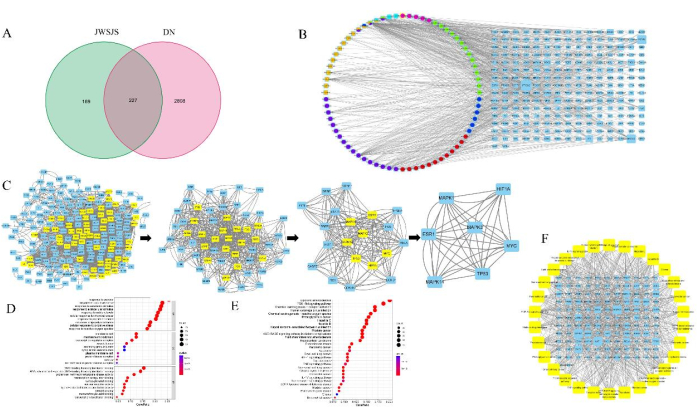
그림 1: Network Pharmacology는 당뇨병성 신증에서 JWSJS의 잠재적 표적과 신호 전달 경로를 명확히 했습니다. (A) JWSJS와 당뇨병성 신병증의 교차 표적의 벤 다이어그램. 녹색은 JWSJS 구성 요소의 치료 표적 수를 나타내고 보라색은 DN의 관련 표적 수를 나타냅니다. 교차하는 부분은 교차하는 대상의 수(즉, DN에 대한 JWSJS의 대상의 수)를 나타냅니다. (B) DN 치료에서 JWSJS의 "약물-성분-표적" 네트워크 다이어그램. 연한 파란색은 DN 처리를 위한 JWSJS의 관련 대상을 나타냅니다. Fuchsia는 Bombyx Batryticatus의 활성 성분을 나타냅니다. 녹색은 Hedysarum Multijugum Maxim의 활성 성분을 나타냅니다. 짙은 파란색은 Radix Rhei et Rhizome의 활성 성분을 나타냅니다. 빨간색은 Cicadae Periostracum의 활성 성분을 나타냅니다. 보라색은 Epimrdii Herba의 활성 성분을 나타냅니다. 노란색은 Smilacis Glabrae Rhixoma의 활성 성분을 나타냅니다. 하늘색은 Curcumaelongae Rhizoma의 활성 성분을 나타냅니다. (C) JWSJS 및 DN 교차 대상의 PPI 네트워크. (D) DN의 JWSJS 치료와 관련된 치료 표적 유전자의 온톨로지 분석을 통해 확인된 가장 중요한 10개 유전자. (E) DN의 JWSJS 치료와 관련된 치료 표적 유전자의 경로 분석을 통해 확인된 가장 중요한 30개의 유전자. (F) JWSJS에 의한 DN 치료에서 KEGG 신호 전달 경로의 관계 네트워크. 노란색 아이콘은 신호 전달 경로를 나타냅니다. 파란색 아이콘은 작업 대상을 나타냅니다. 더 큰 그래프는 더 많은 경로가 연결되어 있음을 의미합니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
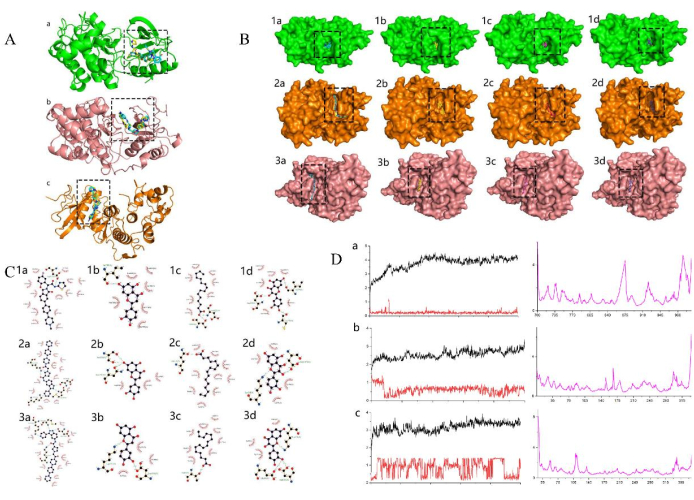
그림 2: 당뇨병성 신병증 치료에서 JWSJS의 분자 도킹 및 분자 역학 궤적 시각화. (A) 3개의 표적 단백질 복합체 7JXQ(a), 4QTA(b) 및 4QTB(c)의 원래 결정 구조에서 리간드의 형태를 도킹 후 리간드의 구조와 비교합니다. 녹색, 주황색 및 분홍색은 각각 EGFR, MAPK1 및 MAPK3 표적 단백질입니다. 금은 원래 리간드 분자이고 파란색은 도킹 후의 리간드 분자입니다. (B) 당뇨병성 신증 치료에서 JWSJS의 3D 분자 도킹 시각화. 녹색, 주황색 및 분홍색은 각각 표적 단백질 7JXQ, 4QTA 및 4QTB입니다. 도 1a-3a는 7JXQ, 4QTA 및 4QTB와 원래의 억제제(파란색)의 상호작용도를 나타낸다. 도 1b-3b는 7JXQ, 4QTA, 4QTB 및 루테올린(노란색)의 상호작용 다이어그램을 나타낸다. 1c-3c는 7JXQ, 4QTA, 4QTB 및 팔미톨레산(자홍색)의 상호 작용 다이어그램을 나타냅니다. 1d-3d는 7JXQ, 4QTA, 4QTB 및 퀘르세틴(보라색)의 상호 작용 다이어그램을 나타냅니다. (C) 당뇨병성 신증 치료에서 JWSJS의 2D 분자 도킹 시각화. 도 1a-3a는 7JXQ, 4QTA 및 4QTB와 원래의 억제제의 상호작용도를 나타낸다. 도 1b-3b는 7JXQ, 4QTA, 4QTB 및 루테올린의 상호작용 다이어그램을 나타낸다. 1c-3c는 7JXQ, 4QTA, 4QTB 및 팔미톨레산의 상호 작용 다이어그램을 나타냅니다. 1d-3d는 7JXQ, 4QTA, 4QTB 및 퀘르세틴의 상호 작용 다이어그램을 나타냅니다. (D) (a) 루테올린 및 표적 단백질 7JXQ, (b) 루테올린 및 표적 단백질 4QTA, (c) 퀘르세틴 및 표적 단백질 4QTB 복합체의 분자 역학 궤적에 대한 RMSD 및 RMSF 분석. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
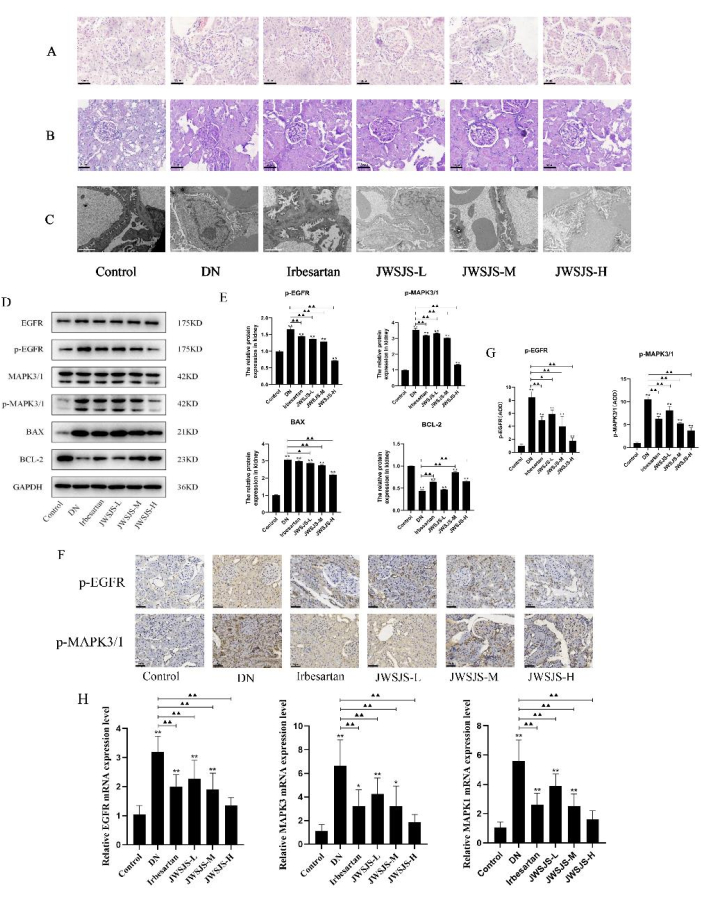
그림 3: JWSJS는 신장 손상을 완화하고 EGFR/MAPK3/1 신호 전달 경로 활성화 를 억제하는 in vivo 실험. (A) HE 염색 및 (B) 다른 그룹의 쥐 신장 조직의 주기적 acid-Schiff(PAS) 염색(확대, 200x; n = 10). (C) 다양한 쥐 그룹에서 신장 조직의 투과 전자 현미경 (확대, 5000x; n = 3). (D) 당뇨병 환자의 쥐 신장 조직에서 웨스턴 블로팅(western blotting)을 통한 EGFR, p-EGFR, MAPK3/1, p-MAPK3/1, BAX 및 BCL-2. (E) p-EGFR, p-MAPK3/1, BAX 및 BCL-2 발현의 통계적 분석. (F) 6개 그룹에서 p-EGFR 및 p-MAPK3/1 발현의 면역조직화학적 분석(n=6). (G) p-EGFR 및 p-MAPK3/1 발현의 통계적 분석. (H) 6개 그룹에서 MAPK3, MAPK1 및 EGFR mRNA 발현의 qPCR 분석. *P < 0.05 대 대조군. **P < 대조군 대비 0.01. ▲P < 0.05 대 DN. ▲▲P < 0.01 대 DN. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
표 1: JWSJS의 일부 활성 성분 정보. 각 구성 요소와 해당 특성 또는 속성에 대한 세부 정보를 제공합니다. 이 표를 다운로드하려면 여기를 클릭하십시오.
표 2: JWSJS의 핵심 타겟 및 주요 활성 성분의 도킹 결과 표. 이 표는 JWSJS의 핵심 타겟 및 주요 활성 구성 요소에 대한 도킹 연구 결과를 나타냅니다. 이 표는 이러한 구성 요소가 JWSJS의 작동 메커니즘에 대한 통찰력을 제공할 수 있는 각각의 대상과 상호 작용하는 방법을 보여줍니다. 이 표를 다운로드하려면 여기를 클릭하십시오.
표 3: 당뇨병성 신증이 있는 쥐의 체중 및 생화학적 지수에 대한 JWSJS의 효과 (평균 ± 표준 편차로 표시, n = 10). 정상군과 비교: * P < 0.05. 모델 그룹과 비교: # P < 0.05. 이 표를 다운로드하려면 여기를 클릭하십시오.
토론
우리의 연구는 네트워크 약리학, 분자 도킹 및 생체 내 동물 모델의 조합을 사용했습니다. 중요한 단계는 "약물-성분-표적" 네트워크의 구축이었으며, 이는 특히 EGFR/MAPK3/1 신호 경로와의 상호 작용에 중점을 두고 DN 치료에서 JWSJS의 잠재적 메커니즘을 식별하는 데 중요했습니다.
이 연구에서 우리는 예측의 정확도를 높이기 위해 특히 분자 도킹 과정에서 몇 가지 수정을 가했습니다. 문제 해결은 주로 인간 DN과의 관련성을 보장하기 위해 in vivo 동물 모델의 조건을 최적화하는 데 중점을 두었습니다. 본 연구는 JWSJS의 주요 활성 성분과 표적을 규명함으로써 DN 치료를 위한 잠재적 약물 후보로서 JWSJS의 추가 연구 개발을 위한 이론적 기반을 제공합니다.
이 연구는 DN에서 신장 세포자멸사(renal apoptosis)를 감소시키는 JWSJS의 잠재적 작용 기전을 조사했습니다. 분자 도킹 결과에 따르면 퀘르세틴, 팔미톨레산, 루테올린은 MAPK1, MAPK3 및 EGFR을 포함한 주요 표적에 대해 규칙적인 결합 활성을 가지고 있습니다. 우리는 여러 경로에서 공통적인 작용을 하기 때문에 추가 연구를 위해 이러한 표적을 선택했습니다. DN 쥐에서 JWSJS 치료는 FBG 및 GSP 수치의 현저한 감소, UTP 및 LDL-C의 개선, 체중 증가, 신장 조직 현미경 발현 개선을 초래했으며, 이는 DN 치료에 대한 JWSJS의 잠재적 효과를 나타냅니다.
세포사멸(apoptosis)은 세포 사멸의 중요한 방식이며, 조절 장애는 다양한 질병의 위험을 증가시킬 수 있다38. 이전 연구는 DN 쥐가 세포 사멸 관련 단백질 BAX 및 caspase-3의 발현을 증가시키고 신장 조직39,40에서 세포 사멸 세포의 수를 크게 증가시켰다는 것을 보여주었습니다. 그 결과, JWSJS 치료는 이러한 변화를 역전시켰으며, 이는 당뇨병 상태에서 족세포 사멸을 약화시킬 수 있음을 시사했다.
JWSJS의 잠재적 작용 메커니즘에 대한 추가 조사는 DN에 대한 다중 표적 및 다중 경로 효과가 있음을 보여주었습니다. 우리는 MAPK1, MAPK3 및 EGFR을 연구하는 데 중점을 두었는데, 이는 이들이 가장 많은 농축 경로를 가지고 있기 때문입니다. 세포 성장, 증식, 분화, 세포 사멸 및 비정상적인 스테로이드 분비와 같은 다양한 생리학적 및 병리학적 과정에 관여하는 ERK 경로는 MAPK 신호 전달 경로 13,41,42,43에서 필수 경로입니다. JWSJS가 EGFR/MAPK3/1 신호전달 경로를 억제함으로써 족세포사멸을 구제했다고 추론했습니다.
또한 JWSJS가 p-EGFR 및 p-MAPK3/1의 발현을 조절할 수 있으며, 그 결과 Bcl-2 수치가 현저히 상향 조절되지만 Bax는 눈에 띄게 하향 조절되는 것을 발견했습니다. 그 결과, 신장 세포 사멸이 감소했습니다. 이전 연구에서도 유사한 결과가 발견되었습니다. 예를 들어, 첸(Chen)은 족세포에서 EGFR이 결실되면 당뇨병성 신병증이 약화된다고 보고했다44. 일부 연구자들은 EGFR/ERK 경로가 돼지 장 상피 세포의 증식과 분화를 촉진한다는 것을 발견했다9. EGFR의 억제는 TGF-β 및 BAX의 발현을 하향 조절할 수 있으며, 따라서 신장 섬유증과 세포 사멸을 개선할 수 있다45. 이러한 결과는 JWSJS가 EGFR/MAPK3/1 신호 경로를 억제함으로써 DN의 보조 요법에서 중요한 역할을 하는 중국 전통 의학 처방임을 시사합니다. 그러나 DN 치료에서 JWSJS의 잠재적인 작용 기전을 완전히 이해하기 위해서는 추가 연구가 필요합니다.
이 연구에는 몇 가지 한계가 있었다. 첫째, 동물 모델에 대한 의존은 JWSJS에 대한 인간의 반응을 완전히 복제하지 못할 수 있습니다. 또한 네트워크 약리학 예측은 통찰력이 있지만 실험 데이터를 통한 추가 검증이 필요합니다. 연구 결과를 검증하기 위해서는 인간 피험자에 대한 추가 임상 연구가 필요합니다. 둘째, 네트워크 약리학이 약물-질병 관계를 분석하는 데 유용한 도구이기는 하지만, 결과는 실험 데이터가 아닌 예측에 기반하기 때문에 신중하게 해석해야 합니다. 셋째, DN 치료를 위한 JWSJS의 작용 기전은 여전히 불분명하며, 이 연구는 MAPK1, MAPK3 및 EGFR의 잠재적 표적에만 초점을 맞췄다.
이 연구에 사용된 방법은 다른 한의학 제형에도 적용될 수 있으며, 잠재적으로 DN 및 기타 복잡한 질병에 대한 새로운 치료 옵션의 발견으로 이어질 수 있습니다. 또한, 이 접근법은 미래의 약리학 연구에서 전통 의학과 현대 의학을 통합하기 위한 토대를 마련합니다. JWSJS의 치료 효과의 기저에 있는 분자 메커니즘을 완전히 밝히기 위해서는 추가 연구가 필요합니다. 마지막으로, 이 연구는 신약 개발에서 중요한 고려 사항인 JWSJS의 잠재적인 부작용이나 독성을 조사하지 않았습니다. JWSJS의 안전성을 평가하고 임상적 적용을 보장하기 위해서는 추가 연구가 필요합니다.
요약하면, 이 연구는 주로 네트워크 약리학, 분자 도킹 및 생체 내 동물 검증을 활용하여 당뇨병성 신증에 대한 Jiawei Shengjiang San의 치료 가능성을 조사합니다. JWSJS와 EGFR/MAPK3/1 신호전달 경로 간의 상호작용을 이해하고 이러한 상호작용이 DN에서 신장 세포 사멸을 어떻게 감소시킬 수 있는지 이해하는 데 사용되는 방법론에 중점을 두고 절차적 측면을 강조합니다.
공개 사항
저자는 밝힐 것이 없습니다.
감사의 글
이 연구는 중국 허베이성 자연과학재단(Natural Science Foundation)의 일반 프로젝트(No. H2019423037)의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 2&시간; SYBR 그린 qPCR 마스터 믹스 | Servicebio, 우한, 중국 | G3320-05 | |
| 24-h 소변 단백질 정량화(UTP) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| 3,3'-Diaminobenzidine | Shanghai Huzheng Biotech, China | 91-95-2 | |
| Automatic biochemical analysis instrument | Hitachi, Japan | 7170A | |
| 무수 에탄올 | Biosharp, 톈진, 중국 | N/A | |
| BAX 1차 항체 | Affinity, USA | AF0120 | 쥐 |
| BCL-2 1차 항체 | Affinity, USA | AF6139 | 쥐 |
| BX53 현미경 | Olympus, 일본 | BX53 | |
| 클로로포름 대체 | ECOTOP, 광저우, 중국 | ES-8522 | |
| Desmond 소프트웨어 | 뉴욕, 뉴욕, 미국 | 릴리스 2019-1 | |
| 디지털 항온 수조 | Changzhou Jintan Liangyou Instrument, China | DK-8D | |
| EGFR 1차 항체 | Affinity, USA | AF6043 | Rat |
| Embed-812 RESIN | Shell Chemical, USA | 14900 | |
| 공복 혈당(FBG) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| FC-type full-wavelength enzyme label 분석기 | Multiskan; 써모, 미국 | N/A | |
| GAPDH 1차 항체 | Affinity, 미국 | AF7021 | 쥐 |
| 당화혈청 단백질(GSP) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| 투과전자현미경 | Hitachi, | 일본 H-7650 | |
| 헤마톡실린/에오신(HE) 염색 용액 | Servicebio, 미국 | G1003 | |
| Image-Pro Plus | MEDIA CYBERNETICS, | US 해당 없음 | |
| Real-Time PCR 증폭 기기 | Applied Biosystems, 미국 | iQ5 | |
| 이르베사르탄 정제 | 항저우 사노피 제약 | N/A | |
| 이소프로판올 | Biosharp, 톈진, 중국 | N/A | |
| JWSJS 과립 | Guangdong Yifang Pharmaceutical | N/A | |
| Kodak Image Station 2000 MM 이미징 시스템 | Kodak, USA | IS2000 | |
| 저밀도 콜레스테롤 (LDL-C) | Nanjing Jiancheng Institute of Biological Engineering | N/A | |
| MAPK3/1Primary antibodies | Affinity, 미국 | AF0155 | 쥐 |
| 의료용 원심분리기 | Hunan Xiangyi Laboratory Instrument Development, China | TGL-16K | |
| 미니 트랜스-블롯 전송 시스템 | Bio-Rad, 미국 | N/A | |
| Mini-PROTEAN 전기영동 시스템 | Bio-Rad, 미국 | N/A | |
| NanoVue Plus 분광광도계 | 헬스케어 바이오-사이언스 AB, 스웨덴 | 111765 | |
| p-EGFR 1차 항체 | Affinity, USA | AF3044 | Rat |
| Periodic acid-Schiff (PAS) 염색 용액 | Servicebio, USA | G1008 | |
| p-MAPK3/1 주요 항체 | Affinity, USA | AF1015 | 쥐 |
| 2차 항체 | 산타크루즈, 미국 | sc-2357 | 토끼 |
| 스트렙토조토신 | 시그마, 미국 | S0130 | |
| SureScript First-Strand cDNA 합성 키트 | GeneCopeia, 미국 | QP056T | |
| TriQuick 시약 | Solarbio, 베이징, 중국 | R1100 | |
| 초청정 작업대 | 쑤저우 정화 장비, 중국 | SW-CJ-1F |
참고문헌
- Viigimaa, M., Sachinidis, A., Toumpourleka, M., Koutsampasopoulos, K., Alliksoo, S., Titma, T. Macrovascular complications of Type 2 diabetes mellitus. Curr Vasc Pharmacol. 18 (2), 110-116 (2020).
- Umanath, K., Lewis, J. B. Update on diabetic nephropathy: Core Curriculum 2018. Am J Kidney Dis. 71 (6), 884-895 (2018).
- Han, W., et al. Huangkui capsule alleviates renal tubular epithelial-mesenchymal transition in diabetic nephropathy via inhibiting NLRP3 inflammasome activation and TLR4/NF-kappaB signaling. Phytomedicine. 57, 203-214 (2019).
- Giralt-Lopez, A., et al. Revisiting experimental models of diabetic nephropathy. Int J Mol Sci. 21 (10), 3587(2020).
- Lu, Z., Zhong, Y., Liu, W., Xiang, L., Deng, Y. the efficacy and mechanism of Chinese herbal medicine on diabetic kidney disease. J Diabetes Res. 2019, 2697672(2019).
- Niu, H., et al. The therapeutic mechanism of PuRenDan for the treatment of diabetic nephropathy: Network pharmacology and experimental verification. J Ethnopharmacol. 293, 115283(2022).
- Gao, F., Wang, Z., Yang, B., Tan, J. Mechanism of Jiawei Shengjiang San in the treatment of membranous nephropathy based on network pharmacology. Pharmacology and Clinics of Chinese Materia Medica. 37 (5), 132-138 (2021).
- Li, W., Xie, M. Analysis of composing and application rule in the evolution of Shengjiang San. Journal of Beijing University of Traditional Chinese Medicine. 44 (10), 894-898 (2021).
- Zhang, Y., et al. Mechanism of Jiawei Shengjiang powder in inhibiting renal inflammation and fibrosis in diabetic rats based on TLR4/NF-kappaB and Raf/MEK pathways. Pharmacology and Clinics of Chinese Materia Medica. 38 (5), 20-27 (2022).
- Zhao, L., et al. Pharmacodynamic mechanism of Yishen Tongluo Formula in treatment of diabetic kidney disease based on network pharmacology and verification of key regulation pathway. Journal of Beijing University of Traditional Chinese Medicine. 45 (8), 824-834 (2022).
- Zhang, J., Liang, R., Wang, L., Yang, B. Effects and mechanisms of Danshen-Shanzha herb-pair for atherosclerosis treatment using network pharmacology and experimental pharmacology. J Ethnopharmacol. 229, 104-114 (2019).
- Chen, L., et al. Network pharmacology-based strategy for predicting active ingredients and potential targets of Yangxinshi tablet for treating heart failure. J Ethnopharmacol. 219, 359-368 (2018).
- Zhu, M., Qin, Y. C., Gao, C. Q., Yan, H. C., Wang, X. Q. l-Glutamate drives porcine intestinal epithelial renewal by increasing stem cell activity via upregulation of the EGFR-ERK-mTORC1 pathway. Food Funct. 11 (3), 2714-2724 (2020).
- Ding, Z., et al. Systems pharmacology reveals the mechanism of activity of Ge-Gen-Qin-Lian decoction against LPS-induced acute lung injury: A novel strategy for exploring active components and effective mechanism of TCM formulae. Pharmacol Res. 156, 104759(2020).
- Pinzi, L., Rastelli, G. Molecular docking: Shifting paradigms in drug discovery. Int J Mol Sci. 20 (18), 4331(2019).
- Kilkenny, C., Browne, W. J., Cuthill, I. C., Emerson, M., Altman, D. G. Improving bioscience research reporting: the ARRIVE guidelines for reporting animal research. PLoS Biol. 8 (6), e1000412(2010).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guides for the Care and Use of Laboratory Animals. , National Academies Press (US). Washington (DC. (2011).
- Ru, J., et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 6, 13(2014).
- Xu, X., et al. A novel chemometric method for the prediction of human oral bioavailability. Int J Mol Sci. 13 (6), 6964-6982 (2012).
- Tao, W., et al. Network pharmacology-based prediction of the active ingredients and potential targets of Chinese herbal Radix Curcumae formula for application to cardiovascular disease. J Ethnopharmacol. 145 (1), 1-10 (2013).
- Traditional Chinese Medicine and Chemical Composition databases in Chemistry Database[DB/OL]. , Available from: http://www.organchem.csdb.cn (2021).
- Halladay, C. W., Trikalinos, T. A., Schmid, I. T., Schmid, C. H., Dahabreh, I. J. Using data sources beyond PubMed has a modest impact on the results of systematic reviews of therapeutic interventions. J Clin Epidemiol. 68 (9), 1076-1084 (2015).
- Daina, A., Michielin, O., Zoete, V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness and medicinal chemistry friendliness of small molecules. Sci Rep. 7, 42717(2017).
- UniProt, C. Reorganizing the protein space at the Universal Protein Resource (UniProt). Nucleic Acids Res. 40 (D1), D71-D75 (2012).
- Stelzer, G., et al. The GeneCards Suite: From gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54, 1-33 (2016).
- Amberger, J. S., Hamosh, A. Searching Online Mendelian Inheritance in Man (OMIM): A knowledgebase of human genes and genetic phenotypes. Curr Protoc Bioinformatics. 58, 1-12 (2017).
- Zhou, Y., et al. Therapeutic target database update 2022: facilitating drug discovery with enriched comparative data of targeted agents. Nucleic Acids Res. 50 (D1), D1398-D1407 (2022).
- Whirl-Carrillo, M., et al. Pharmacogenomics knowledge for personalized medicine. Clin Pharmacol Ther. 92 (4), 414-417 (2012).
- Law, V., et al. DrugBank 4.0: shedding new light on drug metabolism. Nucleic Acids Res. 42 (D1), D1091-D1097 (2014).
- Shannon, P., et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Xu, J., et al. Pharmacological mechanisms underlying the neuroprotective effects of Alpinia oxyphylla Miq. on Alzheimer's disease. Int J Mol Sci. 21 (6), 2071(2020).
- Tang, Y., Li, M., Wang, J., Pan, Y., Wu, F. X. CytoNCA: a cytoscape plugin for centrality analysis and evaluation of protein interaction networks. Biosystems. 127, 67-72 (2015).
- Yu, G., Wang, L. G., Han, Y., He, Q. Y. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 16 (5), 284-287 (2012).
- Trott, O., Olson, A. J. AutoDock Vina: improving the speed and accuracy of docking with a new scoring function, efficient optimization, and multithreading. J Comput Chem. 31 (2), 455-461 (2010).
- Yang, X., et al. Rational selection of the 3D structure of biomacromolecules for molecular docking studies on the mechanism of endocrine disruptor action. Chem Res Toxicol. 29 (9), 1565-1570 (2016).
- Diller, D. J., Merz, K. M. throughput docking for library design and library prioritization. Proteins. 43 (2), 113-124 (2001).
- Hsin, K. Y., Ghosh, S., Kitano, H. Combining machine learning systems and multiple docking simulation packages to improve docking prediction reliability for network pharmacology. PLoS One. 8 (12), e83922(2013).
- Godse, N. R., et al. TMEM16A/ANO1 inhibits apoptosis via downregulation of Bim expression. Clin Cancer Res. 23 (23), 7324-7332 (2017).
- Ilhan, I., et al. Irbesartan decreased mitochondrial stress-related apoptosis in cisplatin-induced acute kidney injury via regulating BCL-2/BAX signaling. Mol Biol Rep. 49 (7), 6125-6133 (2022).
- Lee, M., et al. Protective effect of hydroxysafflor yellow a on nephropathy by attenuating oxidative stress and inhibiting apoptosis in induced Type 2 diabetes in rat. Oxid Med Cell Longev. 2020, 7805393(2020).
- Schlessinger, J. Ligand-induced, receptor-mediated dimerization and activation of EGF receptor. Cell. 110 (6), 669-672 (2002).
- Gu, X., Chu, L., Kang, Y. Angiogenic factor-based signature predicts prognosis and immunotherapy response in non-small-cell lung cancer. Front Genet. 13, 894024(2022).
- Chu, L., et al. Age-related changes in endogenous glucocorticoids, gonadal steroids, endocannabinoids and their ratios in plasma and hair from the male C57BL/6 mice. Gen Comp Endocrinol. 301, 113651(2021).
- Chen, J., Chen, J. K., Harris, R. C. EGF receptor deletion in podocytes attenuates diabetic nephropathy. J Am Soc Nephrol. 26 (5), 1115-1125 (2015).
- Skibba, M., et al. New EGFR inhibitor, 453, prevents renal fibrosis in angiotensin II-stimulated mice. Eur J Pharmacol. 789, 421-430 (2016).
재인쇄 및 허가
