이 프로토콜은 살아있는 세포에서 14-3-3 단백질과 CRAF 키나아제의 상호 작용을 측정하기 위한 BRET 기반 분석을 설명합니다. 이 프로토콜은 셀 준비, BRET 배출량 판독 및 데이터 분석을 위한 단계를 간략하게 설명합니다. 적절한 대조군을 식별하고 분석 최적화를 위한 문제 해결을 위한 결과의 예도 제시됩니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
살아있는 세포에서 14-3-3 단백질과 CRAF의 상호 작용을 측정하기 위한 생물발광 공명 에너지 전달(BRET) 기반 분석
이 논문에서
요약
초록
CRAF는 RAS GTPase의 주요 효과자이며 여러 KRAS 기반 암의 종양 형성에 중요한 역할을 합니다. 또한 CRAF는 생식세포 돌연변이의 핫스팟이며, 이는 발달성 RASopathy, Noonan 증후군을 유발하는 것으로 나타났습니다. 모든 RAF kinase는 14-3-3 조절 단백질에 대한 여러 인산화 의존성 결합 부위를 포함합니다. 이러한 부위에 대한 14-3-3의 차등 결합은 신호 조건 하에서 원형질막에서 활성 RAF 이량체를 형성하고 정지 조건에서 RAF 자가억제를 유지하는 데 필수적인 역할을 합니다. 이러한 상호 작용이 어떻게 조절되고 어떻게 조절될 수 있는지 이해하는 것은 RAF 기능을 표적으로 하는 새로운 치료 접근법을 식별하는 데 중요합니다. 여기에서는 살아있는 세포에서 CRAF와 14-3-3 단백질의 상호 작용을 측정하기 위한 생물발광 공명 에너지 전달(BRET) 기반 분석에 대해 설명합니다. 구체적으로, 이 분석은 나노 루시페라아제 공여체에 융합된 CRAF와 Halo 태그 수용체에 융합된 14-3-3의 상호 작용을 측정하며, 여기서 RAF와 14-3-3의 상호 작용은 공여체에서 수용체 간 에너지 전달 및 BRET 신호의 생성을 초래합니다. 이 프로토콜은 또한 이 신호가 고친화성 RAF 도킹 사이트 각각에 대한 14-3-3 결합을 방지하는 것으로 표시된 돌연변이에 의해 중단될 수 있음을 보여줍니다. 이 프로토콜은 BRET 방출 판독, 데이터 분석 수행 및 단백질 발현 수준 확인에 대한 자세한 지침과 함께 세포의 파종, transfection, 재도금 절차를 설명합니다. 또한 최적화 및 문제 해결 단계와 함께 예제 분석 결과가 제공됩니다.
서론
RAF 키나아제(ARAF, BRAF 및 CRAF)는 RAS GTPase의 직접 효과자이며 pro-proliferative/pro-survival RAF-MEK-ERK kinase cascade의 초기 멤버입니다. 최근 연구에 따르면 CRAF 발현은 비소세포폐암 및 췌관 선암(pancreatic ductal adenocarcinoma) 1,2,3,4,5를 포함한 여러 KRAS 유발 암의 종양 형성에 중요한 역할을 합니다. 더욱이, 생식세포 CRAF 돌연변이는 특히 심각한 형태의 RASopathy, Noonan 증후군 6,7을 유발합니다. CRAF 조절을 이해하는 것은 세포에서 CRAF 기능을 표적으로 하는 성공적인 치료 접근법을 개발하는 데 매우 중요합니다.
모든 RAF 키나아제는 활성을 제어하는 C-말단 촉매(CAT) 영역과 N-말단 조절(REG) 영역의 두 가지 기능 도메인으로 나눌 수 있습니다(그림 1A)8. REG 영역은 RAS 결합 도메인(RBD), 시스테인 풍부 도메인(CRD) 및 세린/트레오닌 풍부 영역(S/T-rich)을 포함합니다. 주목할 만하게도, S/T-rich 영역은 인산화 의존적 방식으로 14-3-3에 결합하는 N' site를 포함한다(CRAF의 S259; 그림 1A) 8. CAT 도메인은 C' 사이트라고 하는 두 번째 고친화성 14-3-3 도킹 사이트와 함께 키나아제 도메인을 포함합니다(CRAF의 S621; 그림 1A) 8. CRD와 함께 N' 및 C' 위치에 대한 이합체 14-3-3 단백질의 차별적 결합은 RAF 활성화 및 억제 9,10,11,12,13 모두에서 중요한 역할을 합니다. 정상적인 신호 전달 조건에서 RAF 활성화는 RAS에 의한 원형질막으로의 모집에 의해 시작되어 활성 이량체를 형성할 수 있으며, 그 중 BRAF-CRAF 이종이량체가 우세한 활성 형태14,15입니다. 이합체 BRAF의 극저온 전자 현미경(Cryo-EM) 구조와 함께 BRAF 및 CRAF를 사용한 생화학 분석은 14-3-3 이량체가 두 RAF 양성체의 C' 부위에 동시에 결합하여 활성 RAF 이량체를 안정화한다는 것을 나타냅니다(그림 1B)9,13,16,17. 반대로, 연구에 따르면 정지 조건에서 RAF는 REG 도메인이 CAT 도메인에 결합하고 그 활성을 억제하는 세포소질, 자동 억제 확인을 채택합니다 12,18,19,20. 이 닫힌 상태는 REG 도메인의 CRD 및 N' 사이트와 CAT 도메인의 C' 사이트에 결합된 14-3-3 이량체에 의해 안정화됩니다(그림 1B)10,13,21. BRAF에서 이 모델은 자가 억제 BRAF 단량체의 최근 Cryo-EM 구조와 이전 생화학 연구 10,12,13,21,22에 의해 지원됩니다. 그러나, 14-3-3은 CRAF 규정23에서 억제 역할을 하는 것으로 나타났지만, BRAF와 같은 자가억제 상태는 CRAF 규정12에서 더 적은 역할을 할 수 있다; 따라서 14-3-3 단백질이 CRAF 활성을 조절하는 메커니즘을 명확히 하기 위해 추가 연구가 필요합니다. RAF kinase의 14-3-3-mediated regulation은 과다한 RAF 인산화 및 탈인산화 이벤트, 다양한 조절 단백질에 대한 결합, 원형질막과의 상호 작용을 필요로 한다8. 따라서 14-3-3-RAF 상호 작용은 생리학적으로 관련된 조건과 온전한 지질 이중층이 있는 상태에서 측정하는 것이 중요합니다.
이 문제를 해결하기 위해 NanoBRET(여기서는 N-BRET라고 함, 키트 세부 정보는 재료 표 참조) 기술을 활용하여 살아있는 세포에서 CRAF와 14-3-3 단백질의 상호 작용을 측정하기 위한 근접 기반 분석을 개발했습니다(그림 1C). 이 BRET 기반 시스템은 Halo618 에너지 수용체 리간드22,24로 라벨링하기 위해 한 단백질에는 나노루시페라아제(Nano) 공여체가 태그되고 다른 단백질에는 Halo 태그가 부착되는 두 관심 단백질(POI)의 상호 작용을 측정합니다. 관심 단백질의 상호 작용은 공여체에서 수용체로의 에너지 전달을 초래하며, 이는 다시 BRET 신호를 생성합니다(그림 1C). 매우 밝은 Nano donor 단백질(방출(em) 460nm) 및 Halo618 리간드(em 618nm)는 기존 BRET에 비해 더 큰 스펙트럼 분리 및 감도를 제공하므로 더 약한 상호 작용을 연구하고 결합24의 미묘한 변화를 감지하는 데 이상적인 플랫폼입니다. 실제로, 우리는 이전에 RAF REG 및 CAT 영역의 자가 억제 상호 작용을 측정하기 위한 N-BRET 기반 분석을 개발했으며, 이는 BRAF CRD에서 RASopathy 돌연변이 패널의 특성 분석에 필수적이었고 자가 억제를 유지하고 구성적 BRAF 활성화를 방지하는 데 이 영역의 중요한 중요성을 입증했습니다12.
여기에 설명된 분석은 N-말단 나노 태그(Nano-CRAF)에 융합된 CRAF와 C-말단 Halo 태그(14-3-3ζ-Halo; 그림 1C). 우리는 Nano-CRAF와 14-3-3ζ-Halo의 상호 작용이 강력한 BRET 신호를 생성하며, 이는 차례로 N' site(S259A) 및/또는 C' site(S621A)에 14-3-3 결합을 방지하는 돌연변이에 의해 중단될 수 있음을 보여줍니다. 다음 프로토콜은 이 분석을 수행, 최적화 및 문제 해결하기 위한 자세한 단계를 제공합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
참고: 이 분석은 293FT 세포에서 수행됩니다. 인간 배아 신장 세포에서 유래한 잘 특성화되고 쉽게 transfection할 수 있는 상피 라인. 이러한 세포의 단일 합류 10cm 배양 접시는 일반적으로 6웰 조직 배양 플레이트의 20웰을 파종하기에 충분한 세포를 제공합니다. 1-3단계는 생물 안전 작업대에서 멸균 기술을 사용하여 수행해야 합니다.
1. 세포 파종(1일차)
참고: 이 단계에서는 세포를 조직 배양 접시에서 분리하고, 계수하고, 2단계에서 transfection을 위해 6웰 조직 배양 플레이트에 파종합니다(그림 2).
- 10cm 접시의 세포에서 배지를 흡입합니다. 5mL의 인산염 완충 식염수(PBS)로 세포를 세척하고 흡입합니다.
- 트립신-에틸렌디아민테트라아세트산(EDTA) 1mL를 넣고 37°C에서 3-5분 동안 배양하여 접시에서 세포를 분리합니다.
- 9mL의 완전한 Dulbecco's modified eagle medium(DMEM)을 세포에 추가하여 트립신을 중화하고 피펫팅을 위아래로 반복적으로 생성하여 균질한 단일 세포 현탁액을 생성합니다.
- 즉시 20μL의 세포를 1.7mL 튜브에 옮기고 20μL의 트리판 블루 염색과 혼합합니다. 자동 세포 계수기(Table of Materials) 또는 혈구계를 사용하여 세포 수를 계산합니다.
- 완전한 DMEM 배지에서 세포를 2 x 10⁵ cells/mL로 희석하고 6-well 조직 배양 플레이트(4 x 10⁵ cells/well)의 각 웰에 2mL를 추가합니다. 37 ° C 및 10 % CO2 에서 밤새 세포를 배양합니다.
알림: 293x 미만으로 통과된 20FT 셀을 사용하는 것이 좋습니다. 우리는 이전에 더 큰 통로 수를 가진 셀을 사용하면 BRET 비율이 감소하고 well-to-well 신호 변동성이 증가할 수 있음을 발견했습니다.
2. 세포 transfection(2일차)
참고: 여기서 세포는 pCDNA3.1 빈 벡터와 함께 pCMV5-NanoLuc-CRAF 및 pCMV5-14-3-3ζ-Halo 발현 구조로 transfection됩니다(그림 2).
- transfection에 앞서 N-BRET 플라스미드를 5 ng/μL로, pCDNA3.1을 100 ng/μL로 희석하고 멸균 1.7 mL 튜브 세트에 번호를 매깁니다.
- 각 튜브에 100μL의 transfection 배지(자세한 내용은 재료 표 참조)를 pCMV5-NanoLuc-CRAF 5ng, pCMV5-14-3ζ 10ng 및 PCDNA3.1 200ng과 함께 추가합니다.
- 2 μL의 transfection 시약(자세한 내용은 재료 표 참조)을 추가하고 부드럽게 와류하여 혼합합니다. 마이크로 원심분리기에서 튜브를 잠시 펄스 회전시켜 모든 액체가 튜브 바닥에 수집되도록 한 다음 약 25°C에서 15분 동안 배양합니다.
- transfection 복합체를 세포에 적가하고 37°C/10%CO2 에서 16-20시간 동안 배양하여 Halo- 및 Nano- 태그 단백질이 발현될 수 있도록 합니다.
참고: 빈 벡터(pCDNA3.1) 캐리어 DNA의 추가는 N-BRET 발현 구조체의 높은 transfection 효율을 달성하는 데 필수적입니다. 빈 벡터를 추가하지 않으면 14-3-3ζ-Halo 및 Nano-CRAF 단백질의 발현 수준이 감소하고 이전에 논의된 바와 같이 BRET 비율이 약하고 일관성 없는 결과를 초래합니다22.
3. 셀 재도금(3일차)
참고: 이 단계에서 셀은 384웰 플레이트와 Halo 618 리간드(+리간드; 재료 목차) 또는 4단계에서 BRET 배출량을 읽기 위해 DMSO(+vehicle)가 추가됩니다. 나머지 세포는 5단계에서 웨스턴 블롯 분석을 위해 새로운 6웰 배양 플레이트로 옮겨집니다(그림 2).
- 다음 자료를 수집하고 아래 설명에 따라 작업 영역을 준비합니다.
- 37°C 수조를 사용하여 무혈청 분석 배지 및 10% FBS 보충 분석 배지와 함께 트립신-EDTA를 사전 데웁니다(자세한 내용은 재료 표 참조).
- 측정할 샘플의 수에 따라 멸균 1.7mL 튜브 3세트(세트 1-3)와 멸균 15mL 코니컬 바닥 튜브 1세트를 사전 라벨링합니다. 스윙 버킷 원심분리기에 15mL 튜브 인서트를 장착하고 4°C로 사전 냉각합니다.
- 시약 저장소, 384웰 조직 배양 플레이트, 6웰 조직 배양 플레이트, 멀티채널 피펫 및 팁, 세포 계수 슬라이드/챔버 및 트리판 블루 염색(Table of Materials)과 1.7mL 튜브 세트 1-3을 함께 조직 배양 후드에 넣습니다.
- 아래 설명된 대로 세포를 수집하고 계산합니다.
- 6웰 플레이트에서 배지를 흡인하고 250μL의 트립신-EDTA를 세포에 추가합니다. 세포가 분리되기 시작할 때까지 37°C에서 6웰 플레이트를 배양합니다(3-5분).
- 각 웰에 10% FBS 보충 분석 배지 1mL를 추가하여 트립신을 중화하고 피펫을 위아래로 세게 하여 단일 세포 현탁액을 생성합니다.
- 세포 현탁액 1mL를 사전 라벨링된 15mL 튜브로 옮깁니다. 15mL 튜브 각각에 10% FBS 보충 분석 배지 1mL를 더 추가합니다.
- 튜브를 5배 반전시켜 혼합하고 즉시 20μL의 세포 현탁액을 튜브 세트 1로 옮깁니다.
- 사전 냉각된 스윙 버킷 원심분리기에서 ~250 x g에서 5분 동안 원심분리기. 원심분리 단계에서 20μL의 트리판 블루 세포 염색을 튜브 세트 1의 세포와 혼합한 다음 자동 세포 카운터 또는 혈구계를 사용하여 세포 수를 계산합니다. 수율은 6-8 x 10⁵ cells/mL가 일반적입니다.
- 원심분리기에서 15mL 튜브를 제거하고 세포 펠릿에서 배지를 흡입합니다. 무혈청 분석 배지 및 피펫에서 세포 펠릿을 2 x 10⁵ cells/mL로 재현탁시켜 단일 세포 현탁액을 생성합니다.
참고: 무혈청 Assay Media의 사용은 정상 세포 신호 전달 경로를 정지시키는 데 사용됩니다.
- 아래 설명된 대로 384-well 및 6-well 플레이트에 셀을 재플레이트합니다.
- 15mL 튜브를 여러 번 반전시켜 균일한 세포 현탁액을 보장하고 500 μL를 1.7 mL 튜브 세트 2 및 세트 3으로 옮깁니다.
- 세트 2에 0.5μL의 DMSO(+vehicle)를 추가하고 튜브 세트 3에 0.5μL의 Halo 618 리간드(+리간드)를 추가하고 피펫을 혼합합니다.
- +vehicle 및 +ligand cell suspensions를 시약 reservoir의 분리된 well로 옮깁니다. 멀티채널 피펫(Table of Materials)을 사용하여 시약 저장소에서 +vehicle cell suspension 40 μL를 384-well culture plate의 4배 웰로 옮깁니다. +리간드 세포 현탁액에 대해 이 단계를 반복합니다.
- 나머지 세포를 새로운 6웰 배양 플레이트에 옮깁니다. 384웰 및 6웰 플레이트를 37°C 및 5%CO2에서 밤새 배양합니다.
4. BRET 배출량 판독(4일차)
참고: 이 단계에서는 나노루시페라아제 기질(자세한 내용은 재료 표 참조)을 384웰 배양 플레이트의 세포에 추가하고 N-BRET 수용체(618nm) 및 공여체(460nm) 방출을 판독합니다(그림 2). 그런 다음 수정된 BRET 비율이 계산됩니다.
- 무혈청 분석 배지를 37°C 수조에서 사전 데우고 나노루시페라아제 기질을 25°C에서 해동합니다. 나노루시페라아제 기질을 무혈청 분석 배지에 1:100으로 희석하고 시약 저장소로 옮깁니다. 384웰 플레이트의 각 웰에 10μL를 추가하고 10%-15%의 추가 부피를 추가하기에 충분한 이 혼합물을 준비합니다.
- 멀티채널 피펫(Table of Materials)을 사용하여 10μL의 기질 혼합물을 384웰 배양 플레이트의 세포가 포함된 각 웰로 옮깁니다. 수동으로 또는 오비탈 셰이커를 사용하여 플레이트를 1분 동안 부드럽게 회전시킵니다.
- 384웰 플레이트를 멀티모드 플레이트 리더에 삽입하고 셀이 포함된 모든 웰에 대한 460nm 및 618nm 방출을 기록합니다.
참고: 이 단계에 사용된 다중 모드 플레이트 리더의 경우(자세한 내용은 재료 표 참조) 6.5mm의 판독 높이와 0.1초의 판독 시간 측정이 사용되었지만, 다른 플레이트 리더를 사용하는 경우 추가 최적화가 필요할 수 있습니다. - 다음 방정식을 사용하여 +vehicle 및 +ligand에 대한 원시 BRET 비율을 밀리BRET 단위(mBU)로 개별적으로 계산합니다.
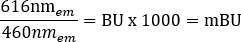
- +Ligand의 BRET 비율에서 +vehicle BRET 비율을 빼서 보정된 BRET 비율을 계산합니다(보충 표 1).
참고: 여러 실험의 결과를 비교할 때 보정된 BRET 비율은 Nano-CRAFWT 및 14-3-3ζWT-Halo로 구성된 Wildtype(WT) N-BRET 쌍의 평균으로 통합되고 정규화될 수 있습니다(보충 표 1).
5. 단백질 발현 수준 확인(4일차 및 5일차)
참고: 이 단계에서는 6-well plates의 세포를 용해하고 Nano-CRAF 및 14-3-3ζ-Halo 단백질의 단백질 발현 수준을 Halo 및 Nano 태그에 특이적인 항체를 사용하여 웨스턴 블롯 분석으로 결정합니다. (그림 2).
- 프로테아제 및 인산가수분해효소 억제제를 NP40 용해 완충액(재료 표)에 추가하면 시료당 200μL의 용해 완충액을 사용할 수 있습니다.
- 세포가 들어 있는 6-well 플레이트에서 배지를 흡입합니다. 1mL의 차가운 PBS로 세포를 한 번 세척하고 흡인합니다.
- 각 웰에 125μL의 NP40 용해 완충액을 추가하고 4°C의 로킹 플랫폼에서 15분 동안 6웰 플레이트를 배양하여 세포를 용해합니다.
- 용해물을 얼음 위의 1.7mL 튜브로 옮기고 4°C에서 10분 동안 20,000 x g 으로 원심분리합니다. 세척된 용해물을 얼음 위에 다시 놓고 Bradford 또는 Bicinchoninic acid(BCA) 분석과 같은 상업적으로 이용 가능한 분석을 사용하여 단백질 농도를 측정합니다.
- 적절한 부피의 용해물 및 NP40 용해 완충액을 신선한 1.7mL 튜브로 총 부피 100μL로 옮겨 모든 시료에서 단백질 농도를 정상화합니다.
- 5x 단백질 시료 완충액(재료 표)을 1분 동안 끓이고 각 시료에 25μL를 추가합니다. 샘플을 5-6분 동안 끓인 다음 튜브를 잠시 펄스 원심분리하여 모든 샘플이 튜브 바닥에 모이도록 합니다.
- 25μL의 샘플을 중복 단백질 겔(겔 1 및 겔 2)의 각 웰에 로드한 다음 이전에 설명한 대로 표준 웨스턴 블로팅 절차를 사용하여 단백질을 니트로셀룰로오스 또는 PVDF 멤브레인으로 전달합니다22.
- 25°C에서 3% BSA-PBS로 30분 동안 멤브레인을 차단한 다음 Halo 항체(1:1,000 희석)로 밤새 멤브레인을 배양합니다. Gel 1) 및 나노루시페라아제 또는 CRAF 항체(1:500 희석; 겔 2)를 트리스 완충 식염수에 넣고 0.2% Tween-20(TBST; Table of Materials)를 참조하십시오.
- TBST 10mL에서 멤브레인을 5분 동안 1회 세척한 다음 TBST에서 1:10,000으로 희석한 항마우스 HRP 2차 항체로 실온에서 1시간 동안 배양합니다.
- 25°C에서 각각 5분 동안 10mL의 TBST에 로킹 플랫폼에서 멤브레인을 3회 세척합니다. TBST를 제거하고 ECL 시약과 X선 필름 프로세서 또는 기타 적절한 이미징 시스템을 사용하여 단백질 띠를 시각화합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
이 프로토콜(그림 2)에 설명된 대로 수행할 때 Nano-CRAFWT 와 14-3-3ζ-Halo의 상호 작용은 50-60mBU(그림 3A; 보충표 1). CRAF에는 인산화 의존적 14-3-3 도킹 사이트, 즉 N' 영역과 C' 영역이 포함되어 있습니다(그림 1)8. 따라서, CRAF:14-3-3ζ 결합을 감소시키기 위한 적절한 제어는 S259A 및 S621A를 포함하며, 이는 인산화를 방지하고, 차례로 N' 및 C' 부위에 대한 14-3-3 결합을 각각 포함한다(25). 그림 3A에서 볼 수 있듯이 Nano-CRAFS259A 는 BRET 신호를 ~45%, Nano...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
이전 연구에 따르면 14-3-3 단백질은 RAF 키나아제의 활성화와 억제 모두에 중요한 역할을 합니다. 이러한 결합 이벤트가 어떻게 조절되는지, 그리고 이러한 상호작용을 조절하는 것이 RAF 신호전달 및 RAF 주도 종양발생에 미치는 영향을 이해하면 CRAF 기능을 표적으로 하는 새로운 치료 취약성을 발견할 수 있습니다. 그러나, Raf 활성화 주기는 과다한 관련 단백질, 번역 후 변형(posttranslational modification) 및 세포 내 국소화(subcellular localization)의 변화에 의해 지원되므로8, 따라서 이러한 조건을 완전히 재현하기 위해서는 RAF와 그 조절인자의 상호작용을 살아있는 세포 조건에서 측정해야 한다. 이 프로토콜은 살아있는 세포에서 14-3-3ζ 및 CRAF의 상호 작용을 측정하기 위해 nanoluciferase-Halo N-BRET 쌍의 우수한 신호 대 잡음 비율 및 스펙트럼 분해능을 활용하는 새로운 근접 기반 분석을 설명합니다.<...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
공개할 것이 없습니다.
감사의 글
이 프로젝트는 미국 국립보건원(National Institutes of Health)의 국립암연구소(National Cancer Institute, National Institutes of Health)의 연방 기금으로 일부 자금을 지원받았으며, 프로젝트 번호는 ZIA BC 010329입니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| <강한>항체 | |||
| HaloTag® 마우스 단클론 항체 | Promega | G9211 | 면역블롯에 의한 HaloTag 태그 단백질 검출용 항체 |
| NanoLuc® 마우스 단클론 항체 | R& D Systems | MAB10026 | 에 의한 나노 태그 단백질을 검출하기 위한 항체 |
| Santa Crus Biotechnology | sc-7267 | 에 의해 CRAF 단백질을 직접 감지 | |
| 2차 HRP 접합 마우스 항체(양에서 추출) | |||
| 시약 | |||
| X-tremeGENE™ 9 | Roche/Sigma | 6365809001 | |
| NanoBRET; 키트 | 프로메가 | N1661 | Halo 618 리간드와 NanoGlo (나노루시페라제) 기질을 포함하는 NanoBRET 키트 |
| DPBS, Ca++ 및 Mg++ 없음 | 품질 생물학제 | 114-057-101 | |
| 트립신-EDTA (0.05%), 페놀 레드 | Life Technologies | 25300120 | |
| DMEM 세포 배양 매체 | Life Technologies | 11995073 | High glucose, L-glutamine, phenol red, sodium pyruvate; without HEPES, 10% FBS, 2 mM L-glutamine 및 100U penicillin-streptomycin |
| L-Glutamine (200 mM)이 함유된 공급 매체 | Life Technologies | 25030164 | |
| 페니실린-스트렙토마이신(10,000 U/mL) | 라이프 테크놀로지 | ||
| Opti-MEM & 무역; 나는 혈청 매체를 줄였습니다 | Gibco | 31985062 | 세포 transfection |
| Opti-MEM 감소 혈청 배지, 페놀 레드 | 없음 Gibco | 11058021 | 3일차 세포 재생용. 2 mM L-글루타민과 100U 페니실린-스트렙토마이신을 보충하며, 10% FBS와 함께 (표시된 경우)을 |
| Invitrogen Trypan 블루 스테인 | 써모 사이언티픽 | T10282 | |
| NP40 용해 완충액 | N/ | A N/A | 20 mM 트리스 (pH 8.0), 137mM NaCl, 10% 글리세롤, NP40 대안(Milipore, Cat# 492016). 4°C에서 보관하십시오. 사용 직전에 다음의 프로테아제와 포스파타아제를 첨가하십시오: 20 µ M 류펩틴, 0.5mM 오르토바니데이트나트륨, 0.15U/mL, 1mM PMSF. |
| 5x 겔 샘플 버퍼 | N/A | N/A | 240mM 트리스(pH 8.0), 9.5% SDS, 30% 글리세롤, 500mM DTT, 3mM 브로모페놀 블루. -20°C에서 보관하십시오. |
| <강>세포주 | |||
| 293FT 세포 (인간) | Thermo Scientific | R70007 | |
| DNA 벡터 | |||
| pCMV5-Nano-CRAF WT 및 돌연변이 | 해당 사항 | 없음 | |
| pCMV5-14-3-3ζ-Halo | N/A | N/A | |
| Equipment | |||
| EnVision 2104 멀티모드 플레이트 리더 | PerkinElmer 2104 | 2104-0010 | 600LP 나노브렛 및 M460/50nm NanoBRET 이미터 필터, 발광 404 거울, 6.5mm 측정 높이 및 0.1초 측정 시간 |
| Invitrogen Countess™ II 자동 세포 계수기 | 써모 사이언티픽 | AMQAX1000 | |
| 써모피셔 E1-ClipTip™ 멀티채널 피펫터 | 써모 사이언티픽 | 4672070 | |
| Software | |||
| GraphPad Prism (버전 10.0.3) | 그래프패드 | www.graphpad.com | |
| other | |||
| ThermoFisher ClipTip 멀티채널 피펫 팁 | 써모 사이언티픽 | ||
| 시약 저장소, 25 mL 분할, 멸균 | 토마스 사이언티픽 | 1228K16 | |
| 퍼킨 엘머 384-웰 CulturPlate™ | PerkinElmer | 6007680 | 화이트, 폴리스티렌, 조직 배양 처리 |
| Countess 세포 계수 챔버 슬라이드 | Thermo Scientific | C10228 |
참고문헌
- Blasco, R. B., et al. c-Raf, but not B-Raf, is essential for development of K-Ras oncogene-driven non-small cell lung carcinoma. Cancer Cell. 19, 652-663 (2011).
- Blasco, M. T., et al. Complete regression of advanced pancreatic ductal adenocarcinomas upon combined inhibition of EGFR and C-RAF. Cancer Cell. 35, 573-587 (2019).
- Karreth, F. A., Frese, K. K., DeNicola, G. M., Baccarini, M., Tuveson, D. A. C-Raf is required for the initiation of lung cancer by K-Ras(G12D). Cancer Discov. 1, 128-136 (2011).
- Lito, P., et al. Disruption of CRAF-mediated MEK activation is required for effective MEK inhibition in KRAS mutant tumors. Cancer Cell. 25, 697-710 (2014).
- Sanclemente, M., et al. c-RAF ablation induces regression of advanced Kras/Trp53 mutant lung adenocarcinomas by a mechanism independent of MAPK signaling. Cancer Cell. 33, 217-228 (2018).
- Razzaque, M. A., et al. Germline gain-of-function mutations in RAF1 cause Noonan syndrome. Nat Genet. 39, 1013-1017 (2007).
- Pandit, B., et al. Gain-of-function RAF1 mutations cause Noonan and LEOPARD syndromes with hypertrophic cardiomyopathy. Nat Genet. 39, 1007-1012 (2007).
- Terrell, E. M., Morrison, D. K. Ras-mediated activation of the Raf family kinases. Cold Spring Harb Perspect Med. 9 (1), 033746(2019).
- Kondo, Y., et al. Cryo-EM structure of a dimeric B-Raf:14-3-3 complex reveals asymmetry in the active sites of B-Raf kinases. Science. 366, 109-115 (2019).
- Park, E., et al. Architecture of autoinhibited and active BRAF-MEK1-14-3-3 complexes. Nature. 575 (7783), 545-550 (2019).
- Tzivion, G., Luo, Z., Avruch, J. A dimeric 14-3-3 protein is an essential cofactor for Raf kinase activity. Nature. 394, 88-92 (1998).
- Spencer-Smith, R., et al. RASopathy mutations provide functional insight into the BRAF cysteine-rich domain and reveal the importance of autoinhibition in BRAF regulation. Mol Cell. 82, 4262-4276 (2022).
- Martinez Fiesco, J. A., Durrant, D. E., Morrison, D. K., Zhang, P. Structural insights into the BRAF monomer-to-dimer transition mediated by RAS binding. Nat Commun. 13, 486(2022).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. The importance of Raf dimerization in cell signaling. Small GTPases. 4, 180-185 (2013).
- Freeman, A. K., Ritt, D. A., Morrison, D. K. Effects of Raf dimerization and its inhibition on normal and disease-associated Raf signaling. Mol Cell. 49, 751-758 (2013).
- Rushworth, L. K., Hindley, A. D., O'Neill, E., Kolch, W. Regulation and role of Raf-1/B-Raf heterodimerization. Mol Cell Biol. 26, 2262-2272 (2006).
- Garnett, M. J., Rana, S., Paterson, H., Barford, D., Marais, R. Wild-type and mutant B-RAF activate C-RAF through distinct mechanisms involving heterodimerization. Mol Cell. 20, 963-969 (2005).
- Tran, N. H., Wu, X., Frost, J. A. B-Raf and Raf-1 are regulated by distinct autoregulatory mechanisms. J Biol Chem. 280, 16244-16253 (2005).
- Chong, H., Guan, K. L. Regulation of Raf through phosphorylation and N terminus-C terminus interaction. J Biol Chem. 278, 36269-36276 (2003).
- Cutler, R. E., Stephens, R. M., Saracino, M. R., Morrison, D. K. Autoregulation of the Raf-1 serine/threonine kinase. Proc Natl Acad Sci U S A. 95, 9214-9219 (1998).
- Park, E., et al. Cryo-EM structure of a RAS/RAF recruitment complex. Nat Commun. 14, 4580(2023).
- Spencer-Smith, R., Morrison, D. K. Protocol for measuring BRAF autoinhibition in live cells using a proximity-based NanoBRET assay. STAR Protoc. 4, 102461(2023).
- Clark, G. J., et al. 14-3-3 zeta negatively regulates raf-1 activity by interactions with the Raf-1 cysteine-rich domain. J Biol Chem. 272, 20990-20993 (1997).
- Machleidt, T., et al. NanoBRET--A novel BRET platform for the analysis of protein-protein interactions. ACS Chem Biol. 10, 1797-1804 (2015).
- Hekman, M., et al. Dynamic changes in C-Raf phosphorylation and 14-3-3 protein binding in response to growth factor stimulation: differential roles of 14-3-3 protein binding sites. J Biol Chem. 279, 14074-14086 (2004).
- Hatzivassiliou, G., et al. RAF inhibitors prime wild-type RAF to activate the MAPK pathway and enhance growth. Nature. 464, 431-435 (2010).
- Bondzi, C., Grant, S., Krystal, G. W. A novel assay for the measurement of Raf-1 kinase activity. Oncogene. 19, 5030-5033 (2000).
- Spencer-Smith, R., et al. Inhibition of RAS function through targeting an allosteric regulatory site. Nat Chem Biol. 13 (1), 62-68 (2016).
- Roy, S., et al. 14-3-3 facilitates Ras-dependent Raf-1 activation in vitro and in vivo. Mol Cell Biol. 18, 3947-3955 (1998).
- Durrant, D. E., et al. Development of a high-throughput NanoBRET screening platform to identify modulators of the RAS/RAF interaction. Mol Cancer Ther. 20, 1743-1754 (2021).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
