액체 크로마토그래피 고분해능 질량 분석법과 결합된 13C 6-Glucose 라벨링의 개발된 방법은 다재다능하며 약용 식물에서 2차 대사 산물의 합성에 관여하는 1차 장기 및 경로에 대한 향후 연구와 이러한 2차 대사 산물의 포괄적인 활용을 위한 토대를 마련합니다.
이 논문에서
요약
초록
이 논문은 2차 대사산물 합성에 관여하는 1차 장기를 인증하기 위한 새롭고 효율적인 방법을 제시합니다. Parispolyphylla var. yunnanensis (Franch.)에서 가장 중요한 2 차 대사 산물로 손. -Mzt. (PPY), 파리 사포닌 (PS)은 다양한 약리 활성을 가지고 있으며 PPY에 대한 수요가 증가하고 있습니다. 이 연구는 파리 사포닌 VII(PS VII) 합성에 관여하는 주요 장기를 정확하게 인증하기 위해 잎, 뿌리줄기 및 줄기-혈관-번들 13C6-포도당 공급 및 비공급 4가지 처리를 확립했습니다. 액체 크로마토그래피-질량분석법(LC-MS)을 결합하여 서로 다른 처리에서 잎, 뿌리줄기, 줄기 및 뿌리의 13C/12C비율을 빠르고 정확하게 계산하고 (M+1) −/M−, (M+2) −/M−, (M+3) −/M− 및 (M+4) −/M−의 4가지 유형의 PS 동위원소 이온 피크(M−) 비율을 찾았습니다. 그 결과, 줄기-혈관-다발 및 뿌리줄기 섭식 처리의 뿌리줄기에서 13C/12C의 비율이 비수유 처리에서보다 유의하게 높았다. 비수유 처리와 비교했을 때, 잎 및 줄기-혈관-다발 수유 처리에서 잎의 PS VII 분자(M+2) -/M−의 비율이 크게 증가했습니다. 동시에, 비수유 처리와 비교하여, 뿌리줄기 처리 하의 잎에서 PS VII 분자(M+2) -/M−의 비율은 유의한 차이를 보이지 않았습니다. 또한, 줄기, 뿌리 및 뿌리 줄기에서 PS VII 분자 (M + 2) − / M −의 비율은 4 가지 처리간에 차이를 보이지 않았습니다. 비수유 처리와 비교했을 때, 잎 수유 처리 하의 잎에서 파리 사포닌 II(PS II) 분자 (M+2) −/M−의 비율은 유의한 차이를 보이지 않았으며, 잎 수유 처리 하의 잎에서 PS II 분자의 (M+3) −/M− 비율은 더 낮았다. 이 데이터는 PS VII의 합성을 위한 주요 기관이 잎이라는 것을 확인했다. 이는 약용 식물에서 2차 대사 산물의 합성에 관여하는 1차 기관 및 경로를 향후 식별하기 위한 토대를 마련합니다.
서론
식물에서 2차 대사 산물의 생합성 경로는 매우 특이적이고 다양한 축적 기관을 포함하여 복잡하고 다양합니다1. 현재 많은 약용 식물에서 2차 대사 산물에 대한 특정 합성 부위와 책임 기관은 잘 정의되어 있지 않습니다. 이러한 모호성은 의약 재료의 수확량과 품질을 모두 최적화하도록 설계된 재배 방법의 전략적 발전과 구현에 심각한 장애물이 됩니다.
분자 생물학, 생화학 및 동위원소 표지 기술은 약용 식물 2,3,4,5에서 2 차 대사 산물의 합성 경로 및 위치를 밝히기 위해 광범위하게 사용되며, 이러한 각 방법론은 효율성 및 정확성의 차이와 같은 고유 한 강점과 한계를 나타냅니다. 예를 들어, 분자 생물학 접근법은 생합성 경로 내의 위치를 정확히 찾아내는 데 높은 정밀도를 제공하지만 특히 시간이 많이 걸립니다. 이들의 유용성은 공개적으로 이용 가능한 게놈 염기서열이 없는 종에 대해 더욱 제한되며, 이러한 경우에는 이러한 기술의 실행 가능성을 떨어뜨린다6. 대조적으로, 3C/12C, 2H/1H 및 18O/16O와 같은 동위원소 비율을 사용하는 동위원소 표지 기술은 2차 대사 산물 7,8의 합성, 수송 및 저장 메커니즘을 조사할 수 있는 빠르고 접근 가능한 수단을 제공합니다. 그들은 잎에 있는 유기 화합물과 안정 동위원소의 공간적 분포를 밝힐 수 있으며, 이를 통해 잎이 수명주기 동안 경험하는 환경 조건을 재구성할 수 있다9. 또한, 13C 6-Glucose10 및 13C 6-Phenylalanine 11과 같은 외부 동위원소 표지의 적용은 탄소 표지된 2차 대사 산물의 생성을 가능하게 하여 그들의 생산 및 기능에 대한 이해를 향상시킵니다.
기존의 탄소 동위원소 표지 기법은 생합성 경로와 수송 메커니즘의 매우 종 특이적인 특성으로 인해 2차 대사산물의 합성을 담당하는 특정 장기를 정확히 찾아내는 데 어려움을 겪습니다. 액체 크로마토그래피-질량분석법(LC-MS)은 이 분야에서 중추적인 분석 기기로 두각을 나타내고 있으며, 약물의 화학적 합성에서 외인성 동위원소를 추적하고 흡수, 분포, 대사 및 배설과 같은 생체 내 과정을 조사하기 위한 강력한 방법을 제공합니다12. LC-MS의 우수한 감도, 직설성 및 신뢰성은 식물13에서 2차 대사 산물의 생성을 모니터링하는 데 이상적인 선택입니다. 최근 LC-MS는 다양한 샘플에 대한 라벨링 효율성을 평가할 수 있는 외부 동위원소 라벨링 기술에 적용하기 위해 점점 더 선호되고 있습니다. 이 방법론은 약용 식물에서 2차 대사 산물의 합성에 관여하는 1차 기관에 대한 중요한 통찰력을 제공하며, 이러한 화합물14,15의 합성 기관을 식별하기 위한 생물학적 방법에 대한 귀중한 보완 자료 역할을 합니다. 결과적으로, 이 접근법은 다양한 표본 간의 라벨링 효율성 비교를 용이하게 할 뿐만 아니라 식물 2차 대사 산물의 생성과 관련된 주요 장기를 밝혀 생합성에 대한 이해를 향상시킵니다.
탄소 동위원소 라벨링과 LC-MS 검출을 결합하여 약용 식물에서 2차 대사 산물을 합성하는 1차 장기를 식별하는 새로운 방법을 도입했습니다. 파리 사포닌(Paris saponin, PS)은 항암, 면역조절, 항염증 등의 다양한 약리작용을 하며16 PPY에 대한 수요가 증가하고 있다17. 따라서 우리는 PPY 묘목을 연구 주제로 사용하고 LC-MS 방법과 관련된 13C6-Glucose 라벨링을 사용하여 파리 사포닌 VII (PS VII) (그림 1B)를 합성하는 주요 기관이 잎이라는 것을 해독했습니다. 우리의 접근법에는 잎, 뿌리줄기 및 줄기-혈관 다발에 13C 6-Glucose 공급과 비급여 대조군을 포함하는 4가지 다른 치료법이 포함되었습니다. 13C 6-Glucose의 선택은 호흡을 통해 아세틸 코엔자임 A로 신속하게 대사 된 다음 PS 합성을 촉진하기 때문에 전략적입니다. 13C의 풍부한 자연량을 활용하여 가스 크로마토그래피 안정 동위원소 비율 질량 분석기(GC-IRMS) 시스템을 활용하여 다양한 식물 기관에서 13C/12C비율을 평가하고 PS VII 및 파리 사포닌 II(PS II)(그림 1B) 분자의 동위원소 이온 피크 비율을 분석했습니다. 13개의 C 라벨링 식물 2차 대사산물 전구체와 최첨단 질량 분석 기술을 활용하는 당사의 방법론은 기존 탄소 동위원소 라벨링 방법에 대한 더 간단하고 정확한 대안을 제공합니다. 이 새로운 접근법은 약용 식물의 2차 대사 산물 합성에 관여하는 장기에 대한 이해를 심화시킬 뿐만 아니라 이러한 화합물의 생합성 경로에 대한 향후 탐구를 위한 견고한 토대를 마련합니다.
프로토콜
1. 실험 준비
- 식물이 자라는 동안 온실의 상대 습도는 75%, 낮/밤 온도는 20°C/10°C, 광주는 낮 12시간, 밤 12시간으로 구성되며 광도는 100μmol·m-2·s-1인지 확인하십시오. 발광 다이오드(LED) 램프를 통해 조도를 제공하고 LED 램프와 식물 캐노피 사이에 30cm의 거리를 유지합니다.
참고: 광주기와 광도는 윈난성의 성장 기간 동안 일조 시간의 수에 따라 다릅니다. 방사 조도는 일반적으로 양자 센서에 의해 측정됩니다( 재료 표 참조). 약용 식물의 특성에 따라 환경 매개 변수를 필요한 변경하십시오. 이러한 환경 조건이 식물의 특성과 지역별 햇빛 프로파일에 따라 신중하게 조정된 후에는 실험 기간 동안 이러한 환경에서 일관성을 유지하는 것이 중요합니다. 초기 설정 후 환경 매개변수를 임의로 변경하면 실험의 무결성과 결과의 신뢰성이 손상될 수 있습니다. - 실험의 정확성과 특이성을 보장하기 위해 수경재배 접근법18 을 사용하십시오. 세척한 2년 된 PPY 묘목(윈난성 원산(104°11′E, 23°04′N)에서 수확)을 Hoagland의 영양 용액의 1/4 표준 농도에 3일 동안 담가 적응을 위해 확인하십시오.
- 지침에 따라 Hoagland의 영양소(재료 표 참조) 용액을 준비합니다. 정제수 1.26L에 Hoagland 분말 1.945g과 질산칼슘 분말 0.945g을 넣습니다. 표준 설명서에 설명된 대로 13C6-Glucose(재료 표 참조) 용액을 준비합니다. 0.2g의 13C6-포도당 분말을 정제수 100mL 또는 Hoagland의 영양 용액에 넣습니다.
- 수경 재배 탱크와 산소 펌프를 준비합니다(그림 2, 재료 표 참조).
참고: 수경 재배 설정에서 라벨링을 위해 13C6-Glucose 용액을 사용하면 토양 미생물의 영향을 피할 수 있으므로 용액이 약용 식물에서 2차 대사 산물의 빠른 합성에 직접 기여하도록 합니다. 식물이 13C 6-Glucose를 흡수하기 위한 조건을 최적화하려면 산소 펌프의 유량을 4에서 8 L/min 사이로 조절하는 것이 필수적입니다. 이 제어된 유속은 묘목이 물 표면 위에 떠 있는 것을 방지하는 데 중요하며, 이는 13C6-Glucose를 효과적으로 흡수하는 능력을 크게 방해할 수 있습니다. 묘목을 올바른 깊이로 담그는 상태로 유지하면 라벨링 화합물을 효율적으로 흡수할 수 있어 수경 재배 시스템에서 대사 산물 합성 공정의 성공을 보장할 수 있습니다.
2. 탄소표지 실험 운영
- 4가지 치료법을 설정하고 PPY에서 PS VII 및 PS II의 합성 기관과 경로를 추적하여 잎이 PS를 합성하는 주요 기관임을 입증합니다.
- 처리 1에서 PPY 묘목은 먹이를 주지 않습니다. 처리 2에서 PPY 묘목 잎에 0.2 % 13C6- 포도당을 뿌립니다. 처리 3에서, PPY 묘목 뿌리 줄기에 0.2 % 13C6- 포도당을 먹이십시오. 처리 3에서 줄기 절개 부위의 PPY 묘목에 0.2% 13C 6-Glucose를 공급합니다(그림 2A).
참고: 치료 1은 대조군으로 설정되어 있습니다. 처리 2는 잎이 PS를 합성할 수 있음을 보여주기 위해 설정되었으며, 처리 3과 4는 뿌리줄기가 13C6-Glucose를 차지할 수 있음을 보여주기 위해 설정되었습니다. - 처리 1과 2에서는 일반 Hoagland의 영양 용액에서 PPY 묘목을 배양합니다. 0.2% 13C 6-Glucose 용액 5mL를 아침, 오후, 저녁에 한 번씩 트리트먼트 2의 잎에 뿌립니다.
- 처리 3 및 4에서는 0.2 % 13C6- 포도당을 함유 한 Hoagland의 영양 용액에서 PPY 묘목을 배양합니다. 치료 4에서는 메스( 재료 표 참조)를 사용하여 PPY 묘목의 줄기를 중간에서 자르지만 혈관 다발은 부착된 상태로 유지합니다.
- 각 처리에 3일 동안 라벨을 붙이고 1.5일마다 영양 용액을 교체하십시오. 무작위 블럭 설계를 사용하여 실험을 수행하고 각 처리를 3회 반복합니다.
알림: 잎에 스프레이를 뿌릴 때 스프레이된 잎 뒤에 흡수제를 놓는 것이 중요합니다. 이렇게 하면 실험 결과에 영향을 미칠 수 있는 아래의 영양 용액으로 물방울이 떨어지는 것을 방지할 수 있습니다. 줄기의 상처는 모두 제거되지 않았지만 육안으로 볼 수 있는 도관이 부착되어 있습니다.
- 처리 1에서 PPY 묘목은 먹이를 주지 않습니다. 처리 2에서 PPY 묘목 잎에 0.2 % 13C6- 포도당을 뿌립니다. 처리 3에서, PPY 묘목 뿌리 줄기에 0.2 % 13C6- 포도당을 먹이십시오. 처리 3에서 줄기 절개 부위의 PPY 묘목에 0.2% 13C 6-Glucose를 공급합니다(그림 2A).
3. 샘플링 및 준비 방법
- 3일간의 13C 6-Glucose 실험이 끝날 때 각 처리에서 잎, 줄기, 뿌리줄기 및 뿌리를 개별적으로 수집합니다. 채취한 식물 기관을 철저히 세척하여 표면의 불순물을 제거합니다.
참고: 세척액의 LC-MS 분석으로 13°C가 풍부하지 않다는 것을 알 수 있으며, 이는 세척이 깨끗하다는 것을 증명합니다19. - 전기 항온 급속 건조 오븐( 재료 표 참조)을 사용하여 세척된 식물 기관을 건조시킵니다. 105°C에서 30분 동안 시작한 다음 일정한 무게가 될 때까지 60°C에서 설정합니다. 완전 자동 샘플 래피드 그라인더를 사용하여 건조된 식물 내장을 분말로 분쇄합니다( 재료 표 참조).
참고: 이 분말은 다양한 식물 기관에서 PS VII, II 및 13C/12C 비율의 정량 분석에 사용됩니다. - 전자 분석 저울( 재료 표 참조)을 사용하여 각 샘플당 30mg의 분말을 정확하게 칭량하고 75% v/v 에탄올-물 2mL에 넣습니다. CNC 초음파 세척기 ( 재료 표 참조)를 사용하고 25 ° C에서 20 분 (60kHz) 동안 초음파 추출을 수행하고 2 번 반복하십시오. 추출 용액을 병합하고 3개의 병렬 샘플을 준비합니다20.
알림: 샘플 무게의 오류를 최소화해야 합니다. - 질소를 사용하여 추출 용액을 불어 건조시킨 다음 크로마토그래피 메탄올에 1mL 부피로 용해시킵니다. 주입하기 전에 여과를 위해 0.22μm 유기상 필터( 재료 표 참조)를 사용하십시오(그림 2B).
알림: 질소 가스로 불어 건조할 때 추출물을 불어내지 마십시오. 추출물은 불순물의 간섭을 최소화하기 위해 미세 다공성 멤브레인을 통과해야 합니다.
4. LC-MS 설정 및 운영
- MS 설정
- 스위치를 켜짐 위치로 전환하여 진공 펌프를 활성화합니다. 아르곤 가스 실린더의 메인 밸브를 연 다음 부분 압력 밸브를 조정하여 약 0.3MPa의 목표 압력을 달성합니다. 그런 다음 질소 가스 밸브도 열려 있는지 확인하십시오.
- MS 제어 소프트웨어를 시작합니다( 재료 표 참조). 소프트웨어 패널에서 가열된 전기분무 이온화 소스(HESI 소스)를 클릭하고 모세관 전압 (네거티브 모드의 경우 3.0kV), 모세관 온도 (350°C), 피복 가스 (N2), 유 속 (35 임의 단위), 보조 가스 (N2) 유량 (15 임의 단위)을 포함한 매개변수를 입력합니다), PS의 분자량(m/z 100-1,500에서 작동)을 기반으로 한 전체 스캐닝을 통해. Apply(적용 ) 버튼을 클릭하여 이온 소스를 활성화합니다.
알림: 실험 조건에 대한 충분한 진공도를 보장하기 위해 최소 8시간 동안 기다리십시오. 분석하기 전에 아르곤과 질소의 가스 압력이 충분히 높은지 확인하십시오.
- LC 사전 실행
- 0.1% 포름산을 물과 혼합하여 이동상 A를 준비하고 이동상 B에는 아세토니트릴을 사용합니다( 재료 표 참조). 용해 된 가스를 제거하기 위해 15 분 동안 초음파 수조 초음파 발생기에서 두 상을 모두 탈기하십시오. 그런 다음 이동상 A를 해당 유체 통로에 연결하고 이동상 B에 대해 동일한 작업을 수행합니다. 마지막으로, 세척액에 1:9 v/v 메탄올-물 용액을 혼합하고 펌프와 인젝터 병을 수동으로 채웁니다.
알림: 초음파 수조 초음파 발생 기의 주파수는 40kHz입니다.
- 0.1% 포름산을 물과 혼합하여 이동상 A를 준비하고 이동상 B에는 아세토니트릴을 사용합니다( 재료 표 참조). 용해 된 가스를 제거하기 위해 15 분 동안 초음파 수조 초음파 발생기에서 두 상을 모두 탈기하십시오. 그런 다음 이동상 A를 해당 유체 통로에 연결하고 이동상 B에 대해 동일한 작업을 수행합니다. 마지막으로, 세척액에 1:9 v/v 메탄올-물 용액을 혼합하고 펌프와 인젝터 병을 수동으로 채웁니다.
- LC 분석법 확립
- "Instrument Setup" 버튼을 선택하여 분석법 편집 창에 액세스합니다.
- "New(새로 만들기) 버튼을 눌러 새로운 LC-MS 기기 분석법 생성을 시작합니다.
- LC Method의 총 실행 시간을 설정합니다. 그런 다음 분석법 편집 창에서 압력 한계, 총 유속, 유량 구배, 시료 온도, 컬럼 온도 및 준비 온도 델타에 필요한 값을 입력합니다.
참고: LC-MS 기기 분석법 설정은 관심 분석물과 사용되는 액체 크로마토그래피 컬럼의 유형에 맞게 조정됩니다. 최적의 결과를 얻으려면 40°C로 유지되는 BEH C18 컬럼과 함께 0.3mL/분의 유속을 사용하십시오(재료 표 참조). 그래디언트 용리는 다음과 같이 구성됩니다: 10% B에서 시작하여 8분 동안 30% B로 선형으로 증가, 8분에서 16분까지 45% B, 16분에서 24분까지 50% B, 24분에서 30분 사이에 70% B로 증가합니다. 그 직후 그래디언트를 0.1분 이내에 초기 10% B 상태로 되돌리고 추가로 2.9분 동안 유지합니다. 각 분석에 대해 5μL의 시료 부피를 주입합니다. LC-MS 기기 분석법 설정은 분석할 특정 물질과 사용되는 액체 크로마토그래피 컬럼의 유형에 따라 다릅니다21.
- MS 취득
- Settings( 설정 ) 탭에서 MS Method 구성에 대한 General MS(일반 MS ) 또는 MS n experiment(MSn 실험) 유형을 선택합니다. 획득 시간, 극성(양수 또는 음수), 질량 범위 전환 밸브 수 및 전환 밸브 지속 시간을 설정하는 데 필요한 값을 입력합니다. 이러한 세부 정보를 입력한 후 "Save" 버튼을 클릭하여 이러한 설정을 완료하고 Instrument Method로 저장합니다.
참고: 크로마토그래피 컬럼이 없는 기본 설정은 다음과 같습니다: 획득 시간, 2분; 극성, 양극 또는 음수; 질량 범위, 100 - 1,500.
- Settings( 설정 ) 탭에서 MS Method 구성에 대한 General MS(일반 MS ) 또는 MS n experiment(MSn 실험) 유형을 선택합니다. 획득 시간, 극성(양수 또는 음수), 질량 범위 전환 밸브 수 및 전환 밸브 지속 시간을 설정하는 데 필요한 값을 입력합니다. 이러한 세부 정보를 입력한 후 "Save" 버튼을 클릭하여 이러한 설정을 완료하고 Instrument Method로 저장합니다.
- 기존 방법에 따라 다단계 질량 분석법을 수행합니다.
- 다단계 질량 분석법에서 데이터 수집을 위해 항상 DDA(Data-Dependent Acquisition) 모드를 사용합니다. DDA 모드에서 질량 분석기는 탠덤 MS의 첫 번째 단계에서 각 스캔 중에 가장 강한 5개의 이온을 식별하며, 이는 이후 탠덤 질량 분석법의 두 번째 단계에서 단편화되어 검사됩니다.
참고: 수집된 MS 및 MS/MS 데이터는 후속 분석 및 데이터베이스 검색에 사용할 수 있습니다.
- 다단계 질량 분석법에서 데이터 수집을 위해 항상 DDA(Data-Dependent Acquisition) 모드를 사용합니다. DDA 모드에서 질량 분석기는 탠덤 MS의 첫 번째 단계에서 각 스캔 중에 가장 강한 5개의 이온을 식별하며, 이는 이후 탠덤 질량 분석법의 두 번째 단계에서 단편화되어 검사됩니다.
5. 수동 데이터 수집, 분석 및 계산
- 데이터 수집 및 분석
- 원시 파일을 두 번 클릭하여 MS의 모든 질량 스펙트럼을 엽니다. 이온과 해당 단편 이온 사이의 m/z 차이 값을 수동으로 계산합니다.
- 대조군, 시료 처리 및 블랭크의 원시 데이터 파일을 질량 분석 소프트웨어로 가져와 질량과 PS 단편을 정확하게 계산하여 PS를 식별합니다.
참고: PS VII 및 PS II는 실제 표준 용액의 머무름 시간 및 공동 용리와 비교하여 식별됩니다. LC-MS는 분자 이온 피크의 위치에서 일련의 작은 피크를 감지합니다. 각 일련의 동위원소 이온 피크의 비율은 일정합니다. 외인성 13C 동위원소가 주어지면 식물의 총 13C 풍부도가 증가하고 식물 2 차 대사 산물의 일련의 동위원소 이온 피크의 비율이 변합니다. 질량 오류의 최대 허용 오차는 5ppm으로 설정됩니다. - 질량 범위 m/z 500-1,500을 스캔하여 기본 피크를 식별합니다. 표적 분자의 정확한 분자량과 머무름 시간에 따라 소수점 이하 4자리까지 정확한 분자량을 결정합니다. 직렬 동위원소 이온 흐름의 피크 면적을 검색하고 M−, (M+1) −, (M+2) −, (M+3) − 및 (M+4) −에 대한 값을 도출합니다. 이동상에 포름산이 포함된 경우 음이온에는 (M+COOH) −, (M+COOH+1) −, (M+COOH+2) −, (M+COOH+3) − 및 (M+COOH+4) −도 포함됩니다.
참고: 질량 범위 m/z 500-1,500 내의 피크를 선택하면 PS VII 및 PS II에 대한 분자 이온 피크 식별 정확도가 향상됩니다. 예를 들어, PS VII (C51H82O21, 1030.5349)의 음이온 질량 스펙트럼은 주로 포름산-물 혼합물에서 COOH- 이온으로 이온화됩니다. 관찰된 직렬 동위원소 이온은 1029.53−, 1030.54−, 1031.54−, 1032.55−, 1033.55−를 포함하며 1079.56−까지 확장됩니다.
- 데이터 계산
- 13C자연 풍부도의 영향을 줄이려면 특히 (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− 및 (M+4)−/ M−의 비율에 중점을 두고 서로 다른 처리하에서 각 장기에 대해 표지된 이온 전류와 표지되지 않은 이온 전류의 비율을 계산하십시오. 13C통합의 정확한 평가를 위해 표지된 동위원소와 자연 발생 동위원소를 구별하려면 방정식 (1)을 사용하여 n = 1, 2, 3, 4에 대해 이러한 비율을 계산합니다.
비율 = A (M+2) −/ AM− (1)
추신: (M+2) - (M+2+COOH) - 및 (M+2) -를 포함합니다. M− (M+COOH) - 및 M−을 포함합니다.
참고: 여기서 M- 은 (M+COOH) - 및 M -에 대한 이온 전류의 결합된 피크 면적을 나타내며, 주로 포름산수에서 COOH- 로 이온화됩니다. A 는 피크 면적을 나타냅니다. 예를 들어, PS VII 비율을 계산하는 공식은 다음과 같습니다.
비율 + 1 = (A1030.54 + A1076.55) / (A1029.53 + A1075.55)
비율 + 2 = (A1031.54 + A1077.55) / (A1029.53 + A1075.55)
비율 + 3 = (A1032.55 + A1078.56) / (A1029.53 + A1075.55)
비율 + 4 = (A1033.55 + A1079.56) / (A1029.53 + A1075.55)
- 13C자연 풍부도의 영향을 줄이려면 특히 (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− 및 (M+4)−/ M−의 비율에 중점을 두고 서로 다른 처리하에서 각 장기에 대해 표지된 이온 전류와 표지되지 않은 이온 전류의 비율을 계산하십시오. 13C통합의 정확한 평가를 위해 표지된 동위원소와 자연 발생 동위원소를 구별하려면 방정식 (1)을 사용하여 n = 1, 2, 3, 4에 대해 이러한 비율을 계산합니다.
결과
뿌리줄기에서 13C 6-Glucose 공급이 성공적이었는지 확인하기 위해 뿌리줄기에서 13C/12C 동위원소 비율을 추가로 분석했습니다. 처리 3과 4의 13°C/12C동위원소 비율은 처리 2의 동위원소 비율보다 훨씬 높았습니다(그림 1A). 그 결과, 처리 3 및 4의 13C 6-Glucose가 섭취를 통해 뿌리 줄기에 들어간 것으로 나타났습니다.
(M+1) −/M−, (M+2) −/M−, (M+3) −/M− 및 (M+4) −/M−와 같은 13개의 C 동위원소 피크의 비율은 일반적으로 일정하게 유지됩니다. 외인성으로 첨가된 13C로 표지된 화합물은 표지되지 않은 화합물과 동일한 분자 구조, 유사한 분자량, 물리화학적 특성 및 머무름 시간을 갖습니다. 그러나 이러한 표지된 화합물을 질량 분석법을 사용하여 분석했을 때 동위원소 이온 피크의 비율이 변경되었습니다. 이 연구에서는 LC-MS를 사용하여 다양한 치료에서 PPY의 4가지 다른 장기에서 PS VII 및 PS II를 검출했습니다(그림 3). 처리 1과 비교하여, 결과는 외인성 13C로 처리된 PPY의 잎에서 PS VII(M+2) -/M−의 비율이 유의하게 증가했음을 나타냈다(그림 3B). 특히 PPY 잎에 13C6- 포도당을 분무 한 처리 2에서 2 개의 13C 원자로 표시된 PS VII를 합성하였다. 그러나, 처리 4에서, 잎의 PS VII 분자 (M+2) -/M−의 비율은 뿌리줄기 처리와 비영양 처리 간에 유의한 차이가 없었으며, 줄기, 뿌리줄기 및 뿌리에서 PS VII 분자 (M+1) −/M−, (M+3) −/M−, (M+4) −/M−의 비율은 4가지 처리 모두에서 유의한 차이를 보이지 않았다(그림 3A, C,D)입니다. 또한, PS II 분자(M+2) −/ M−의 비율은 처리 2에서 천천히 증가했습니다(그림 3F). 처리 1과 2 사이의 잎에서 PS II 분자 (M+1) -/M− 및 (M+4) -/M−의 비율에는 눈에 띄는 차이가 없었으며(그림 3E, H), PS II 분자(M+3) -/M−의 비율은 처리 1에 비해 처리 2의 잎이 눈에 띄게 감소한 것으로 나타났습니다(그림 3G). 이러한 발견은 PS VII의 합성이 실제로 13C 6-Glucose로 처리 된 잎에서 발생하며, PSs의 알려진 생합성 경로와 일치한다는 것을 시사합니다.
우리의 접근법은 PS II의 합성과 대조적으로 PPY에서 PS VII 합성의 주요 기관으로 잎을 제안합니다. 특히, 13C 6-Glucose로 잎을 처리한 후 13C 표지된 PS VII가 뿌리줄기에 없었으며, 이는 잎에서 뿌리줄기로 PS VII의 느린 수송을 의미합니다. 대조적으로, 줄기-혈관 다발 및 뿌리줄기 표지 처리 후 뿌리줄기에서 13C-표지된 PS II가 검출되었으며, 이는 이 단계에서 뿌리줄기 합성이 가능함을 나타내며 PS II 합성 위치에 대한 추가 탐색이 필요함을 나타냅니다. 잎의 PS VII 분자에 대한 (M + 2) − / M- 비율의 독점적 인 검출은 13C 6-Glucose의 대사 운명과 일치합니다. 흡수 후, 해당작용을 통해 대사되어 두 개의 13C동위원소를 가진 아세틸-CoA를 생성합니다. PS를 이소프레노이드 화합물로 간주하면 아세틸-CoA의 생합성은 메발론산(MVA) 또는 2-C-메틸-D-에리스리톨-4-인산(MEP) 경로(그림 4)를 통해 진행되어 (M+2) -/M− PS VII 형성으로 이어집니다. 따라서 우리의 연구는 PPY에서 PS VII 합성을 위한 결정적인 기관으로 잎을 설명합니다.

그림 1: 4가지 처리의 뿌리줄기에서 13°C/12°C 동위원소의 비율. (A) 처리 4 및 3의 뿌리줄기에서 13°C/12°C 동위원소의 비율은 처리 1과 2의 비율보다 훨씬 높았으며, 이는 13C6-포도당이 뿌리 섭식을 통해 뿌리줄기에 유의하게 유입되었음을 나타냅니다. 각 열은 반복실험 3번의 평균(± SE)을 나타냅니다. 기둥의 문자는 4 가지 처리에서 13C / 12C 동위 원소의 비율에서 크게 다르다는 것을 의미합니다 (p < 0.05). 약어: PS = 파리 사포닌. (B) PS VII(C51H82O21, 1030.5349)의 고분해능 질량 분석법은 16.83분의 머무름 시간으로 음이온을 검출하였다. 13C의 자연적 풍부도로 인해(12 C가12.000인 것에 비해 정확한 분자량이 13.003인 경우), 주로 (M+1)−, (M+2)−, (M+3)− 및 (M+4)−를 포함한 다양한 동위원소 피크가 PS VII 분자 이온 피크 M−과 동일한 머무름 시간에 나타납니다. 이러한 피크는 주로 포름산수의 COOH− 이온화 때문이었습니다. 확대된 막대 다이어그램은 이러한 동위원소 피크를 강조합니다. (M+1)−/M−, (M+2)−/M−, (M+3)−/M−, (M+4)−/M−의 이온 전류 비율을 계산하였다. 이러한 비율의 변화를 분석함으로써 사포닌의 생합성을 추적하고 추론할 수 있습니다. 여기서 M−는 (M+COOH)- 및 M−에 대한 이온 전류의 결합된 피크 면적을 나타냅니다. 그림 1B는 Wen et al.24에서 수정되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.

그림 2: 13C 6-Glucose 라벨링 및 데이터 통합 워크플로우. 묘목은 3 일 동안 0.2 % 13C6- 포도당을 분무하고 먹이어 표시하였다; 그런 다음 각 장기의 추출물을 LC/MS 및 GC/IRMS로 동위원소 분석하고 PS 합성의 장기 특이적 분석을 위한 피크 통합 및 데이터와 결합했습니다. (A) 다른 장기에서 포도당이 공급되는 것을 보여주는 개략도. 처리 1-4는 각각 잎, 줄기-혈관-다발 및 뿌리줄기에서 먹이를 주지 않고 먹이를 먹였습니다. (B) 분쇄 및 질소 분사 기기를 통해 건조된 PPY 조직에서 만든 추출된 액체의 LC-MS 분석 단계. 약어: LC/MS = 액체 크로마토그래피-질량 분석법; PPY = Parispolyphylla var. yunnanensis (프랜치.) 손. -Mzt.; PS = 파리 사포닌. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
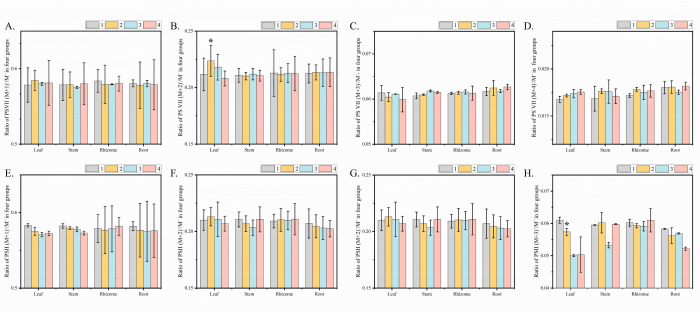
그림 3: 식물 장기의 13C6-포도당 공급을 통한 파리 사포닌 VII 및 파리 사포닌 II 생합성 추적. (서기-인도) 4 가지 치료의 각 기관에서 PS VII 분자 (M + 1) − / M−, (M + 2) − / M −, (M + 3) − / M −, (M + 4) − / M −의 비율. PS VII 분자 (M + 2) − / M −의 비율은 처리 2와 처리 3의 잎에서 유의하게 증가했습니다. 줄기, 뿌리 및 뿌리 줄기에서 PS VII 분자 (M + 2) − / M −의 비율은 4 가지 처리간에 뚜렷한 차이를 보이지 않았습니다. (E-H) 4 가지 치료의 각 기관에서 PS VII 분자 (M + 1) − / M−, (M + 2) − / M −, (M + 3) − / M −, (M + 4) − / M −의 비율. 처리 1과 비교했을 때, 잎의 PS II 분자 (M+2) −/ M−의 비율은 처리 2에서 차이가 없었습니다. 처리 2에서 PS II 분자 (M+1) −/M− 및 (M+4) −/M−의 비율은 처리 1과 비교하여 잎에서 뚜렷한 차이가 없습니다. PS II 분자 (M + 3) − / M −의 비율은 처리 1에 비해 잎에서 감소했습니다. 파리 사포닌 VII, PS VII. 각 열은 반복실험 3번의 평균(± SE)을 나타냅니다. "*"는 비수유 처리와 유의한 차이를 나타냈다(p < 0.01에서 t-검정). 약어: PS = 파리 사포닌. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.

그림 4: MVA 경로에 진입하는 외인성 13C6-포도당에 의해 생성된 PS VII에 대한 설명. MVA 경로를 통해 PS VII 분자(M+2) -/M−를 생성하기 위한 13C6-Glucose-labeled 아세틸 코엔자임 A의 대사 개략도. 라벨이 부착된 탄소는 빨간색으로 표시됩니다. 라벨이 없는 탄소는 회색입니다. 해당과정의 작용하에 13C6-Glucose는 아세틸 코엔자임 A(M+2)-의 두 분자로 절단된 다음 MVA 경로를 통해 이소펜테닐 피로인산과 디메틸 프로페닐 피로인산을 생성한 다음 게라닐게라닐 피로인산 합성효소, 파르네실 피로인산 합성효소, 스쿠알렌 합성효소, 스쿠알렌 에폭시게나제, 사이클로아테놀 합성효소 사이클로아르테놀의 촉매 생성을 통해 고리형 아테놀을 생성합니다. 그런 다음 산화, 탈카르복실화, 환원 및 기타 반응을 통해 콜레스테롤, 일련의 시토크롬 P450 효소를 통해 콜레스테롤, 글리코실전이효소 및 푸로스타노이드 사포닌 26-O-β-글루코시다아제를 얻어 두 개의 라벨링된 탄소를 포함하는 PS VII 분자의 형성의 늦은 수정. (남+2) - 이 시점에서 두 개의 탄소의 COOH-가 이온화되었음을 나타내며 두 탄소에 대한 라벨 수는 (M+2) -/M-를 사용하여 유도할 수 있습니다. 표준 프로토콜을 사용하여 동위원소를 개별적으로 식별하고 이온 전류를 분할하여 동위원소에 대한 라벨링 데이터를 얻었습니다. M−의 값은 안정적입니다. 약어: PS = 파리 사포닌; PS VII = 파리 사포닌 VII; MVA = Mevalonate 경로; GPPS = Geranylgeranyl 피로인산염 합성효소; FPPS = 파르네실 피로인산염 합성효소; SQS = 스쿠알렌 합성효소; SQE = 스쿠알렌 에폭시게나제; CYPs = 시토크롬 P450 효소; UGT = 글루쿠로닉 전이효소; F26G = 푸로스타노이드 사포닌 26-O-β-글루코시다아제. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
이 프로토콜의 성공적인 구현은 식물의 생리학적 특성, 조직, 장기 및 2차 대사 산물에 대한 포괄적인 연구에 달려 있습니다. 프로토콜에 요약된 실험 설계 접근법은 식물 2차 대사 산물의 생합성 경로를 조사하기 위한 강력한 토대를 마련합니다. 이 실험에서 중요한 요소는 (1) 다년생 묘목의 나이를 결정하고 (2) 올바른 동위원소 라벨링 검출 타이밍을 선택하는 것입니다. 약용 식물은 다년생 식물과 일년생 식물로 분류되며, 각각 2 차 대사 산물 합성 및 축적 패턴이 다릅니다. 이 실험은 약용 식물에서 2차 대사 산물의 1차 합성 기관을 이러한 대사 산물의 합성 속도를 분석하여 명확히 하는 것을 목표로 합니다. 따라서 이러한 합성 패턴과 속도에 해당하는 성장 연도와 단계를 신중하게 선택하는 것이 중요합니다.
PPY는 다년생 약용 식물이며 PS의 함량은 해마다 축적됩니다. 그러나, PS 종합의 비율은 다년생 식물의 PPY22의 그것과 다르지 않다는 것을 보여주었다. 동시에, 오래된 묘목에 비해 2 년생 묘목의 크기가 작기 때문에 수경 재배가 용이합니다. 그래서 이 연구에서는 2년 된 PPY 묘목을 사용했습니다. 이것은 선택된 식물이 가장 높은 비율의 2차 대사 산물 합성을 나타내도록 합니다. 서로 다른 종에 걸쳐 2차 대사산물의 합성 및 수송 속도의 차이를 인정하는 것이 중요하다23. 라벨링 감지 기간의 최적 길이는 이러한 속도에 의해 결정됩니다. 연구에 따르면 PPY 잎의 설탕과 PS의 함량은 3일 이내에 감소하며24, 이는 상당한 분자량으로 인해 PS의 느린 수송 과정이 이 기간 내에 완료될 가능성이 낮다는 것을 시사합니다. 처리 기간이 몇 시간 미만이면 표지된 PS 5,25에 대한 부적절한 합성 및 검출 어려움이 발생할 수 있습니다. 반대로, 치료를 3일 이상 연장하면 PS가 잎에서 뿌리줄기로 전위되어 실험 결과가 왜곡될 수 있습니다. 따라서 장기 간섭을 최소화하기 위해 3일의 중간 라벨링 기간을 선택하며, 특히 잎 스프레이 및 뿌리줄기 라벨링 방법의 경우 보다 정확한 실험 결과를 보장합니다.
Nicotiana tabacum 26,27 및 Brassica napus28에 대한 이전의 동위원소 표지 연구는 13C 6- 포도당 흡수 및 식물 조직으로의 통합을 성공적으로 보여주었습니다. 우리의 연구에서 우리는 수경법으로 자란 2년 된 PPY 묘목에 중점을 두었으며, 대조군 비수유 처리와 함께 잎, 뿌리줄기 및 줄기-혈관 다발에 대한 13C6-포도당 수유 처리를 구현했습니다. LC-MS 검출을 사용하여 라벨링 후 3일째까지 줄기-혈관 다발 및 뿌리줄기 섭식 처리의 뿌리줄기에서 13C/12C 비율이 비섭유 대조군보다 훨씬 높다는 것을 발견하여 효과적인 13C6-포도당 동화작용과 라벨링 접근법의 성공을 확인했습니다(그림 2). 이 연구에서는 PPY의 4가지 다른 기관에서 PS VII 및 PS II 분자에 대한 4가지 유형의 동위원소 이온 피크 비율((M+1) −/M−, (M+2) −/M−, (M+3) −/M− 및 (M+4) −/M−를 동시에 분석했습니다. 중요한 것은 잎 라벨링 처리에서 잎의 PS VII 분자(M+2) −/M−의 비율이 비급여 처리보다 눈에 띄게 높다는 것을 관찰했다는 것입니다. 뿌리줄기 아래의 잎에서 PS VII 분자(M+2) −/M−의 비율과 차이가 없는 비수유 처리(그림 3B). 또한, 비수유 처리와 비교했을 때, 잎 섭식 처리 하의 잎에서 파리 사포닌 II(PS II) 분자(M+2) −/M−의 비율은 유의한 차이가 없었고, 잎 섭식 처리한 잎에서 PS II 분자(M+3) −/M−의 비율은 더 낮았습니다(그림 3G). 줄기-혈관-다발 및 뿌리줄기 표지 처리는 비영양 처리와 비교하여 뿌리줄기에서 PS II 분자 (M+1) -/M− 및 (M+4) -/M−의 비율에서 유의한 차이를 보였습니다(그림 3E, H).
이 접근법을 다른 약용 식물에 적용할 때는 식물의 1차 2차 대사 산물의 전구체에 맞춘 마커 화합물을 선택하여 마커 특이성을 보장하는 것이 중요합니다. 표적 화합물이 주로 줄기에서 합성되는 경우, 라벨링 화합물은 줄기로 효율적으로 운반되고 줄기에서 대사될 수 있어야 합니다. PS VII의 경우 (M+2) −/M−와 같은 예상 동위원소 비율이 없는 경우 합성 경로를 다시 평가하여 화합물 라벨링의 적합성을 확인합니다. 영양 용액 내 라벨링 화합물의 농도는 원하는 장기 내의 표적 화합물로의 적절한 흡수 및 통합을 보장하기 위해 조정이 필요할 수 있습니다. LC-MS 검출 파라미터는 관심 있는 특정 라벨링된 대사체를 효과적으로 검출하기 위해 최적화가 필요할 수 있습니다. 여기에는 연구 중인 식물 종 및 장기에 고유한 화합물에 대한 민감도와 특이성을 향상시키기 위해 이온화 모드와 같은 질량 분석 설정을 조정하는 것이 포함될 수 있습니다. 줄기-혈관-다발 및 뿌리줄기 라벨링 처리의 뿌리줄기에서 13C/12C비율이 검출되지 않는 경우, Hoagland 영양 용액의 13C6-포도당 농도와 검출이 달성될 때까지 라벨링 기간을 늘려야 합니다. 본 연구에서 확립된 13C6-포도당 공급 방법 및 분석 기법은 다양한 약용 식물에서 2차 대사 산물의 합성 기관을 식별하기 위한 결과의 분석 및 해석을 안내해야 합니다.
이 실험에서 잎, 뿌리줄기 및 줄기-혈관 다발에 대한 13C 6-Glucose feeding and non-feeding 처리는 기존의 탄소 동위원소 표지 방법에 비해 2차 대사체의 합성 기관을 식별하는 데 더 큰 특이성을 제공합니다. 그럼에도 불구하고 과제는 여전히 남아 있습니다. 한 가지 주요 제한 사항은 모든 약용 식물에 적합한 획일적인 라벨링 검출 기간이 없다는 것입니다. 최적의 기간을 선택하면 라벨링 효율성이 향상됩니다. 또한 비율을 사용하여 결과를 분석하면 크고 복잡한 이성질체에서 작용기 위치의 구별이 복잡해집니다. 따라서 이 방법론을 사용하기 전에 철저한 문헌 검토와 예비 실험이 권장됩니다. 이 전략은 정확성과 효율성을 보장할 뿐만 아니라 식물 생물학 및 약리학에도 중요한 영향을 미칩니다. 이 방법을 유기 화합물 구조를 분석하는 주요 기술인 핵 자기 공명 분광법과 통합하면 13C라벨링 위치를 정확하게 식별할 수 있습니다. 이 방법은 식물 2차 대사 산물의 생합성 경로를 탐구하기 위한 길을 열어 약용 식물의 2차 대사 산물 합성에서 장기 특이성을 결정하기 위한 상세하고 효과적인 접근 방식을 제시합니다.
공개 사항
저자는 경쟁하는 재정적 이익이 없음을 선언합니다.
감사의 글
이 연구는 중국 국립 자연 과학 재단의 청소년 프로그램 (No. 82304670)의 자금 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.1% 포름산수 | Chengdu Kelong 화학 시약 공장 | 44890 | |
| 13C6-Glucose powder | MERCK | 110187-42-3 | |
| Acetonitrile | Chengdu Kelong 화학 시약 공장 | 44890 | |
| AUTOSAMPLER 바이알스 | Biosharp 생명공학 회사 | 44866 | |
| BEH C18 열 | Waters, Milfor, MA | 1.7μ m,2.1*100 mm | |
| CNC 초음파 세척기 | Kunshan Ultrasound Instrument Co., Ltd | KQ-600DE | |
| Compound DiscovererTM 소프트웨어 | Thermo Scientific, Fremont,CA | 3 | |
| Compound DiscovererTM 소프트웨어 | Thermo Scientific, Fremont, CA | 3 | |
| 전기 항온 폭발 건조 오븐 | DHG-9146A | ||
| 전자 분석 저울 | Sedolis Scientific Instruments Beijing Co., Ltd | SOP | |
| 에탄올 | Chengdu Kelong 화학 시약 공장 | 44955 | |
| 완전 자동 샘플 급속 분쇄기 | Shanghai Jingxin Technology | Tissuelyser-48 | |
| 가스 크로마토그래피 - 안정 동위원소 비율 질량 분석기 | Thermo Fisher | Delta V Advantage | |
| Hoagland 솔루션 | Sigma-Aldrich | H2295-1L | |
| 수경 탱크 | JRD | 1020421 | |
| Isodat 소프트웨어 | Thermo Fisher Scientific | 3 | |
| 액체 크로마토그래피 고분해능 질량 분석기 | Agilent Technology | 애질런트 1260 -6120 | |
| 질소 제조 기기 | PEAK SCIENTIFIC | Genius SQ 24 | |
| 유기상 필터 | Tianjin Jinteng Experimental Equipment Co., Ltd | 44890 | |
| 산소 펌프 | Magic Dragon | MFL | |
| 양자 센서 | Highpoint | UPRtek | |
| 메스 | Handskit | 11-23 | |
| 뿌리기 CHUSHI | WJ-001 | ||
| Xcalibur 소프트웨어 | Thermo Fisher Scientific | 4.2 |
참고문헌
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
재인쇄 및 허가
태그
