췌장암은 여전히 치료하기 가장 어려운 암 중 하나입니다. 따라서 치료 효능을 평가하는 전임상 모델은 재현 가능하고 임상적으로 관련성이 있어야 합니다. 이 프로토콜은 재현 가능하고 임상적으로 유의미한 탈형성 스페로이드를 생성하기 위한 간단한 공동 배양 절차를 설명합니다.
방법 논문
공동 배양에서 Desmoplastic Three-dimensional Pancreatic Cancer Spheroids 성장
이 논문에서
요약
초록
췌관 선암(PDAC)은 5년 생존율이 <12%인 가장 치명적인 암 중 하나입니다. 치료의 가장 큰 장벽은 종양을 둘러싸고 있는 조밀한 박형성 세포외 기질(ECM)로, 일반적으로 박형성이라고 하는 혈관화를 감소시킵니다. 암을 치료하기 위해 다양한 약물 조합과 제형이 테스트되었으며, 그 중 많은 약물이 전임상에서는 성공을 보이지만 임상적으로는 실패합니다. 따라서 치료에 대한 종양의 반응을 예측할 수 있는 임상적으로 유의미한 모델을 보유하는 것이 중요합니다. 이 모델은 이전에 절제된 임상 종양에 대해 검증되었습니다. 여기에서는 자연적으로 강력한 ECM을 생성할 수 있고 성장을 지원하기 위해 외부 매트릭스 소스나 스캐폴드가 필요하지 않은 탈형성 3차원(3D) 공동 배양 스페로이드를 성장시키기 위한 간단한 프로토콜에 대해 설명합니다.
간단히 말해서 인간 췌장 성상 세포(HPaSteC) 및 PANC-1 세포를 사용하여 각각 1:2 비율로 세포를 포함하는 현탁액을 제조합니다. 셀은 폴리-HEMA 코팅된 96-웰 저부착 U-웰 플레이트에 도금됩니다. 플레이트는 세포가 초기 펠릿을 형성할 수 있도록 원심분리됩니다. 플레이트는 5% CO2 와 함께 37°C의 인큐베이터에 보관하고 배지는 3일마다 교체합니다. 스페로이드 부피를 측정하기 위해 지정된 간격으로 플레이트를 이미지화할 수 있습니다. 14일간의 배양 후 성숙한 탈형성 스페로이드가 형성되고(즉, 평균 부피 0.048 + 0.012mm3(451μm x 462.84μm)) 실험적 치료 평가에 사용할 수 있습니다. 성숙한 ECM 성분에는 콜라겐-I, 히알루론산, 피브로넥틴 및 라미닌이 포함됩니다.
서론
췌장암의 나쁜 예후는 다양한 이유와 관련이 있으며, 그 중 하나는 쉽게 감지할 수 있는 바이오마커가 부족하여 늦게 발견된다는 것입니다. 또 다른 주요 원인은 조직을 둘러싸고 있는 두꺼운 기질로 인해 혈액 공급이 감소하기 때문입니다. 다량의 세포외기질(ECM)의 침착, 세포-세포 상호작용, 내피세포, 다양한 면역세포, 주위세포, 증식하는 근섬유아세포 및 섬유아세포 집단, 비종양 세포의 존재(함께 탈형성 반응을 구성)1는 PDAC의 화학요법 및 방사선 치료 내성을 담당하는 두꺼운 기질을 구성합니다2. 암과 기질 세포는 복잡하고 동적이며 양방향 상호 작용을 합니다. 일부 요소는 질병 진행을 약화시키거나 가속화하지만, 대부분의 과정은 종양의 발달 과정에서 적응합니다1. 이는 성장 인자, 전구 혈관 생성 인자, 프로테아제 및 접착 분자가 풍부한 환경을 제공합니다. 이러한 요인은 혈관 신생, 세포 증식, 전이 및 침입을 촉진합니다 3,4. 이들은 함께 종양에 대한 면역 및 약물 특권의 피난처가 되어 약물 내성을 유발합니다.
탈형성증은 면역 세포 및 췌장 성상 세포(PSC)와 함께 다양한 ECM 단백질로 구성된 복잡한 혼합물입니다. 이들은 함께 세포가 자랄 수 있는 발판을 형성하는 경향이 있습니다. PSC는 기질 구획(5)의 가장 큰 구성 요소 중 하나입니다. 매트릭스 메탈로프로테아제(MMP), 매트릭스 메탈로프로테아제 조직 억제제(TIMP) 및 암 관련 섬유아세포(CAF)6와 같은 효소를 생성하는 능력은 이들이 탈형성 반응의 발달에 중요한 역할을 할 가능성이 있음을 의미합니다. ECM, 암 관련 섬유아세포(CAF) 및 혈관 구조는 PDAC의 기본 측면입니다. CAF 중에서, 근섬유아세포(myofibroblast)와 염증성 CAF는 전종양(pro-tumor) 특성을 담당하는 활동성 누화(crosstalk)에 관여하는 것으로 추측된다7. 종양의 섬유아세포 형성이 광범위할수록 예후가 더 나쁩니다 8,9,10.
확립된 세포주를 통한 단층 세포 배양은 약물 독성을 분석하는 데 유용한 도구로 계속 사용되고 있으며 개념 증명 및 발견 연구를 위한 좋은 출발점입니다. 그러나 확립된 세포 배양주는 생식세포 DNA와 임상적 관련성이 부족하다11. 이들은 평평한 표면에서 성장하기 때문에 종양의 일부일 때와 비교하여 다른 in vitro selection 기준을 거치고, 비정상적으로 분열하며, 분화된 표현형을 잃는다12. 전반적으로, 단일 세포 배양은 종양 이질성을 제한하므로 임상적 타당성을 잃게 됩니다. 그들은 종양의 미세 환경(예: ECM)의 복잡성을 정확하게 나타낼 수 없습니다. 3D 배양은 복잡한 종양 미세환경을 보다 밀접하게 복제할 수 있습니다.
3D 배양은 1970년대에 건강한 세포와 종양 세포를 위해 도입되었습니다13. 스페로이드를 통한 악성 조직의 형태 및 구조를 연구하기 위해 여러 기술이 사용되어 왔다14. 기질 세포와의 공동 배양은 TME 신호를 모델링할 수 있습니다. EMT 마커의 상향 조절은 세포가 성상 세포15와 공동 배양될 때 관찰되었습니다. PDAC 스페로이드 및 기질과의 상호 작용은 ECM 구성 요소와의 공동 배양을 통해 모델링할 수 있습니다. PSC와의 특히 공동 배양은 임상적으로 관련된 약물 세포 독성 데이터를 생성하는 것으로 보고되었습니다 16,17,18. PSC는 또한 세포사멸을 회피하고 다양한 파라크린 인자(paracrine factor)19를 통해 암세포의 증식을 자극하고 EMT 전이를 유도함으로써 약물 내성을 돕습니다. 따라서 약물 또는 약물 전달 시스템의 성공을 평가하는 데 사용되는 기준에 초기 단계부터 PSC를 포함하는 것이 중요합니다. 췌장암 세포 단독과 비교하여 조합 시 증식을 촉진하고 더 빠른 성장을 지원하는 PSC의 능력은 면역력이 저하된 마우스20에서 두 세포주의 피하 측면 주사를 평가했을 때도 생체 내에서 관찰되었습니다.
ECM 구성 요소와 상호 작용할 수 있는 세포 유형의 능력은 공동 배양 스페로이드를 성장시킬 때 고려해야 할 중요한 요소입니다. BxPC-3와 PANC-1은 콜라겐에 결합하는 데 동일한 친화력을 갖는 것으로 보고되었습니다. 두 세포주는 또한 라미닌에 동등하게 결합하지만 BxPC-3가 21,22,23,24,25에 더 잘 결합한다는 보고가 있습니다. 이동 측면에서, Stahle 등[26]은 BxPC-3에 비해 PANC-1 세포에 대해 5배 더 빠른 운동성을 보여주었습니다. PANC-1 세포는 주로 단일 세포로 이동하는 반면, BxPC-3 세포는 밀집된 시트로 이동하는 것으로 보고되었습니다. 세포의 선택은 또한 종양의 크기에 영향을 미친다25. BxPC-3 종양은 PANC-1에서 얻은 종양보다27,28 더 큰 것으로 나타났지만, 한 연구에서는 그 반대인29 사례를 보여주었습니다. 크기와 운동성의 차이에도 불구하고 두 세포 모두 마우스에서 종양을 형성하기 위해 오랜 기간의 잠복기가 필요한 것으로 보고되었습니다. 이 기간은 BxPC-3의 경우 4주에서 4개월25에 이르는 경우 특히 길어질 수 있습니다. 그러나, BxPC-3 암 줄기세포(28) 또는 BxPC-3 암 줄기세포(30)가 눈에 보이는 종양을 더 빨리 형성한 문헌도 있으며, 이는 종양 성장 기간에 변이가 있을 수 있음을 암시한다. 따라서 여기에 명시된 기간은 종양 성장 속도에 대한 초기 지침으로만 사용되어야 합니다.
BxPC-3 세포는 표면에 느슨한 세포가 있고 코어가 조밀한 스페로이드를 형성하는 반면, PANC-1 세포는 다공성이지만 견고한 스페로이드31 과 소형 스페로이드를 모두 형성하는 것으로 보고되었습니다. PANC-1 세포는 또한 덜 분화되고 더 공격적인 것으로 보고되었습니다32. PANC-1 세포의 더 높은 운동성, 소형 스페로이드를 형성하는 능력 및 ECM 구성 요소와 상호 작용할 수 있는 능력과 결합된 공격적인 특성32 를 최우선으로 하여 PANC-1 세포가 스페로이드 연구를 위해 선택되었습니다.
지난 몇 년 동안 스페로이드 배양은 2차원(2D) 배양에 비해 임상적 관련성에서 이점을 입증하는 데 많은 성공을 거두었습니다. 그 관련성은 동물 연구를 대체하고 종양의 생물학을 더 잘 이해하기 위해 이 기술을 사용하는 데 활용되었습니다. 스페로이드의 임상적 관련성, 특히 PSC와 공동 배양할 때 스페로이드의 다양한 기능을 연구하는 데 사용할 수 있게되었습니다. 예를 들어 TGF-β34,35,36,37,38, E-cadherin, F-actin 18,34,36,37, α-SMA 34,35,37,38, 젖산 탈수소 효소 (LDHA) 32, HIF-1α35,39, 약물 내성 16,37,40, 세포 이동41, 세포 침습 37, 섬유증35, 방사선 내성42, 표현형 변화18, 이질성36, 세포 수준의 상호 작용수준 39 및 ECM 구성 요소 입증37,38,39. 설명된 데이터를 얻는 데 사용된 많은 프로토콜은 Matrigel, 행잉 드롭 방법, 인쇄된 금형 또는 기타 스캐폴드에 의존하여 스페로이드 및 ECM 성장을 지원하는 데 도움이 됩니다. 이 연구는 또한 일반적으로 인간이 아닌 섬유아세포 또는 환자로부터 갓 분리한 성상세포를 사용합니다. 종양이 생체 내 상태와 유사하게 만들려면 성상 세포를 사용하는 것이 중요하지만, 새로운 추출과 관련된 환자 간 변동성으로 인해 이러한 연구를 복제하기가 어렵습니다.
이 프로토콜은 개발하기 쉽고, 재현 가능하고, 임상적으로 관련성이 있고, 스캐폴딩이 없는 모델을 보여주는 것을 목표로 하며, 따라서 ECM을 자연적으로 생성하는 공동 배양의 능력에 전적으로 의존합니다. 이를 위해 줄기 세포처럼 행동하고 약물 내성이 높은 인간 췌장 성상 세포(HPaSteC)와 함께 PANC-1 세포(단일 세포로 이동하는 자연적인 경향으로 인해)를 혼합하는 간단한 공동 배양 방법을 선택했습니다. Durymanov et al.38의 연구를 기준선으로 사용하여 아래에 설명된 프로토콜은 세포 비율 및 배지 변화 간 지속 시간과 같은 매개변수를 추가로 최적화한 후 설정되었습니다. 이 프로토콜로부터 생성된 스페로이드는 신약 후보 평가(40)를 위한 모델 시스템으로 사용될 수 있다.
또한 스페로이드 배양에 익숙하지 않은 사용자의 경우 MISpheroID 지식 기반의 개발에 대해 논의하는 Peirsman et al.43작업이 도움이 될 수 있습니다. 실험실 프로토콜 간의 이질성에 대처하는 데 도움이 될 수 있는 몇 가지 최소 정보 지침을 설정합니다. 몇 가지 제한 사항이 있지만 이 연구는 배양 배지, 세포주, 스페로이드 형성 방법 및 최종 스페로이드 크기의 선택이 스페로이드의 표현형 특성을 결정하는 데 중요하다는 것을 보여주었습니다.
프로토콜
1. 2D 세포 배양
- 멸균 상태에서 10% 소 태아 혈청(FBS)이 보충된 Dulbecco의 DMEM(Modified Eagle Medium)에서 PANC-1 세포를 성장시킵니다. 통로 전에 최대 70%-80%의 밀도를 키우고 20번째 통로 이상 은 사용하지 마십시오. 4.2.1단계에 설명된 프로세스를 참조하십시오.
참고: 기준점으로, 20mL 배지에 있는 1 x 10⁶ 세포는 70-80% 밀도에 도달하는 데 약 2-3일이 필요합니다. - 멸균 조건에서 제조업체에서 제공한 키트를 사용하여 2% FBS, 1% PenStrep 및 1% SteCGS(Stellate Cell Growth Supplement)가 보충된 성상 세포 배지에서 HPaSteC 세포를 성장시킵니다. 4.2.2단계에 표시된 대로 제조업체의 지침(일부 수정 포함)에 따라 Poly-L-Lysine 코팅 플라스크에서 성장합니다.
- 트립신 중화 용액(TNS)이 사용되므로 제조업체의 프로토콜에서 트립신화 중 FBS 중화 단계를 건너뜁니다. 단계 4.2.2.2에 설명된 대로 TNS 10mL의 전체 부피로 세포 현탁액을 중화합니다.
참고: 기준점으로, 20mL 배지에서 0.5 x 10⁶ 세포 및 1 x 10⁶ 세포는 90% 밀도를 달성하기 위해 각각 3일과 2일이 필요합니다. - 90% 밀도에서 세포를 수확합니다. Passage 7 이외의 셀을 사용하지 마십시오.
- 트립신 중화 용액(TNS)이 사용되므로 제조업체의 프로토콜에서 트립신화 중 FBS 중화 단계를 건너뜁니다. 단계 4.2.2.2에 설명된 대로 TNS 10mL의 전체 부피로 세포 현탁액을 중화합니다.
- 상대 습도가 90%-95%인 멸균 인큐베이터에서 5% CO2로 37°C에서 세포를 유지합니다. T-75 플라스크에서 모든 세포 배양 연구를 수행합니다.
2. 96 웰 플레이트용 폴리(2 - 하이드록시에틸 메타크릴레이트(폴리-HEMA) 용액 코팅
- 95% 에탄올을 사용하여 37°C에서 가열된 교반기를 사용하여 밤새 혼합하여 5mg/mL의 poly-HEMA 용액을 준비합니다(예: 500mL 용액에는 2.5g의 poly-HEMA 필요).
- 교반기를 추가하기 전에 시작 볼륨 위치를 표시하십시오. 95% 에탄올을 사용하여 다음날 용액의 손실을 만회하십시오.
- 0.22μm 필터를 사용하여 멸균 후드에서 최종 용액을 여과하고 4°C의 냉장고에 보관합니다.
참고: Poly-HEMA는 표면의 소수성을 증가시키는 데 사용되며, 이는 세포가 부착되는 것을 억제하는 역할을 합니다. 이 연구는 세포가 웰에 부착되지 않고 단층으로 성장하도록 요구하기 때문에 poly-HEMA는 플레이트의 자연적인 낮은 부착 기능에 대한 추가 억제제로 사용되어 초저 부착 플레이트를 만듭니다. - 세포 배양 후드 내부에 있는 96웰 원형 폴리스티렌 바닥 마이크로웰 플레이트의 각 웰에 50μL의 콜드 용액을 추가하여 플레이트를 코팅합니다.
- 접시가 완전히 건조되도록 37°C의 열풍 오븐에 뚜껑을 덮은 상태로 우물을 3일 동안 그대로 두십시오.
- 세포 파종 전에 세포 배양 후드에서 30분 동안 플레이트를 UV 멸균합니다. 장기간 보관을 위해 단단히 닫힌 지퍼 잠금 장치에 보관하고 사용하기 전에 소독하십시오.
3. 2D 세포 배양 계획
- HPaSteC 세포가 90%에 도달하는 같은 날 PANC-1 세포가 70%-80% 밀도로 사용 가능하도록 실험 시간을 정합니다.
참고: PANC-1 또는 HPaSteC의 약 100만 개 세포를 함유한 바이알은 같은 날 액체 질소에서 올리는 경우 약간의 차이가 있지만 두 세포주를 같은 날에 준비하려면 8일의 PANC-1 배양과 6-7일의 HPaSteC 배양이 필요합니다.
4. 3D 문화 성장
- 이상을 참조하십시오view 프로세스를 시작하기 전에 그림 1 의 전체 프로세스.
주의: PANC-1과 HPaSteC은 모두 생물학적 기원입니다. PANC-1(암성 세포주)을 주의해서 다루십시오. - Trypsinzing 및 세포 계수
- Trypsinze 및 PANC-1 세포 계수:
- 상층액을 버리고 PANC-1 세포를 9mL의 HBSS(한 번에 3mL)로 세척합니다. 살아 있는/생존 가능한 물질의 완전한 죽음을 보장하기 위해 20-25% V/V 표백제 용액에 포함된 후드에 사용된 시약을 폐기하십시오.
- 2mL의 트립신으로 세포를 트립신화합니다. 거의 10분 후(더 많은 시간이 필요할 수 있음) 모든 세포가 분리되면 10mL의 DMEM + 10% FBS로 현탁액을 중화합니다. 3mL로 시작하여 트립신화된 세포의 최대 수집을 보장하기 위해 세척당 1mL(7회 세척 남음)를 사용하여 후속 세척 단계를 수행합니다.
- 각 중화된 부분 표본을 동일한 15mL 튜브에 합칩니다. 튜브의 최종 부피는 12mL(10mL 배지로 중화된 트립신 ~2mL)에 가깝습니다.
- 중화된 셀 현탁액을 700 x g 에서 2분 30초 동안 원심분리합니다. 상층액을 버리고 DMEM +10% FBS 1mL에서 얻은 펠릿을 재현탁시킵니다. 세포 계수를 위해 여기에서 부분 표본을 취하고 이 섹션에서 얻은 값에 "Count A"라는 레이블을 지정합니다.
- Trypsinze 및 HPaSteC 세포 계수.
- 상층액을 버리고 HPaSteC 세포를 9mL의 HBSS(한 번에 3mL)로 세척합니다.
- 2mL의 트립신으로 세포를 트립신화합니다. 거의 10분 후 모든 세포가 분리되면 10mL의 트립신 중화 용액으로 현탁액을 중화합니다. 3mL로 시작하여 트립신화된 세포의 최대 수집을 보장하기 위해 세척당 1mL(7회 세척 남음)를 사용하여 후속 세척 단계를 수행합니다.
- 각 중화된 부분 표본을 동일한 15mL 튜브에 합칩니다. 튜브의 최종 부피는 12mL(10mL의 중화 용액으로 중화된 트립신 ~2mL)에 가깝습니다.
- 중화된 셀 현탁액을 700 x g 에서 2분 30초 동안 원심분리합니다. 상층액을 버리고 보충된 성상세포 매체 1mL에서 얻어진 펠릿을 재현탁시킵니다. 세포 계수를 위해 여기에서 부분 표본을 취하고 이 섹션에서 얻은 값을 "Count B"로 레이블을 지정합니다.
- Trypsinze 및 PANC-1 세포 계수:
- 초기 세포 현탁액 희석하기
- 카운트 A와 B를 모두 얻은 후 또는 PANC-1과 HPaSteC을 모두 트립시화 및 중화한 후 필요한 경우(0.5시간 이상) 이 단계에서 잠시 중지하십시오. 사용하지 않은 배양 배지는 37°C에서 유지하고 세포 현탁액은 실온(RT; 25 ± 2°C)에서 유지합니다.
- 이전에 얻은 카운트 A와 카운트 B를 사용하여 부분 표본을 취하고 각각의 희석액(별도의 튜브에서)을 만들어 최종 부피가 1mL(희석제: DMEM + 두 바이알 모두에 대해 10% FBS)이고 최종 계수가 각 세포 유형에 대해 110,000-140,000개 세포 사이가 되도록 합니다. 이 희석이 이루어지면 각 희석에 대한 세포 수를 확인하여 카운트 C(PANC-1) 및 카운트 D(HPaSteC)를 제공합니다.
- 카운트 C와 카운트 D를 얻은 후 필요한 경우(15-30분 이하) 이 단계에서 일시 중지합니다. 4.3.3.2 단계에서 최종 희석이 이루어지면 멈추지 마십시오. 세포 침전을 피하기 위해 실험하십시오. 사용하지 않은 배양 배지는 37°C에서 유지하고 세포 현탁액은 RT(25 ± 2°C)로 유지합니다.
- HPaSteC: PANC-1: 60:120에서 웰당 필요한 최종 셀 수를 유지합니다. 초과분을 설명하기 위해 계산에 110개의 웰을 사용합니다. 웰당 100μL의 세포 현탁액의 기본 값으로 계산합니다(총 현탁 부피는 HPaSteC: PANC-1: 60:120을 사용하는 110웰의 경우 11mL임). 쉽게 혼합할 수 있도록 이 현탁액을 멸균 50mL 원심분리 튜브에 넣으십시오.
- 카운트 C와 카운트 D를 사용하고 DMEM + 10% FBS 용액에 충분한 세포 현탁액을 스파이크하여 최종 11mL(11mL에 6,600개의 HPaSteC 세포 및 13,200개의 PANC-1 세포)에서 HPaSteC: PANC-1: 60:120을 갖도록 합니다. 1mL 피펫을 사용하여 용액을 위아래로 저어주고 피펫팅하여 완전히 혼합합니다. 거품 형성을 피하십시오.
- 시드
- 200 μL 또는 100 μL 피펫을 사용하여 웰당 100 μL의 현탁액을 추가하기 전에 각 단계에서 최종 현탁액을 혼합합니다(피펫 팁을 위아래로 움직여 교반). 우물 모서리를 따라 100μL를 부드럽게 추가합니다.
- 떨어지지 않는 한 여러 웰에 동일한 팁을 재사용하십시오. 앞뒤로 섞고 플레이트의 전반부(대략 처음 43웰) 동안 각 웰에 추가할 때 10 또는 15(초가 아님)까지 센다. 현탁액 부피가 더 적고 혼합 시간이 더 적게 필요하기 때문에 후반부(나머지 43개 웰) 동안 각 웰 사이의 혼합 수를 5-10으로 낮춥니다.
- 소수성 poly-HEMA 코팅으로 인해 현탁액이 플레이트에서 튕겨 나와 고르지 않은 분포를 초래할 수 있으므로 반복 피펫터를 사용하지 마십시오.
- 모든 웰이 채워진 후 과도한 현탁액을 버리십시오.
- 200 μL 또는 100 μL 피펫을 사용하여 웰당 100 μL의 현탁액을 추가하기 전에 각 단계에서 최종 현탁액을 혼합합니다(피펫 팁을 위아래로 움직여 교반). 우물 모서리를 따라 100μL를 부드럽게 추가합니다.
- 원심 분리
- 셀 현탁액이 포함된 최종 플레이트를 원심분리하여 모든 셀을 펠릿으로 결합합니다. 이 단계에서 오염을 방지하기 위해 플레이트 테두리를 파라필름으로 조심스럽게 감쌉니다. 포장 후 1000 x g 의 균형추로 플레이트를 2분 동안 원심분리합니다.
- 플레이트를 세포 배양 후드에 다시 넣고(에탄올이 분무된 장갑을 사용하여 취급) 파라필름을 제거한 다음 플레이트를 37% CO2로 5°C의 인큐베이터에 보관합니다. 어떤 지점에서도 플레이트에 에탄올-물 혼합물을 뿌리지 마십시오.
- 문화 유지 관리
- 3일째까지 4x-5x 배율로 광학 현미경으로 세포가 모여 스페로이드를 형성하는 것을 봅니다. 아래 설명된 대로 문화권 유지 관리 프로토콜을 따릅니다.
- 3일째에 5-6mL의 DMEM + 10% FBS를 측정하고 웰 측면을 따라 각 웰에 50μL를 추가합니다.
- 스페로이드가 손상되거나 실수로 스페로이드가 제거될 수 있으므로 추가하는 동안 어떤 식으로든 매체를 혼합하거나 교반하지 마십시오. 웰당 최종 부피는 ~150μL입니다.
- 3일째 이후에는 그림 2 를 참조하여 우물의 구조와 헤일로라고 하는 매체에서 볼 수 있는 빛 반사(우물의 원통형 부분과 곡선 부분 사이)의 위치에 익숙해집니다. 스페로이드가 손상되지 않도록 주의해서 헤일로 가까이에서 작업을 수행하십시오.
- 6일째에 10-11mL의 DMEM + 10% FBS를 측정합니다. 1mL 피펫을 사용하여 후광까지 배지를 당겨 여러 웰에서 배지를 대량으로 꺼냅니다. 전체 플레이트에 대해 이 작업을 수행한 다음 미디어를 교체합니다. 상층액을 대량으로 모아 버리거나, 뽑을 때 버리십시오.
- 각 웰의 측면을 따라 100μL의 매체를 추가하여 폐기된 매체를 새 매체로 교체합니다. 웰의 최종 부피는 200μL에 가깝습니다.
- 미디어를 후광 너머로 당기면 실수로 스페로이드를 잡아당길 위험이 높아집니다.
- 10/11일째에 10-11mL의 DMEM + 10% FBS를 측정합니다. 1mL 피펫을 사용하여 후광까지 배지를 당겨 여러 웰에서 배지를 대량으로 꺼냅니다. 전체 플레이트에 대해 이 작업을 수행한 다음 미디어를 교체합니다. 상층액을 대량으로 모아 버리거나, 뽑을 때 버리십시오.
- 각 웰의 측면을 따라 100μL의 매체를 추가하여 폐기된 매체를 새 매체로 교체합니다. 웰의 최종 부피는 200μL에 가깝습니다.
- 3일째에 5-6mL의 DMEM + 10% FBS를 측정하고 웰 측면을 따라 각 웰에 50μL를 추가합니다.
- 3일째까지 4x-5x 배율로 광학 현미경으로 세포가 모여 스페로이드를 형성하는 것을 봅니다. 아래 설명된 대로 문화권 유지 관리 프로토콜을 따릅니다.
- 최종 날 평가
- 14일째에 스페로이드에 대한 약물 치료를 수행합니다. 사용하기 전에 4x 대물렌즈 아래에서 명시야 도립 현미경을 사용하여 스페로이드를 이미지화하여 스페로이드의 시작 부피를 확인합니다. 다음 공식을 사용하여 볼륨(V)을 계산합니다.
V = 0.5 × L × W2 - 위에 설명된 스페로이드 부피를 계산하기 위한 방정식을 따르십시오. 여기서 L은 장축의 길이이고 W는 너비(장축에 수직인 가장 긴 선)입니다. 모든 원래 단위를 마이크로미터에서 밀리미터로 변환하여 입방 밀리미터 단위의 부피를 얻습니다.
- 14일째에 각 웰의 시작 부피는 증발로 인해 150-200μL 사이입니다. 약물 처리의 경우 각 웰에서 후광에 도달할 때까지 배지를 제거하고 2배 강도의 약물 용액 100μL로 교체하고 약간의 부드러운 혼합(각 웰 사이에 2까지 세면서 매체를 앞뒤로 부드럽게 혼합)으로 교체합니다.
- 2x 강도 용액을 사용하여 최종 약물 용액이 1x가 되도록 하고 웰에서 오래된 매체를 완전히 제거하지 못하면 스페로이드가 방해받을 수 있습니다. 이 기간으로부터 3일 이내에 스페로이드를 사용하십시오.
- 14일째에 스페로이드에 대한 약물 치료를 수행합니다. 사용하기 전에 4x 대물렌즈 아래에서 명시야 도립 현미경을 사용하여 스페로이드를 이미지화하여 스페로이드의 시작 부피를 확인합니다. 다음 공식을 사용하여 볼륨(V)을 계산합니다.
- 스페로이드 컬렉션
- 4.7.2단계에 설명된 대로 채취하기 전에 스페로이드 부피를 측정합니다.
- 실험의 필요에 따라 14일 또는 17일에 후광에 도달할 때까지 각 웰에서 매체를 제거하여 스페로이드를 수집합니다.
- 1mL 피펫을 사용하여 배지를 제거하고 여러 웰에서 15mL 원뿔형 원심분리 튜브에 상층액을 수집합니다.
- 모든 웰에 후광 수준의 배지가 있으면 1mL 피펫의 설정을 200-300 μL 사이로 줄입니다.
- 플레이트를 후드의 배경이나 어두운 배경(예: 튜브 랙)에 맞춰 바닥에 가라앉은 스페로이드를 확인합니다.
- 스페로이드 근처에 팁을 부드럽게 삽입하고(헤일로 아래로 이동) 소량의 매체(예: 50μL에 가까운 시각적 추정치)를 앞뒤로 피펫팅하여 스페로이드를 방해합니다. 스페로이드 구조를 손상시킬 수 있으므로 팁을 스페로이드 바로 위에 올려 놓지 마십시오.
- 이 단계에서 우물에서 모든 매체를 빼내지 마십시오. 피펫의 피스톤에서 엄지 손가락의 움직임을 단단히 제어하십시오.
- 회전 타원체가 더 이상 중앙에 남아 있지 않고 배경에 대해 움직이는 것을 볼 수 있을 때까지 미디어를 이동합니다. 스페로이드를 빨아들일 수 있을 만큼 충분한 매체를 끌어올려 원하는 위치로 이동합니다(예: 동일한 처리 세트의 일부인 웰에 다른 스페로이드와 함께 모임).
- 쓰레기 버리기
- 모든 액체 s를 폐기하십시오.amp각 실험실의 환경 및 보건 안전 부서의 프로토콜에 따라 표백제로 중화되면 파일. 생물학적 유해 폐기물과 함께 사용된 모든 피펫과 플라스크를 오토클레이브하고 폐기하십시오.

그림 1: 3D 탈형성 췌장암 스페로이드를 성장시키는 과정 개요 (BioRender를 사용하여 생성됨). 이 그림은 관련된 기본 프로세스에 대한 개요를 제공합니다. 즉, 세포를 trypsinzing하고, 초기 세포 수를 사용하여 희석된 세포 현탁액을 만들고, 희석된 세포 현탁액을 사용하여 공동 배양을 준비하고, 각 웰에 세포 현탁액을 추가하고, 배양물을 배양하고, 배지 유지 관리 및 최종 스페로이드 형성을 14일째에 예상대로 수행합니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
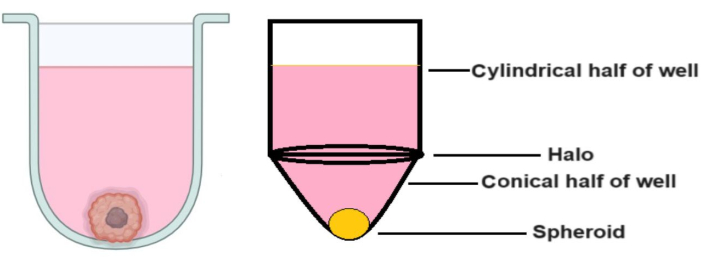
그림 2: U 바닥 우물의 구조. 오른쪽 이미지는 우물의 "후광" 부분을 보여주기 위해 과장된 모양입니다. 이 그림은 헤일로 위에서 작업하는 것이 스페로이드를 성장시키고 우발적인 손실을 방지하는 데 중요하기 때문에 우물의 "후광" 부분이 어디에 있는지 정의하는 것을 목표로 합니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
5. ECM 구성 요소 및 컨포칼 현미경 평가
- Durymanov et al.38에 설명된 프로토콜에 따라 약물 요법에 대한 ECM의 반응을 평가하기 위해 면역염색을 사용합니다.
- 스페로이드를 함께 모으고 100μL의 PBS로 두 번 세척합니다. 최적 절단 온도(OCT) 조직 매립 매체에 매립하고 동결 및 -80°C에서 유지합니다.
- 동결된 종양 블록을 10μm 절편으로 자르고 절편을 아세톤-메탄올(1:1) 혼합물에 15분 동안 고정한 다음 실온에서 자연 건조합니다.
- ECM 성분을 측정하려면 토끼 단클론 항-피브로넥틴 1차 항체, 토끼 다클론 항-I형 콜라겐 항체, 토끼 다클론 항-라미닌 항체 및 양 다클론 항-히알루론산 항체로 냉동절편을 면역염색합니다.
- Alexa Fluor 488로 표지된 염소 항토끼 IgG 또는 Alexa Fluor 568로 접합된 당나귀 항양 IgG를 2차 항체로 사용합니다.
참고: 1차 및 2차 항체는 각각 1:200 및 1:300으로 희석하였다. - 20x/0.45 대물 렌즈가 장착된 컨포칼 레이저 스캐닝 현미경을 사용하여 모든 스페로이드 단면의 이미지를 획득합니다.
결과
스페로이드 성장과 관련된 가장 중요한 세 가지 단계는 초기 세포 수, 스페로이드를 파종하는 동안 혼합 단계, 스페로이드가 성장할 수 있도록 적시에 배지 교체를 수행하는 것입니다(그림 1). 또한 3일차 이후의 배지 변화에 대한 그림 2 를 숙지하는 것은 웰당 매체 양이 증가하기 때문에 효과적인 매체 변경을 허용하는 데 중요합니다. 이러한 모든 단계를 주어진 지시에 따라 수행하면 스페로이드(그림 3)가 평균 부피 0.048 ± 0.012mm3(451μm x 462.84μm)까지 성장하는 것으로 나타났습니다(그림 4). 세포가 더 잘 자라 14일째에 초기 평균 부피가 0.096 ± 0.014 mm3(611 μm x 560 μm)로 더 커질 수 있는 경우가 발견되었습니다. 인큐베이터의 온도 및 습도를 유지하거나 나중 통로에 비해 약간 향상된 활력을 가진 초기 세포 통로의 사용과 같은 다양한 이유로 스페로이드가 더 큰 초기 부피를 가질 수 있습니다.
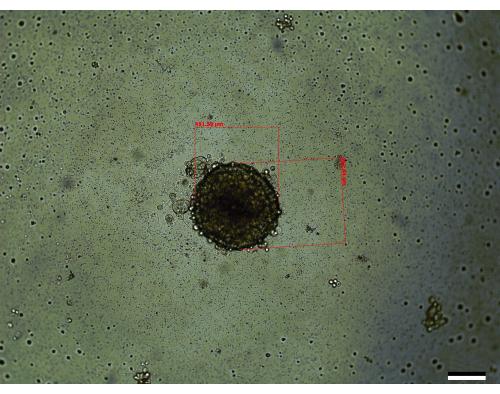
그림 3: 14일째에 본 대표적인 스페로이드(크기: 451.59 μm x 462.84 μm). 스케일 바 = 200 μm. 각 스페로이드는 각각 가장 긴 축과 가장 짧은 축을 따라 측정되며 방법 섹션에 설명된 방정식을 사용하여 부피를 계산합니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
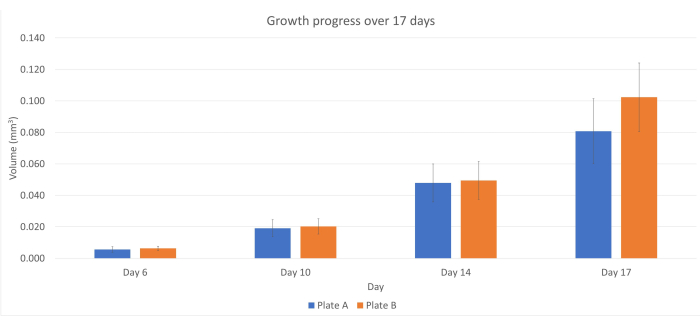
그림 4: 17일 동안의 스페로이드 성장 진행 상황. 플레이트 1과 2는 반복실험입니다. 오차 막대는 표준 편차를 나타냅니다. 이 그림은 6일, 10일, 14일, 17일에 볼 수 있는 스페로이드 부피의 대략적인 추정치로 사용할 수 있습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
그러나 세포가 올바르게 계수되지 않거나, 세포 현탁액이 완전히 혼합되지 않거나, 최종 배양이 정기적으로 유지되지 않거나, 이러한 오류의 조합이 발생하는 경우, 더 작은 스페로이드 또는 불완전하게 성장한 스페로이드의 발달로 이어질 수 있습니다. 유사한 모양의 스페로이드는 초기 최적화 연구에서 3일차에 전체 플레이트가 아닌 플레이트 주변 웰의 매체만 보충했을 때도 관찰되었습니다(그림 5). 또는 세포가 잘 혼합되지 않거나 초기 계수/희석 오류로 인해 권장 사항보다 웰당 더 많은 세포가 파종되는 경우 웰당 여러 스페로이드가 보일 수 있습니다. PANC-1:HPaSteC 세포를 240:120 비율로 사용했을 때도 비슷한 결과가 나타났습니다(그림 6). 이것은 스페로이드가 방향별로 성장할 때도 가끔 나타날 수 있지만, 이러한 스페로이드는 수가 더 적습니다(예: 4/96 웰은 웰당 1개가 아닌 2개의 스페로이드를 포함할 수 있음). 여러 스페로이드가 발견되는 경우, 여러 스페로이드가 있는 웰을 사용하지 않거나 이러한 스페로이드를 처리할 때 부피의 변화를 기록해 두십시오. 피펫 팁이 헤일로 아래로 떨어지는 부적절한 매체 변경(그림 1)도 스페로이드의 우발적인 손실로 이어질 수 있습니다.
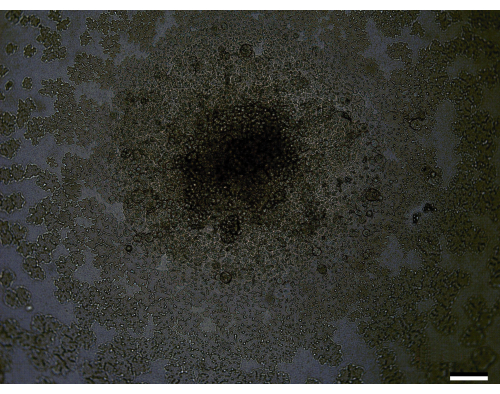
그림 5: 14일째에 제대로 성장하지 못한 스페로이드의 대표 이미지. 스케일 바 = 200 μm. 여기서 세포가 잘 응집되지 않아 스페로이드의 길이와 너비를 측정하기가 어려워집니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
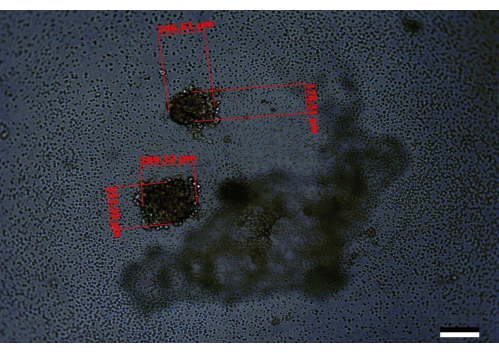
그림 6: 14일째에 본 두 개의 제대로 성장하지 않은 스페로이드가 들어있는 우물의 대표적인 이미지. 스케일 바 = 200 μm. 여기서 스페로이드 중 하나는 246.61μm x 178.31μm이고 다른 하나는 289.13μm x 252.35μm입니다. 이는 초기 희석 또는 실험을 시작하는 데 사용된 세포의 품질에 문제가 있을 수 있는 예입니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
스페로이드는 또한 4가지 주요 ECM 구성 요소인 콜라겐-I, 라미닌, 히알루론산, 피브로넥틴으로 ECM을 형성합니다. 연구실이 이전에 발표한 연구에서 PANC-1 단독에 비해 공동 배양의 이점은 호모 PANC-1 스페로이드가 미만 콜라겐, 피브로넥틴이 없고 히알루론산 침착이 적다는 점에서 입증되었습니다.

그림 7: 처리되지 않은 스페로이드에서 17일째에 볼 수 있는 4가지 주요 ECM 구성 요소인 콜라겐 I, 라미닌, 히알루론산 및 피브로넥틴의 대표 이미지. 이 이미지는 스페로이드의 cryosection을 면역염색한 후 얻은 것입니다. 이러한 이미지의 밝기는 모양의 차이를 강조하는 데 도움이 되도록 균일하게 증가했습니다. 조직이 손상되거나 누락된 영역은 강도 측정을 수행하는 동안 조정해야 합니다. 스케일 바 = 100 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
스페로이드를 성장시키기 위해 선택된 지속 시간 및 세포 비율은 이전에보고된 38건의 연구를 기반으로 했습니다. HPaSteC 세포를 NIH3T3 세포로 대체하여 이러한 연구를 최적화하려고 시도했을 때, PANC-1: HPaSteC 비율이 120:60일 때 스페로이드 부피 및 세포사멸 패턴이 보고된 최적화된 매개변수(PANC-1: NIH3T3:: 120:12에 대해 보고됨)와 매우 유사한 것으로 나타났습니다. 이 연구는 14일까지만 세포자멸사를 측정하지만, 이 과정에 설명된 프로토콜은 14일째와 17일 사이에 파편 형성의 눈에 띄는 증가가 관찰되지 않기 때문에 17일까지 스페로이드를 계속 사용합니다. 대조군으로, 17일에 평가된 모든 스페로이드에는 항상 처리되지 않은 팔이 포함되어 있어 스페로이드의 부피와 세포자멸사의 자연적인 증가를 위한 기준선 역할을 합니다.
스페로이드의 파종 및 성장 과정에는 3가지 중요한 단계가 있습니다: 적절한 계수, 세포 추가 전 혼합, 배양 유지 관리. 이 공정은 소수의 PANC-1 및 HPaSteC 세포를 사용하기 때문에 올바른 수와 적절한 희석을 유지하는 것이 중요합니다. 이는 HPaSteC 세포가 PANC-1 세포보다 작고 세포 수를 과소평가하기 쉽기 때문에 특히 중요합니다. 따라서 세포를 신중하게 계산하는 것이 중요합니다. 개수를 과소 평가하면 여러 스페로이드가 형성되는 반면, 과대 평가하면 스페로이드가 제대로 형성되지 않을 수 있습니다.
또한 모든 단계에서 서스펜션을 잘 혼합하는 것이 중요합니다. 세포가 가라앉을 수 있다는 기대를 가지고 작업하면 과소 혼합을 방지하고 균일한 세포 분포를 보장하는 데 도움이 됩니다. 하나 이상의 플레이트(예: 두 개의 플레이트)에 대해 스페로이드를 준비하는 동안 앞뒤로 혼합되는 횟수(단계 4.4.1)는 각 웰 사이에 최소 20개인 것이 좋습니다. 첫 번째 플레이트가 절반 정도 완료되면 15로 줄어들고, 다음 플레이트를 시작할 때 10, 두 번째 플레이트의 후반부로 진행됨에 따라 5로 줄일 수 있습니다. 앞뒤로 혼합하는 것과 병행하여 피펫으로 교반 동작을 수행하면 혼합 범위를 개선하는 데 도움이 됩니다. 고려해야 할 아이디어는 두 개의 플레이트를 준비하는 동안 두 사람을 참여시키는 것인데, 이렇게 하면 속도와 혼합 효율성이 향상됩니다. 이 시나리오에서는 두 사람이 후드의 반대쪽 모서리에서 작업하여 개별 서스펜션 및 플레이트와 함께 후드를 동시에 사용할 수 있습니다.
세포 배양을 유지하는 것은 스페로이드가 항상 적절한 영양분을 공급받을 수 있도록 하는 데 필요합니다. 3일째와 6일째에 배지 보충제를 섭취하는 것이 가장 중요한데, 이 시기는 세포가 자라는 곳이고 충분한 영양을 공급해야 하는 시기입니다. 6일차와 10월 11일의 배지 교체는 오래된 배지를 버리기 위해 일부 상층액을 수집하는 것과 관련이 있기 때문에 까다로울 수 있습니다. 이 단계는 "후광"이 될 때까지 미디어를 부드럽게 당겨서 조심스럽게 수행해야 하며 그 이상은 절대 되지 않아야 합니다. 이렇게 하면 스페로이드에 너무 가까운 미디어에서 미디어가 흡입되는 것을 방지하고 미디어 교체 중에 스페로이드가 의도하지 않게 손실되는 것을 방지할 수 있습니다.
이 방법은 이전에인용한 방법 32,34,35,36,37,39와 달리 쉽게 재현할 수 있고 금형이나 비계 재료가 필요하지 않다는 점에서 큰 장점이 있습니다. 또한, 사용되는 배지는 표준 세포 배양 배지이며, 이는 세포 유형(34)에 따라 EGM-2 배지(39), 성상 세포 배지의 혼합물 및 DMEM-FBS(35) 또는 배지 단독에 비해 상대적으로 저렴합니다. 이러한 장점은 실험실 간의 변환 가능성과 설정 용이성에 매우 중요합니다. 이 프로세스는 여러 플레이트에 맞게 확장할 수도 있지만 플레이트 두 개당 한 사람이 필요할 수 있습니다. 스페로이드의 견고한 특성으로 인해 교반 조건에서 평가할 수도 있습니다. 이 단계는 스페로이드가 관련된 세포 약동학 또는 굴착 방출 및 흡수 연구를 수행하는 데 특히 유용합니다.
장점에도 불구하고 이 방법의 한계는 파종 단계에서 매우 철저한 혼합이 필요하다는 것입니다. 이것은 시간이 많이 걸리고 육체적으로 힘들 수 있습니다. 이를 우회할 수 있는 가능한 방법은 잘 멸균된 마그네틱 비드를 사용하여 파종 과정 동안 일정한 교반 조건을 유지하는 것입니다. 스페로이드를 수집하는 것도 까다롭고 약간의 연습이 필요합니다. 또한 스페로이드는 성장하는 데 시간이 필요하므로 배지 변경을 위한 인력 및 공급 가용성을 보장하기 위해 신중한 계획이 필요합니다.
결론적으로, 임상적으로 관련된 탈형성 3D 스페로이드를 생산하기 위한 간단하고 재현 가능한 방법이 개발되었습니다. 스페로이드는 견고하며 콜라겐 I, 라미닌, 히알루론산, 피브로넥틴과 같은 ECM 성분을 생성할 수 있습니다. 이러한 스페로이드 생성과 관련된 단순성은 쉽게 재현할 수 있고 세 번째 세포주를 포함하는 것과 같은 변화에 쉽게 적응할 수 있다는 고유한 이점을 가지고 있습니다. 이 모델의 또 다른 독특한 장점은 치료(40)에 내성이 있다는 것이다. 이는 임상적 관련성을 더하고 가장 효과적인 약물만 선택하여 췌장암 치료에 활용되도록 하는 데 도움이 됩니다. 또한, 이들 스페로이드를 수집하여 마우스에 주입하여 생체 내 분석(38)을 위한 재현성 탈형성 종양을 제공할 수 있고, 또한 앞서 설명한 바와 같이 다양한 크기의 나노입자(44)의 침투를 검사하는데 사용될 수 있다.
공개 사항
저자는 밝힐 것이 없습니다.
감사의 글
설명된 작업은 사우스다코타 주지사 경제개발국, 사우스다코타 이사회 경쟁 연구 보조금 프로그램(SD-BOR-CRGP) 및 사우스다코타 주립대학교 약학과의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Axio Observer 반전 현미경 | Carl Zeiss | 0450-354 | |
| 셀로미터 Auto T4 | Nexcelom Bioscience LLC | Auto-T4 | |
| DMEM, 분말, 고포도당 | Gibco | 12100046 | |
| Donkey anti-sheep Alexa Fluor 568 | Abcam | ab175712 | |
| Fetal Bovine Serum | Cytiva | SH3091003HI | |
| Alexa Fluor 488로 표시된 염소 안티 토끼 IgG; | Abcam | ab150077 | |
| 행크스 밸런스 솔트 솔루션(HBSS) | Gibco | 14175145 | |
| Human Pancreatic Stellate Cells (HPaSteC) | ScienCell | 3830 | |
| microscope | Nikon | Eclipse ts 100 | |
| Nunc 96-well polystyrene round bottom microwell plates | Thermo Scientific | 12-565-331 | |
| Olympus Fluoview FV1200 confocal laser | Olympus | N/A | 단종 제품 |
| PANC-1 | ATCC | CRL-1469 | |
| Poly-HEMA | Sigma | P3932 | |
| 토끼 폴리클로날 항-라미닌 항체 | Abcam | ab11575 | |
| 토끼 다클론 항-타입 I 콜라겐 항체 | Abcam | ab34710 | |
| 양 다클론 항히알루론산 항체 | Abcam | ab53842 | |
| 스텔레이트 세포 미디어 완전 키트 | ScienCell | 5301 | |
| 트립신 | MP Biomedicals, LLC | 153571 | 제조사 프로토콜에 따라 준비된 Trypsin 용액을 0.25%w/v 로 사용합니다; |
| 트립신 중화 용액(TNS) | ScienCell | 103 |
참고문헌
- Hingorani, S. R. Epithelial and stromal co-evolution and complicity in pancreatic cancer. Nat Rev Cancer. 23 (2), 57-77 (2023).
- Laklai, H., et al. Genotype tunes pancreatic ductal adenocarcinoma tissue tension to induce matricellular fibrosis and tumor progression. Nat Med. 22 (5), 497-505 (2016).
- Binker, M. G., Binker-Cosen, M. J., Binker-Cosen, A. A., Cosen-Binker, L. I. Microenvironmental factors and extracellular matrix degradation in pancreatic cancer. J Pancreas. 15 (4), 280-285 (2014).
- Spano, D., Zollo, M. Tumor microenvironment: a main actor in the metastasis process. Clin Exp Metastasis. 29 (4), 381-395 (2012).
- Ware, M. J., et al. Generation of an in vitro 3D PDAC stroma rich spheroid model. Biomaterials. 108, 129-142 (2016).
- Sunami, Y., Häußler, J., Kleeff, J. Cellular heterogeneity of pancreatic stellate cells, mesenchymal stem cells, and cancer-associated fibroblasts in pancreatic cancer. Cancers. 12 (12), 3770(2020).
- Öhlund, D., et al. Distinct populations of inflammatory fibroblasts and myofibroblasts in pancreatic cancer. J Exp Med. 214 (3), 579-596 (2017).
- Pandol, S., Edderkaoui, M., Gukovsky, I., Lugea, A., Gukovskaya, A. Desmoplasia of pancreatic ductal adenocarcinoma. Clin Gastroenterol Hepatol. 7 (11), S44-S47 (2009).
- Watanabe, I., et al. Advanced pancreatic ductal cancer: fibrotic focus and β-catenin expression correlate with outcome. Pancreas. 26 (4), 326-333 (2003).
- Hu, G., et al. Tumor-infiltrating podoplanin+ fibroblasts predict worse outcome in solid tumors. Cell Physiol Biochem. 51 (3), 1041-1050 (2018).
- Kapałczyńska, M., et al. 2D and 3D cell cultures-a comparison of different types of cancer cell cultures. Arch Med Sci. 14 (4), 910-919 (2018).
- Monberg, M. E., et al. Occult polyclonality of preclinical pancreatic cancer models drives in vitro evolution. Nat Commun. 13 (1), 3652(2022).
- Emerman, J. T., Pitelka, D. R. Maintenance and induction of morphological differentiation in dissociated mammary epithelium on floating collagen membranes. In Vitro. 13 (5), 316-328 (1977).
- Kelm, J. M., Timmins, N. E., Brown, C. J., Fussenegger, M., Nielsen, L. K. Method for generation of homogeneous multicellular tumor spheroids applicable to a wide variety of cell types. Biotechnol Bioeng. 83 (2), 173-180 (2003).
- Kikuta, K., et al. Pancreatic stellate cells promote epithelial-mesenchymal transition in pancreatic cancer cells. Biochem Biophys Res Commun. 403 (3-4), 380-384 (2010).
- Lee, J. -H., et al. Microfluidic co-culture of pancreatic tumor spheroids with stellate cells as a novel 3D model for investigation of stroma-mediated cell motility and drug resistance. J Exp Clin Cancer Res. 37 (1), 4(2018).
- Wong, C. -W., Han, H. -W., Tien, Y. -W., Hsu, S. -H. Biomaterial substrate-derived compact cellular spheroids mimicking the behavior of pancreatic cancer and microenvironment. Biomaterials. 213, 119202(2019).
- Liu, X., et al. 3D heterospecies spheroids of pancreatic stroma and cancer cells demonstrate key phenotypes of pancreatic ductal adenocarcinoma. Transl Oncol. 14 (7), 101107(2021).
- Vonlaufen, A., et al. Pancreatic stellate cells: partners in crime with pancreatic cancer cells. Cancer Res. 68 (7), 2085-2093 (2008).
- Bachem, M. G., et al. Pancreatic carcinoma cells induce fibrosis by stimulating proliferation and matrix synthesis of stellate cells. Gastroenterology. 128 (4), 907-921 (2005).
- Greco, E., et al. Pancreatic cancer cells invasiveness is mainly affected by interleukin-1β not by transforming growth factor-β1. Int J Biol Markers. 20 (4), 235-241 (2005).
- Arao, S., Masumoto, A., Otsuki, M. β1 integrins play an essential role in adhesion and invasion of pancreatic carcinoma cells. Pancreas. 20 (2), 129-137 (2000).
- Sawai, H., Yamamoto, M., Okada, Y., Sato, M., Akamo, Y., Takeyama, H., Manabe, T. Alteration of integrins by Interleukin-1alpha in human pancreatic cancer cells. Pancreas. 23 (4), 399-405 (2001).
- Chen, J., et al. Expression and function of the epidermal growth factor receptor in physiology and disease. Physiol Rev. 96 (3), 1025-1069 (2016).
- Deer, E. L., et al. Phenotype and genotype of pancreatic cancer cell lines. Pancreas. 39 (4), 425(2010).
- Stahle, M., et al. Mechanisms in LPA-induced tumor cell migration: critical role of phosphorylated ERK. J Cell Sci. 116, Pt 18 3835-3846 (2003).
- Aubert, M., et al. Decrease of human pancreatic cancer cell tumorigenicity by α1, 3galactosyltransferase gene transfer. Int J Cancer. 107 (6), 910-918 (2003).
- Miknyoczki, S. J., Chang, H., Klein-Szanto, A., Dionne, C. A., Ruggeri, B. A. The Trk tyrosine kinase inhibitor CEP-701 (KT-5555) exhibits significant antitumor efficacy in preclinical xenograft modelsof human pancreatic ductal adenocarcinoma. Clin Cancer Res. 5 (8), 2205-2212 (1999).
- Fukasawa, M., Korc, M. Vascular endothelial growth factor-trap suppresses tumorigenicity of multiple pancreatic cancer cell lines. Clin Cancer Res. 10 (10), 3327-3332 (2004).
- Hernández-Camarero, P., et al. Pancreatic (pro) enzymes treatment suppresses BXPC-3 pancreatic Cancer Stem Cell subpopulation and impairs tumour engrafting. Sci Rep. 9 (1), 11359(2019).
- Ware, M. J., et al. Generation of homogenous three-dimensional pancreatic cancer cell spheroids using an improved hanging drop technique. Tissue Eng Part C Methods. 22 (4), 312-321 (2016).
- Longati, P., et al. 3D pancreatic carcinoma spheroids induce a matrix-rich, chemoresistant phenotype offering a better model for drug testing. BMC Cancer. 13, 95(2013).
- Kpeglo, D., et al. Modeling the mechanical stiffness of pancreatic ductal adenocarcinoma. Matrix Biol Plus. 14, 100109(2022).
- Jang, S. -D., et al. Anti-cancer activity profiling of chemotherapeutic agents in 3D co-cultures of pancreatic tumor spheroids with cancer-associated fibroblasts and macrophages. Cancers. 13 (23), 5955(2021).
- Pednekar, K. P., Heinrich, M. A., van Baarlen, J., Prakash, J. Novel 3D µtissues mimicking the fibrotic stroma in pancreatic cancer to study cellular interactions and stroma-modulating therapeutics. Cancers. 13 (19), 5006(2021).
- Kim, S. -K., et al. Phenotypic heterogeneity and plasticity of cancer cell migration in a pancreatic tumor three-dimensional culture model. Cancers. 12 (5), 1305(2020).
- Hwang, H. J., Oh, M. -S., Lee, D. W., Kuh, H. -J. Multiplex quantitative analysis of stroma-mediated cancer cell invasion, matrix remodeling, and drug response in a 3D co-culture model of pancreatic tumor spheroids and stellate cells. J Exp Clin Cancer Res. 38 (1), 258(2019).
- Durymanov, M., et al. Subcutaneous inoculation of 3D pancreatic cancer spheroids results in development of reproducible stroma-rich tumors. Transl Oncol. 12 (1), 180-189 (2019).
- Giustarini, G., Teng, G., Pavesi, A., Adriani, G. Characterization of 3D heterocellular spheroids of pancreatic ductal adenocarcinoma for the study of cell interactions in the tumor immune microenvironment. Front Oncol. 13, 1156769(2023).
- Alseud, K., et al. Synthesis and biological activity of 11-oxygenated and heterocyclic estrone analogs in pancreatic cancer monolayers and 3D spheroids. Bioorg Med Chem. , (2024).
- Fitzgerald, A. A., et al. Fibroblast activation protein regulates natural killer cell migration, extravasation and tumor infiltration. bioRxiv. , 429622(2021).
- Wishart, G., Gupta, P., Schettino, G., Nisbet, A., Velliou, E. 3D tissue models as tools for radiotherapy screening for pancreatic cancer. Br J Radiol. 94 (1120), 20201397(2021).
- Peirsman, A., et al. MISpheroID: a knowledgebase and transparency tool for minimum information in spheroid identity. Nat Methods. 18 (11), 1294-1303 (2021).
- Durymanov, M., Kroll, C., Permyakova, A., Reineke, J. Role of endocytosis in nanoparticle penetration of 3D pancreatic cancer spheroids. Mol Pharm. 16 (3), 1074-1082 (2019).
재인쇄 및 허가
