우리는 육질 형질의 차이를 설명하기 위해 Bos indicus 와 교배된 황소의 골격근 조직을 조사했다. Warner-Bratzler 전단력(WBSF)은 4.7kg에서 4.2kg 범위로 밝혀졌습니다. Myosin heavy chain isoforms는 동물 간의 차이를 밝혀냈고, myofibril fragmentation index는 압통도(WBSF) 변화에 대한 추가 통찰력을 제공했습니다.
방법 논문
Longissimus 근육 탐구 : Bos indicus 및 교잡 황소의 육류 품질과의 상관 관계 밝혀기
이 논문에서
요약
초록
이 연구는 육류 품질 특성의 차이를 설명하기 위해 Bos indicus 와 교잡 수소의 근육 조직을 조사했습니다. 지육 특성, 육류 품질 매개변수, 근섬유 단백질의 생화학 및 분자 조사에 대해 설명합니다. pH, 근육 내 지방(IMF), 육류 색(L*, a*, b*), 수분 손실, 압통 및 분자 생물학 분석을 평가하는 방법이 설명되었습니다. 각 방법에 대한 교정, 시료 준비 및 데이터 분석을 자세히 설명하는 특정 절차가 설명되어 있습니다. 여기에는 IMF 함량에 대한 적외선 분광법, 객관적 압형성 평가 및 MyHC 동형의 전기영동 분리와 같은 기술이 포함됩니다.
색상 매개변수는 소비자 결정에 영향을 미치는 중요한 품질 특성인 쇠고기 부드러움을 예측하기 위한 잠재적인 도구로 강조되었습니다. 이 연구는 Warner-Bratzler 전단력(WBSF) 방법을 사용하여 Nellore와 Angus-Nellore에 대해 각각 4.68 및 4.23kg의 값을 나타냈습니다(P < 0.01). 총 조리 손실과 근피브릴 단편화 지수(MFI)를 포함한 생화학적 분석은 부드러움 변화에 대한 통찰력을 제공했습니다. 근육 섬유 유형, 특히 Myosin 중쇄(MyHC) 동형이 조사되었으며, 연구된 Zebu 동물에서 MyHC-IIb 동형이 현저히 부족했습니다. MyHC-I와 육류의 부드러움 사이의 관계는 문헌에서 다양한 결과를 밝혀 이 연관성의 복잡성을 강조했습니다. 전반적으로, 이 연구는 Bos indicus 및 교배(Bos taurus × Bos indicus) 황소의 육류 품질에 영향을 미치는 요인에 대한 포괄적인 통찰력을 제공하여 소고기 산업에 귀중한 정보를 제공합니다.
서론
브라질은 약 2억 2천만 마리의 가축을 사육하는 세계 최대 규모의 상업용 소 무리를 보유하고 있으며, 연간 900만 미터톤 이상의 도체를 생산하는 두 번째로 큰 육류 생산국입니다1. 육우 생산 부문은 국가 농업 시스템에 크게 기여하며 연간 총 매출액은 550억 헤알을 초과합니다. 2004년부터 브라질은 세계 육류 무역의 ~50%를 차지하는 180개국 이상에 수출하는 세계 육류 무역의 핵심 플레이어였습니다2.
육류의 부드러움은 소비자 만족도와 육류 소비에 영향을 미치는 가장 중요한 품질 속성으로 두드러집니다3. 연구원들은 생화학적이고 객관적인 방법을 사용하여 육류 부드러움을 측정함으로써 동물 유전학, 가공 기술 및 보관 조건과 같은 요인에 대한 귀중한 통찰력을 제공하여 궁극적으로 소비자를 위한 육류 제품의 품질과 일관성을 향상시키는 것을 목표로 합니다. 이러한 정보는 육류 부드러움이 구매 시 소비자 의사 결정에서 점점 더 중요해지고 있기 때문에 유용합니다. 또한 육류 부드러움 평가는 육류 생산 및 가공 산업의 품질 관리에 귀중한 정보를 제공합니다. 부드러움을 지속적으로 모니터링함으로써 생산자는 육류 제품이 원하는 표준과 사양을 충족하는지 확인할 수 있습니다. 이러한 맥락에서 브라질 육우 생산자들은 자본 회전율을 높이기 위해 교배 동물을 이용하는 집약적 사육장 시스템을 점진적으로 수용하고 있습니다. 이 시스템은 브라질에서 매년 생산되는 지육 톤의 약 10%를 차지합니다 4,5.
소비자의 육류 품질 향상에 대한 수요가 증가함에 따라 육우 생산자는 주로 Aberdeen Angus6과 같은 유럽 품종과 교배하게되었습니다. 이 전략은 순수한 zebu 동물에 비해 우수한 성능, 바람직한 도체 특성 및 향상된 육질 품질로 알려진 F1 Angus-Nellore 잡종을 생산하는 것을 목표로 합니다 7,8. 브라질의 열대 지역에서는 성숙도가 높은 거세되지 않은 동물(황소)을 마무리 농장에 사용하는 것이 일반적이며, 이는 색상, 마블링 및 부드러움과 같은 육류 품질 특성을 손상시킬 수 있습니다. 특히 설문 조사에 따르면 브라질 사육장에서 완성되는 동물의 95%는 수컷이며 73%는 Nellore, 22%는 교배 동물, 5%는 기타 유전자형입니다 9,10.
육류의 부드러움의 기저에 있는 생화학적 메커니즘을 이해하는 것은 육류 품질 개선에 매우 중요합니다. 한 가지 중요한 측면은 근섬유의 구조적 무결성에 영향을 미치는 사후 단백질 분해(postmortem proteolysis)입니다11. 근섬유질 단편화 지수(myofibril fragmentation index, MFI)는 근섬유의 분해 정도를 정량화하는 널리 사용되는 생화학적 분석법으로, 육류의 부드러움에 대한 통찰력을 제공한다12. MFI 방법은 육류의 부드러움과 직접적인 관련이 있는 근섬유 단백질의 단편화를 측정하는 것을 포함합니다. 이 분석법은 전통적인 육류 품질 평가를 보완하고 육류 부드러움의 변화에 기여하는 생화학적 과정에 대한 심층적인 이해를 제공합니다.
이러한 맥락에서 본 연구는 육류 품질 형질의 차이를 설명하는 것을 목표로 Bos indicus 와 비육장에서 종결된 교배종(Bos taurus × Bos indicus) 황소의 골격근을 조사했습니다.
프로토콜
동물에 대한 모든 절차는 프로토콜 0171/2018에 따라 UNESP Botucatu Campus의 "Universidade Estadual Paulista Júlio de Mesquita Filho"의 동물 사용 윤리 위원회(CEUA)에서 제정한 윤리 연구 표준을 준수했습니다.
1. 실험동물
- 20-24개월 된 30마리의 Nellore 황소(Bos indicus)와 30마리의 F1 Angus-Nellore 황소(Bos taurus × Bos indicus)를 사육장에서 마무리합니다. 콘크리트 바닥이 있는 5m x 6m 크기의 집단 우리에 두 그룹의 동물을 수용하고 우리 당 최대 5 마리의 동물을 수용 할 수있는 껍질 형 물통이 장착되어 있습니다. 모든 동물이 동일한 관리 그룹(동일한 농장에서 태어나고 자란)에 속하고 동일한 사육장 기간에 제출되도록 합니다.
참고: 이 연구에서 Nellore 황소의 평균 초기 체중은 370.7kg인 반면 F1 Angus-Nellore 황소의 평균 초기 체중은 380.8kg ± 17kg이었습니다. - 비육장 식단
- 마무리 식단은 11.3% 조사료(Tifton 건초 및 사탕수수 사탕수수)와 88.7% 농축액(분쇄 건조 옥수수 곡물, 대두박, 옥수수 습식 증류기 곡물, 건조 옥수수 글루텐 사료 및 미네랄 코어)으로 구성되어 있는지 확인하십시오. 120일 동안 동물에게 먹이를 주고 하루에 두 번 (오전 10:00 및 오후 04:00) 식단을 즉시 제공합니다.
- 학살
- 실험 기간이 끝날 때 최종 체중(BWf)을 등록합니다. 모든 동물은 표준 검사 절차에 따라 인근 도축장에서 처리합니다. 도살하기 전에 동물이 최소 16시간 동안 금식하고 사료와 물을 모두 삼가야 합니다.
참고: F1 Angus-Nellore 황소의 최종 체중은 615.09 ± 57.53kg인 반면 Nellore 황소의 체중은 545.47 ± 11.45kg이었습니다.
- 실험 기간이 끝날 때 최종 체중(BWf)을 등록합니다. 모든 동물은 표준 검사 절차에 따라 인근 도축장에서 처리합니다. 도살하기 전에 동물이 최소 16시간 동안 금식하고 사료와 물을 모두 삼가야 합니다.
- 지육 형질 평가
- 쇠고기 사체의 무게를 처음 잰 다음 2-4 ° C에서 48 시간 동안 냉각 기간을 거칩니다. 측정에는 권장사항 13에 따라 12번째/13번째 늑골 경계면에서 뜨거운 지육 중량(HCW), 갈비뼈 면적(REA) 및 등지방 두께(BFT)가 포함됩니다. 작은 그리드(18cm x 13cm)가 있는 그리드 방법을 사용하여 REA를 결정하고 캘리퍼스를 사용하여 BFT를 밀리미터 단위로 측정합니다.
- 중간에 하나의 점이 있는 1cm² 정사각형으로 나뉘어진 그물 격자(USDA 수율 등급 분류 시스템에서 사용되는 것과 동일)를 사용하여 각 지육의 REA를 측정합니다. ribeye 추적 둘레 내의 모든 사각형과 중간 점을 통과하는 추적 윤곽을 따라 있는 사각형을 추가합니다.
- 평가 사이트의 12번째/13번째 갈비뼈 사이의 특정 위치에서 BFT를 측정합니다. 이 위치를 결정하려면 갈비뼈 눈의 길이를 측정하십시오. 그런 다음 내측 경계 "A"에서 시작하여 갈비뼈 눈을 따라 3/4 지점, "B"를 가로지르는 절반 지점을 결정합니다. 이 점을 통해 캘리퍼스를 잡고 지정된 갈비뼈에 직각으로 피하 지방과 근육 간 지방 사이의 계면에 도달합니다. 계면점에서 피하 지방선에 직각으로 캘리퍼를 배치하여 피하 지방을 측정합니다(보충 그림 S1).
- 쇠고기 사체의 무게를 처음 잰 다음 2-4 ° C에서 48 시간 동안 냉각 기간을 거칩니다. 측정에는 권장사항 13에 따라 12번째/13번째 늑골 경계면에서 뜨거운 지육 중량(HCW), 갈비뼈 면적(REA) 및 등지방 두께(BFT)가 포함됩니다. 작은 그리드(18cm x 13cm)가 있는 그리드 방법을 사용하여 REA를 결정하고 캘리퍼스를 사용하여 BFT를 밀리미터 단위로 측정합니다.
- 견본 추출
- 두개골 방향으로 11번째 갈비뼈와 13번째 갈비뼈 사이의 왼쪽 반쪽 사체(± 12.0cm의 고기 부분)에서 Longissimus thoracis(LT)를 샘플링합니다. 실험실에서 고기 샘플을 2.54cm의 스테이크로 나눕니다.
- 노화
- 생물학적 산소 요구량(BOD) 인큐베이터에서 0-2°C의 온도에서 14일의 습식 숙성 기간 후 육류 품질 특성을 평가합니다. 고기 색상, pH, 근육 내 지방, 퍼지 손실, 수분 보유 능력, 객관적 부드러움 및 요리 손실을 분석하기 위해 2.54cm 두께의 스테이크를 사용하십시오. 고진공 및 저산소 투과성을 위해 스테이크를 비닐 봉지에 따로 포장하고 숙성 시간에 도달한 후에는 분석 시점까지 -20°C에서 냉동 보관합니다. 쇠고기 샘플을 4°C에서 24시간 동안 해동하고 4°C(개화 시기)에서 30분 동안 산소에 노출시킵니다.
2. 육류 pH
- 침투 프로브가 장착된 디지털 pH 게이지를 사용하여 고기의 pH를 측정합니다. 25°C의 실온에서 pH 4.0 및 7.0 버퍼로 보정합니다. LT 근육 샘플의 세 위치에서 육류 pH를 측정합니다. 데이터 판독값을 수동으로 기록하고 이후에 데이터시트를 내보냅니다. 육류 pH에 대한 세 가지 판독값의 평균을 계산합니다.
3. 근육 내 지방
참고: 근육 내 지방(IMF) 함량은 근적외선(NIR) 분광법(14 )과 중량 측정 방법15를 사용하여 측정했습니다.
- 메스를 사용하여 LT 근육의 피하 지방을 제거합니다. 그런 다음 약 5g의 샘플을 포함하는 믹서를 사용하여 스테이크를 갈아서 균질화합니다. 샘플을 컵에 넣고 샘플 챔버 내부에 배치한 다음 샘플 컵을 회전시켜 테스트 샘플의 다양한 영역에 대한 하위 스캔을 수행합니다. 최종 결과를 위해 영역을 병합합니다.
- 각 샘플에 대해 세 번의 판독을 수행합니다. 균질화 후 샘플을 플레이트에 넣어 후속 판독을 수행합니다. 850nm에서 1050nm까지의 영역을 스캔하는 이동식 격자 모노크로메이터를 사용하여 장치를 NIR 전송으로 설정합니다.
- 데이터 시트를 내보낸 다음 IMF에 대한 평균 3 판독값을 계산합니다. [(IMF 평균 ÷ 표본 중량) × 100] 공식을 사용하여 결과를 백분율로 표현합니다.
- LT 근육 샘플(3.0g)을 클로로포름/메탄올 메탄올/클로로포름(2:1) 용액과 2분 동안 균질화하고 원심분리(700 × g, 10분, 20°C)를 실시하여 친수성(상부), 고체상(중상) 및 소수성(하부) 상을 분리합니다.
- 깔때기에 여과지를 사용하여 약간의 흡입으로 원심분리 후 얻은 소수성 단계를 여과합니다. 여과액(하단상, 클로로포름의 지질)을 지질상으로 표시된 플라스크에 옮기고 몇 분 동안 그대로 둔 후 최소 5mm의 여과액을 사전 칭량된 비커 플라스크에 옮깁니다. 그런 다음 클로로포름 층의 부피(최소 150mL)를 기록하고 알코올 층을 흡인합니다.
- 클로로포름 100mL와 메탄올 200mL의 혼합물로 신선 또는 냉동 조직 샘플의 부분 표본 100g을 2분 동안 균질화합니다. 혼합물에 클로로포름 100mL를 넣고 30초 동안 블렌딩한 다음 증류수 100mL를 넣고 30초 더 블렌딩합니다.
- 약간의 흡입으로 깔때기의 여과지를 통해 균질하게 여과합니다. 잔류물이 건조되면 비커 바닥에 압력을 가하여 용매의 최대 회수를 보장합니다.
- 여과액을 500mL 눈금 실린더로 옮기고 분리 및 정화를 위해 몇 분 동안 그대로 두십시오. 클로로포름 층의 부피(최소 150mL)를 기록하고 알코올 층을 흡인합니다.
- 맨 위 레이어를 완전히 제거해야 합니다. 클로로포름 층에는 정제된 지질이 포함되어 있습니다. 정량적 지질 추출의 경우 잔류물과 여과지를 클로로포름 100mL와 혼합하여 조직 잔류물에 갇힌 지질을 회수합니다.
- 깔때기를 통해 혼합물을 여과하고 총 50mL의 클로로포름으로 블렌더 용기와 잔류물을 헹굽니다. 알코올 층을 제거하기 전에 이 여과액을 원래 여과액과 혼합하십시오.
알림: 여과는 일반적으로 빠릅니다. 용매의 최대 회수를 보장하기 위해 건조 잔류물에 비커 바닥으로 압력을 가합니다.
- 오븐에서 샘플을 건조시키고, 데시케이터에서 최소 24시간 동안 냉각하고, 용매가 완전히 증발할 때까지 110°C의 오븐에 넣고, 데시케이터에서 밤새 더 냉각한 다음 마지막으로 다시 칭량합니다.
- 비커의 초기 중량과 최종 중량 간의 차이를 계산하여 IMF 함량을 결정합니다.
4. 고기 색깔
- 검은색과 흰색 표준 플레이트를 사용하여 장치를 보정합니다. 흰색 보정 플레이트를 플레이트 중앙 근처에 놓습니다. 보정을 수행할 때 플레이트 중앙 부근 영역을 사용하십시오. 램프가 세 번 깜박인 후 보정이 완료되었습니다.
- 4 °C(개화 시기)에서 30분 후에 측정합니다. LT 근육 샘플의 세 가지 다른 위치에서 색상 판독값을 얻고 결합 조직과 지방을 주의해서 피하십시오.
- 실온(20°C)에서 권장16에 따라 이러한 측정의 평균을 계산합니다.
5. 수분 손실
- 모든 샘플에 대한 퍼지 손실(PL)을 평가합니다. 냉동 전의 초기 무게와 냉동/해동 후 최종 무게 사이의 차이를 측정하여 쇠고기 등심 섹션의 PL을 결정합니다.
알림: 얼지 않은 대조군 쇠고기 등심의 PL을 평가하지 마십시오. - 육류 샘플(약 1.0g)을 5분 동안 10kg의 압력을 가하기 전과 후의 중량 차이로 수분 보유 능력(WHC)을 측정합니다17.
6. 객관적인 육류 부드러움
참고: WBSF(Warner-Bratzler 전단력)의 측정은 설명된대로 18,19에 따라 수행되었습니다.
- 유리 내화물에 부착된 그리드에 샘플을 놓고 최종 온도가 71°C에 도달할 때까지 산업용 전기 오븐에서 요리합니다. 조리 후 샘플을 4°C에서 24시간 동안 냉각하고 무게를 측정하고 냉장 보관합니다.
- 공식
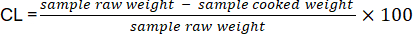 을 사용하여 요리 손실(CL)을 결정합니다.
- 샘플을 조리하기 전과 후에 내화물의 무게를 측정하여 물방울 손실을 결정합니다. 이를 위해 요리 중에 육즙과 지방이 배출될 수 있도록 유리 내화물 위의 그리드에 샘플을 놓습니다.
- 조리 전후에 샘플만 칭량하여 증발 손실을 측정합니다.
- 생무게와 조리된 무게를 기록하고 조리 후 물방울의 무게를 해동된 고기 샘플의 무게로 나눈 DL의 백분율을 계산합니다.
- [100 - (조리 후 무게) ÷ 원료 중량 × 100] 공식을 사용하여 증발 손실률(EVP)을 계산합니다.
- WBSF를 결정하기 위해 3.07mm Warner-Bratzler 전단력 블레이드와 V자형(60° 각도) 절삭날이 장착된 텍스처 분석기를 사용하여 직경 1.27cm의 8개 코어를 절편합니다.
- 낮음과 높음 극한을 제외한 후 샘플당 6개 값의 평균(킬로그램(kg))으로 결과를 보고합니다19.
7. 생화학 분석
참고: 사후 단백질 분해는 Culler et al.20이 설명하고 Borges et al.21이 Bos indicus 소에 적용한 원래 절차에 따라 근섬유릴 단편화 지수(MFI)를 추정하여 평가했습니다.
- 2°C에서 100mM 염화칼륨, pH 7에서 20mM 인산칼륨, 1mM 에틸렌디아민테트라아세트산(EDTA), 1mM 염화마그네슘 및 1mM 아지드화나트륨을 포함하는 완충 용액에 약 3g의 LT 샘플(지방이 벗겨진 근육 조직 및 결합 조직) 단편을 균질화한 다음 원심분리(4°C에서 15분 동안 1,000× g )합니다.
- 교반 막대를 사용하여 10 부피(v/w)의 분리 매체에 침전물을 재현탁시킨 다음 1,000× g 에서 15분 동안 다시 침전시키고 상층액을 디캔팅합니다.
- 2.5 부피(v/w)의 분리 매체에 침전물을 재현탁하고 결합 조직과 파편을 폴리에틸렌 스트레이너(18 메쉬)에 통과시켜 분리합니다. 추가로 2.5 부피(v/w)를 사용하여 근섬유가 여과기를 통과할 수 있도록 합니다.
- Gornall et al.22의 biuret 방법을 사용하여 myofibrils 현탁액의 단백질 농도를 측정합니다. myofibril 현탁액의 부분 표본을 분리 배지로 0.5 ± 0.05 mg/mL의 단백질 농도로 희석합니다.
- 540nm에서 이 현탁액의 흡광도를 즉시 측정하십시오. 540nm에서 분광광도계를 사용하여 MFI를 측정합니다. 흡광도에 200을 곱하여 각 샘플에 대한 MFI를 구합니다(측정 단위 없이 인덱스로 보고).
8. 분자 생물학 분석
참고: 소 골격근에서 가장 풍부한 단백질인 미오신 중쇄(MyHC)의 분석을 위해 두 그룹의 LT 샘플은 문헌23,24에 설명된 프로토콜에 따라 처리되었습니다.
- 그래디언트 SDS-PAGE 겔(7-10%)과 4% 스태킹 겔을 사용하여 전기영동 분리를 달성합니다. 각 샘플의 25μL를 겔에 적용하고 70V, 28mA 및 4°C에서 1시간 동안 실행한 다음 180V, 12mA 및 4°C에서 29시간 동안 실행합니다.
- 실행에 두 가지 다른 완충액을 사용합니다: 글리신, 트리스(하이드록시메틸)아미노메탄 염기, 소듐 도데실 설페이트(SDS) 및 증류수로 구성된 상부 겔 완충액은 상부 완충액과 동일하며 메르캅토에탄올이 첨가되어 있습니다.
- Coomassie Blue로 겔을 염색하고 적절한 소프트웨어를 사용하여 이미지를 캡처합니다.
- 분자량(각각 223.900, 224.243 및 223.875kDa)을 기반으로 MyHC 동형(MyHC-I, MyHC-IIa, MyHC-IIx/d)을 식별합니다. 적절한 소프트웨어를 사용하여 각 동형에 해당하는 대역의 밀도 측정에 의한 반정량 분석을 수행합니다.
- Rat soleus 및 EDL(Extensor digitorum longus) 근육을 양성 대조군으로 사용하여 MyHC 동형을 분류하고 처리된 샘플의 40μL를 로드하기 위해 각 겔에 하나의 웰을 예약합니다.
- 모든 데이터에 대해 다음 모형을 사용하여 F 검정에 의한 분산 분석(ANOVA)을 수행합니다.
Yij = μ + 티i + Ɛij
여기서 Yij는 반복 j에서 처리 i를 참조하는 실험 단위의 관찰 값입니다. μ는 평균의 일반적인 효과입니다. T는 치료 효과(유전자군)이고 ε은 실험 오류입니다. - 스튜던트 t-검정을 사용하여 평균을 비교하고 P-값 < 0.05를 임계 확률로 채택합니다.
결과
표 1 은 본 연구에서 조사된 두 유전자 그룹의 사체 형질을 나타낸다. 특히, HCW, REA 및 BFT에서 차이가 확인되었으며(P < 0.01), 교배된 동물이 더 큰 값을 나타내어 이종증 효과를 시사합니다.
| 가변¹ | 넬로르 | F1 앵거스 x 넬로르 | 증권 시세 표시기 | p-값 |
| BW결승, kg | 545.47b | 615.09암페어 | 7.32 | <.0001 |
| HCW, 킬로그램 | 286.87b | 325.12암페어 | 3.26 | <.0001 |
| 레아, cm² | 75.17나 | 90.48암페어 | 1.66 | <.0001 |
| BFT, 밀리미터 | 5.72비 | 9.16암페어 | 0.62 | 0.001 |
표 1: 비육장 완성 넬로레(Bos indicus)와 F1 앵거스-넬로레(Bos taurus × Bos indicus) 수소의 도체 형질. a-b 소문자가 다르면 P < 0.05에서 차이를 나타냅니다. 약어: BW = 체중; HCW = 뜨거운 시체 중량; REA = 립아이 영역; BFT = 등뚱 두께; SEM = 평균의 표준 오차.
육질 형질의 비교도 수행되었으며(표 2) Nellore 대 F1 Angus-Nellore 황소 간에 육류 pH, 적색도, PL, EVP 및 CL(P > 0.05)에 대한 차이는 발견되지 않았습니다. 그러나 교잡 수소는 Nellore 수소보다 IMF, 황색도, WHC 및 MFI가 더 컸습니다(P < 0.05). 결과적으로, Nellore 황소의 육질 특성은 WBSF 및 DL(더 강한 고기)이 더 많고 WHC가 더 낮고 수분이 더 많아 부드러움 측면에서 부정적인 영향을 받았습니다.
| 가변¹ | 넬로르 | F1 앵거스 x 넬로르 | 증권 시세 표시기 | p-값 |
| 산도 | 5.58 | 5.63 | 0.06 | 0.122 |
| 수분, % | 74.51 암페어 | 73.65 비 | 0.21 | 0.017 |
| IMF NIRS, % | 3.79암페어 | 5.11 나 | 0.25 | 0.002 |
| IMF 중량 측정 방법, % | 1.95 암페어 | 3.11 나 | 0.34 | 0.005 |
| 가벼움 (L*) | 31.57 암페어 | 30.98 b | 0.58 | 0.008 |
| 홍조(a*) | 14.91 | 15.59 | 0.37 | 0.061 |
| 황색도(b*) | 5.61 암페어 | 6.19 나 | 0.17 | 0.003 |
| 퍼지 손실, % | 23.17 | 21.03 | 1.22 | 0.176 |
| 드립 손실, % | 3.96 암페어 | 3.67 비 | 0.05 | 0.039 |
| 증발 손실, % | 22.9 | 24.22 | 1.15 | 0.122 |
| 총 요리 손실, % | 26.8 | 28.08 | 1.04 | 0.764 |
| WHC, % | 61.3 | 63.5 | 1.01 | 0.042 |
| WBSF, 킬로그램 | 4.68 암페어 | 4.23 나 | 0.17 | 0.002 |
| 엠피 | 64.95 암페어 | 81.76 b | 1.54 | 0.005 |
표 2: 비육장 완성 넬로레(Bos indicus)와 F1 앵거스-넬로레(Bos taurus × Bos indicus)의 육질 특성. a-b소문자가 다르면 P < 0.05에서 차이를 나타냅니다. 약어: IMF = 근육 내 지방 함량; WBSF = Warner-Blatzler 전단력; MFI = 근섬유 단편화 지수; WHC = 수분 보유 용량.
육류 부드러움의 차이는 실험 그룹 간의 MyHC IIa(P < 0.01)의 차이와도 관련이 있을 수 있습니다(그림 1). F1 앵거스-넬로어(Angus-Nellore) 황소는 넬로어(Nellore) 수소에 비해 MyHC IIa가 더 많이 함유되어 있었습니다. 이러한 발견은 Nellore 동물의 경우 고속 해당섬유(MyHC IIx)에서 고속 산화 해당섬유(MyHC IIa)로의 조절이 발생했음을 시사합니다. 대조적으로, F1 Angus-Nellore 동물의 경우, 이러한 조절은 더 적은 규모로 발생하여 고속 해당섬유 (MyHC IIx)의 눈에 띄는 비대 성장을 보여줍니다. 따라서 MyHC-IIa 동형의 발현은 이들 그룹 간에 뚜렷하게 달랐습니다.
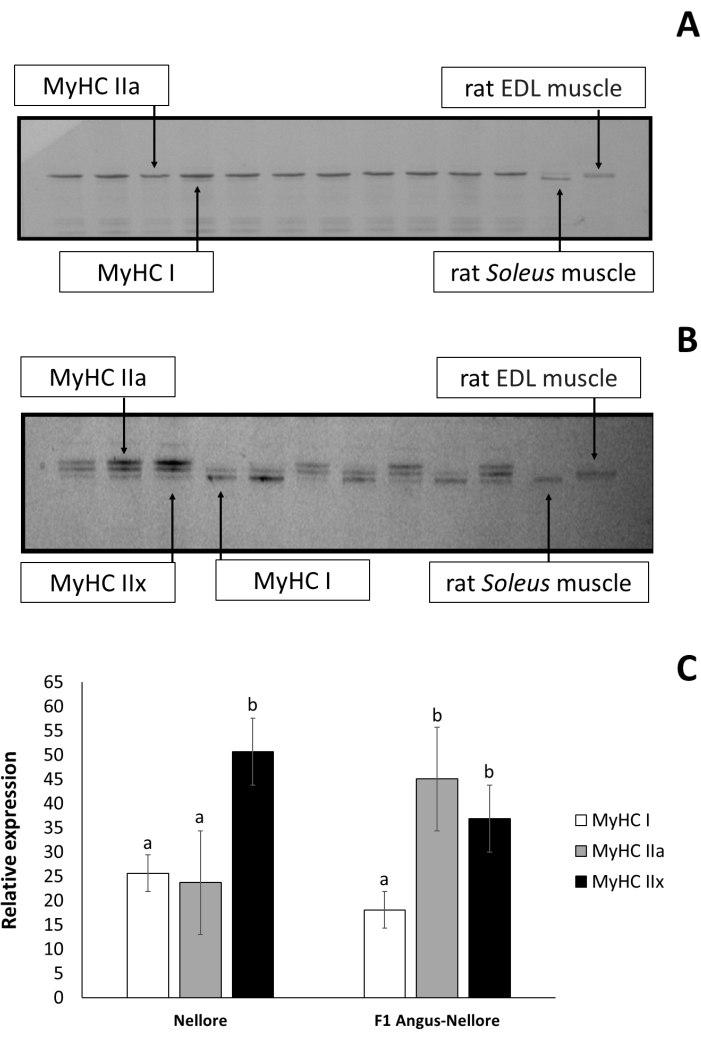
그림 1: Longissimus thoracis 근육의 myosin 중쇄 동형의 전기영동. (A) Nellore 및 (B) F1 Angus-Nellore 황소. (C) 두 실험 그룹(SDS-PAGE gel 7-10%)의 Longissimus thoracis 근육에서 MyHC 동형의 상대적 백분율. 약어: MyHC = myosin 중쇄; SDS-PAGE = 나트륨 도데 실 설페이트 - 폴리 아크릴 아미드 겔 전기 영동. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
보충 그림 S1: 피하 지방과 근육 간 지방 사이의 계면에서 등지방 두께(BFT)를 측정하는 방법. 이 과정에는 내측 경계 "A"와 갈비뼈를 따라 3/4, "B"를 가로지르는 절반 지점을 포함한 특정 해부학적 랜드마크를 식별하는 것이 포함됩니다. 그런 다음 캘리퍼는 점 B에서 지정된 갈비뼈에 수직으로 배치되어 피하 지방과 근육 간 지방 사이의 계면까지 확장됩니다. 피하 지방 두께는 계면점에서 피하 지방 라인에 직각으로 캘리퍼를 배치하여 측정합니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
지육 평가 중에는 일관되고 비교 가능한 데이터를 얻기 위해 48시간 냉각 기간 후 성장 및 품질 특성을 정확하게 측정하는 것이 중요합니다. 두 생물학적 모델은 다양한 도체 형질, 특히 HCW, REA 및 BFT를 나타냈으며, 이는 다른 연구에서 보고된 결과와 일치합니다. Nellore 황소의 평균 HCW는 지방 함량이 적은 동물 단위당 더 많은 육류 생산을 우선시하는 브라질 시장의 선호도와 일치합니다25. 반대로, 교잡 소(Bos taurus × Bos indicus)는 지육 중량이 더 높고 마블링 점수가 더 높아 감각적 품질이 우수한 고기를 생산합니다. 이는 부가가치가 높은 쇠고기에 대한 시장 수요를 충족시키는데, 이러한 특성은 프리미엄 육류 제품과 관련이 있기 때문이다26.
얻어진 평균 pH 값은 5.3 내지 5.5 범위로, 일반적으로 5.3 내지 5.6 범위인 쇠고기27에 대해 보고된 문헌 값과 밀접하게 일치한다. 색상 변수 L*, a*, b*는 다른 연구에서 관찰된 육우의 평균값과 일치합니다 7,28. 이 연구들은 각각 4.0에서 7.0, 13에서 16, 30.0에서 32.0 범위의 b*, a* 및 L* 변수를 보고했습니다. 이러한 육류 품질 분석에서 시료 전처리는 균일성을 보장하기 위해 표준화된 숙성 과정 및 분석 전 개화 시간을 포함하여 근육 시료의 적절한 취급을 포함하여 세심하게 이루어져야 합니다. 교정 및 측정 프로토콜은 pH 측정기 및 색도계와 같은 모든 장치를 측정 무결성을 유지하기 위해 사용하기 전에 정밀하게 교정할 것을 요구합니다.
고기의 색깔은 근육 속의 산소와 미오글로빈의 상호작용에 의해 생기며, 미오글로빈의 농도는 동물의 크기에 비례하는 것으로 보인다29. Purchas et al.30은 유럽 동물(Bos taurus)에 대해서도 유사한 결과를 보고했는데, 여기서 그들은 빠르게 성장하는 앵거스 소의 고기에서 느리게 성장하는 동물에 비해 더 높은 붉은색과 노란색을 관찰했습니다. 선행 연구에서는 유럽31 및 Zebu32 모두에서 쇠고기 부드러움을 예측하는 도구로서 색상 매개변수(L*, a*, b*)의 잠재적 유용성을 보고했습니다.
육류 색상 검사는 소비자가 육류를 구매할 때 고려하는 주요 요소 중 하나이며 식품 안전(제품 원산지 및 무역), 절단 유형 및 크기, 지방도 및 근육 내 지방(마블링)에 대한 고려 사항과 함께 매우 중요합니다. 결과적으로, 고기가 부드럽고 육즙이 많을 가능성을 높이기 위해, 소비자는 고기의 색깔, 절단 크기, 특히 마블링 또는 근육 내 및 피하 지방을 평가하는 것이 권장된다33. 그럼에도 불구하고, 색깔이 육류를 구입하는 동안 의사 결정에 가장 큰 영향을 미친다는 것은 분명하다.
얻어진 평균 WBSF 값은 4.0에서 4.7kg 사이였다. 객관적인 부드러움 분석은 상대적으로 비용 효율적인 것으로 간주되고 패널리스트나 관능 검사를 필요로 하지 않기 때문에 육류 부드러움을 평가하기 위해 널리 사용되어 왔다34. IMF35의 영향을 받는 쇠고기 부드러움에 대한 소비자 평가의 주관적인 특성을 감안할 때, 도구적 방법은 부드러움 등급을 예측하는 데 매우 중요합니다. 또한 근적외선 분광법과 같은 특정 방법의 감도는 시료 준비에서 정밀한 보정과 일관성을 필요로 합니다. 편차가 있으면 판독값이 부정확해질 수 있습니다.
WBSF 장비의 원래 개념은 60년대36 이후 약간의 변화를 겪었습니다. 쇠고기의 맥락에서, 이 방법은 Wheeler et al.37에 의해 표준화되었다. 저자에 따르면, 샘플의 준비 및 조리는 세심하게 제어되어야 합니다: 샘플은 유리 내화물 위의 그리드에 배치되고 내부 온도가 71°C에 도달할 때까지 조리됩니다. 조리 후 샘플을 냉각하고 무게를 측정한 후 4°C에서 24시간 동안 냉장 보관하여 추가 분석 전에 안정화합니다. 조리 손실은 물방울 손실 및 증발 손실에 대한 공식을 사용하여 계산되어 조리로 인한 무게 변화가 정확하게 정량화되도록 합니다. WBSF 측정은 샘플당 8개의 코어를 절단하는 중요한 단계로, 극한을 제외한 후 보고된 평균 6개의 전단력 값을 통해 육류 부드러움에 대한 신뢰할 수 있는 측정을 제공합니다. EL과 DL의 합으로 대표되는 본 연구의 총 조리 손실은 비육장 완성 육우38에서 보고된 것과 비슷했다. 더욱이, 결합 조직의 열로 인한 변화가 연화 효과에 기여한다는 것이 널리 받아들여지고 있습니다. 연구에 따르면 최종 조리 온도가 부드러움에 미치는 영향은 근섬유 구조의 변화를 밝혀냈으며, 이에 따라 부드러움과 CL은 모두 단백질 변성에 의해 영향을 받습니다39,40. 이러한 화학적 또는 분자적 사건은 WHC의 변화로 인해 감각 특성에 영향을 미칠 수 있습니다.
CL 및 WHC에 관한 관찰 결과는 근육의 수분 분포 및 가용성이 육즙, 부드러움 및 풍미에 중추적인 역할을 한다는 것이 잘 확립되어 있기 때문에 기대와 일치합니다41. 결과적으로, 더 높은 DL과 더 낮은 WHC는 Nellore 황소에 대한 이 연구에서 관찰된 바와 같이 더 질기고 육즙이 적은 고기로 이어집니다.
MFI와 같은 생화학 분석은 육류 부드러움의 지표로 사용됩니다. 본 연구에서 얻은 결과는 WBSF 값이 증가함에 따라 쇠고기의 MFI가 감소한다는 것을 확인시켜주며, 이는 질긴 육류에서 근섬유질 단편화가 감소했음을 나타낼 수 있습니다. 따라서 MFI는 근섬유 단백질 분해의 지표 역할을 하며 WBSF42가 감소함에 따라 증가합니다. 연구진은 근피브릴 단백질 분해 비율이 높을수록 쇠고기43 호와 양고기44호에서 부드러움이 증가한다고 보고했습니다. 사후 단백질 분해를 위한 이 생화학적 분석에는 특정 완충액에서 LT 샘플의 균질화, 원심분리 및 재현탁이 포함되며 biuret 방법을 사용하여 단백질 농도를 측정합니다. 그런 다음 MFI는 분광광도계를 통해 측정되어 근섬유 단편화 정도를 반영하는 지수를 제공합니다. 이러한 꼼꼼하게 통제된 단계는 육류 제품의 품질과 시장 가치를 평가하는 데 중요한 데이터의 무결성과 신뢰성을 보장합니다.
또한, MFI는 숙성된 고기의 부드러움 변화의 50% 이상을 설명할 수 있습니다. 다른 품종 또는 그룹을 연구할 때 육류 부드러움의 차이는 유전적 요인에만 전적으로 의존하지 않습니다. 특히 LT 근육의 경우, 본 연구에서 나타난 바와 같이, 압통 변화는 주로 근섬유질 단백질의 단백질 분해에 기인하며, 그 정도는 덜하지만 육종 길이 및 결합 조직 함량에 기인한다45. 그럼에도 불구하고, WBSF와 MFI의 관계는 육류 산업의 사후 냉장 보관 공정으로 인한 육류 압통 문제를 감지하는 데 유용한 도구가 될 수 있습니다. 우리의 연구는 품종 유형의 차이에 대한 통찰력을 제공하지만, 표본 크기와 연구 범위로 인해 포괄적인 유전자 평가를 구성하지 않는다는 점에 유의하는 것이 중요합니다.
분자 분석은 단백질 분리 및 식별의 신뢰성을 보장하기 위해 전기영동 조건의 엄격한 제어와 MyHC 동형의 후속 분석이 필요합니다. 이러한 중요한 단계를 준수하면 연구 결과의 견고성과 재현성이 보장됩니다. 근육 섬유 유형은 성장과 쇠고기의 부드러움 특성을 조절하는 데 중요한 역할을 합니다. MyHC 단백질은 소 근육46에서 가장 풍부한 단백질이며 각 근육의 섬유 유형의 분자 인식을 위해 일반적으로 연구됩니다. MyHC-IIx와 같은 일부 MyHC 동형은 Bos taurus47에서 고기 부드러움의 바이오마커로 제안되었습니다. 그러나 MyHC를 암호화하는 유전자를 평가하고 Zebu 동물(Bos indicus)에서 이들의 동형을 정량화하는 연구는 제한적이었습니다. 연구된 동물에서 MyHC-IIb 동형의 결핍은 성인 소의 골격근에서 MyHC의 식별 및 발현에 관한 연구에서 보고된 결과와 일치한다48. 특히, Nellore 소의 경우, 이전 연구에서는 LT 근육에서 전기영동에 의한 MyHC-IIb 동형의 존재를 감지할 수 없었습니다. 이 동형은 Blonde d' Aquitaine49와 같은 이중 근육 Bos taurus 품종에서 더 일반적입니다.
근육 섬유 유형과 쇠고기 부드러움 사이의 관계는 지속적인 논쟁의 주제였습니다. 표본 변동성은 중요한 요소인데, 동물 간의 근육 조성 및 섬유 유형의 차이로 인해 일관되지 않은 결과가 발생할 수 있기 때문입니다. 식단 및 취급 조건을 포함한 환경적 요인도 육류 품질 특성에 영향을 미치는 데 중요한 역할을 합니다. 이러한 한계는 신뢰할 수 있고 비교 가능한 결과를 보장하기 위해 측정 프로세스 전반에 걸쳐 엄격한 제어 및 표준화의 필요성을 강조합니다. 본 연구의 결과와 유사하게, LT 근육의 압통에 대한 MyHC-I의 부정적인 영향이 Charolais 소50,51에 대해보고되었습니다. 대조적으로, 다른 연구에서는 Aubrac, Salers, Limousin, Charolais, Montbéliard, Holstein 및 Blonde d' Aquitaine 52,53,54를 포함한 다양한 품종의 육류 부드러움에 대한 MyHC-I의 긍정적 인 효과를 설명했습니다. 문헌에서 발견되는 다양한 결과는 유전자형 차이와 소 LT 근육에서 이 동형의 분리 및 식별에 사용되는 방법의 한계에 기인할 수 있습니다. 게다가, 다양한 배경 환경과 식단도 육질과 근육 유형 특성에 영향을 미칠 수 있습니다.
생화학적 분석, 특히 MFI는 사후 쇠고기 압통 메커니즘에 대한 실마리를 제공하여 근섬유 유형, 미오신 중쇄 동형의 주요 역할 및 소고기 압통에 미치는 영향을 보여줍니다. Bos indicus 소에서 특정 MyHC 동형이 없다는 것이 주목되며, 이는 쇠고기 부드러움 변화에 대한 함의입니다. 전반적으로 유전적 요인과 생화학적 요인의 복잡한 상호 작용은 쇠고기의 부드러움을 조절하고 이 분야에 대한 추가 연구의 필요성을 강조합니다. WBSF 측정, IMF 함량 분석 및 MyHC 동형 전기영동과 같은 여러 방법의 통합은 육류 품질의 변화를 설명하는 데 도움이 됩니다. 설명된 세부 프로토콜은 육류 품질을 평가하기 위한 정확한 단계를 제공하여 다른 연구원이 절차를 정확하게 복제하거나 조정할 수 있도록 합니다. 또한, 이 발견은 Bos indicus 와 교잡종 수소 사이의 육류 품질 특성에서 중요한 차이를 강조함으로써 귀중한 유전적 통찰력을 제공합니다.
공개 사항
저자는 밝힐 것이 없습니다. 연구비 제공자는 연구 설계, 데이터 수집 및 분석, 출판 결정 또는 원고 준비에 아무런 역할도 하지 않았다.
감사의 글
이 연구는 FAPESP(보조금 2023/05002-3; 2023/02662-2 및 2024/09871-9), CAPES(금융 코드 001), CNPq(304158/2022-4) 및 상파울루 주립대학교 수의학 및 동물 과학 대학의 PROPE(IEPe-RC 보조금 번호 149)의 자금 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 아세톤 | Merk, 다름슈타트, 독일 | CAS 67-64-1 | | 전기영동 분리에 사용되는 100014 솔루션 |
| Anti-MYH-1 항체 | Merk, 다름슈타트, 독일 | MABT846 | Rat soleus |
| Anti-Myosin 항체 | Abcam, Massachusetts, United States | ab37484 | Myosin heavy chain |
| Anti-Myosin-2 (MYH2) 항체 | Merk, 다름슈타트, 독일 | MABT840 | EDL(Extensor digitorum longus) |
| 생물학적 산소 요구량(BOD) 인큐베이터 | TECNAL, Sã o Paulo, Brazil | TE-371/240L | 육류 숙성 |
| 클로로포름; 절대 분석 시약 | Sigma-Aldrich, Missouri, United States | 67-66-3 | 근육내 지방 |
| CIELab 시스템 | Konica Minolta Sensing, Tokyo, Japan | CR-400 colorimeter | Meat color |
| Coomassie Blue | Sigma-Aldrich, Missouri, United States | C.I. 42655) | Myosin heavy chain |
| Electric 오븐 | Venâ ncio Aires, Rio Grande do Sul, Brazil | 육류 부드러움 | |
| 에탄올 | Merk, 다름슈타트, 독일 | 64-17-5 | 전기 영동 분리에 사용되는 솔루션 |
| 에틸렌 디아민 테트라 아세트산 | Sigma-Aldrich, Missouri, United States | 60-00-4 | 사후 단백질 분해 |
| 유리 플라스크 | Sigma-Aldrich, Missouri, United States | 솔루션 전기영동 분리 | |
| Glycine | Sigma-Aldrich, Missouri, United States | G6761 | Myosin heavy |
| chain Infrared spectroscopy - FoodScan | Foss NIRSystems, Madson, United States | FoodScan™ 2 | 근육 내 지방 |
| 염화마그네슘 | Sigma-Aldrich, Missouri, United States | 7786-30-3 | 사후 단백질 분해 |
| 메르캅토에탄올 | Sigma-Aldrich, Missouri, United States | M6250 | Myosin 중쇄 |
| 메탄올, 절대 분석 시약 | Sigma-Aldrich, Missouri, United States | 67-56-1 | 근육 내 지방 |
| pH 측정기 | LineLab, Sã o Paulo, Brazil | AKLA 71980 | Meat pH |
| PlusOne 2-D Quant Kit | GE Healthcare 제품 | 코드 80-6483-56 | 사후 단백질 분해 |
| 폴리프로필렌 | Sigma-Aldrich, Missouri, United States | 전기영동 분리에 사용되는 솔루션 | |
| 염화칼 | Sigma-Aldrich, Missouri, United States | 7447-40-7 | 사후 단백질 분해 |
| 인산칼 | Sigma-Aldrich, Missouri, United States | P0662 | Post-mortem proteolysis |
| R software | Vienna, Austria | version 3.6.2 | Data analysis |
| Sodium azide | Sigma-Aldrich, Missouri, United States | 26628-22-8 | Post-mortem proteolysis |
| Sodium dodecyl sulfate ( SDS) | Sigma-Aldrich, Missouri, United States | 822050 | Myosin Heavy chain |
| Spectrophotometer | Perkin Elmer, Shelton, United States | Perkin Elmer Lambda 25 UV/Vis | Post-mortem proteolysis |
| statistical analysis system | SAS, Cary, North Carolina, United States | version 9.1,Data | analysis |
| Texture Analyzer | AMETEK Brookfield, Massachusetts, United States States | CTX | 육류 부드러움 |
| 트리스(하이드록시메틸)아미노메탄 | Sigma-Aldrich, Missouri, United States | 77-86-1 | Myosin Heavy chain |
| Ultrafreezer | Indrel Scientific, Londrina, Paraná, Brazil. | INDREL IULT 335 D - LCD | 샘플 저장 |
| 초순수 | Elga PURELAB 초이온 시스템 | 솔루션 전기영동 분리 | |
| Ultra-Turrax 고전단 믹서 | Marconi – MA102/E, 피라시카바, Sã o 파울루, 브라질 | 사후 단백질 분해 |
참고문헌
- Nunes, C. L. deC., Pflanzer, S. B., Rezende-de-Souza, J. H., Chizzotti, M. L. Beef production and carcass evaluation in Brazil. Anim Front. 14 (2), 15-20 (2024).
- MAPA. Projeções Do Agronegócio: Brasil 2017/18 a 2027/28 Projeções de Longo Prazo / Ministério Da Agricultura, Pecuária e Abastecimento. Biblioteca Nacional de Agricultura. , BINAGRI. Brasília-DF. (2018).
- Bernués, A., Ripoll, G., Panea, B. Consumer segmentation based on convenience orientation and attitudes towards quality attributes of lamb meat. Food Qual Prefer. 26, 211-220 (2012).
- Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding management and marketing decisions on feedlots: A national survey in Brazil (Part II). Can J Anim Sci. 100 (4), 759-770 (2020).
- de Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding the optimal economic slaughter endpoint in feedlots: A national survey in Brazil (Part I). Can J Anim Sci. 100 (4), 745-758 (2020).
- Santiago, B., et al. Comparison of dental carcass maturity in non-castrated male F1 Angus-Nellore cattle finished in feedlot. Food Sci Anim Resour. 41 (3), 554-562 (2021).
- Miguel, G. Z., et al. Immunocastration improves carcass traits and beef color attributes in Nellore and Nellore×Aberdeen Angus crossbred animals finished in feedlot. Meat Sci. 96 (2), 884-891 (2014).
- Costa, N. V., et al. Carcass and meat quality traits in Nellore and F1 Nellore-Araguaia crosses. Genet Mol Res. 14 (2), 5379-5389 (2015).
- Pinto, A. C. J., Millen, D. D. Nutritional recommendations and management practices adopted by feedlot cattle nutritionists: the 2016 Brazilian survey. Can J Anim Sci. 99 (2), 392-407 (2019).
- Costa Junior, C., et al. Brazilian beef cattle feedlot manure management: A country survey. J Anim Sci. 91 (4), 1811-1818 (2013).
- Huang, C., et al. Proteomics discovery of protein biomarkers linked to meat quality traits in post-mortem muscles: Current trends and future prospects: A review. Trends Food Sci Technol. 105, 416-432 (2020).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20, 609-619 (2020).
- Official United States Standards for Grades of Carcass Beef. United States Standards for Grades of Carcass Beef. USDA. , Available from: https://www.ams.usda.gov/sites/default/files/media/CarcassBeefStandard.pdf 1-20 (1997).
- Anderson, S. Determination of fat, moisture, and protein in meat and meat products by using the FOSS FoodScan near-infrared spectrophotometer with FOSS artificial neural network calibration model and associated database: Collaborative study. J AOAC Int. 90 (4), 1073-1083 (2007).
- Bligh, E. G., Dyer, W. J. A rapid method of total lipid extraction. Can J Biochem Physiol. 37 (8), 911-917 (1959).
- Hernández Salueña, B., Sáenz Gamasa, C., Diñeiro Rubial, J. M., Alberdi Odriozola, C. CIELAB color paths during meat shelf life. Meat Sci. 157, 107889(2019).
- Rao, M. V., Gault, N. F. S., Kennedy, S. Variations in water-holding capacity due to changes in the fibre diameter, sarcomere length and connective tissue morphology of some beef muscles under acidic conditions below the ultimate pH. Meat Sci. 26 (1), 19-37 (1989).
- Wheeler, T. L., Koohmaraie, M., Cundiff, L. V., Dikeman, M. E. Effects of cooking and shearing methodology on variation in Warner-Bratzler shear force values in beef. J Anim Sci. 72 (9), 2325-2330 (1994).
- AMSA. Research Guidelines for Cookery, Sensory Evaluation, and Instrumental Tenderness Measurements of Meat. American Meat Science Association Educational Foundation. , (2015).
- Culler, R. D., Parrish, F. C., Smith, G. C., Cross, H. R. Relationship of myofibril fragmentation index to certain chemical, physical and sensory characteristics of bovine longissimus muscle. J Food Sci. 43 (4), 1177-1180 (1978).
- Borges, B. O., et al. Polymorphisms in candidate genes and their association with carcass traits and meat quality in Nellore cattle. Pesqui Agropecu Bras. 49 (5), 364-371 (2014).
- Gornall, A. G., Bardawill, C. J., David, M. M. Determination of serum proteins by means of the biuret reaction. J Biol Chem. 177 (2), 751-766 (1949).
- Chardulo, L. A. L., et al. Gene and protein expression of myosin heavy chain in Nellore cattle comparing growth or meat tenderness traits. Anim Biotechnol. 32 (3), 300-309 (2019).
- Vechetti-Júnior, I. J., et al. NFAT isoforms regulate muscle fiber type transition without altering can during aerobic training. Int J Sports Med. 34 (10), 861-867 (2013).
- Ferraz, J. B. S., de Felício, P. E. Production systems - An example from Brazil. Meat Sci. 84, 238-243 (2010).
- Liang, R. R., et al. Tenderness and sensory attributes of the longissimus lumborum muscles with different quality grades from Chinese fattened yellow crossbred steers. Meat Sci. 112, 52-57 (2016).
- Viljoen, H. F., De Kock, H. L., Webb, E. C. Consumer acceptability of dark, firm and dry (DFD) and normal pH beef steaks. Meat Sci. 61 (2), 181-185 (2002).
- Lopes, L. S. F., et al. Application of the principal component analysis , cluster analysis , and partial least square regression on crossbreed Angus-Nellore bulls feedlot finished. Trop Anim Health Prod. 52 (6), 3655-3664 (2020).
- Oddy, V. H., Harper, G. S., Greenwood, P. L., McDonagh, M. B. Nutritional and developmental effects on the intrinsic properties of muscles as they relate to the eating quality of beef. Aust J Exp Agric. 41 (7), 921-942 (2001).
- Purchas, R. W., Burnham, D. L., Morris, S. T. Effects of growth potential and growth path on tenderness of beef longissimus muscle from bulls and steers. J Anim Sci. 80 (12), 3211-3221 (2002).
- Wulf, D. M., O’Connor, S. F., Tatum, J. D., Smith, G. C. Using objective measures of muscle color to predict beef Longissimus tenderness. J Anim Sci. 75 (3), 684-692 (1997).
- Baldassini, W. A., et al. Meat quality traits of Nellore bulls according to different degrees of backfat thickness: A multivariate approach. Anim Prod Sci. 57 (2), 363-370 (2017).
- Chardulo, L. A. L., Silveira, A. C., Vianello, F. Analytical aspects for tropical meat quality assessment. Food Quality, Safety and Technology. Lima, G. P. P., Vianello, F. , Springer-Verlag Wien. 53-62 (2013).
- Chen, L., Opara, U. L. Texture measurement approaches in fresh and processed foods - A review. Food Research International. 51 (2), 823-835 (2013).
- Luo, L., Guo, D., Zhou, G., Chen, K. An investigation on the relationship among marbling features, physiological age and Warner–Bratzler Shear force of steer longissimus dorsi muscle. J Food Sci Technol. 55 (4), 1569-1574 (2018).
- Essex, E. Objective measurements for texture in foods. J Texture Stud. 1, 19-37 (1969).
- Wheeler, T. L., Koohmaraie, M., Shackelford, S. D. Standardized Warner-Bratzler shear force procedures for meat tenderness measurement. , Available from: https://www.ars.usda.gov/ARSUserFiles/30400510/protocols/shearforceprocedures.pdf (1995).
- Severino, M., et al. Proteomics unveils post-mortem changes in beef muscle proteins and provides insight into variations in meat quality traits of crossbred young steers and heifers raised in feedlot. Int J Mol Sci. 23 (20), 12259(2022).
- Bertola, N. C., Bevilacqua, A. E., Zaritsky, N. E. Heat treatment effect on texture changes and thermal denaturation of proteins in beef muscle. J Food Process Preserv. 18 (1), 31-46 (1994).
- Palka, K., Daun, H. Changes in texture, cooking losses, and myofibrillar structure of bovine M. semitendinosus during heating. Meat Sci. 51 (3), 237-243 (1999).
- Pearce, K. L., Rosenvold, K., Andersen, H. J., Hopkins, D. L. Water distribution and mobility in meat during the conversion of muscle to meat and ageing and the impacts on fresh meat quality attributes - A review. Meat Sci. 89 (2), 111-124 (2011).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20 (4), 609-619 (2020).
- Baldassini, W., et al. Meat quality and muscle tissue proteome of crossbred bulls finished under feedlot using wet distiller grains by-product. Foods. 11 (20), 3233(2022).
- della Malva, A., et al. In-depth characterization of myofibrillar muscle proteome changes in lambs fed hazelnut skin by-products. Food Biosci. 53, 102836(2023).
- Koohmaraie, M., Kent, M. P., Shackelford, S. D., Veiseth, E., Wheeler, T. L. Meat tenderness and muscle growth: Is there any relationship. Meat Sci. 62 (3), 345-352 (2002).
- Lefaucheur, L., et al. Muscle characteristics and meat quality traits are affected by divergent selection on residual feed intake in pigs. J Anim Sci. 89 (4), 996-1010 (2011).
- Picard, B., et al. Inverse relationships between biomarkers and beef tenderness according to contractile and metabolic properties of the muscle. J Agric Food Chem. 62 (40), 9808-9818 (2014).
- Chikuni, K., Muroya, S., Nakajima, I. Myosin heavy chain isoforms expressed in bovine skeletal muscles. Meat Sci. 67 (1), 87-94 (2004).
- Picard, B., Cassar-Malek, I. Evidence for expression of IIb myosin heavy chain isoform in some skeletal muscles of Blonde d’Aquitaine bulls. Meat Sci. 82 (1), 30-36 (2009).
- Crouse, J. D., Koohmaraie, M., Seideman, S. D. The relationship of muscle fibre size to tenderness of beef. Meat Sci. 30 (4), 295-302 (1991).
- Zamora, F., et al. Predicting variability of ageing and toughness in beef M. Longissimus lumborum et thoracis. Meat Sci. 43 (3-4), 321-333 (1996).
- Strydom, P. E., Naude, R. T., Smith, M. F., Scholtz, M. M., Van Wyk, J. B. Characterisation of indigenous African cattle breeds in relation to meat quality traits. Meat Sci. 55 (1), 79-88 (2000).
- Renand, G., Picard, B., Touraille, C., Berge, P., Lepetit, J. Relationships between muscle characteristics and meat quality traits of young Charolais bulls. Meat Sci. 59 (1), 49-60 (2001).
- Chriki, S., et al. Meta-analysis of the comparison of the metabolic and contractile characteristics of two bovine muscles: Longissimus thoracis and semitendinosus. Meat Sci. 91 (4), 423-429 (2012).
재인쇄 및 허가
