여기에서는 인간 또는 생쥐 근육의 신선한 투과화된 골격근 섬유에서 미토콘드리아 산화 인산화를 측정하는 포괄적인 방법을 설명합니다. 이 방법을 사용하면 미토콘드리아 호흡을 실시간으로 정량화하고 연료 선호도 및 대사 유연성을 평가하는 동시에 기존 미토콘드리아 네트워크와 멤브레인 무결성을 유지할 수 있습니다.
이 논문에서
요약
초록
세포 에너지 생산의 초석인 미토콘드리아 기능은 대사 항상성을 유지하는 데 중요합니다. 골격근의 기능 장애는 널리 퍼진 대사 장애(예: 당뇨병 및 비만), 근이영양증 및 근감소증과 관련이 있습니다. 미토콘드리아 함량과 형태를 평가하는 많은 기법이 있지만, 미토콘드리아 기능을 평가하는 대표적인 방법은 호흡 측정법에 의한 미토콘드리아 산화 인산화(OXPHOS) 측정입니다. 미토콘드리아 OXPHOS의 정량화는 미토콘드리아 산화 에너지 생산 및 세포 생체 에너지학의 효율성에 대한 통찰력을 제공합니다. 고분해능 호흡계는 미토콘드리아 산소 소비율의 실시간 변화를 측정하여 투과성 근육 섬유의 미토콘드리아 OXPHOS를 매우 민감하고 강력하게 측정합니다. 고립된 미토콘드리아와 달리 투과성 근육 섬유를 사용하면 미토콘드리아 네트워크를 보존하고 미토콘드리아 막의 무결성을 유지하며 궁극적으로 생리학적으로 더 관련성 있는 측정이 가능합니다. 이 시스템은 또한 연료 선호도와 신진대사 유연성(근육 에너지 대사의 역동적인 측면)을 측정할 수 있습니다. 여기에서는 고해상도 호흡계를 사용하여 인간 및 생쥐 골격근 섬유의 미토콘드리아 OXPHOS 측정에 대한 포괄적인 가이드를 제공합니다. 골격근 그룹은 미토콘드리아, 연료 선호도 및 생체 에너지학에 따라 다양한 섬유 유형으로 구성됩니다. 고해상도 호흡계를 사용하여 호기성 해당작용 및 지방산 기질을 모두 평가하여 섬유 유형에 따른 방식으로 연료 선호도와 대사 유연성을 평가하는 방법을 설명합니다. 이 프로토콜은 다재다능하며 인간과 설치류 근육 섬유 모두에 적용할 수 있습니다. 목표는 미토콘드리아 기능 평가의 재현성과 정확성을 향상시켜 근육 건강에 중요한 세포 소기관에 대한 이해를 향상시키는 것입니다.
서론
미토콘드리아는 세포 에너지 생산의 초석으로, 최적의 세포 및 유기체 항상성을 유지하는 데 필수적입니다. 이 이중막 세포소기관은 주로 산화적 인산화를 담당합니다. 이 과정은 당과 지방산과 같은 영양소를 에너지의 세포 통화인 아데노신 삼인산(ATP)으로 효율적으로 전환합니다. 미토콘드리아는 에너지 대사에서의 역할 외에도 세포사멸, 칼슘 항상성, 활성산소종(ROS)1,2을 포함한 다양한 세포 과정의 핵심 조절자입니다. 세포 및 유기체의 항상성을 유지하는 데 중추적인 역할을 하기 때문에 미토콘드리아 기능의 중단은 종종 조직과 유기체 건강에 해로운 영향을 미칩니다. 골격근에서 미토콘드리아 기능 장애는 대사 장애(예: 비만, 당뇨병, 심혈관 질환), 근감소증, 근이영양증 등 다양한 질병 상태와 관련이 있습니다 3,4,5,6,7,8.
미토콘드리아 기능 장애는 주로 미토콘드리아 내용, 수, 형태 변화의 변화와 신진대사 장애로 나타날 수 있습니다. 따라서 미토콘드리아 기능 장애에 대한 포괄적인 이해를 위해서는 통합적이고 전체론적인 접근 방식이 필요합니다. 초기 특성화 연구에는 미토콘드리아 함량 판독으로 호흡 사슬 단백질 복합체의 발현 수준 검사, 미토콘드리아 생물 발생의 척도로 미토콘드리아 DNA 및 생물 발생 마커 정량화, 미토콘드리아 형태를 평가하기 위한 정교한 전자 현미경 이미징이 포함됩니다 9,10. 미토콘드리아 기능에 대한 추가 평가에는 세포 ROS 및 ATP 생산과 미토콘드리아 막 전위 평가가 포함된다9.
미토콘드리아는 세포 에너지 생산과 항상성에 필수적이기 때문에 미토콘드리아 기능을 평가하기 위한 특징은 미토콘드리아 산화 인산화(OXPHOS)를 측정하는 것입니다. 투과성 근육 섬유의 고분해능 호흡 측정법을 사용하면 미토콘드리아 OXPHOS 호흡 사슬 활동의 동적 변화에 대한 판독값으로 미토콘드리아 산소 소비율의 실시간 변화를 측정할 수 있습니다 9,11,12. 선택적 화학적 조절제 및 억제제를 적용하면 다양한 호흡기 복합체의 활성을 직접적이고 순차적으로 측정할 수 있습니다. 분리된 미토콘드리아가 호흡 측정에 사용될 수 있지만, 신선한 투과성 근육 섬유를 사용하면 내인성 미토콘드리아 네트워크와 막 무결성이 유지되므로 생리학적으로 더 관련성 있는 측정이 가능합니다. 또한, 근섬유 유형에 따라 기질 선호도와 호흡 속도가 다르기 때문에 이 시스템을 통해 섬유 유형13에 따라 연료 선호도 및 대사 유연성의 변화를 측정할 수 있습니다.
여기에서는 고분해능 호흡계 시스템에서 인간 또는 생쥐의 골격근 섬유를 사용하여 미토콘드리아 OXPHOS 측정을 위한 포괄적인 프로토콜을 설명합니다. 피루브산 또는 팔미토일-카르니틴을 기질로 사용하여 산화 또는 해당작용 섬유에서 미토콘드리아 산소 호흡을 정량화하는 방법이 포함됩니다. 이 프로토콜은 기판 활용 및 연료 선호도의 결함과 관련된 특정 대사 질문을 해결하기 위해 다른 연료 기판을 사용할 수 있도록 합니다.
프로토콜
모든 마우스 시술은 워싱턴 대학의 기관 동물 보호 및 사용 위원회(Institutional Animal Care and Use Committee)의 승인을 받았습니다. 모든 성별, 연령 및 체중의 마우스가 이러한 실험에 사용될 수 있으며 다루고자 하는 실험 질문의 성격에 따라 달라집니다. 여기에 사용된 마우스는 성체(12-16주령) 수컷 야생형 C57BL/6 마우스입니다. 모든 인간 절차는 워싱턴 대학의 기관 검토 위원회(Institutional Review Board)의 승인을 받았습니다. 연구 대상자는 데이터 사용에 동의했으며, 이 프로토콜에 포함된 대표적인 인간 피험자 데이터는 발표된 연구14에서 발췌한 것이다. 이 데이터는 당뇨병이 없는 폐경 후(55-75세) 여성의 데이터입니다. 분석에 필요한 시약을 준비하기 위한 자세한 내용은 표 1에 나와 있습니다. 분석에 사용된 특정 시약, 도구 및 기계에 대한 정보는 재료 표에 나열되어 있습니다. 프로토콜의 개략도는 그림 1에 나와 있습니다.

그림 1: 투과성 골격근 샘플에 대한 고분해능 호흡 측정을 위한 개략도. 이 원고에 자세히 설명된 방법은 1) 호흡 완충액 및 시약 준비, 2) 분석 당일 기기 및 시약 준비, 3) 근육 샘플의 준비 및 투과화, 4) 샘플 및 기기 준비, 5) 호흡 분석 실행, 6) 데이터 분석의 6개 섹션으로 나뉩니다. Created with BioRender.com 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
1. 분석 준비 및 기기 교정
- 분석 당일, 각 호흡 화합물(블레비스타틴, 팔미토일-카르니틴, 글루타메이트, 말레이트, ADP, 숙시네이트, 시토크롬 C, FCCP)의 필요한 수의 분취액을 제거하고 얼음에서 해동합니다. BIOPS 및 MiR05 바이알을 얼음에서 해동합니다.
- 표 1과 같이 사포닌 및 피루브산 용액을 준비합니다. 표 05와 같이 MiR1의 작업 용액을 준비합니다. 기기당 MiR05 작업 용액 5mL(챔버 2개)를 준비합니다. 필요에 따라 확장합니다.
- 고해상도 호흡 측정 시스템과 진공 시스템을 켭니다. 마개를 제거하고 70% 에탄올 저장 용액을 진공으로 제거한 다음 챔버를 초순수 분자 등급 H2O로 다시 채우고 진공 및 리필로 H2O를 제거합니다. 총 3회 세탁을 반복합니다. 최종 세척 후 각 챔버에 MiR05 2mL(크레아틴 또는 블레비스타틴 제외)를 추가합니다.
- 호흡 측정 소프트웨어를 엽니다. 소프트웨어가 시작되면 기기 설정을 위한 팝업 상자가 열립니다. 챔버 교반 속도를 750rpm으로, 온도를 37°C로, 데이터 기록 간격을 2초로 설정합니다. 산소 센서의 경우 이득을 1로 설정하고 분극 전압을 800mV로 설정합니다. Connect to Oxygraph 를 클릭하여 기기와의 통신을 설정합니다.
- 통신이 설정되면 실험 파일의 이름을 지정하고 저장할 수 있는 대화 상자가 열립니다. 현재 날짜 및 보정과 함께 파일을 저장합니다. 파일을 저장한 후 실험 세부 정보를 볼 수 있는 팝업 대화 상자가 나타납니다. 교정 실행에는 정보가 필요하지 않으며 상자를 닫을 수 있습니다.
- 챔버가 예열될 수 있도록 최소 30분 동안 산소 농도를 기록하고 공기 보정을 위한 신호를 기록합니다. 이것은 아래 2단계에서 자세히 설명한 대로 근섬유를 준비하는 동안 수행할 수 있습니다.
- 교정 기간이 끝나면 산소 농도(파란색 선)가 안정적인 지역을 가로질러 교정 지역을 표시합니다. 이렇게 하려면 Shift 키와 마우스 왼쪽 버튼을 누른 상태에서 타임라인의 영역을 가로질러 드래그합니다.
- Oxygraph > O2 Calibration으로 이동하여 보정 창을 엽니다. Air Calibration(공기 보정)의 경우 1.8단계에서 생성된 마크를 선택합니다. Calibrate and Copy to Clipboard(보정 및 클립보드에 복사)를 클릭합니다.
- 나머지 챔버에 대해 1.6-1.8단계를 반복합니다. 매일 공기 보정을 수행하십시오. 공기 보정 기록을 중지하고 기기와의 연결을 끊어 파일을 저장합니다. 샘플이 준비되면 3단계로 진행하여 분석을 수행합니다.
2. 골격근 섬유의 수확 및 투과화
- 마우스 조직 분리
- 분석할 각 샘플에 대해 12웰 배양 접시의 웰 하나를 1mL의 BIOPS로 채웁니다. 얼음 위에 접시를 올려 식힙니다.
- 이산화탄소 흡입 후 자궁 경부 탈구로 쥐를 안락사 시킨 후 관심 골격근을 적출하고 모든 결합 조직과 지방을 제거해야 합니다(그림 2A). BIOS가 들어 있는 웰 중 하나에 근육을 놓습니다. 섬유질이 준비될 때까지 얼음 위에 놓습니다.
참고: 이 프로토콜을 사용하여 모든 골격근을 검사할 수 있습니다 - 검사되는 근육 유형은 다루고자 하는 실험적 질문에 따라 다릅니다. 비복근과 같은 혼합 섬유 유형을 가진 골격근의 경우, 조직을 백색과 적색 절편으로 분리하여 주로 빠른 경련(백색 절편)과 주로 느린 경련(적색 절편) 섬유를 측정할 수 있습니다(그림 2B).
- 인체 조직 분리
- 임상 프로토콜에 따라 조직 수집14. 차갑고 멸균된 PBS로 조직을 빠르게 헹구고 2mL의 BIOPS 용액이 들어 있는 원추형 튜브에 넣습니다. 섬유질이 준비될 때까지 티슈를 얼음 위에 두십시오.
- 섬유질 준비
- 투과화는 6웰 조직 배양 플레이트에서 이루어집니다. 한 웰 세트에 2mL의 BIOPS 용액을 추가하고 다른 웰 세트에 MiR05 2mL를 추가합니다. 분석되는 각 샘플에 대해 한 세트의 웰이 필요합니다.
- 쟁반에 얼음을 채우고 유리 페트리 접시를 얼음 위에 거꾸로 놓습니다. 항상 근육을 얼음 위에 두십시오.
- 채취한 근육 샘플을 겸자를 사용하여 냉각된 페트리 접시 플랫폼으로 옮깁니다. 끝이 가는 두 개의 집게와 광원이 있는 해부 현미경을 사용하여 근육에 붙어 있는 힘줄, 근막 및 지방 조직을 제거하여 조직을 부드럽게 청소합니다.
- 근육이 아닌 외부 조직을 모두 제거한 후, 끝이 가는 집게로 근육 섬유를 부드럽게 잡아당겨 길이가 0.75 - 1.0 mm인 반투명 섬유의 작은 다발이 될 때까지 잡아당깁니다(그림 2C-D). 섬유를 분리한 후 겸자를 사용하여 섬유 다발을 얼음에 BIOPS 용액이 들어 있는 6웰 플레이트의 웰로 옮깁니다.
- 각 BIOPS 웰에 20μL의 5mg/mL 사포닌 용액을 추가하고 차가운 방에서 20분 동안 부드럽게 흔들면서 플레이트를 얼음 위에 배양합니다.
- 사포닌 처리 후 근육 섬유를 MiR05가 들어있는 웰로 옮겨 분석 전에 헹굽니다. 차가운 방에서 15분 동안 부드럽게 흔들면서 얼음 위에서 배양합니다.
- MiR05에서 섬유 배양이 완료되면 날카로운 집게로 섬유를 모으고 작업 와이프에 근육 섬유를 부드럽게 닦아내어 건조시킵니다. 1.5mL 플라스틱 미세 원심분리기 튜브를 미세한 균형으로 갈아잣고 튜브에 2-3mg의 섬유를 넣습니다. 각 튜브의 측면에 최종 섬유 무게를 기록합니다. 튜브를 얼음 위에 놓습니다. 다른 샘플로 반복합니다. 즉시 3단계로 진행합니다.
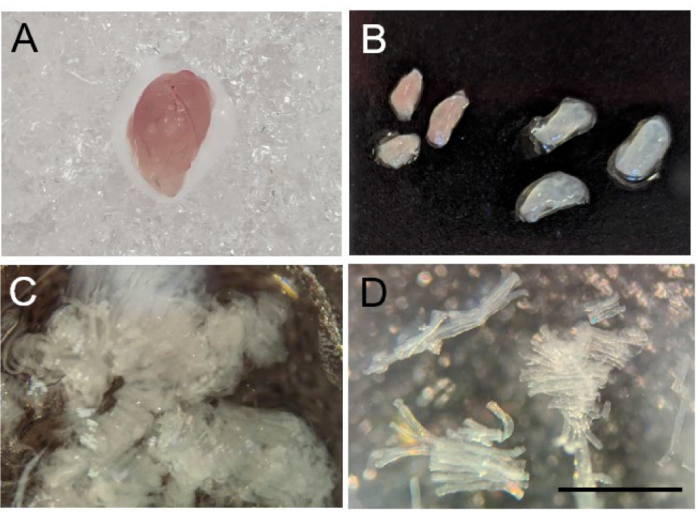
그림 2: 쥐의 골격근 섬유의 분리. (A) 수확 후 마우스 gastrocnemius의 총 형태. (B) 비복근을 적색(왼쪽)과 백색(오른쪽)으로 해부. (C) 기계적으로 분리된 근섬유. (D) 성공적으로 분리된 근육 섬유의 10x 이미지. 눈금 막대는 1mm입니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
3. 호흡계에서 근육 샘플 준비
- 위의 1단계에서 자세히 설명한 대로 기기 교정에 사용되는 MiR05를 진공 청소기로 청소하고 각 챔버에 2.1mL의 작동 MiR05 용액을 추가합니다.
- 1.5단계에서 자세히 설명한 것과 동일한 기기 설정을 사용하여 실험을 위한 새 파일을 시작합니다. 위. 파일 이름을 설정하고 설정을 저장합니다.
- 파일 이름을 설정하면 다음 화면 대화 상자가 특정 실험 세부 정보에 표시됩니다. 각 챔버에 추가된 각 샘플의 무게와 샘플 정보를 입력합니다. 대화 상자를 닫습니다.
- 새 실험 파일에 들어가면 O2 보정 창을 열어 보정을 설정합니다. 파일에서 복사 를 클릭하고 1.9단계에서 저장한 파일을 선택합니다. 위. Calibrate and Copy to Clipboard 버튼을 클릭합니다. 나머지 챔버에 대해 이 과정을 반복합니다.
- 미세한 집게를 사용하여 근섬유 다발을 적절한 챔버의 호흡 용액으로 조심스럽게 옮깁니다. 나머지 챔버에 대해 반복합니다.
- 스토퍼를 챔버에 놓고 스토퍼를 바닥의 절반 정도 밀어 챔버를 조심스럽게 반쯤 닫습니다. 스토퍼의 O-링이 챔버 벽에 맞물리고 저항이 있으면 아래로 눌러 닫으면서 비틀림 동작을 사용합니다. 챔버가 반쯤 닫히면 챔버 상단에서 작은 기포가 관찰될 수 있습니다.
알림: 투과성 섬유는 정기적인 호흡 조건에서 산소 확산 제한이 적용됩니다. 이러한 제한을 피하기 위해, 분석은 상승된 산소 농도 하에서 수행된다11. - 10mL 플라스틱 주사기에 산소 탱크의 순수 산소를 채웁니다. 기기와 함께 제공된 길고 뭉툭한 바늘을 주사기에 놓습니다. 첫 번째 챔버에 바늘을 놓고 약 1mL의 산소를 챔버로 천천히 전달합니다.
- 호흡 측정 소프트웨어에서 챔버 산소 농도를 모니터링합니다. 챔버 산소 농도가 350-400 nmol/mL에 도달하면 스토퍼를 부드럽게 비틀면서 아래로 눌러 챔버를 완전히 닫습니다. 챔버를 들여다보고 기포가 남아 있지 않은지 확인합니다. 기포가 있는 경우 챔버를 신중하고 빠르게 다시 열고 100μL의 추가 작동 MiR05 용액을 추가한 다음 챔버를 빠르게 다시 닫습니다. 나머지 챔버로 반복합니다.
- 분석 중 산소 농도는 250nmol/mL 이상으로 유지되어야 합니다. 챔버를 부분적으로 열고 주사기에서 기포로 더 많은 산소를 추가한 다음 챔버를 다시 조심스럽게 닫아 필요에 따라 추가 산소를 추가합니다.
- 산소 플럭스 데이터를 실험에 사용된 조직 질량으로 정규화합니다. 그래프를 조정하려면 O2 플럭스 (pmol O2 / (s x mg))를 반영하도록 레이아웃을 변경하십시오. 레이아웃 메뉴에서 06 - Specific Flux per Unit Sample 레이아웃을 선택합니다. 이제 데이터가 각 챔버의 조직 양으로 정규화되어 표시됩니다.
4. 고해상도 호흡 측정법
- 산소 첨가 후 산소(파란색 선) 농도와O2 플럭스(빨간색 선)가 안정화되면 호흡 프로토콜을 시작합니다. 산소는 파란색 선이 평평하거나 천천히 감소할 때 안정적인 것으로 간주할 수 있습니다. O2 플럭스도 평평하고 5 pmol O2 / s x mg 이내여야합니다.
- 유리 주사기를 사용하여 모든 시약을 추가합니다. substrate, inhibitor 및 uncoupler에 동일한 주사기를 사용하지 않는 것이 중요합니다. 각각에 대해 별도의 주사기를 준비하십시오. 각 화합물을 첨가한 후 호흡수가 안정된 후 다음 시약을 첨가하기 전에 1-2분 동안 산소 플럭스를 기록하십시오.
- 호흡 측정
- 10μL 유리 주사기를 사용하여 각 챔버에 0.8M 말레이트 2.5μL를 추가합니다. F4 를 눌러 타임라인을 표시하고 표시에 M이라는 레이블을 지정합니다.1-2 분 동안 안정적인 O 2 플럭스를 기록합니다.
- 아래 설명된 대로 영양소 특이적 시약을 추가합니다.
- 호기성 해당작용: 10μL 유리 주사기를 사용하여 각 챔버에 10μL의 2M 글루타메이트와 5μL의 2M 피루브산을 추가합니다. F4 를 눌러 타임라인을 표시하고 표시에 GP로 레이블을 지정합니다. 2-1분 동안 안정적인 O2 플럭스를 기록합니다.
- 지방산: 10μL 유리 주사기를 사용하여 각 챔버에 10μL의 2M 글루타메이트와 10μL의 10mM 팔미토일-카르니틴을 추가합니다. F4 키를 눌러 타임라인을 표시하고 G PC로 마크에 레이블을 지정합니다. 2-1분 동안 안정적인 O2 플럭스를 기록합니다.
- 25μL 유리 주사기를 사용하여 각 챔버에 0.5M(MgCl2 포함) ADP 20μL를 추가합니다. F4 키를 눌러 타임라인을 표시하고 ADP로 마크에 레이블을 지정합니다. 2-1분 동안 안정적인 O2 플럭스를 기록합니다.
- 25μL 유리 주사기를 사용하여 각 챔버에 20μL의 1M 숙시네이트를 추가합니다. F4 를 눌러 타임라인을 표시하고 표시에 S라는 레이블을 지정합니다.1-2 분 동안 안정적인 O 2 플럭스를 기록합니다.
- 10μL 유리 주사기를 사용하여 각 챔버에 5μL의 4mM 사이토크롬 C를 추가합니다. F4 를 눌러 타임라인을 표시하고 표시에 Cyt C로 레이블을 지정합니다. 1-2분 동안 안정적인 O2 플럭스를 기록합니다.
- 10 μL 유리 주사기를 사용하여 1 mM FCCP의 1 μL 볼루스 3개에서 적정합니다. FCCP를 첨가할 때 일반적으로O2 플럭스 레벨이 잠시 감소하는 혼합 효과가 있습니다. 다음 단계로 진행하기 전에O2 플럭스가 증가하고 안정화될 때까지 기다립니다. 추가할 때마다 F4 키를 눌러 타임라인을 표시하고 FCCP로 표시를 레이블 지정합니다. 각 첨가 후 2분 동안 안정적인 O1 플럭스를 기록합니다.
- 호흡 분석이 완료되면 비틀거나 위로 당겨 마개를 부드럽게 제거합니다. 분출병의 초순수 H2O로 챔버를 3번 헹구고 분출병에서 3% 에탄올로 70배를 헹굽니다. 최종 에탄올 헹굼 후 보관을 위해 챔버를 70% 에탄올로 채웁니다.
- 저항이 느껴질 때까지 챔버에 스토퍼를 설정하십시오. 스토퍼를 끝까지 닫지 마십시오. 스토퍼 위에 캡을 씌우고 분석 파일을 저장한 다음 호흡 측정 소프트웨어에서 기기를 분리합니다. 악기를 끕니다.
5. 데이터 분석
- 호흡 측정 소프트웨어에서 분석 파일을 엽니다. 호흡 화합물 주입 후 얻은 안정적인 산소 플럭스 영역에서 데이터를 추출합니다.
- 관심 영역을 표시하려면 Shift 키를 누른 상태에서 마우스 왼쪽 버튼을 클릭하고 아래에 자세히 설명된 분석 단계에 대한 안정적인 O2 플럭스 속도 영역을 가로질러 상자를 드래그합니다.
- 분석 단계 14,15,16,17,18,19,20
- 말레이트/글루타메이트/피루브산(호기성 해당작용 프로토콜) 또는 말레이트/글루타메이트/팔미토일-카르니틴(지방산 프로토콜)을 첨가한 후 타임라인을 표시합니다. 이 속도는 복합 I 상태 2 호흡(LEAK(n)) 속도를 나타냅니다.
- ADP를 추가한 후의 타임라인을 표시합니다. 이 속도는 복합체 I 상태 3 호흡(CI OXPHOS) 속도를 나타냅니다.
- 숙시네이트를 추가한 후 타임라인을 표시하십시오. 이 비율은 복합 I+II 상태 3 호흡(CI+II OXPHOS) 속도를 나타냅니다.
- Cytochrome C를 추가한 후 타임라인을 표시합니다. 이 속도는 복합 I+II+사이토크롬 상태 3 호흡(CI+II+Cyt C OXPHOS) 속도를 나타냅니다.
- 가장 높은 O2 플럭스 속도로 FCCP 적정 타임라인을 표시하십시오. 이 비율은 최대 호흡수(MAX ETS)를 나타냅니다.
- Mark > Statistics를 선택하여 타임라인에서 표시된 영역에 대한 데이터 값을 검색합니다. 표시된 챔버의 O2 플럭스 속도(pmol O2/(s x mg))를 스프레드시트에 복사합니다.
- 추가 챔버에 대해 마킹 및 데이터 추출을 반복합니다.
- 복합체 I+II 상태 3(숙시네이트 추가 후)을 복합체 I 상태 2(ADP 추가 전)로 나누어 호흡 조절 비율(RCR)을 계산합니다.
결과
그림 3 과 그림 4 는 적절하게 준비된 쥐 적색 및 백색 비복근 섬유에 대한 호기성 해당작용 및 지방산 호흡 측정 프로토콜의 산소 플롯을 보여줍니다. 또한 참조를 위한 대표적인 정량화된 결과도 표시됩니다. 그림 5 는 적절하게 준비된 인간 근육 생검 샘플에서 호기성 해당작용 호흡 측정법의 산소 플롯을 보여줍니다. 대표적인 정량화된 결과도 표시됩니다. 그림 3, 그림 4 및 그림 5의 경우 ADP 첨가 후 사이토크롬 C를 첨가해도 산소 플럭스에 영향을 미치지 않으며, 이는 샘플의 외부 미토콘드리아 막이 손상되지 않았음을 나타냅니다. 그림 6 은 ADP 후 사이토크롬 C를 첨가하면 산소 플럭스가 급증(40% 증가)하는 호기성 해당작용 호흡 측정법의 산소 플롯을 보여주며, 이는 외부 미토콘드리아 막이 손상되어 샘플을 호흡 측정에 사용해서는 안 된다는 것을 나타냅니다 - 이 결과의 잠재적 원인은 조직의 부적절한 취급 또는 동결/해동일 수 있습니다. 조직의 투과성을 연장하고 갓 분리된 조직을 사용하지 않습니다.
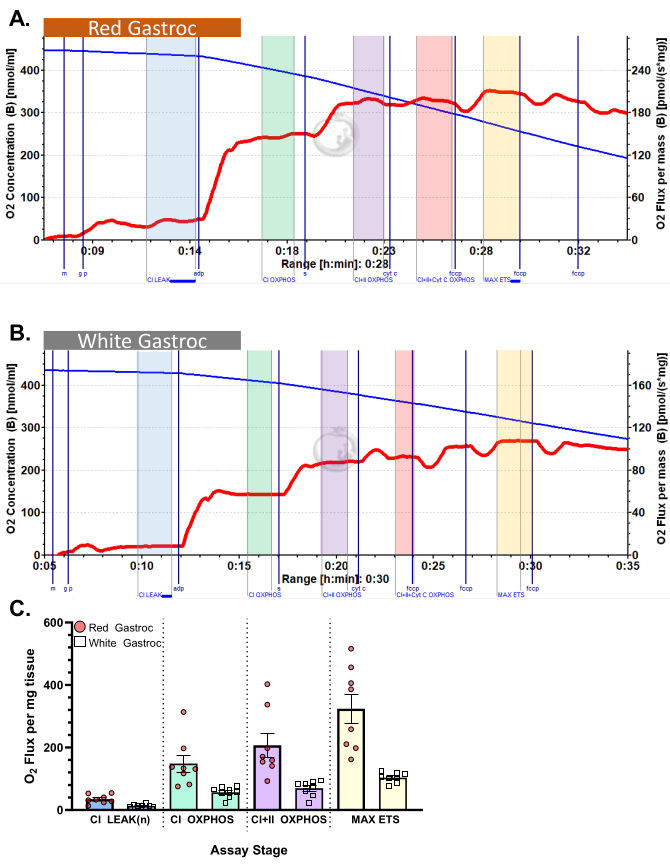
그림 3: 마우스의 산소 소비량. 결과는 피루브산 프로토콜을 사용하여 (A) 적색 및 (B) 백색 비복근의 산소 소비량을 보여줍니다. 말레이트, 글루타메이트 및 피루브산(파란색 음영, CI LEAK)을 첨가한 후 상태 2 플럭스. O2 소비의 상당한 자극은 ADP 투여 후 관찰되며(녹색 음영, CI OXPHOS), 숙시네이트(보라색 음영, CI+II OXPHOS)를 첨가한 후 호흡이 더욱 촉진됩니다. 사이토크롬 C는 유의한 증가를 유도하지 않았으며(<15%), 이는 외부 미토콘드리아 막이 손상되지 않았음을 나타냅니다(주황색 음영, CI+II+Cyt C OXPHOS). 미토콘드리아는 FCCP(노란색 음영, MAX ETS)가 추가된 후 분리됩니다. 파란색 선은 밀폐된 챔버의 산소 농도를 나타냅니다. 빨간색 선은 산소 소비량(O2 플럭스)을 나타냅니다. 첨가 화합물 : 말레이트 (m), 글루타메이트 (g), 피루브 산 (p), 아데노신 이인산 (ADP), 시토 크롬 C (cyt c), 카르 보닐 시안화물 -p- 트리 플루오로 메 톡시 페닐 히드라존 (FCCP). (C) 막대 그래프는 대표 결과(n=8)를 반영합니다. 데이터는 ± SEM으로 표시됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
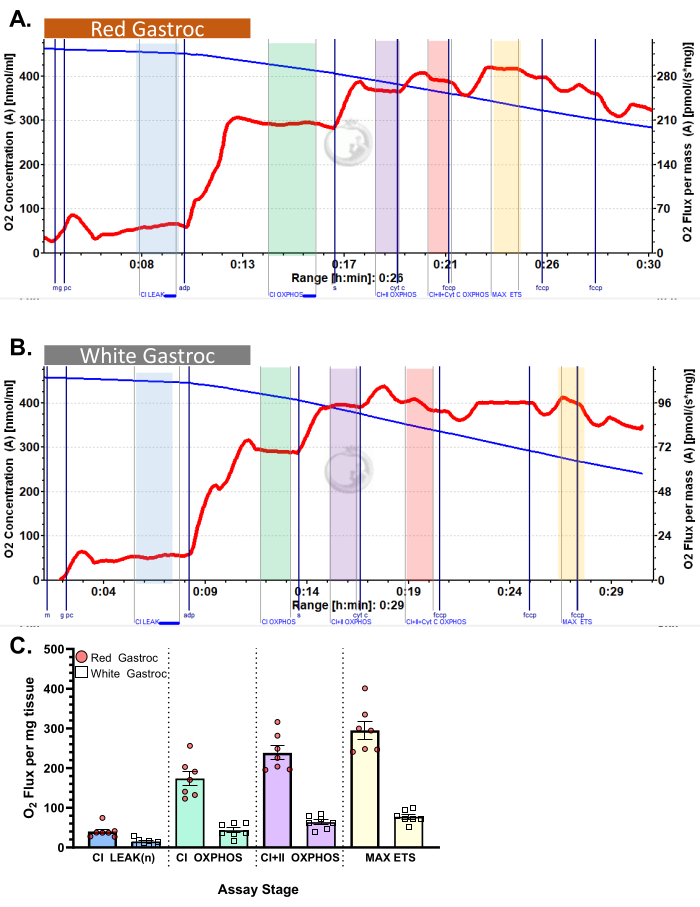
그림 4: 마우스의 산소 소비량. 결과는 팔미토일-카르니틴 프로토콜을 사용하여 (A) 적색 및 (B) 백색 비복근의 산소 소비량을 보여줍니다. 말레이트, 글루타메이트 및 팔미토일 카르니틴(파란색 음영, CI LEAK)을 첨가한 후 상태 2 플럭스. O2 소비의 상당한 자극은 ADP 투여 후 관찰되며(녹색 음영, CI OXPHOS), 숙시네이트(보라색 음영, CI+II OXPHOS)를 첨가한 후 호흡이 더욱 촉진됩니다. 사이토크롬 C는 유의한 증가를 유도하지 않았으며(<15%), 이는 외부 미토콘드리아 막이 손상되지 않았음을 나타냅니다(주황색 음영, CI+II+Cyt C OXPHOS). 미토콘드리아는 FCCP(노란색 음영, MAX ETS)가 추가된 후 분리됩니다. 파란색 선은 밀폐된 챔버의 산소 농도를 나타냅니다. 빨간색 선은 산소 소비량(O2 플럭스)을 나타냅니다. 첨가 화합물 : 말레이트 (m), 글루타메이트 (g), 팔미토일 카르니틴 (pc), 아데노신 디 포스페이트 (ADP), 시토크롬 C (cyt c), 카르보닐 시안화물 -p- 트리 플루오로 메톡시 페닐 히드라존 (FCCP). (C) 막대 그래프는 대표 결과(n=7)를 반영합니다. 데이터는 ± SEM으로 표시됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
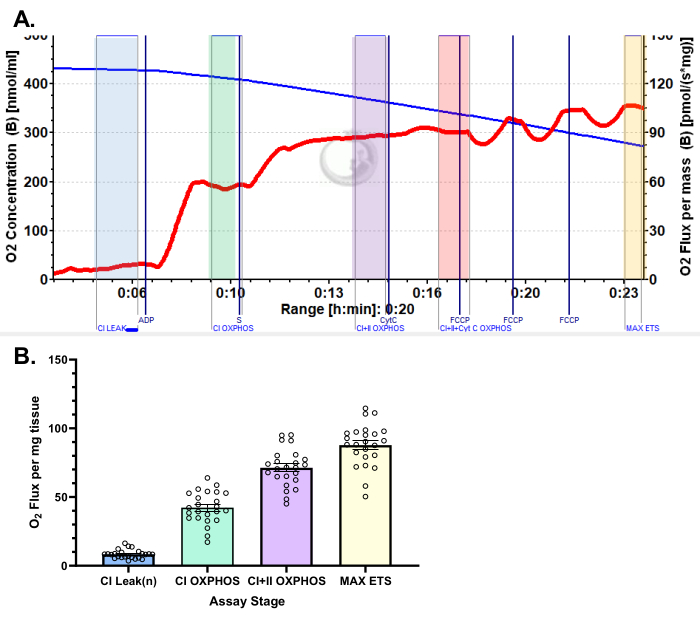
그림 5: 피루브산 프로토콜을 사용한 인간 vastus lateralis의 산소 소비량에 대한 대표적인 결과. (A) 말레이트, 글루타메이트 및 피루브산을 첨가한 후 상태 2 플럭스(파란색 음영, CI LEAK). O2 소비의 상당한 자극은 ADP 투여 후 관찰되며(녹색 음영, CI OXPHOS), 숙시네이트(보라색 음영, CI+II OXPHOS)를 첨가한 후 호흡이 더욱 촉진됩니다. 사이토크롬 C는 유의한 증가를 유도하지 않았으며(<15%), 이는 외부 미토콘드리아 막이 손상되지 않았음을 나타냅니다(주황색 음영, CI+II+Cyt C OXPHOS). 미토콘드리아는 FCCP(노란색 음영, MAX ETS)가 추가된 후 분리됩니다. 파란색 선은 밀폐된 챔버의 산소 농도를 나타냅니다. 빨간색 선은 산소 소비량(O2 플럭스)을 나타냅니다. 첨가 화합물 : 말레이트 (m), 글루타메이트 (g), 피루브 산 (p), 아데노신 이인산 (ADP), 시토 크롬 C (cyt c), 카르 보닐 시안화물 -p- 트리 플루오로 메 톡시 페닐 히드라존 (FCCP). (B) 막대 그래프는 vastus lateralis 생검에서 얻은 대표 결과를 반영합니다(n = 24). 데이터는 ± SEM으로 표시됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
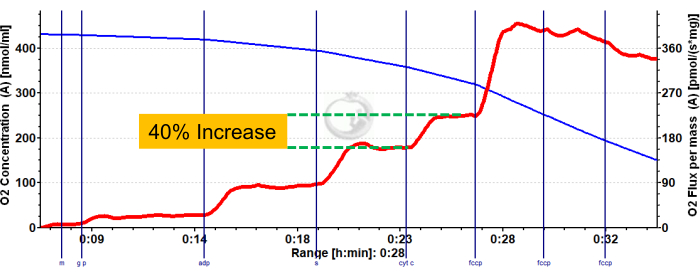
그림 6: mouse red gastrocnemius에서 손상된 외부 미토콘드리아 막 무결성을 보여주는 대표적인 결과. 말레이트, 글루타메이트 및 피루브산(파란색 음영, CI LEAK)을 첨가한 후 상태 2 플럭스. O2 소비의 상당한 자극은 ADP 투여 후 관찰되며(녹색 음영, CI OXPHOS), 숙시네이트(보라색 음영, CI+II OXPHOS)를 첨가한 후 호흡이 더욱 촉진됩니다. 시토크롬 C는O2 소비의 현저한 증가(>15%)를 유도했으며, 이는 외부 미토콘드리아 막의 손상을 나타냅니다. 파란색 선은 밀폐된 챔버의 산소 농도를 나타냅니다. 빨간색 선은 산소 소비량(O2 플럭스)을 나타냅니다. 첨가 화합물 : 말레이트 (m), 글루타메이트 (g), 피루브 산 (p), 아데노신 이인산 (ADP), 시토 크롬 C (cyt c), 카르 보닐 시안화물 -p- 트리 플루오로 메 톡시 페닐 히드라존 (FCCP). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
표 1: 호흡 화합물 및 호흡 용액의 시약 준비. 최종 스톡 농도 및 준비 및 보관 방법을 포함하여 분석에 필요한 시약 준비에 대한 세부 정보가 제공됩니다. 이 표를 다운로드하려면 여기를 클릭하십시오.
토론
이 프로토콜은 인간 및 마우스 샘플 모두에 대한 투과화된 골격근 섬유의 미토콘드리아 기능을 평가하기 위한 포괄적이고 간단한 템플릿 프로토콜을 제공합니다. 고립된 미토콘드리아 대신 투과성 섬유를 사용하면 몇 가지 이점이 있습니다. 한 가지 주요 장점은 투과성 섬유를 사용하려면 소량(2-5mg)의 조직이 필요하므로 이 방법은 인간 근육 생검 샘플과 마우스 근육 모두에 적합하다는 것입니다. 고립된 미토콘드리아에 비해 또 다른 장점은 세포 구조가 손상되지 않은 상태로 유지되어 미토콘드리아와 세포 구성 요소 사이의 구조적 및 기능적 상호 작용을 보존한다는 것입니다 12,21,22,23.
당사의 호기성 해당과정 프로토콜에서 피루브산, 말레이트 및 글루타메이트를 사용하면 복합체 I 24,25,26,27,28에 대한 NADH 공급에 대한 포괄적이고 광범위한 스펙트럼 평가를 제공할 수 있습니다. 이 포괄적인 접근법은 전체론적 및 생리학적으로 관련된 대사 조건에서 복합체 I 활성을 평가하지만, 피루브산-말레이트 또는 글루타메이트-말레이트를 사용하는 것이 더 적절한 실험적 접근법일 수 있습니다. 예를 들어, 글루타메이트-말레이트의 사용은 아미노산 이화작용과 관련된 미토콘드리아 기능의 차이를 알아낼 수 있다29. 연구자는 특정 연구 모델에 사용할 적절한 접근 방식을 신중하게 고려할 것을 권장합니다.
이 프로토콜은 미토콘드리아 활성을 평가하기 위한 기질 사용에 중점을 두지만, 실험 목표를 달성하기 위해 특정 억제제의 사용이 필요할 수 있습니다. 예를 들어, 로테논은 복합체 I 12,21,30을 억제하는 데 사용할 수 있으며, 올리고마이신은 복합체 V(ATP Synthase)12,21을 억제하는 데 사용되며, 항마이신 A는 비미토콘드리아 호흡 평가를 위해 복합체 III12,21을 차단하는 데 사용할 수 있습니다. 위에 제공된 프로토콜은 특정 억제제의 사용을 포함하도록 쉽게 조정할 수 있습니다. 중요한 점은 억제제 사용과 관련하여 한 가지 주의해야 할 점은 이러한 화합물이 끈적거리기 때문에 기기 챔버에서 제거하기 위해 광범위한 청소가 필요하다는 것입니다. 10% BSA 용액을 60분 동안 사용하면 잔류 억제제를 제거하기에 충분하다는 것을 알았습니다.
LEAK 호흡은 ATP 합성과 무관한 산소 소비율을 나타냅니다. 이 속도는 내부 미토콘드리아 막을 가로질러 미토콘드리아 기질로 역류하는 양성자의 흐름을 나타냅니다. ATP 합성(LEAK)과 무관하게 산소 소비량을 평가하기 위해 허용되는 세 가지 방법이 있습니다. 첫 번째, LEAK(n)은 기질이 존재하지만 아데닐레이트(ADP 또는 ATP)를 추가하지 않은 상태에서 산소 소비율을 측정합니다31,32,33. 이 LEAK 상태는 미토콘드리아 막의 본질적인 누출을 나타냅니다. 두 번째 방법인 LEAK(t)는 ATP34의 존재 하에서 측정되고 세 번째 방법인 LEAK(o)는 ATP-합성효소 억제제인 올리고마이신 35,36,37의 존재 하에서 측정됩니다. 이 프로토콜은 이 평가를 위해 LEAK(n)을 사용하지만 실험 목표 및 모델에 따라 LEAK 산소 플럭스를 측정하는 다른 방법이 적절할 수 있습니다.
이 분석을 위해 MiR05에는 크레아틴(3mg/mL)과 블레비스타틴(10μM)이 모두 보충됩니다. 미토콘드리아 ADP 수송은 크레아틴 키나아제(CK)에 의해 촉진되며, 크레아틴은 호흡 용액에 첨가되어 CK 활성을 포화시킵니다38,39. 근육 섬유는 자발적으로 수축할 수 있으며 ADP에 의한 수축에도 민감합니다. 수축의 영향 없이 미토콘드리아 호흡 활성을 평가하기 위해, 섬유 수축 활성을 억제하기 위해 블레비스타틴이 첨가되었다38. 또한, 인체 근육에 대한 연구는 호흡 능력이 생검 방법(미생물 대 Bergstrom 바늘)에 의해 영향을 받을 수 있으며 이러한 차이는 얻은 섬유 길이40,41의 차이 때문일 수 있음을 시사합니다. 섬유질이 짧으면 준비 중 손상에 더 취약할 수 있으며, 블레비스타틴을 사용하면 기능을 보존하는 데 도움이 됩니다. 섬유질 이완이 연구 목표에 부합하지 않는 특정 조건이 있을 수 있으며, 이 경우 블레비스타틴은 MiR05 용액에서 제외될 수 있습니다.
사포닌으로 골격근 섬유를 투과화하면 원형질막에 기공이 생성되어 기질과 억제제가 세포로 자유롭게 들어갈 수 있습니다. 사포닌은 세포 원형질막에 풍부하고 풍부한 콜레스테롤에 대한 친화력이 높은 반면 미토콘드리아 막은 콜레스테롤이 부족합니다42,43. 이 프로토콜에서 섬유 제제에 사용되는 사포닌 처리는 미토콘드리아 막 무결성을 보존할 것으로 예상됩니다. 미토콘드리아의 손상은 조직이 섬유로 기계적으로 분리될 때 발생하는 전단력으로 인해 발생할 수도 있습니다. 조직을 섬유 다발로 분리하는 것은 최소한의 취급으로 신속하게 수행되는 것이 좋습니다. 잠재적인 미토콘드리아 손상을 평가하기 위해 당사는 호흡 프로토콜에 사이토크롬 C의 적정을 포함시켰습니다. 시토크롬 C는 온전한 외부 미토콘드리아 막(12)을 통과할 수 없으므로, 시토크롬 C 첨가 후O2 플럭스의 증가는 외부 미토콘드리아 막의 손상이 시료 전처리 공정 중에 발생했음을 나타냅니다. 최근 연구 중 하나에서 우리는 사이토크롬 C 첨가 후O2 플럭스가 8%15 증가했음을 발견했으며, 이 프로토콜에서 제안된 사포닌 사용이 미토콘드리아 손상을 유발하지 않는다는 것을 입증했습니다. 우리는 사이토크롬 C가 첨가된 후O2 플럭스가 15% 이상 증가하는 것을 보여주는 모든 샘플은 분석44에서 제외해야 한다고 제안한다. 이 단계는 Complex IV 활성에 대한 평가가 아닌 품질 관리 조치로 엄격하게 포함됩니다.
고분해능 폐활량 측정법은 산소 소비량에 대한 매우 민감하고 신뢰할 수 있는 측정을 제공하는 데 탁월하지만, 기기당 두 개의 샘플만 동시에 측정할 수 있다는 것이 기기의 두드러진 한계입니다. 따라서 여러 표본을 가진 코호트와 관련된 연구를 설계할 때 신중한 고려가 필요합니다. 하루 종일 다양한 샘플 세트에 대한 측정을 수행하고 싶은 유혹이 있을 수 있지만, 연구자는 일주기 리듬이 신진대사에 미치는 영향을 고려할 것을 강력히 권고합니다. 인간과 설치류 골격근에 대한 연구는 생체 시계가 미토콘드리아 기능에 미치는 영향을 밝혀냈습니다45,46. 따라서 이러한 일주기 변동을 설명하기 위해 하루 중 같은 시간에 여러 날에 걸쳐 측정을 수행하는 것이 좋습니다.
마지막으로, 재현 가능하고 강력한 호흡 측정 측정을 보장하기 위해 호흡계는 정기적인 청소, 유지 관리 및 보정을 받아야 합니다. 프로토콜에 자세히 설명된 대로 공기 보정은 매일 수행해야 합니다. 또한 사용자는 폴라로그래픽 산소 센서의 완전한 월간 보정(공기 및 영점 모두)을 수행하는 것이 좋습니다. 사용자는 제조업체의 문서 및 web이 교정 방법에 대한 추가 정보와 일상적인 기기 유지 관리에 대한 지침을 확인하십시오.
고분해능 호흡 측정법은 미토콘드리아 호흡을 측정하기 위한 황금 표준으로 남아 있습니다. 이 프로토콜에 자세히 설명된 방법은 설치류와 인간 골격근 모두에서 미토콘드리아 용량의 강력한 평가를 용이하게 합니다. 이 프로토콜은 만성 신장 질환19의 맥락에서 유전자 마우스 모델15,16과 관련된 미토콘드리아 기능을 평가하는 연구에 적용되었으며, 이는 건강 보조 식품 투여14,20 및 운동17,18 후에 이루어졌다.
공개 사항
저자는 밝힐 것이 없습니다.
감사의 글
이 간행물에 보고된 연구는 영양비만연구센터(Nutrition Obesity Research Center), NIH 보조금 P30 DK056341 및 NIH 보조금 K01 HL145326의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 10 & 마이크로; L Hamilton 주사기 (유리 주사기) | ThermoFisher | 14-813-125 | 호흡 분석 적정 |
| 25 µ L Hamilton 주사기 (유리 주사기) | ThermoFisher | 14-813-133 | 호흡 분석 적정 |
| ADP | Merck | 117105 | 호흡 측정 분석 |
| 검정 유리 해부 접시 | Scintica | DD-90-S-BLK | 샘플 준비 |
| 용 Blebbistatin | Sigma | B0560 | Working MiR05 Solution |
| BSA, 지방산 무료 | Sigma | A6003 | MiR05 솔루션 |
| 탄산칼슘 | 시그마 | C4830 | BIOPS 솔루션 |
| 크레아틴 | 시그마 | 27900 | 작동 MiR05 |
| 솔루션 사이토크롬 C | 시그마 | C7752 | 폐활량 측정 분석 |
| DatLab | Oroboros 기기 | N/A | 폐활량 측정 소프트웨어 |
| 디티오트레이톨(DTT) | Sigma | D0632 | BIOPS 솔루션 |
| D-Sucrose | Sigma | 84097 | MiR05 솔루션 |
| EGTA | Sigma | E4378 | BIOPS & MiR05 솔루션 |
| FCCP | 시그마 | C2920 | 호흡량 측정 분석 |
| 글루타메이트 | 시그마 | G1626 | 호흡량 측정 분석 |
| HEPES | 시그마 | H7523 | MiR05 솔루션 |
| 이미다졸 | Sigma | 56750 | BIOPS 솔루션 |
| KH2PO4 | Sigma | P5379 | MiR05 솔루션 |
| 락토비온산 | Sigma | 153516 | MiR05 솔루션 |
| 말라테 | Sigma | M1000 | 호흡계 분석 |
| MES 수화물 | Sigma | M8250 | BIOPS 솔루션 |
| MgCl2 - 6 H2O | 시그마 | M2670 | BIOPS 및 MiR05 솔루션 |
| Oroboros Oxygraph-2K (O2K) 시스템 | Oroboros Instruments | 10203-03 | 고해상도 호흡계 |
| Palmitoyl-Carnitine | Sigma | P4509 | 폐활량 측정 분석 |
| 수산화칼 | Sigma | P1767 | BIOPS 솔루션 |
| 정밀 핀셋 | Fisher | 17-467-168 | 샘플 준비용 |
| 사포닌 | Sigma | S2149 | 섬유 투과화용 |
| 나트륨 ATP | Sigma | A2383 | BIOPS 솔루션 |
| Sodium Phosphocreatine | Sigma | P7936 | BIOPS 솔루션 |
| Sodium Pyruvate | Sigma | P2256 | 호흡계 분석 |
| 숙시네이트 | Sigma | S2378 | 호흡계 분석 |
| Taurine | Sigma | T0625 | BIOPS 및 MiR05 솔루션 |
참고문헌
- Rizzuto, R., De Stefani, D., Raffaello, A., Mammucari, C. Mitochondria as sensors and regulators of calcium signalling. Nat Rev Mol Cell Biol. 13 (9), 566-578 (2012).
- Ruegsegger, G. N., Creo, A. L., Cortes, T. M., Dasari, S., Nair, K. S. Altered mitochondrial function in insulin-deficient and insulin-resistant states. J Clin Invest. 128 (9), 3671-3681 (2018).
- Simoneau, J. A., Kelley, D. E. Altered glycolytic and oxidative capacities of skeletal muscle contribute to insulin resistance in NIDDM. J Appl Physiol. 83 (1), 166-171 (1997).
- Ryan, T. E., et al. Extensive skeletal muscle cell mitochondriopathy distinguishes critical limb ischemia patients from claudicants. JCI Insight. 3 (21), 123235(2018).
- Sullivan, M. J., Green, H. J., Cobb, F. R. Skeletal muscle biochemistry and histology in ambulatory patients with long-term heart failure. Circulation. 81 (2), 518-527 (1990).
- Giebelstein, J., et al. The proteomic signature of insulin-resistant human skeletal muscle reveals increased glycolytic and decreased mitochondrial enzymes. Diabetologia. 55 (4), 1114-1127 (2012).
- Tezze, C., et al. Age-associated loss of OPA1 in muscle impacts muscle mass, metabolic homeostasis, systemic inflammation, and epithelial senescence. Cell Metab. 25 (6), 1374-1389 (2017).
- Hughes, M. C., et al. Early myopathy in Duchenne muscular dystrophy is associated with elevated mitochondrial H(2) O(2) emission during impaired oxidative phosphorylation. J Cachexia Sarcopenia Muscle. 10 (2), 643-661 (2019).
- Yin, Y., Shen, H. Common methods in mitochondrial research (Review). Int J Mol Med. 50 (4), 5182(2022).
- Vue, Z., et al. 3D reconstruction of murine mitochondria reveals changes in structure during aging linked to the MICOS complex. Aging Cell. 22 (12), e14009(2023).
- Doerrier, C., et al. High-resolution fluoRespirometry and OXPHOS protocols for human cells, permeabilized fibers from small biopsies of muscle, and isolated mitochondria. Methods Mol Biol. 1782, 31-70 (2018).
- Pesta, D., Gnaiger, E. High-resolution respirometry: OXPHOS protocols for human cells and permeabilized fibers from small biopsies of human muscle. Methods Mol Biol. 810, 25-58 (2012).
- Picard, M., Hepple, R. T., Burelle, Y. Mitochondrial functional specialization in glycolytic and oxidative muscle fibers: tailoring the organelle for optimal function. Am J Physiol Cell Physiol. 302 (4), C629-C641 (2012).
- Yoshino, M., et al. Nicotinamide mononucleotide increases muscle insulin sensitivity in prediabetic women. Science. 372 (6547), 1224-1229 (2021).
- Mousa, M. G., et al. Site-1 protease inhibits mitochondrial respiration by controlling the TGF-beta target gene Mss51. Cell Rep. 42 (4), 112336(2023).
- Moon, S. H., et al. Genetic deletion of skeletal muscle iPLA(2)gamma results in mitochondrial dysfunction, muscle atrophy and alterations in whole-body energy metabolism. iScience. 26 (6), 106895(2023).
- Bittel, A. J., et al. A single bout of premeal resistance exercise improves postprandial glucose metabolism in obese men with prediabetes. Med Sci Sports Exerc. 53 (4), 694-703 (2021).
- Bittel, A. J., et al. A single bout of resistance exercise improves postprandial lipid metabolism in overweight/obese men with prediabetes. Diabetologia. 63 (3), 611-623 (2020).
- Bittel, D. C., Bittel, A. J., Varadhachary, A. S., Pietka, T., Sinacore, D. R. Deficits in the skeletal muscle transcriptome and mitochondrial coupling in progressive diabetes-induced CKD relate to functional decline. Diabetes. 70 (5), 1130-1144 (2021).
- Mills, K. F., et al. Long-term administration of nicotinamide mononucleotide mitigates age-associated physiological decline in mice. Cell Metab. 24 (6), 795-806 (2016).
- Djafarzadeh, S., Jakob, S. M. High-resolution respirometry to assess mitochondrial function in permeabilized and intact cells. J Vis Exp. (120), e54985(2017).
- Lemieux, H., Semsroth, S., Antretter, H., Hofer, D., Gnaiger, E. Mitochondrial respiratory control and early defects of oxidative phosphorylation in the failing human heart. Int J Biochem Cell Biol. 43 (12), 1729-1738 (2011).
- Gnaiger, E. Capacity of oxidative phosphorylation in human skeletal muscle: new perspectives of mitochondrial physiology. Int J Biochem Cell Biol. 41 (10), 1837-1845 (2009).
- Appelman, B., et al. Muscle abnormalities worsen after post-exertional malaise in long COVID. Nat Commun. 15 (1), 17(2024).
- O'Rourke, A. R., et al. Impaired muscle relaxation and mitochondrial fission associated with genetic ablation of cytoplasmic actin isoforms. FEBS J. 285 (3), 481-500 (2018).
- Inigo, M. R., et al. Estrogen receptor-alpha in female skeletal muscle is not required for regulation of muscle insulin sensitivity and mitochondrial regulation. Mol Metab. 34, 1-15 (2020).
- Musci, R. V., et al. Phytochemical compound PB125 attenuates skeletal muscle mitochondrial dysfunction and impaired proteostasis in a model of musculoskeletal decline. J Physiol. 601 (11), 2189-2216 (2023).
- Englund, D. A., et al. p21 induces a senescence program and skeletal muscle dysfunction. Mol Metab. 67, 101652(2023).
- Zhang, K., et al. Mitochondrial supercomplex assembly regulates metabolic features and glutamine dependency in mammalian cells. Theranostics. 13 (10), 3165-3187 (2023).
- Davis, M. S., Barrett, M. R. High-resolution fluoro-respirometry of equine skeletal muscle. J Vis Exp. (192), e65075(2023).
- Schytz, C. T., et al. Skeletal muscle mitochondria demonstrate similar respiration per cristae surface area independent of training status and sex in healthy humans. J Physiol. 602 (1), 129-151 (2024).
- Hingst, J. R., et al. Inducible deletion of skeletal muscle AMPKalpha reveals that AMPK is required for nucleotide balance but dispensable for muscle glucose uptake and fat oxidation during exercise. Mol Metab. 40, 101028(2020).
- Krumschnabel, G., Eigentler, A., Fasching, M., Gnaiger, E. Use of safranin for the assessment of mitochondrial membrane potential by high-resolution respirometry and fluorometry. Methods Enzymol. 542, 163-181 (2014).
- Gnaiger, E., Mendez, G., Hand, S. C. High phosphorylation efficiency and depression of uncoupled respiration in mitochondria under hypoxia. Proc Natl Acad Sci U S A. 97 (20), 11080-11085 (2000).
- Basse, A. L., et al. Nampt controls skeletal muscle development by maintaining Ca(2+) homeostasis and mitochondrial integrity. Mol Metab. 53, 101271(2021).
- Flensted-Jensen, M., et al. Combined changes in temperature and pH mimicking exercise result in decreased efficiency in muscle mitochondria. J Appl Physiol. 136 (1985), 79-88 (2024).
- Porter, C., et al. Mitochondrial respiratory capacity and coupling control decline with age in human skeletal muscle. Am J Physiol Endocrinol Metab. 309 (3), E224-E232 (2015).
- Perry, C. G., et al. Inhibiting myosin-ATPase reveals a dynamic range of mitochondrial respiratory control in skeletal muscle. Biochem J. 437 (2), 215-222 (2011).
- Veksler, V. I., et al. Muscle creatine kinase-deficient mice. II. Cardiac and skeletal muscles exhibit tissue-specific adaptation of the mitochondrial function. J Biol Chem. 270 (34), 19921-19929 (1995).
- Isner-Horobeti, M. E., et al. Microbiopsies versus Bergstrom needle for skeletal muscle sampling: impact on maximal mitochondrial respiration rate. Eur J Appl Physiol. 114 (5), 885-889 (2014).
- Hughes, M. C., et al. Mitochondrial bioenergetics and fiber type assessments in microbiopsy vs. Bergstrom percutaneous sampling of human skeletal muscle. Front Physiol. 18 (6), 360(2015).
- Kuznetsov, A. V., et al. Analysis of mitochondrial function in situ in permeabilized muscle fibers, tissues and cells. Nat Protoc. 3 (6), 965-976 (2008).
- Elustondo, P., Martin, L. A., Karten, B. Mitochondrial cholesterol import. Biochim Biophys Acta Mol Cell Biol Lipids. 1862 (1), 90-101 (2017).
- Ramos, P. M., Li, C., Elzo, M. A., Wohlgemuth, S. E., Scheffler, T. L. Mitochondrial oxygen consumption in early postmortem permeabilized skeletal muscle fibers is influenced by cattle breed. J Anim Sci. 98 (3), 044(2020).
- van Moorsel, D., et al. Demonstration of a day-night rhythm in human skeletal muscle oxidative capacity. Mol Metab. 5 (8), 635-645 (2016).
- de Goede, P., et al. Time-restricted feeding during the inactive phase abolishes the daily rhythm in mitochondrial respiration in rat skeletal muscle. FASEB J. 36 (2), e22133(2022).
재인쇄 및 허가
