여기에서 우리는 수정 후 최소 1일에서 7일 사이의 모든 단계에서 제브라피시 배아와 유충에서 높은 공간적 및 시간적 해상도로 세포를 이식하기 위한 프로토콜을 제시합니다.
이 논문에서
요약
초록
발달과 재생은 유전적으로 인코딩된 시공간적으로 역동적인 세포 상호 작용 과정에 의해 발생합니다. 세포 운명을 추적하고 기증 세포와 숙주 세포의 유전적, 공간적 또는 시간적 특성의 불일치를 유도하기 위해 동물 간 세포 이식을 사용하는 것은 이러한 상호 작용의 특성을 검사하는 강력한 수단입니다. 병아리 및 양서류와 같은 유기체는 각각 발달과 재생에 대한 우리의 이해에 결정적인 기여를 했는데, 이는 대부분 이식에 대한 그들의 친화성 때문입니다. 그러나 이러한 모델의 힘은 낮은 유전적 다루기 가능성으로 인해 제한되어 왔습니다. 마찬가지로, 주요 유전자 모델 유기체는 이식에 대한 적응성이 낮습니다.
제브라피쉬는 발달 및 재생을 위한 주요 유전자 모델이며, 세포 이식은 제브라피시에서 일반적이지만 일반적으로 초기 배반구 및 위틀라 발달 단계에서 미분화 세포의 이동으로 제한됩니다. 이 기사에서는 수정 후 최소 1일에서 7일 사이에 제브라피시 이식 기간을 모든 배아 또는 유충 단계로 확장하는 간단하고 강력한 방법을 제시합니다. 이 접근법의 정밀도는 기증자와 숙주 동물 모두에서 거의 완벽한 공간 및 시간 해상도로 하나의 세포를 이식할 수 있도록 합니다. 여기에서는 신경 발달 및 재생 연구를 위한 배아 및 유충 뉴런의 이식을 각각 강조하지만, 이 접근 방식은 광범위한 전구 세포 및 분화된 세포 유형 및 연구 질문에 적용할 수 있습니다.
서론
세포 이식은 발달 생물학의 기본 기술로서 길고 유명한 역사를 가지고 있습니다. 20세기로 접어들면서 이식을 포함한 발달 과정을 교란하기 위해 물리적 조작을 사용하는 접근 방식은 발생학을 관찰 과학에서 실험 과학으로 변형시켰습니다 1,2. 한 가지 획기적인 실험에서, 한스 슈페만(Hans Spemann)과 힐데 망골트(Hilde Mangold)는 도롱뇽 배아의 등쪽 배반포자(dorsal blastopore lip)를 숙주 배아의 반대쪽에 자궁 이식하여 주변 조직이 2차 신체 축(secondary body axis)을 형성하도록 유도했다3. 이 실험은 세포가 다른 세포가 특정 운명을 채택하도록 유도할 수 있음을 보여주었고, 그 후 이식은 능력 및 세포 운명 결정, 세포 계통, 귀납 능력, 가소성 및 줄기 세포 효능에 관한 발달 생물학의 중요한 질문을 심문하는 강력한 방법으로 개발되었습니다 1,4,5.
최근의 과학적 발전으로 이식 접근법의 힘이 확장되었습니다. 1969년, 니콜 르 두아랭(Nicole Le Douarin)은 뉴클레올라 염색이 메추라기-병아리 키메라의 기원 종을 구별할 수 있다는 발견으로 이식된 세포와 그 자손을 추적할 수 있게 되었습니다6. 이 개념은 나중에 형질전환 형광 마커와 고급 이미징 기술5의 출현으로 더욱 강화되었으며, 세포의 운명을 추적하고6,7 줄기세포와 그효능을 확인8,9하며 뇌 발달 중 세포 움직임을 추적하는 데 활용되었다10. 또한, 분자 유전학의 부상은 서로 다른 유전자형을 가진 숙주와 기증자 간의 이식을 촉진하여 발달 요인의 자율적 및 비자율적 기능의 정확한 해부를 지원했다11.
이식은 또한 재생 조직의 성장과 패턴을 조절하는 세포 정체성과 상호 작용을 해명함으로써 특히 플라나리아와 아홀로틀과 같은 강력한 재생 능력을 가진 유기체에서 재생 연구에 중요한 기여를 했습니다. 이식 연구는 효능12, 공간 패터닝(spatial patterning)13,14, 특정 조직의 기여도(contributions of specific tissue)15,16, 세포 기억(cellular memory)12,17의 재생에 대한 역할의 원리를 밝혀냈다.
제브라피쉬는 보존된 유전 프로그램, 높은 유전적 관리성, 외부 수정, 큰 클러치 크기 및 광학적 선명도로 인해 신경계를 포함한 발달 및 재생 연구를 위한 선도적인 척추동물 모델입니다 18,19,20. 제브라피쉬는 또한 초기 발달 단계에서 이식에 매우 적합합니다. 가장 두드러진 접근법은 라벨링된 기증자 배아의 세포를 배반 또는 위스트룰라 단계의 숙주 배아로 이식하여 모자이크 동물을 생성하는 것입니다. 배반(blastula) 단계에서 이식된 세포는 에피볼리(epiboly)가 시작됨에 따라 흩어지고 분산되어 배아21 전체에 걸쳐 표지된 세포와 조직의 모자이크를 생성합니다. 위부 이식은 실드가 형성되고 A-P 및 D-V 축을 결정할 수 있기 때문에 대략적인 운명 지도에 따라 이식된 세포를 일부 표적화할 수 있습니다21. 그 결과로 얻은 모자이크는 유전자가 세포를 자율적으로 작용하는지 여부를 결정하고, 세포 헌신을 테스트하고, 발달 전반에 걸쳐 조직 이동 및 세포 이동을 매핑하는 데 유용했습니다 5,11. 모자이크 제브라피쉬는 전기천공법(electroporation)22, 재조합(recombination) 23, F0 형질전환(transgenesis)24 및 돌연변이유발(mutagenesis)25 등 여러 가지 방법으로 생성될 수 있지만, 이식은 공간, 시간, 세포의 수와 유형에서 가장 큰 조작성과 정밀도를 제공한다. 제브라피시 이식의 현재 상태는 수정 후 첫 10-30시간 동안의 척수 운동 뉴런26,27, 망막 신경절 세포28,29 및 신경능선 세포의 이식30, 그리고 성인 제브라피시에서 조혈 및 종양 세포의 이식을 포함한 몇 가지 예외를 제외하고는 초기 단계의 전구 세포에 크게 국한되어 있습니다 5,31. 이식 방법을 광범위한 연령, 분화 단계 및 세포 유형으로 확장하면 발달 및 재생 과정에 대한 통찰력을 제공하는 이 접근 방식의 힘이 크게 향상될 것입니다.
여기에서 우리는 수정 후 최소 7일까지 제브라피시 배아 및 유충에서 효과적인 고해상도 세포 이식을 위한 유연하고 강력한 기술을 보여줍니다. 표적 조직에서 형광 단백질을 발현하는 형질전환 숙주 및 기증자 물고기를 사용하여 단일 세포를 추출하고 거의 완벽한 공간 및 시간 해상도로 이식할 수 있습니다. 제브라피시 배아와 유충의 광학적 투명도 덕분에 숙주 동물이 발달하거나 재생될 때 이식된 세포를 실시간으로 이미지화할 수 있습니다. 이 접근법은 이전에 시공간 신호 역학이 배아(32)에서 뉴런 정체성 및 축삭 유도에 어떻게 영향을 미치는지 조사하고, 유충어류(33)에서 재생 중 내적 및 외적 요인이 축삭 유도를 촉진하는 논리를 조사하는 데 사용되었습니다. 여기서는 분화된 뉴런의 이식에 초점을 맞추고 있지만, 우리의 방법은 발달 및 재생의 문제를 해결하기 위해 여러 단계와 조직에 걸쳐 분화되지 않은 세포 유형과 분화된 세포 유형 모두에 널리 적용할 수 있습니다.
프로토콜
살아있는 제브라피시와 관련된 이 절차의 모든 측면은 미네소타 대학교 IACUC(Institutional Animal Care and Use Committee)의 승인을 받았으며 IACUC 지침에 따라 수행됩니다.
1. 이식 장치의 일회성 초기 설정(그림 1)
- 제조업체의 지침에 따라 이식 현미경을 조립합니다.
참고: 이 프로토콜은 40x Water Dipping Objective가 있는 정립 형광 현미경을 사용합니다. - 거칠고 미세한 미세 조작기를 조립하고 제조업체의 지침에 따라 현미경 오른쪽에 장착합니다.
참고: 스테이지가 바늘에 대해 Z 차원에서 움직이지 않는 것이 중요하기 때문에 현미경 베이스에 장착된 마이크로 매니퓰레이터가 있는 고정 스테이지 현미경을 사용합니다. 고정 스테이지 현미경을 사용할 수 없는 경우 마이크로 매니퓰레이터를 스테이지에 장착할 수 있습니다. - 미세전극 홀더를 전극 손잡이에 부착하고 미세조작기에 장착합니다.
- 3방향 스톱콕의 한쪽을 마이크로 주사기 펌프에 연결합니다. 크로마토그래피 어댑터를 사용하여 마개의 다른 쪽을 폴리에틸렌 튜브에 연결합니다.
- 크로마토그래피 어댑터를 사용하여 폴리에틸렌 튜브의 반대쪽을 미세전극 홀더에 연결합니다.
- 10mL 리저버 주사기에 라이트 미네랄 오일을 채우고 마개 상단에 장착합니다.
- 마이크로 주사기 펌프와 튜브(유압 라인)에 저장소의 미네랄 오일을 채우고 모든 기포를 제거해야 합니다.
알림: 장치가 설정되면 유압 라인의 가끔씩만 유지 관리하면 됩니다. 저장소 주사기는 제거하고 필요에 따라 미네랄 오일로 다시 채울 수 있습니다.
2. 배아 푸셔를 준비합니다.
- 2cm 길이의 낚싯줄 조각을 자르고 P1000 피펫 팁의 좁은 끝에 부분적으로 삽입하여 ~1.5cm가 노출되도록 합니다. 초강력 접착제 한 방울로 낚싯줄을 고정하고 말리십시오.
3. 솔루션을 준비합니다.
- 배아 매체(LMA)에 용해된 1% 저융점 아가로스를 제조하려면, 끓는 배아 매체34에 아가로스를 용해시킨다. 둥근 바닥 시험관에 1-2mL 부분 표본을 만들고 4°C에서 보관합니다.
- 페니실린-스트렙토마이신 및 트리카인(RPT)으로 링거 용액을 제조합니다. 다음 성분을 116mM NaCl, 2.9mM KCl, 1.8mM CaCl2, 5mM HEPES pH 7.2, 50단위/mL 페니실린 및 50ug/mL 스트렙토마이신의 최종 농도로 결합하고 용해될 때까지 교반하고 진공 필터를 통과시킵니다. 실온에서 보관하십시오. 사용 직전에 트리케인을 0.02% 농도로 첨가하십시오.
4. 이식을 위해 기증자 및 숙주 동물을 준비합니다.
- 적절한 유전자형을 가진 숙주 및 기증 동물을 형광 라벨링된 관심 세포와 함께 원하는 나이로 키웁니다.
참고: 이러한 이식을 위해 Tg(isl1:EGFPCAAX)fh474 기증 동물32 및 Tg(isl1:mRFP)fh1 숙주 동물35 를 사용하고 3dpf에서 기증자에서 숙주 미주 운동 핵으로 이식된 뉴런을 사용했습니다. - 각 유리 슬라이드에 투명한 매니큐어의 직사각형 윤곽선을 적용하여 이식 슬라이드를 준비합니다(그림 2A). 매니큐어는 4.8단계에서 추가된 RPT에 유지할 소수성 장벽을 생성합니다. 사용하기 전에 완전히 말리십시오.
참고: 슬라이드는 미리 준비할 수 있으며 무기한 저장할 수 있습니다. - 40mL의 물이 들어 있는 50mL 비커에 LMA 튜브를 넣고 50% 전력으로 또는 녹을 때까지 1분 동안 전자레인지에 돌려 LMA 부분 표본 1개를 녹입니다. 건식 수조 히터에서 LMA를 40°C로 유지합니다.
- 숙주 및 기증 동물을 겸자(해당되는 경우)로 제거하고, 실온의 RPT로 채워진 작은 페트리 접시에 넣어 마취시킵니다. 계속하기 전에 동물이 완전히 마취될 때까지 5분 동안 기다립니다.
- 개별 기증자 및 숙주 동물 장착: 파스퇴르 피펫 및 피펫 펌프를 사용하여 동물을 RPT에서 LMA로 이송한 다음 동물을 LMA 소량 방울로 매니큐어 윤곽선 내의 슬라이드로 이송합니다. LMA가 희석되지 않도록 LMA로 전송되는 RPT의 양을 최소화합니다. LMA가 응고되기 전에 배아 푸셔를 사용하여 동물의 방향을 지정하고 각 동물이 의도한 바늘 삽입 부위가 오른쪽에 장착되고 모든 동물이 수직으로 정렬되도록 합니다(그림 2B). 계속하기 전에 아가로스가 완전히 굳으면(~5분) 합니다.
참고: 각 기증 동물에서 많은 세포를 채취할 수 있기 때문에 각 슬라이드에 한 명의 기증자와 함께 2-4개의 숙주 동물을 장착하는 것이 더 효율적입니다. - 메스를 사용하여 장착된 동물의 바로 오른쪽에 있는 모든 아가로스 방울을 통해 직선 수직 슬라이스를 자릅니다(그림 2C). 실험실 물티슈로 슬라이드에서 느슨한 아가로스를 제거합니다.
- 메스를 사용하여 아가로스에서 쐐기를 잘라내어 바늘 삽입 부위를 노출시킵니다(그림 2C). 실험실 물티슈로 슬라이드에서 느슨한 아가로스를 제거합니다.
- 아가로스 방울이 완전히 잠길 때까지 슬라이드에 RPT를 바릅니다(그림 2D).
- 준비된 슬라이드를 이식 현미경에 장착합니다. 40x 목표 아래에 기증 동물에 초점을 맞춥니다. 이렇게 하려면 미디어 표면이 깨질 때까지 대물렌즈를 내린 다음 대물렌즈를 원하는 초점면으로 올립니다.
알림: 대물렌즈에 의한 액체 접촉은 이식이 완료될 때까지 유지되어야 합니다(그림 3C). - 관심 있는 형광 라벨링된 donor cell(들)에 초점을 맞춥니다. 그런 다음 이식 바늘을 찾을 수 있도록 스테이지를 왼쪽으로 이동합니다.
참고: 이 시점에서 섹션 5에서 기증 동물을 쉽게 다시 찾을 수 있도록 Y축 또는 Z축의 현미경을 조정하지 마십시오.
5. 이식 바늘을 준비합니다.
- 마이크로피펫을 마이크로피펫 풀러에 삽입하고 미세주사 바늘을 당깁니다.
참고: 바늘의 모양은 1세포 단계 제브라피시 배아 주입 또는 패치 클램핑에 사용되는 것과 유사해야 합니다. PRESSURE = 500, HEAT = ramp + 80, PULL = 90, VELOCITY = 70, TIME = 250 ( 재료 표 참조) 프로그램과 함께 마이크로피펫 풀러를 사용하지만 각 풀러에 대한 올바른 설정은 경험적으로 결정해야 할 수 있습니다. - 바늘 끝을 s의 부분에 맞춥니다.tage 해부 스코프에서 마이크로미터. 마이크로미터를 측정 가이드로 사용하여 날카로운 집게를 사용하여 바늘을 관심 세포의 직경보다 약간 큰 구멍 크기로 부릅니다(그림 3A). 들쭉날쭉한 모서리는 바늘 막힘의 원인이 될 수 있으므로 틈이 가능한 한 깨끗한지 확인하십시오. 알림: 미주 운동 뉴런(직경 5-7μm)의 경우 바늘은 내경 10μm로 부러뜨려야 하며, 이는 외경 20μm에 해당합니다. 필요한 경우, 바늘 팁의 크기, 형상 및/또는 각도는 마이크로포지 또는 마이크로그라인더(36)로 미련될 수 있다.
- 가벼운 미네랄 오일로 채워지고 피펫 필러가 장착된 50mL 주사기를 사용하여 바늘에 미네랄 오일을 완전히 채웁니다(그림 3B). 기포가 없는지 확인하십시오. 장착할 준비가 될 때까지 채워진 바늘을 따로 보관하십시오.
알림: 기포가 없는지 확인하려면 피펫 필러를 바늘에 완전히 삽입하고 바늘에서 필러를 천천히 당겨 빼내면서 오일을 배출합니다. - 이식 장치에서 긴 팔이 마이크로 주사기 펌프를 향하도록 3방향 마개를 돌리고 저장소 주사기 플런저를 눌러 유압 라인에서 모든 기포를 씻어냅니다. 플런저에 가벼운 압력을 유지하고(공기가 라인으로 역류하는 것을 방지하기 위해) 긴 암이 저장소 주사기를 향하도록 3방향 마개를 돌립니다.
- 기포가 생기지 않도록 주의하면서 바늘을 홀더에 삽입하십시오. 바늘이 수평에서 10-15° 각도로 바로 왼쪽을 향하도록 바늘의 각도를 조정합니다(그림 3C).
- 굵고 미세한 미세 조작기를 사용하여 현미경 대물렌즈 아래에서 바늘 끝을 조작하고 초점을 맞춥니다(그림 3D).
알림: X 및 Y 평면에서 바늘의 대략적인 위치는 바늘이 대물렌즈 아래에 위치할 때 투과된 광선을 반사하기 때문에 바늘을 조작하는 동안 대물렌즈 아래 영역을 직접 관찰하여 수행할 수 있습니다. 그런 다음 현미경 접안렌즈를 사용하여 미세 위치를 지정할 수 있습니다. 현미경을 조정하지 마십시오.tage 이 단계 동안 위치 또는 초점. 마이크로 매니퓰레이터를 사용하여 바늘 끝을 기존 초점 위치로 가져옵니다. - 액체가 바늘 끝으로 흘러 들어가거나 밖으로 흘러 들어가는 경우 미네랄 오일과 링거 용액 사이의 안정적인 반월상 연골이 관찰 될 때까지 주사기 펌프를 사용하여 압력을 조정하십시오 (그림 3D).
알림: 안정화 후 바늘 끝에 오일 기포가 남아 있으면 거친 미세 조작기의 X 평면 조정을 사용하여 바늘 끝이 RPT에서 빠질 때까지 바늘을 오른쪽으로 이동한 다음 대물렌즈 아래에 재배치될 때까지 다시 왼쪽으로 이동하여 제거할 수 있습니다.
6. 이식
알림: 모든 바늘 움직임은 이 섹션의 미세 미세 조작기를 사용하여 수행해야 합니다.
- 기증 동물이 다시 시야에 들어올 때까지 무대를 오른쪽으로 이동하고 실수로 바늘에 찔리지 않도록 주의하십시오.
- 이식할 세포의 중심을 다시 맞추고 바늘을 동물 바로 바깥쪽의 세포에 맞춥니다(그림 4A).
참고: 적절한 정렬을 위해 명시야와 형광 사이를 자주 전환해야 할 수도 있습니다. neutral density filter를 사용하면 두 필터를 동시에 시각화하는 데 도움이 될 수 있습니다. - 기증 동물에게 바늘을 삽입하십시오.
알림: 바늘을 반복적으로 안팎으로 움직이면 피부에 침투하는 데 도움이 될 수 있습니다. - 5.7단계에서 설명한 대로 마이크로 주사기 펌프를 사용하여 바늘 끝의 오일 반월상 연골을 즉시 다시 안정화합니다.
- 바늘 끝을 관심 세포에 대고 마이크로 주사기 펌프로 부드럽게 흡입합니다(그림 4B).
알림: 흡입 중 부드러운 안팎의 움직임은 세포를 느슨하게 하는 데 도움이 될 수 있습니다. - 적절한 수의 세포가 흡수되면 공여자에게서 바늘을 제거하고 즉시 마이크로 주사기 펌프로 바늘 끝의 오일 반월상 연골을 다시 안정화시킵니다.
- 동물이나 아가로스가 바늘과 접촉하지 않도록 주의하면서 스테이지를 재배치하여 첫 번째 숙주 동물이 보이도록 합니다.
- 세포가 배치될 영역에 중앙에 초점을 맞추고 바늘을 동물 바로 바깥쪽의 이 영역에 맞춥니다(그림 4C).
- 바늘을 숙주 동물에 삽입하고 즉시 마이크로 주사기 펌프로 바늘 끝의 오일 메니스커스를 다시 안정화합니다.
- 바늘 끝을 증착 부위에 놓고 바늘에서 올바른 수의 공여체 세포가 방출될 때까지 마이크로 주사기 펌프로 부드러운 압력을 가합니다(그림 4D).
참고: donor cell과 host cell이 서로 다른 fluorophores로 라벨링된 경우, 동시 시각화를 허용하는 다중 대역 필터는 이 단계에서 매우 유용할 수 있습니다. - 호스트에서 바늘을 제거하고 마이크로 주사기 펌프로 바늘 끝의 오일 반월상 연골을 즉시 다시 안정화합니다.
- 나머지 모든 호스트에 대해 6.7-6.11단계를 반복합니다.
7. 숙주 동물 회수
- 40x 대물렌즈를 올리고 거친 미세 조작기를 사용하여 바늘을 다시 로딩 위치로 움직입니다.
알림: 바늘은 여러 슬라이드에 재사용할 수 있습니다. - 이식 현미경에서 슬라이드를 제거하고 해부 현미경 아래에 놓습니다.
- 집게로 LMA 드롭에서 숙주 동물을 조심스럽게 제거하여 마운트 해제합니다. 유리 파스퇴르 피펫을 사용하여 숙주 동물을 페니실린/스트렙토마이신이 함유된 신선한 링거 용액이 있는 접시에 옮깁니다. 동물이 마취에서 회복되고 이미징할 준비가 될 때까지 배아 인큐베이터에서 유지되도록 합니다. 승인된 프로토콜에 따라 기증 동물을 안락사시킵니다.
참고: 우리의 안락사 방법은 동물을 얼음 욕조에 최소 1시간 동안 담근 다음 500mg/L 차아염소산나트륨에 담그는 것입니다.
결과
이식 실험의 결과는 형광 현미경을 사용하여 이식 후 적절한 시점에 숙주 동물의 형광 표지된 기증자 세포를 시각화하여 직접 관찰할 수 있습니다. 여기에서, 우리는 3 dpf에서 개별 전방 미주 신경 세포를 이식했습니다. 그런 다음 숙주 동물을 12시간 또는 48시간 동안 배양하고, 마취하고, 유리 커버슬립에 LMA에 장착하고, 컨포칼 현미경으로 이미징했습니다(그림 5). 이식 후 12시간(hpt)에서 성공적으로 이식된 기증자 뉴런을 관찰할 수 있습니다(그림 5A). 우리는 세포가 숙주 미주 운동 핵의 전방 영역에있는 숙주 미주 신경 세포 사이에 위치하기 때문에 세포의 올바른 위치를 확인할 수 있습니다. 또한 세포는 여러 개의 짧은 신경돌기 돌출부가 확장되어 있는 것처럼 온전하고 건강하게 보입니다(그림 5A). 이식 후 2일(dpt)에 단일 뉴런이 숙주 핵의 올바른 위치에 성공적으로 이식되었음을 다시 확인할 수 있습니다(그림 5B). 이 시점에서 우리는 뉴런이 새로운 축삭돌기를 4번째 인두궁까지 확장한 것을 관찰합니다(그림 5B). 직접 관찰하면 절차가 실패한 경우도 알 수 있습니다. 이 예에서는 donor 뉴런이 없는 2 dpt 호스트를 관찰합니다. 오히려, 이식 후 죽은 기증자 뉴런의 단편일 가능성이 있는 작은 녹색 점이 명백합니다(그림 5C). 이식 성공률은 사용자 경험과 이식된 세포의 수 및 유형에 따라 다르지만, 3-4 dpf33에서 수행된 미주 운동 뉴런 이식에 대해 66%(n = 453 이식)의 성공률(2-3 dpt에서 숙주에서 축삭을 확장한 생존 뉴런의 존재로 정의됨)을 경험합니다.
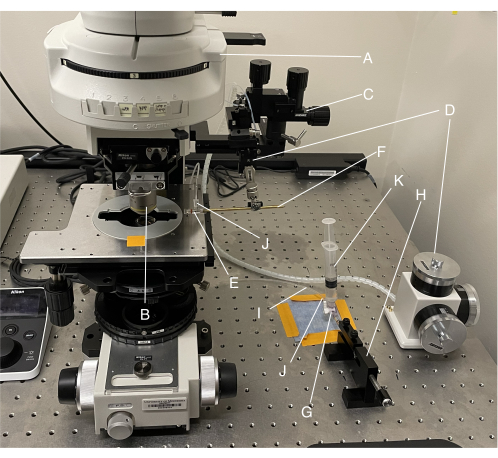
그림 1: 이식 장치의 개요. (A) 정립 형광 현미경; (B) 40x 물 침지 대물렌즈; (C) 거친 미세 조작기; (D) 미세 미세 매니퓰레이터; (E) 미세전극 홀더; (F) 전극 손잡이; (G) 3방향 마개; (H) 마이크로 주사기 펌프; (I) 폴리에틸렌 튜브; (J) 크로마토그래피 어댑터; (K) 10mL 저장 주사기. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
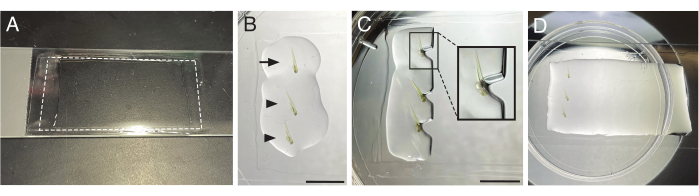
그림 2: 이식을 위한 동물 장착. (A) 직사각형 윤곽선(점선)에 투명 매니큐어를 칠한 3인치 x 1인치 반투명 유리 슬라이드. (B) 기증자(화살표) 및 숙주(화살촉) 동물은 아가로스 방울에 장착되어 이식 대상 부위(후뇌)와 수직으로 정렬되어 오른쪽을 향합니다. (C) 이식 대상 부위를 노출시키기 위해 오른쪽 가장자리와 쐐기를 잘라낸 아가로스. 삽입: 상자 영역의 확대/축소입니다. (D) 페니실린-스트렙토마이신과 트리케인이 함유된 링거 용액으로 가득 찬 이식 슬라이드. 축척 막대 = 5mm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
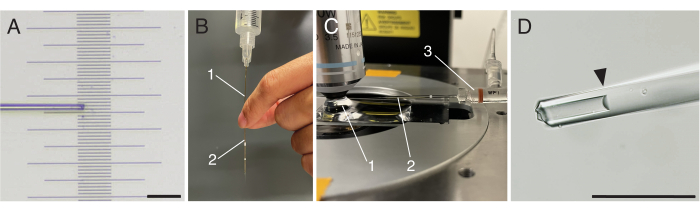
그림 3: 이식 바늘 준비. (A) 스테이지 마이크로미터 상단의 부러진 이식 바늘. (B) 피펫 필러(1)를 이식 바늘(2)에 삽입하여 바늘에 미네랄 오일을 채웁니다. (C) 준비된 이식 슬라이드와 바늘을 이식 현미경의 제자리에 놓습니다. 1 : 40x 침지 대물렌즈와 침수 슬라이드 사이의 물 반월판 2 : 이식 바늘 3 : 미세 전극 홀더. (D) 40배 배율로 이식 현미경을 통해 본 안정적인 오일 메니스커스(화살촉)가 있는 부러진 이식 바늘 끝. 스케일 바 = 100 μm 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
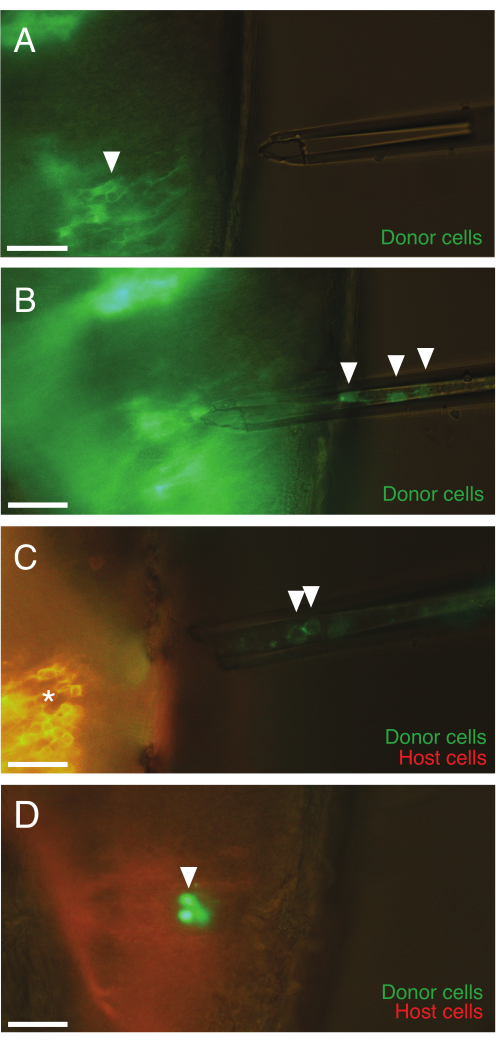
그림 4: 현미경으로 본 이식 과정. (A) 미주 운동 뉴런(녹색, 화살촉)을 겨냥한 기증 동물 외부에 위치한 바늘. (B) 형광으로 표시된 기증자 뉴런(화살촉)을 채취한 후 기증 동물 내부에 위치한 바늘. (C) 전방 숙주 미주 운동 뉴런(빨간색, 별표)을 겨냥하여 숙주 동물 외부에 위치한 여러 기증자 뉴런(화살촉)을 포함하는 바늘. (D) 주삿바늘을 빼낸 상태에서 이식 후 숙주 동물. GFP(화살촉)를 발현하는 이식된 기증자 뉴런 클러스터가 숙주로 배출되었습니다. 스케일 바 = 30 μm 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
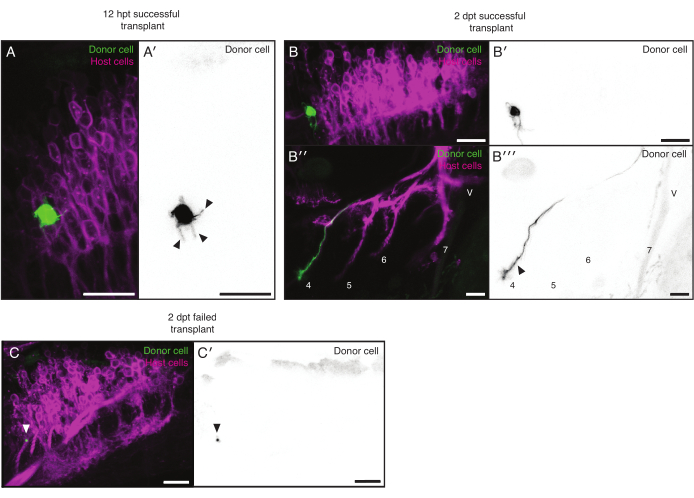
그림 5: 대표 결과. (ᅡ,ᄂ) 성공적인 이식. (A) 기증자 뉴런(A'에서 녹색, 검은색)을 포함하는 12hpt 숙주 미주 미주 운동 핵(자홍색)의 전방 영역. 공여 뉴런은 여러 개의 신경돌기(A'의 화살표)를 확장했습니다. (B) 기증자 뉴런(녹색, B', B')을 포함하는 2 dpt 호스트(자홍색)의 미주 운동핵(B-B'') 및 인두 축삭 가지(B''-B''', 축삭 분지)(B''-B''', 축삭 분지)는 B', B'''에서 검은색으로 표시되어 있습니다. 공여 뉴런은 새로운 축삭돌기를 4번 분지(화살촉)로 확장했습니다. 그림 5A,B는 서로 다른 동물을 나타냅니다. (C) 이식 실패. 2dpt 호스트(자홍색)의 미주 운동 핵. 기증자 뉴런이 존재하지 않습니다. 오히려, 죽은 기증자 뉴런(화살촉)의 단편을 나타낼 가능성이 있는 작은 점(C'에서 녹색, 검은색)이 존재합니다. 스케일 바 = 20 μm. 약어: dpt = 이식 후 일수; HPT = 이식 후 시간. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
발달 및 재생 생물학은 100년 이상 세포 신호 전달과 세포 운명 결정의 원리를 조사하기 위해 이식 실험에 의존해 왔습니다. 제브라피시 모델은 이미 유전적 접근법과 이식 접근법의 강력한 융합을 대표하고 있습니다. 모자이크 동물을 생성하기 위해 배반포 및 위부 단계에서 이식하는 것은 일반적이지만 해결할 수 있는 질문 유형에는 제한이 있습니다. 배아 척추 운동 뉴런과 망막 신경절 세포를 각각 16-18 hpf 및 30-33 hpf로 이식하는 방법이 보고되었지만, 후기 단계의 이식은 드물다26,27,28. 이러한 이전 노력에서 영감을 얻은 이 연구는 후기 배아 및 유충 단계에 적용할 수 있는 접근 방식을 설명하고, 재생 연구에 사용할 수 있는 문을 열고, 세포의 라벨링, 전달 및 장기 추적을 향상시키기 위해 최신 형광 형질 전환 접근 방식을 통합하는 접근 방식을 설명함으로써 제브라피시 이식의 힘을 더욱 향상시킵니다.
이 프로토콜은 재생 맥락을 포함하여 다양한 분화 단계와 연령의 세포를 이식할 수 있는 새로운 기회를 제공합니다. 예를 들어, 분화된 뉴런의 이식은 뉴런이 발달하는 공간적, 시간적 맥락을 변화시킴으로써 신호전달 역학이 뉴런의 정체성에 어떻게 영향을 미치는지 조사하는 데 사용되어 왔다32; 신경 세포 결정의 타이밍을 조사하기 위하여26; 축삭을 손상시키고 단세포 분해능(33)으로 이들의 재성장을 추적하는 수단으로; 돌연변이에서 야생으로의 이식을 통한 축삭 재생 중 수용체의 세포 자율적 역할을 조사하기 위해33; 그리고 재생 축삭 유도에서 표적 기억의 역할을 조사한다33. 우리는 지금까지 신경 세포 이식에 초점을 맞추었지만, 이 접근법에 독특하게 적합한 신경 세포의 특성을 알지 못합니다. 오히려, 우리는 이 접근 방식이 많은 세포 유형에 적용할 수 있다고 믿습니다. 우리는 연구자들이 이 기법을 사용하여 다양한 맥락에서 발달과 재생의 역동성을 조사할 수 있는 창의적인 방법을 찾을 수 있기를 희망하고 기대합니다.
이 프로토콜에서 중요한 고려 사항에는 세포 라벨 선택, 이식을 위한 세포의 적합성 및 조직 접근성이 포함됩니다. 기증자 세포에 대한 밝고 안정적이며 영구적인 형광 라벨 은 이식과 후속 추적을 용이하게 하는 데 중요합니다. 주입된 염료와 전이유전자를 모두 사용할 수 있지만, 전이유전자는 더 영구적이고 관심 세포에 더 특이적일 수 있습니다. 광표백에 대한 내성은 또한 이식을 수행하는 데 걸릴 수 있는 시간을 연장합니다. 기증자 세포는 과도한 손상 없이 주변 조직/세포외 기질에서 바늘로 당겨질 수 있을 만큼 충분히 느슨하게 부착 되어 있어야 하며 적절한 모양 이어야 합니다. 다양한 세포 유형에 대한 수정에는 관심 세포의 직경보다 약간 커야 하는 바늘 구멍 크기 조정이 포함됩니다. 관심 세포에 대한 접근을 용이하게 하기 위해 장착하는 동안 동물을 적절하게 배향시키는 단계; 세포를 풀고 끌어올리는 데 필요한 흡입 또는 물리적 파괴 수준을 최적화합니다. 동물이 나이가 들어감에 따라 특정 조직은 시각적 및/또는 신체적으로 접근할 수 없게 될 수 있지만, 당사는 특정 연령 제한을 알지 못합니다. 예를 들어, 두개골은 결국 뉴런에 대한 접근을 제한할 가능성이 높습니다. 수정에는 내부 조직을보다 쉽게 시각화하기 위해 색소가 없는 동물을 사용하거나 예비 작은 절개 만들기, 미세 모세관 두께 조정 또는 바늘 진입을 용이하게 하기 위해 바늘 모양을 당기는 것이 포함될 수 있습니다.
이 프로토콜의 한계에는 위에서 설명한 바와 같이 특정 유형 및 연령의 세포가 이식에 적합하지 않고 이식 중 조직 수준 구조를 유지하는 어려움이 포함됩니다. 이 절차에서는 제거하는 동안 개별 세포를 주변 환경과 분리해야 하기 때문에 세포 간 상호 작용 및 고차원 구조가 손실됩니다. 배아 발생 중에 기능하게 되는 선천성 면역 체계는 조직 손상 또는 이식 부위의 죽은 세포 및 파편의 존재에 반응할 수 있으며, 이는 기증 세포 생존에 영향을 미칠 수 있습니다37,38. 후기 단계에서, 기증자 세포는 또한 적응 면역 체계에 의해 거부될 수 있으며, 이는 수정 후 3-6주에 기능하게 됩니다39,40. 이 문제는 적응 면역 또는 선천성 면역이 부족한 숙주에 이식함으로써 피할 수 있다 41,42,43,44.
문제 해결이 필요할 수 있는 프로토콜의 잠재적인 문제는 다음과 같습니다. 첫째, 바늘 내부의 재료는 흡입 및 압력 중에 부드럽고 반응성이 있는 방식으로 움직여야 합니다. 불안정하고 일관되지 않은 움직임은 유압 라인에 기포가 있거나 바늘에 부분적인 막힘이 있기 때문에 발생할 수 있습니다. 따라서 설정하는 동안 바늘과 유압 라인에서 모든 기포를 제거하기 위해 주의를 기울여야 합니다. 기포가 발견되면 거친 미세 조작기를 사용하여 바늘을 적재 위치로 되돌리고 홀더에서 바늘을 제거한 다음 바늘과 라인을 미네랄 오일로 세척한 후 재조립하십시오. 바늘 막힘은 들쭉날쭉한 바늘 끊김을 방지하여 완화할 수 있습니다. 막힘은 때때로 바늘 끝에서 미네랄 오일을 배출하여 막힘을 밀어내거나 바늘을 완전히 집어넣었다가 RPT에 다시 삽입하여 해결할 수 있습니다. 그렇지 않으면 새 바늘을 사용해야 합니다. 둘째, 제거 시 세포를 풀어주는 데 어려움이 있을 수 있습니다. 바늘 끝을 비스듬히 꺾어 비스듬한 모양으로 만들고, 흡입 중에 바늘을 앞뒤로 움직이고, 흡입 강도를 조정하면 조직에서 분리하기 위해 세포를 느슨하게 하는 데 도움이 될 수 있습니다. 마이크로 그라인더는 특정 개구부 크기와 각도36을 가진 경 사진 바늘을 준비하는 데에도 사용할 수 있습니다. 마지막으로, 제거하는 동안 세포가 손상될 수 있습니다. 심하게 손상된 세포는 정의된 모양을 잃고 주사 바늘에 작은 조각이나 비정질 형광 얼룩으로 나타날 수 있습니다. 이식 후 세포가 생존하지 못하는 것도 손상의 징후일 수 있으며 숙주에 형광 표시된 세포가 없는 경우에도 쉽게 분석할 수 있습니다. 반복적인 셀 손상에 대한 문제 해결에는 바늘의 구멍 크기를 늘리고 전단력을 줄이기 위해 적용되는 흡입량을 제한하는 것이 포함될 수 있습니다. 바늘이 부분적으로 막히면 전단력이 증가하여 손상될 수도 있습니다.
공개 사항
저자는 공개할 이해 상충이 없습니다.
감사의 글
제브라피시 이식 교육을 해주신 Cecilia Moens에게 감사드립니다. 훌륭한 물고기 관리를위한 Marc Tye; 그리고 Emma Carlson이 원고에 대한 피드백을 제공했습니다. 이 연구는 A.J.I.에 대한 NIH 보조금 NS121595의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 10 mL "저장소 주사기" | Fisher Scientific | 14-955-459 | |
| 150 mL 일회용 진공 필터, .2 µ m, PES | Corning | 431153 | |
| 20 × 12mm 가열 블록 | Corning | 480122 | |
| 3 방향 스톱 콕 | 브라운 메디컬 Inc. | ||
| 3 x 1 젖빛 유리 슬라이드 | VWR | 48312-004 | |
| 40x 물 담그기 objective | Nikon | MRD07420 | |
| 염화칼슘 이수화물 | Sigma-Aldrich | C3306 | |
| Coarse Manipulator | Narishige | MN-4 | |
| Custom microsyringe pump | University of Oregon | N/A | University of Oregon 기계 공장(tsa.uoregon@gmail.com)에서 제조합니다. 상업적으로 이용 가능한 대안은 다음과 같습니다. |
| Dumont #5 펜치 | 파인 사이언스 도구 | 1129500 | |
| Eclipse FN1 "이식 현미경" | Nikon | N/A | |
| 전극 핸들 | 월드 정밀 기기 | 5444 | |
| 깃털 멸균 수술용 칼날, #11 | VWR | 21899-530 | |
| 미세 미세 조작기, 3축 오일 유압 | Narishige | MMO-203 | |
| HEPES pH 7.2 | Sigma-Aldrich | H3375-100G | |
| 고정밀 #3 스타일 메스 핸들 | Fisher Scientific | 12-000-163 | |
| Kimble 일회용 보로실리케이트 파스퇴르 피펫, 넓은 팁, 5.75 인치 | DWK Life Sciences | 63A53WT | |
| KIMBLE 크로마토그래피 어댑터 | DWK Life Sciences | 420408-0000 | |
| Kimwipes | Kimberly-Clark Professional | 34120 | |
| 라이트 미네랄 오일 | Sigma-Aldrich | M3516-1L | |
| LSE 디지털 건식 수조 히터, 1 블록, 120 V | Corning | 6875SB | |
| 수동 마이크로 주사기 펌프 | World Precision Instruments | MMP | 맞춤형 마이크로 주사기 펌프에 대한 상업적 대안 |
| 미세 전극 홀더 | World Precision Instruments | MPH310 | |
| MicroFil 피펫 필러 | World Precision Instruments | MF28G67-5 | |
| 매니큐어 | 전자 현미경 과학 | 72180 | |
| 뉴클레아제가 없는 물 | VWR | 82007-334 | |
| P-97 화염/갈색 유형 마이크로피펫 풀러 | 셔터 기기 | P-97 | |
| 페니실린-스트렙토마이신 | 시그마-알드리치 | p4458-100ML | 5,000단위 페니실린 및 5mg 스트렙토마이신/mL |
| 피펫 펌프 10mL | Bel-Art | 37898-0000 | |
| 염화칼 | 시그마-알드리치 | P3911 | |
| 전문가용 슈퍼 글루 | 록타이트 | LOC1365882 | |
| 둥근 바닥 폴리스티렌 시험관 | Falcon | 352054 | |
| 염화나트륨 | Sigma-Aldrich | S9888 | |
| 스테이지 마이크로미터 | Meiji Techno America | MA285 | |
| 바늘 없는 주사기, 50mL | BD Medical | 309635 | |
| Tricaine Methanosulfonate | Syndel USA | SYNCMGAUS03 | |
| Trilene XL 부드러운 주조 낚싯줄 | Berkley | XLFS6-15 | |
| 튜빙, 폴리에틸렌 No. 205 | BD Medical | 427445 | |
| UltraPure 저융점 Agarose | Invitrogen | 16520050 | |
| Wiretrol II 보정 마이크로피펫 | Drummond | 50002010 |
참고문헌
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
재인쇄 및 허가
태그
