이 프로토콜은 마이코박테리아에서 Zn2+ 제한 리보솜을 생성하기 위한 Zn2+ 제한 배지, 성장 혈관 및 종자 배양의 준비를 자세히 설명합니다. Zn2+의 흔적은 Zn2+ 제한 성장으로 이어지며 모델 박테리아, Mycobacterium smegmatis 및 인간 병원체 M. tuberculosis에서 체외에서 Zn2+ 제한을 확인하기 위한 생물 지표로 사용되는 형태 생성 특징을 설명합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
Mycobacterium smegmatis를 Mycobacteria의 아연 제한 성장 조건에 대한 생물 지표로 사용
* These authors contributed equally
이 논문에서
요약
초록
많은 박테리아는 Zn2+ 결합 리보솜 단백질을 Zn2+ 독립 파라로그로 대체하여 Zn2+ 제한 성장 조건에서 대체 리보솜을 구축합니다. 이러한 대체 리보솜을 연구하기 위한 시스템을 정의하는 것은 실험실에서 Zn2+ 오염이 흔하기 때문에 어려운 것으로 입증되었습니다. 이 문제를 해결하기 위해 킬레이트제가 성장 배지에 첨가되는 경우가 있지만, 이 접근법은 점진적인 Zn2+ 제한에 대한 생물학적 반응을 복잡하게 만들고 리보솜 동면과 관련이 있습니다. 여기에서는 킬레이트를 추가하지 않고 Zn2+ 제한 성장을 위한 배지 준비 및 파종 배양에 대한 자세한 지침을 설명합니다. 이 방법에 따라 모델 박테리아인 Mycobacterium smegmatis는 대체 리보솜에 의존하는 형태 형성을 거칩니다. 형태형성은 다루기 쉽고 Zn2+ 제한 조건에서만 발생하기 때문에 M. smegmatis는 생물학적으로 관련된 성장 조건을 확인하기 위한 생물 지표로 사용할 수 있습니다. 야생형에서 Zn2+ 제한을 나타내는 세 가지 생물지표 표현형(세포 밀도, 세포 길이 및 코엔자임 F420 형광)을 설명하고, 선택적 리보솜을 만들 수 없는 결실 돌연변이에 대한 이러한 생물지표의 변화를 설명합니다. 미량 Zn2+ 오염은 각 배지 배치에 대해 제어하기 어렵고 각 배지 준비에서 Zn2+의 정확한 정량화가 지나치게 부담스럽기 때문에 이 생물지표 표현형을 따르는 것이 Zn2+ 제한 성장 배지의 준비를 검증할 수 있는 접근 가능한 방법입니다. Zn2+ 제한 성장 및 대체 리보솜 생산에 대한 적절한 조건을 식별하는 데 도움이 되도록 Zn2+ 오염 또는 Zn2+ 고갈 처리된 Zn2+ 제한 배지 제제에 대해서도 생물 지표 표현형의 변화를 프로파일링했습니다. M. tuberculosis에서 Zn2+ 제한 성장 및 대체 리보솜 생산을 달성하기 위한 추가 세부 정보가 관련 생물지표 표현형과 함께 제시됩니다. 전반적으로, 여기에 설명된 자세한 지침과 생물지표 표현형은 마이코박테리아에서 번역 활성 대체 리보솜의 생산을 표준화하는 데 도움이 될 것입니다.
서론
아연 이온(Zn2+)은 필수 미량 영양소이며 미생물 배지의 표준 구성 요소입니다. 그러나 많은 박테리아는 Zn2+ 제한 조건이 널리 퍼져 있기 때문에 환경에서 Zn2+ 제한을 견뎌냅니다. soil1, marine2 및 host3 내의 틈새는 종종 Zn2+로 제한됩니다. 따라서 대부분의 박테리아는 Zn2+ 제한을 극복하고 세포 기능을 보존하는 메커니즘을 진화시켰습니다4. Zn2+ 항상성 유지와 관련된 시스템은 엄격한 전사 제어5 하에 있으며 친화성이 높은 Zn2+ 가져오기 시스템을 사용하여 Zn2+를 청소하고, 세포 Zn2+ 매장량을 동원하고, 특정 Zn2+ 결합 단백질을 대체 Zn2+ 독립 paralog6으로 대체하는 데 관여합니다. 후자의 예로는 Zn2+ 독립 리보솜 단백질(RP) 파라로그가 있으며, 이는 bacteria4에서 Zn2+ 반응성 레귤론의 일반적인 특징입니다. 이러한 고도로 발산하는 Zn2+ 독립 RP는 Zn2+ 결합 CXXC 모티프7의 붕괴에 의해 Zn2+ 결합 파라로그와 구별됩니다. 염기서열분석된 원핵생물 게놈의 절반 이상에는 적어도 한 쌍의 중복된 RP가 포함되어 있으며, 그 중 많은 경우 하나의 RP는 Zn2+와 결합하는 반면 파라로그는 그렇지 않습니다8. C+/C- 표기법(시스테인이 풍부한 Zn2+ 결합 모티프의 존재/부재를 나타냄)은 이러한 파라로노시스 RP 쌍과 관련하여 일반적으로 사용되지만7, Zn2+ 독립 RP는 AltRP가 Zn2+에서 리보솜 생물 발생을 위한 대체 RP 역할을 하기 때문에 1차(Prim), Zn2+ 결합 RP 파라로그의 대체(Alt) 버전으로도 설명되었습니다-일부 박테리아에서 제한된 조건이며 검색 가능성이 더 좋은 키워드입니다9,10,11.
AltRP 발현은 Zn2+에 의해 엄격하게 조절되기 때문에 AltRP 발현이 Zn2+ 제한에 직면하여 Zn2+ 의존성 리보솜 단백질에 기능적 중복을 제공한다고 가정하는 것이 논리적입니다. 실제로, AltRP의 이러한 특징은 모델 토양 박테리아 Bacillus subtilis에 대해 입증되었으며, 여기서 Zn2+ 제한 동안 표면 PrimRP L31의 해방 및 AltRP L3112,13으로 대체하여 성장이 구출됩니다. 그러나 일부 AltRP는 코어 PrimRP(예: S14)에 상관관계가 있어 리보솜 생물 발생 중에 통합이 필요함을 의미합니다12,13. AltRP로 리보솜을 재건하는 것은 헌신적이고 에너지 집약적인 프로그램입니다. 이러한 핵심 AltRP는 리보솜에서 Zn2+를 방출하는 역할을 할 수 있지만 일부 AltRP는 Zn2+ 제한된 환경에서 추가 기능을 진화시켰을 수도 있습니다. 이것은 AltRP가 paralogous PrimRPs와 갈라진다는 관찰에 의해 뒷받침됩니다. AltRP 유전자의 서열 상동성은 종종 동일한 종 내의 Zn2+ 결합 PrimRP 유전자 서열보다 다른 종의 상동체에서 더 높습니다7,10. 고도로 발산하는 AltRP를 암호화하는 유전자는 Zn2+ 의존적 전사 제어 하에 있기 때문에 엄격하게 조절되고 고도로 보존된 리보솜 superoperons에 가해지는 선택적 압력에서 제거됩니다14. 리보솜 기계와 AltRP를 암호화하는 유전 정보에 대한 분리된 선택적 압력은 이러한 RP를 상동 PrimRP와 다른 진화 궤적에 노출시키고 다른 박테리아에서 동일한 AltRP의 계통 특이적 진화를 허용할 수 있습니다10,15. 박테리아에 AltRP가 널리 존재하고 이러한 고유한 RP의 분리된 유전적 조절은 AltRP를 박테리아 리보솜에 통합하면 AltRP 함유 리보솜(Alt-리보솜)에 특별한 특성을 부여하는지에 대한 흥미로운 질문을 제기합니다.
Mycobacteria는 Alt-ribosomes의 기계론적 특성을 조사하기 위한 이상적인 박테리아 그룹입니다. 첫째, 마이코박테리아는 AltRP를 암호화하는 4개의 유전자(S14-2, S18-2, L28-2 및 L33-2)를 포함하는 고도로 보존된 altRP 오페론을 가지고 있습니다8,9. Mycobacterial AltRP는 PrimRP paralog와 크게 다릅니다. 4개의 PrimRP/AltRP 쌍 모두에서 주어진 AltRP 유전자는 동일한 종의 PrimRP 유전자보다 모든 마이코박테리아 종에서 더 유사합니다10. AltRP의 계통 특이적 진화는 Mycobacteria 내에서도 뚜렷하게 나타나며, Mycobacterium tuberculosis 및 M. bovis의 AltRP S18-2 및 L28-2에 의해 입증되었으며, 이는 다른 mycobacteria10에는 존재하지 않는 C-말단에 고유한 서열을 포함합니다. 둘째, 관련성이 높은 이 박테리아 그룹은 토양(예: M. smegmatis)에서 인간(예: M. tuberculosis), 소(예: M. bovis), 수생(예: M. marinum) 및 조류(예: M. avium)에 이르기까지 다양한 환경에 서식하는 비병원성 및 병원성 구성원을 포함합니다. 마이코박테리아에서 altRP 오페론의 고도로 보존된 특성, 특정 AltRP 유전자의 계통 특이적 진화 및 이 그룹의 구성원이 존재하는 매우 다른 환경은 AltRP 기능의 보존되고 계통 특이적 진화와 Alt-리보솜의 기계론적 특성을 분석할 수 있는 독특한 기회를 제공합니다. 원핵 생물 게놈에 AltRP가 풍부함에도 불구하고 AltRP 및 Alt-리보솜의 역할은 소수의 박테리아에서만 조사되었습니다9,10,11,12,13,16,17,18,19. 마이코박테리아에서 Zn2+ 제한 성장 조건을 검증하기 위한 특정 지표로 표준화된 시스템을 구축하면 실험 결과가 향상되고 리보솜 연구 분야에서 Alt-리보솜에 대한 이해가 증진될 것입니다.
Zn2+는 미량 영양소입니다. 따라서 화학 물질 및 물에서 Zn2+를 오염시키는 미량은 배지 준비에서 생략 된 경우에도 Zn2+의 생체 이용률에 기여합니다. 물이나 화학 물질에 존재하는 미량의 Zn2+는 실험실마다 크게 다를 수 있으므로 Zn2+ 제한 성장의 결과에 영향을 미칠 수 있습니다. 각각의 독립적인 배지 준비에서 [Zn2+]를 경험적으로 정량화하는 것은 일상적인 성장 분석을 수행하는 대부분의 실험실에서 지나치게 부담스럽지만, 성장 배지에서 Zn2+ 오염 가능성을 제거하는 메커니즘은 본질적으로 가치가 있습니다. 이를 위해 M. smegmatis 및 M. tuberculosis에서 Zn2+ 제한 성장 및 Alt-리보솜 생산을 위해 화학적으로 정의된 Zn2+ 제한 배지(ZLM), 성장 용기 및 종자 배양을 준비하는 자세한 방법이 여기에 제시되어 있습니다. ZLM에서 성장한 후 주요 형태 형성 특성(OD600으로 측정한 세포 밀도, 세포 길이 및 코엔자임 F420의 형광)을 사용하여 Zn2+ 제한이 달성되었음을 확인했습니다. 코엔자임 F420은 메탄겐 및 마이코박테리아의 이화작용 및 산화 스트레스에 대한 방어에 중요한 역할을 하는 데아자플라빈 보조인자입니다20,21. 중요한 것은 마이코박테리아는 이 보조인자22가 풍부하기 때문에 420nm에서 여기될 때 자가형광을 띱니다. [Zn2+]와 F420 형광 사이의 분자 연결은 해결되지 않은 상태로 남아 있지만, 배양에서 F420 형광을 따르는 것은 다루기 쉽고 신뢰할 수 있는 생물 지표입니다.
M. smegmatis에서 생물지표 표현형은 야생형 박테리아에서 발생하지만, altRP 오페론이 결핍된 결실 돌연변이는 동일한 형태형성 프로그램을 거치지 않으며 차등 생물지표로 사용될 수 있습니다10. M. tuberculosis는 Zn2+ 제한 기간 동안 M. smegmatis와 동일한 형태 생성 프로그램을 따르지 않지만, M. tuberculosis는 Zn에 대해 강력하고 전반적인 반응을 보입니다2+ 제한 사항 및 이 방법을 따르는 주요 생물 지표 표현형23. 따라서 여기에 정의된 시스템은 동일한 성장 조건(즉, Zn2+ 제한)에서 Prim- 및 Alt-리보솜을 생성할 수 있도록 하여 Alt-리보솜 기능의 기계론적 해부와 박테리아 생리학을 형성하는 데 있어 그 역할을 촉진합니다. 이 성장 방법은 활성 Alt-리보솜의 구조를 해결하고 야생형 M. smegmatis24에서 번역 활성을 입증하는 데 사용되었습니다. 이 성장 방법 및 생물 지표 표현형이 Zn2+ 제한 동안 AltRP의 생물학적 기능을 강조한다는 것을 더욱 뒷받침하는 것으로, AltRP 발현은 Zn2+ 의존 형태 형성에 필요하며 Zn2+ 제한 M의 전사체 및 단백질체에 지대한 영향을 미칩니다. smegmatis10,25. 접종량과 배양 시간을 약간 수정한 동일한 방법을 사용하여 M. tuberculosis9,23의 Zn 2+ 제한 배양을 생성합니다. 여기에서는 M. smegmatis와 M. tuberculosis 모두에서 Zn2+ 제한 성장을 달성하기 위한 프로토콜 및 생물지표 표현형이 자세히 설명되어 있으며, 이 박테리아는 배지의 Zn2+ 오염에 더 민감하고 느리게 성장하는 병원체보다 더 광범위하게 접근할 수 있기 때문에 M. smegmatis에 중점을 둡니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
참고: 본 연구에 사용된 균주는 야생형 M. smegmatis mc2 155 (Boston Children's Hospital의 Robert Husson 박사 제공) 및 ΔaltRP 결실 균주 (Prisic 연구실 유래10)입니다. 이들은 지역 생물 안전 규정 및 가용 자원에 따라 생물 안전 등급 1(BSL1) 또는 BSL2 실험실에서 배양할 수 있습니다. 본 프로토콜은 BSL2 실험실을 기준으로 작성되었습니다. BSL1 실험실에서 수행하는 경우, 생물 안전 작업대 대신 분젠 버너를 이용한 무균 조작법으로 대체할 수 있습니다. 또한, 다른 균주나 조건을 포함하고자 하는 연구자는 분석할 총 배양 횟수에 따라 필요한 배지의 부피를 계산해야 합니다. 병원성 M. tuberculosis H37Rv (Mtb-H37Rv; Boston Children's Hospital의 Robert Husson 박사 제공)는 호흡기 보호구(예: PAPR 또는 N95)를 착용한 상태로 BSL3 실험실에서 조작하십시오. Mtb-H37Rv와 같이 독성이 강한 마이코박테리아를 배양할 때는 플라스크를 재사용하지 마십시오. 영양 요구성 M. tuberculosis mc26206 (Mtb-Aux)은 약독화되었으며 BSL2 실험실에서 조작 가능합니다 (Albert Einstein College of Medicine의 William R. Jacobs Jr. 박사 제공).
1. 플라스크 준비
참고: Zn2+ 제한 성장 조건은 재사용 가능한(오토클레이브 가능한) 폴리카보네이트 250 mL 삼각 플라스크에서 구현됩니다. Zn2+ 제한 성장에 유리 플라스크를 사용하지 마십시오. 또한 엄격한 산 세척 절차를 조사하여 이 프로토콜에 제시된 결과와 비교하지 마십시오19. 새 플라스크를 사용해도 Zn2+ 제한 성장 조건을 달성하기에 충분하지만, 실험에서 새 플라스크와 오래된 플라스크를 섞어서 사용하지 마십시오. 취약한 징후(주로 이음매 부분)가 보이거나 약 20회 이상 사용한 플라스크는 폐기하십시오. 캡 필터의 성능 저하 여부를 정기적으로 확인하고 손상된 경우 폐기하십시오. 캡 상단에 나사로 고정되어 필터를 덮는 캡 뚜껑이 있는 경우, 이를 폐기하십시오. 이 방법은 플라스크를 세척하고 재사용을 위해 준비하는 데 필요한 주의 사항을 설명합니다.
- 플라스크에 영구적으로 라벨을 부착하여 동일한 세트가 Zn에만 사용되도록 하십시오.2+-제한 조건. 다른 플라스크 세트에 Zn이라고 표시하십시오.2+-충분한 성장을 유도합니다. 플라스크가 섞이는 것을 방지하기 위해 서로 다른 색상으로 라벨을 붙이는 것이 유용합니다.
- 플라스크 내의 배양 잔류물이 마르지 않도록 주의하십시오. 플라스크에서 배양액을 따라낸 직후 즉시 플라스크에 물(예: 100 mL)을 추가하십시오. 생장 종료 시점에 배양액을 수확하지 않는 경우, 본 프로토콜에 기술된 대로 생체 지표 표현형을 기록한 후, 배양액 전체를 최종 표백제 농도가 10%인 액체 폐기물 처리 용기에 부어 플라스크를 비우십시오.
- 액체 사이클로 플라스크를 오토클레이브 처리합니다 (최소한 121 °C (15 psi에서) 뚜껑을 닫은 상태로 내부의 물과 함께 20분 동안 처리합니다.
- 오토클레이브 멸균 후, 비이온성 저기포 세제로 플라스크를 세척하고 부드러운 스크러버 브러시를 사용하여 깨끗이 닦아냅니다. Zn 전용 플라스크 세척용 브러시를 별도로 지정하여 사용하십시오.2+- 성장을 제한합니다. 플라스크에 잔류물이나 이물질이 없이 깨끗한지 확인하십시오. 캡을 문지르거나 비누를 사용하지 말고, 탈이온수로 가볍게 헹굽니다.
- 플라스크를 수돗물로 충분히 헹군 다음, 탈이온수(type II 또는 III)로 3회 헹구고, 초순수(type I, 18.2 MΩ-cm)로 최소 1회 더 헹굽니다. 25 °C 및 총 유기 탄소 5 ppb 이하).
- 플라스크를 수직으로 뒤집어 놓아 바닥에 물이 고이지 않게 합니다. 일반적인 벽걸이형 실험실 건조대는 플라스크가 기울어진 상태로 유지되어 소량의 물이 고일 수 있으므로 사용하지 마십시오. 일반 식기 건조대로도 충분합니다. 플라스크와 뚜껑을 완전히 건조하십시오.
- 건조가 완료되면 플라스크에 캡을 돌려 닫고, 뚜껑을 알루미늄 호일로 덮습니다. 멸균 상태를 확인하고 캡 필터에 먼지가 유입되는 것을 방지하기 위해 호일 위에 오토클레이브 표시 테이프를 부착합니다.
- 세척한 플라스크를 오토클레이브 처리하십시오(최소한 121 °C (15 psi에서) 20분 동안 처리한 후, (오토클레이브에 해당 기능이 있는 경우) 사이클 후 진공 건조를 통해 적재물을 건조합니다. 플라스크는 건조한 상태로 먼지가 유입되지 않도록 보호하여 보관하십시오.
2. Zn2+-제한 배지(ZLM)의 준비
참고: 배지를 준비할 때는 플라스틱 비커, 메스실린더 및 기타 소모품만 사용하십시오. Zn2+ 제한 배지 준비 전용으로 사용할 실험 기구 세트를 지정하십시오. 모든 실험 기구는 사용 전후에 초순수(type I)로 충분히 헹구어 내십시오. 고순도 화학 물질을 사용하고, 가능한 한 동일한 공급업체에서 구매하십시오.
- 교반자가 들어 있는 1 L 플라스틱 비커에 ~950 mL의 초순수와 다음 화학 물질들을 혼합하여 Zn2+ 염이 첨가되지 않은 Zn2+ 제한 Sauton 배지를 준비한다26:
0.5 g KH2PO4 (0.05%; MW: 136.09)
0.5 g MgSO4 x 7H2O (0.05%; MW: 246.48)
2 g 무수 시트르산 (0.2%; MW: 192.12)
4 g L-asparagine, 99% (0.4%; MW: 132.12)
60 mL 글리세롤 (6%)
189 µL 1 M ferric ammonium citrate (0.005%; MW: 265)- 일회용 플라스틱 50 mL 세롤로지컬 피펫을 사용하여 글리세롤을 첨가한다. 피펫 내부에 잔류 글리세롤이 남지 않을 때까지 배지 내에서 약 10회 정도 위아래로 피펫팅하여 충분히 헹궈낸다.
참고: 글리세롤은 점도가 매우 높아 측정이 어렵다. 대안으로, 글리세롤을 메스실린더에 부은 다음 약 30 mL의 초순수로 여러 번 헹구어 그 세척액을 배지에 추가할 수도 있다. 이 방법을 사용할 경우, 글리세롤과 메스실린더 세척액을 추가한 후의 최종 부피가 ~950 mL를 초과하지 않도록 초기 부피를 적게(~600 mL) 설정한다.
- 일회용 플라스틱 50 mL 세롤로지컬 피펫을 사용하여 글리세롤을 첨가한다. 피펫 내부에 잔류 글리세롤이 남지 않을 때까지 배지 내에서 약 10회 정도 위아래로 피펫팅하여 충분히 헹궈낸다.
- 배지의 부피를 약 950 mL로 맞추고 잘 혼합한다. L-asparagine이 용해되는 데 몇 분이 소요되므로, 흰색 플레이크가 남지 않을 때까지 기다린 후 다음 단계를 진행한다.
참고: ferric ammonium citrate 용액으로 인해 배지가 연한 노란색을 띤다. - 플라스틱 용기(예: 15 mL 원뿔형 튜브)에 초순수를 사용하여 신선한 NaOH 용액(~10% w/v) 15 mL를 준비한다.
- 사용 전 pH 미터를 초순수로 철저히 헹구고, pH 미터의 전극 끝부분(bulb)만 배지에 담근다. pH를 조절하는 동안 pH 미터를 배지에 둔 상태에서 완만하게 교반한다. 일회용 플라스틱 전이 피펫을 사용하여 신선하게 준비한 NaOH를 첨가해 최종 pH를 7.4로 맞춘다.
참고: 배지의 초기 pH는 매우 산성이다. pH를 중성 범위까지 올리려면 다량의 NaOH 용액이 필요하다. 처음에 NaOH 용액 4-6 mL를 첨가하고, pH가 약 6.5에 도달하면 NaOH 용액을 한 방울씩 첨가한다. 목표 pH인 7.4를 초과하지 않도록 주의한다. 만약 초과했다면 HCl이나 다른 산으로 다시 조절하려 하지 말고 해당 배지는 폐기한다. 프로브의 오염을 방지하기 위해 ZLM 제조 전용 pH 미터를 지정하여 사용하는 것이 좋다. - 배지를 메스실린더로 옮기고 초순수를 사용하여 최종 부피를 1 L로 맞춘다. 0.2 µm 일회용 필터 플라스크를 통해 배지를 여과 멸균한다.
- 여과 멸균된 20% Tween-80 용액 2.5 mL(최종 농도 0.05%)를 무균적으로 첨가한다. 4 °C에서 빛을 차단하여 최대 6개월 동안 보관한다.
3. M. smegmatis의 Zn2+ 제한 성장
참고: ZLM에 포함된 Zn2+ 양의 배치별 편차로 인해, 한 실험의 모든 배양에는 동일한 배치의 배지를 사용하거나 충분히 혼합된 여러 배지를 사용하는 것이 필수적입니다. 배양 설정에 필요한 배지 외에, 종균 배양액의 세척 및 정규화를 위해 약 100 mL의 추가 배지가 필요합니다.
- 모든 단계는 생물안전작업대 내에서 수행하십시오. 성장 실험을 시작하기 18시간 전에 시드 배양액을 준비하십시오. 과성장하거나 덩어리가 진 시드 배양액은 사용하지 마십시오. 균주당 하나의 시드 배양액이면 충분합니다.
- 무균적으로 50mL 바이오리액터 튜브에 7H9-ADC 배지(0.05% Tween 80 및 10% ADC 강화제[최종 농도: 0.5% 소 혈청 알부민, 0.2% 덱스트로스, 0.085% NaCl 및 선택적으로 0.0003% 카탈라아제]가 포함된 Middlebrook 7H9 액체 배지) 5mL를 첨가한다.
- 무균적으로 첨가하십시오 10 µL 해동된 글리세롤 스톡 세포의 (다음에 따라 준비된26) 배지에 직접 넣습니다. 튜브의 뚜껑을 돌려 닫습니다.
- 튜브를 약 a의 진동 배양기에 단단히 고정하십시오. 45° 흔드는 동안 액체가 튜브의 약 절반 정도까지 올라오도록 각도를 조절하십시오.
- 튜브를 다음 온도에서 배양하십시오. 37 °C 120 rpm으로 약 18시간 동안 흔들어 섞어줍니다.
- 하룻밤 동안 배양한 종균 배양액을 확인하여 배양액이 고르게 혼탁하며 유의미한 응집 현상이 없는지 확인하십시오. 600 nm에서의 광학 밀도(OD600밤샘 배양액의 (흡광도는) 이상적으로 약 0.5-0.8입니다.
- 하룻밤 동안 배양하여 성장을 유도한 바이오리액터 튜브 내의 배양액을 3,000 x g에서 원심분리하여 펠렛화합니다. g 실온에서 5분 동안.
- 상층액을 따라내거나 흡입하여 제거한 후 5 mL의 ZLM에 재현탁하십시오. 원심분리와 재현탁 단계를 2회 더 반복하여 총 3회 세척하십시오.
- 원심분리 단계 동안, 큐벳에 70% 에탄올을 넘칠 때까지 채워 멸균합니다. 에탄올을 채운 큐벳을 생물안전작업대(biosafety cabinet) 내에 10분 동안 그대로 둡니다. 그 후 피펫을 사용하여 ZLM으로 3회 충분히 헹굽니다.
참고: 세포 정규화 과정은 효율적으로 수행하기까지 시간과 연습이 필요합니다. 에탄올로 멸균된 큐벳에서 세포를 직접 정규화함으로써 이 과정을 크게 단축할 수 있습니다. - 연구에 포함된 균주 수에 맞춰 충분한 수의 큐벳을 준비하십시오. 예를 들어, 이 프로토콜에서는 야생형(wild-type)용 하나와 Δ용 하나로 총 두 개의 멸균된 큐벳이 필요합니다.altRP 돌연변이체
- 원심분리 단계 동안, 큐벳에 70% 에탄올을 넘칠 때까지 채워 멸균합니다. 에탄올을 채운 큐벳을 생물안전작업대(biosafety cabinet) 내에 10분 동안 그대로 둡니다. 그 후 피펫을 사용하여 ZLM으로 3회 충분히 헹굽니다.
- ZLM으로 3회 세척한 후, 각 세포 펠렛을 2 mL의 ZLM에 다시 현탁하십시오.
- 분광광도계를 다음으로 블랭크 처리하십시오. 600 µL 큐벳에 ZLM을 넣습니다. 큐벳은 멸균할 필요가 없습니다. 큐벳을 따로 둔 뒤, 각 배양물(즉, 균주)을 표준화하기 전에 분광광도계의 바탕값(blank)을 측정하는 데 사용하십시오.
- 한 번에 한 균주씩 작업하며, 옮깁니다. 600 µL 단계 3.5에서 세척한 세포를 단계 3.4.1에서 준비한 멸균 큐벳에 옮기고 초기 OD를 측정합니다.600만약 OD값이600 1 이상이면 3.8단계로 진행하십시오. OD(흡광도)가600 1 미만인 경우, 하위 단계 3.7.1 및 3.7.2를 따르십시오.
- 시작 OD가600 단계 3.7의 측정값이 1 미만인 경우, 큐벳 내부의 모든 배양액을 수집하여 원심분리 튜브에 남아 있는 세척된 시드 세포에 다시 넣고, 단계 3.3과 같이 배양액을 다시 원심분리하십시오. 단계 3.5에서 사용한 것보다 적은 부피(예: 1 mL)로 배양액을 재현탁하여 세포 밀도를 높인 후, 단계 3.7을 반복하십시오.
- 만약 OD(광학 밀도)가600 3.7.1 단계 이후에도 수치가 여전히 1 미만이라면 배양액의 밀도가 충분하지 않은 것이므로, 3.1 단계부터 절차를 다시 시작하십시오. 배양 시간을 더 늘리거나, 하룻밤 배양(overnight culture)을 위한 접종량을 늘려 최종 하룻밤 배양 밀도가 OD 약 1이 되도록 하십시오.600 = 0.5-0.8이며, 이는 단계 3.2에 기술된 바와 같습니다.
- 에 첨가할 ZLM의 부피를 계산하십시오. 600 µL OD 값을 얻기 위해 큐벳 내 세척된 세포의600 다음 식과 OD 값을 사용하여 1의...600 단계 3.7에서 측정된:
ZLM의 부피 (μL) = (초기 OD600 - 1) × 600 μL - 단계 3.8에서 계산된 부피의 ZLM을 단계 3.7에서 준비한 큐벳에 넣고, 피펫팅을 5~10회 하여 잘 섞은 후 OD를 다시 측정하십시오.600.
- OD 값을 조정하십시오600 OD의 5% 이내로600 아래에 나열된 세부 단계에 따라 1을 수행하십시오. 각 조정 시 팁을 너무 많이 사용하는 것을 방지하기 위해, 두 개의 피펫을 사용하되 그중 하나(P1000 크기)는 배양액 혼합 전용으로 사용하십시오.
- 만약 OD 값이600 1 이상이면, ZLM을 한 방울씩 첨가한다 (~50 µL (한 번에 하나씩) 피펫팅으로 5-10회 충분히 섞은 후, OD(광학 밀도)를 측정합니다.600배양액의 OD 값이 목표치의 5% 이내에 도달할 때까지 이 과정을 필요에 따라 반복하십시오.600 = 1.
- 만약 OD(광학 밀도)가600 정규화 과정에서 1 미만으로 떨어지면, 세척된 세포를 더 추가하십시오 (~20 µL (시작 단계) 단계 3.5부터 피펫팅을 5~10회 반복하여 잘 섞어준 뒤, OD를 측정합니다.600필요에 따라 이 과정을 반복하십시오(또는 OD 값이 낮을 경우 단계 3.10.1에 설명된 대로 ZLM을 더 추가하십시오).600 1) 배양액의 OD(광학 밀도) 값이 목표치의 5% 이내에 도달할 때까지 위 과정을 반복합니다.600 = 1.
- 세포 정규화 과정 중 분광광도계 내에서 배양이 넘치는 것을 방지하기 위해, 큐벳의 부피가 약 1.5 mL를 초과하지 않도록 하십시오. 필요한 경우, 희석 시 큐벳에서 배양액을 제거하십시오. 또한, OD 값을 정확하게 측정하는 데 필요한 최소 부피 이상으로 큐벳 내 배양액 부피가 유지되는지 확인하십시오.600 분광광도계를 위해. 대부분의 분광광도계는 최소한 다음이 필요합니다. 600 µL.
- 연구에 포함된 모든 균주와 조건에 대해 세포 정규화 단계(3.6 - 3.10)를 반복하십시오.
- 단계 1에서 설명한 대로 준비한 250 mL 플라스틱 삼각 플라스크에 ZLM 50 mL를 무균적으로 첨가하여 실험에 필요한 총 플라스크 수를 준비하십시오.
- 무균적으로 추가하여 플라스크에 접종합니다. 50 µL OD의600 = 큐벳에서 직접 정규화된 배양액 1을 취하여 최종 OD를 맞춥니다.600 0.001(표준화된 접종원의 1:1000 희석액)의
- Zn 없이 배양된 배양물의 경우2+ 제한(즉, Zn_2+-충분 배지(ZRM)를 추가하고, 30 µL 멸균된 10 mM ZnSO44 (1M 멸균 스톡 용액으로 갓 조제하여) 배양 플라스크에 직접 첨가하여 최종 농도가 다음이 되도록 합니다. 6 µM ZnSO₄4.
- 플라스크를 다음 조건에서 배양하십시오. 37 °C 100 rpm으로 3일 동안 진탕 배양하여 정지기에 도달하게 합니다(접종일을 0일로 함).
- 배양 기간 동안 매일 모노크로메터(monochromator) 또는 필터 기반 마이크로플레이트 리더(microplate reader)를 사용하여 다음의 성장 지표를 측정하십시오. 200 µL 96-웰 평底 마이크로플레이트에 배양하고, 세포가 가라앉지 않도록 분주 직후에 플레이트 판독을 수행하십시오.
참고: 절대 형광 값보다는 비율과 형광 스캔 결과가 더 유용한 정보가 되며, 측정되는 소량의 시료는 플레이트 준비 과정에서 빠르게 상온과 평형을 이루므로 플레이트 리더를 예열할 필요는 없습니다. 덮개에 결로가 생겨 문제가 되는 경우에는 플레이트의 상단 또는 하단에서 형광을 측정할 수 있으나, 하단에서 측정할 때 전반적인 형광 강도 값은 더 낮게 나타납니다.- 세포 밀도 (즉, OD600): OD 값을 보고하기 위해600 마이크로플레이트 리더기에서 얻은 결과값을 사용하여, 설정된 부피(예: 200 µL)를 표준 1 cm 광경로(path length)로 환산합니다.
- 보조인자 F의 형광420 (ex 420 nm/em 475 nm): 필터 기반 마이크로플레이트 리더기의 경우, 가장 유사한 필터 세트(예: ex 430 nm/em 488 nm)와 검은색 96-웰 마이크로플레이트를 사용하십시오.
- 375nm(들뜸 375nm/방출 475nm)에서 배경 형광을 측정하십시오.
- 모노크로메이터를 사용하는 경우, 방출 파장은 475 nm로 고정하고 들뜸 파장 230 - 440 nm 범위에서 5 nm 간격으로 형광 강도 스캔을 수행하십시오.
- 모노크로메터를 사용하는 경우, 다음 식을 이용하여 375 nm 대비 420 nm의 형광 강도 백분율을 계산하십시오.
F375/420 (%) = (F375/F420) x 100
4. 세포 길이 기록 및 측정
- 3일째에 세포 길이를 시각화하고 기록합니다. 보풀 없는 와이프로 유리 슬라이드와 커버글라스를 닦습니다. 배양액 10 µL 한 방울을 슬라이드 위에 피펫으로 떨어뜨리고, 배양액 바로 위에 커버글라스를 덮습니다. 배양액이 퍼져서 커버글라스 아래 전체 영역을 거의 채우도록 커버글라스를 살짝 누릅니다. 건조를 방지하기 위해 슬라이드를 준비한 후 즉시 시각화합니다.
참고: 배양액이 쉽게 퍼지지 않거나 부유물로 인해 접촉이 제대로 되지 않으면, 물의 움직임으로 인해 세포의 초점을 잡기 어려울 수 있습니다. 이 경우 새로운 슬라이드를 준비하십시오. - 100배 오일 침수 렌즈와 10배 접안 렌즈(총 1000배 배율) 및 카메라 부착 장치가 있는 복합 현미경(또는 아래의 DIC 참조)을 사용하여 준비된 슬라이드를 시각화합니다.
참고: 미분 간섭 대비(DIC) 현미경10의 대비를 이용하면 세포를 훨씬 쉽게 관찰할 수 있습니다. 가능하다면 고화질 이미지를 얻기 위해 이 유형의 현미경을 사용하십시오. 일반적인 분석 및 Zn2+ 제한 성장 상태 확인을 위해서는 표준 복합 광학 현미경으로도 충분합니다. - 초점이 맞고, 평면상에 있으며(즉, 세포의 전체 길이가 보임), 움직이지 않는 여러 세포가 있는 슬라이드 영역의 사진을 촬영합니다. 최소 100개의 세포를 측정할 수 있도록 슬라이드의 다양한 영역(또는 동일 배양액의 여러 슬라이드)에서 충분한 사진을 기록합니다.
- 동일한 현미경과 대물렌즈를 사용하여 보정 슬라이드를 촬영합니다.
- Fiji27에서 직선 도구를 사용하여 보정 슬라이드의 길이 방향으로 선을 긋습니다. Analyze > Set scale을 선택하고 스케일 바의 알려진 거리와 단위를 입력합니다. Global을 선택하여 이후의 모든 이미지와 측정에 해당 스케일을 적용합니다.
- 현미경 사진을 엽니다. 직선 도구를 사용하여 세포의 길이를 따라 선을 긋고, 키보드의 M 키를 눌러 세포 길이를 측정합니다. 각 배양액당 최소 100개의 세포를 측정합니다.
- Fiji의 팝업 창에 생성된 길이 데이터를 스프레드시트 소프트웨어에 복사하거나 통계 분석을 위해 쉼표로 구분된 값(.csv) 파일로 저장합니다.
5. Zn 배양을 위한 수정 사항2+제한된 M. tuberculosis (결핵균)
참고: Mtb-H37Rv와 달리 Mtb-Aux는 L-leucine 및 D-pantothenate를 합성할 수 없으므로, 배지에 이러한 보충제를 첨가합니다28. Mtb-Aux를 위한 보충제 첨가는 Zn2+ 제한에 영향을 주지 않으며, 두 균주 모두 ZLM에서 유사한 표현형을 보입니다23. 본 프로토콜은 이전에 발표된 프로토콜23을 수정한 것이며, 주요 차이점은 응집을 줄이고 대식세포 감염과 같은 후속 응용 단계에 필요한 단일 세포 농축을 위해 배양 기간을 10일에서 8일로 단축한 것입니다. 기타 세부적인 차이점에 대해서는 원본 논문을 참조하십시오23. 접종 방법은 M. tuberculosis의 성장을 개시하는 데 훨씬 더 많은 접종량이 필요하기 때문에 M. smegmatis와 다릅니다.
- Mtb-Aux의 경우, 다음을 추가로 보충하십시오. 50 µg/mL L-류신 및 48 µg/mL 모든 배지에 D-판토텐산을 첨가한다. 50 mg/mL L-류신과 48 mg/mL 칼슘 D-판토텐산의 1000배 농축 스톡 용액을 필터 멸균한다. 0.2 µm 여과 후 멸균된 배지에 첨가한다.
- 해동된 글리세롤 스톡 세포 1 mL를 14 mL 라운드 바텀 스냅 캡 튜브(Mtb-Aux의 경우) 또는 50 mL 바이오리액터 튜브(Mtb-H37Rv의 경우)에 담긴 7H9-ADC 4 mL에 무균적으로 첨가하십시오.
- ~에서 배양하십시오. 37 °C 배양이 OD에 도달할 때까지 흔들지 않고600 ~1. 이 과정은 약 1주일이 소요됩니다. 생물안전작업대(biosafety cabinet) 내에서 튜브를 열고 피펫팅을 몇 차례 하여 배양액을 섞어줌으로써 하루에 한 번씩 배양액에 공기를 공급하십시오.
- 250 mL 통기성 플라스틱 플라스크에 담긴 50 mL의 7H9-ADC 배지에 정지 배양액 1 mL를 접종하십시오. 7H9-ADC 내의 50 mL 배양액 하나면 균주 및 조건별(예: ZLM 및 ZRM 내의 야생형)로 생물학적 3반복 실험을 수행하기에 충분합니다. 접종 전 배양액을 5~10분 동안 그대로 두어 세포 덩어리가 튜브 바닥으로 가라앉게 한 뒤 상층액을 취함으로써, 커다란 덩어리(즉, 거대 세포 응집체)가 포함되지 않도록 주의하십시오.
참고: 큰 덩어리 형태로 접종하면 배양물이 뭉쳐서 자라게 되며, 이는 배양 표준화와 재현성에 영향을 미칩니다. - 다음 온도에서 배양하십시오: 37 °C 배양액이 OD에 도달할 때까지 100 rpm으로 진탕하며 배양한다.600 0.5-0.8(대수 증식기 중간 단계). 이 과정은 3-5일이 소요됩니다.
- 배양액을 50 mL 원뿔형 튜브로 옮기고 3,000 x g에서 원심분리하여 세포를 펠렛화한다. g 실온에서 10분 동안 둡니다. 세롤로지컬 피펫으로 40mL를 흡입하여 제거하고, 남은 상층액은 P1000 마이크로피펫으로 제거하여 버립니다.
참고: 이 단계는 Zn을 줄이는 데 매우 중요합니다.2+ 7H9-ADC 배지로부터의 잔류물. - 펠렛을 5 mL의 ZLM에 다시 현탁하고, 원심분리관(conical tube)에 ZLM을 추가하여 전체 배양 부피를 50 mL로 맞춥니다.
- 3,000 x g에서 원심분리를 반복하십시오. g 실온에서 10분 동안 원심분리하여 세포 침전물을 형성합니다. 상층액을 제거합니다. 단계 5.7에 설명된 대로 세포 침전물을 재현탁하여 최종 부피를 50 mL로 맞춥니다.
- OD를 측정하십시오.600 세척된 시드 세포의 농도를 측정하고, 시작 OD 값을 얻는 데 필요한 부피를 계산하십시오.600 다음 식을 사용하여 50 mL 내의 0.05 (Mtb-H37Rv) 또는 0.08 (Mtb-Aux)를:
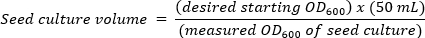
참고: 초기 OD 값에서의 Mtb-Aux 성장600 0.05은 일관성이 없으므로, 더 높은 OD600 일관된 성장을 위해 0.08을 사용합니다. - 단계 5.9에서 계산된 양의 종균 배양액을 새로운 50mL 원심분리관(conical tube)에 분취하고, ZLM을 사용하여 전체 부피를 50mL로 맞춥니다. 세척 및 표준화된 배양액을 원심분리관에서 단계 1에 설명된 대로 준비된 플라스틱 삼각플라스크로 옮깁니다. 각 균주 및 조건의 모든 생물학적 반복 실험에 대해 동일한 원심분리관을 사용하여 이 과정을 반복합니다.
- Zn 없이 배양된 배양물의 경우2+ 제한(예: Zn)2+-충분 배지(ZRM)를 추가하고, 30 µL 멸균된 10 mM ZnSO4의4 배양 플라스크에 직접 첨가하여 최종 농도가 다음이 되도록 합니다. 6 µM ZnSO₄4.
- 배양 플라스크를 다음 조건에서 배양합니다. 37 °C 100 rpm으로 흔들어주며 8일 동안 배양합니다. OD를 측정합니다.600 및 F420 단계 3에 기술된 대로 성장 전 과정 동안 형광을 확인하십시오. 성장 초기 며칠 내에 배양액 내에 덩어리가 형성된 경우(즉, 배양액이 혼탁해 보이지 않고 배양액 전체에 덩어리가 있는 경우) 해당 배양물은 폐기하십시오.
참고: 이상적으로는, 배양 초기 며칠 동안 배양물은 대부분 부유 상태(즉, 육안으로 보이는 커다란 덩어리가 없는 상태)여야 합니다. Mtb 배양물, 특히 ZLM 배양물은 성장이 진행됨에 따라 점차 덩어리지는 경향이 있으며, 대수 증식기 후기에는 배지 표면에 조각 형태로 떠다니는 덩어리가 나타날 것으로 예상됩니다.23.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
~의 생물지표 표현형 M. smegmatis
야생형 M. smegmatis ZLM 배지에서 배양되어 Zn 농도에 도달한 배양물2+-Zn 조건에서 배양된 세포와 비교했을 때, 성장을 제한하는 조건에서는 세 가지 주요 생물지표 표현형이 나타납니다.2+-충분 조건: [1] OD 감소600, [2] 세포의 신장, 그리고 [3] 420 nm에서의 피크 형광 감소. AltRP가 결핍된 돌연변이체(ΔaltRP)은 동일한 Zn을 가지고 있지 않습니다2+야생형과 동일한 -의존적 형태 형성10, 및 Zn에서의 독특한 표현형2+제한 배지는 감별 생물지표로 사용될 수 있습니다. 따라서 세 가지 생물지표 측정값 모두를 먼저 ZRM 및 ZLM에서 배양된 야생형에서 평가해야 합니다....
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
Alt-리보솜의 기계론적 토대에 대한 지식 격차에 대한 주요 기여는 시험관 내에서 Zn2+ 제한 조건을 달성하는 것이 어렵다는 것입니다. 실험실 환경에서 미량 Zn2+ 오염은 일반적입니다. 따라서 재현 가능한 Zn2+ 제한 성장 조건을 달성하는 것은 어렵습니다. Zn2+ 오염은 여러 원인에서 발생할 수 있지만 오염 및 변동성의 가장 중요하고 일반적인 원인은 실험기구를 헹구고 배지를 만드는 데 사용되는 초순수입니다. 초순수 시스템은 적절하게 유지 관리되어야 하며 실험기구를 헹구거나 배지에 물을 사용하기 전에 1분 동안 세척해야 합니다. 초순수로 잘 세척하거나 헹구지 않은 플라스크는 Zn2+ 오염을 일으킬 수 있으며, 이는 특정 플라스크의 세포 밀도가 증가하여 분명하지만 동일한 ZLM 배치의 다른 플라스크는 그렇지 않습니다. 새 플라스크를 사용하여 Zn2+ 오염의 원인이 재사용된 플라스크 또는 매체에...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자에게는 이해 상충이 없습니다.
감사의 글
이 연구는 National Science Foundation (NSF) CAREER Award 1844854, American Lung Association Innovation Award IA -937538 및 National Institute of Health (NIH) NIAID R21 AI109293 to S.P.의 지원을 받았습니다. Allexa D. Burger의 현재 주소는 하와이 호놀룰루, 마노아에있는 하와이 대학교의 Pacific Biosciences Research Center입니다. 미국.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1000 mL 진공 여과 시스템, 표준 라인 | VWR | 10040-440 | |
| 125 mL Erlenmeyer Shaker Flasks | Greiner Bio-One | 679501 | |
| 14 mL 배양 튜브, 플라스틱, 이중 위치 캡 포함 | VWR | 60818-725 | |
| 250 mL Erlenmeyer Shaker Flasks | Greiner Bio-One | 679502 | |
| 40X-1000X Lab Binocular Biological Compound 현미경 | Omax | M82EZ | |
| 50 mL 바이오 반응 튜브, 멸균 | VWR | 76211-286 | |
| 플래그 캡이 있는 50 mL 고성능 원심분리기 튜브 | VWR | 89039-656 | |
| Alcojet 저발포 분말 세제 | Alconox | 1404 | |
| 암모늄 철 (III) 시트레이트, 갈색 | Thermo Scientific | AAA1119930 | MW: 265 g/mol, 1M 해결책의 경우 5 mL 초순수에 1.325 g를 추가하십시오; 4 C에 빛에서 보호된 상점 |
| 소 혈청 알부민 | Thermo Scientific | J10857-A1 | |
| 칼슘 D-판토텐산 | Thermo Scientific | AC243300050 | |
| 카탈라아제 | 시그마-알드리치 | C1345-10G | |
| 무수 구연산, 결정질 | Fisher Scientific | BP339-500 | |
| 포도당 무수 | Fisher Scientific | D14-500 | |
| Difco Middlebrook 7H9 Broth | BD Diagnostics | 271310 | |
| 세포 밀도 및 Bradford 분석 측정을 위한 DiluPhotometer OD600 | Implen | OD600-10 | |
| GENios FL 마이크로플레이트 리더 | Tecan | 단종 | |
| 세롤 | Fisher Scientific | G33-4 | |
| Infinite M200 PRO 다중 모드 마이크로플레이트 리더 | Tecan | LGE140213-20BL | |
| L-아스파라긴 | 써모 사이언티픽 | AAB2147336 | |
| L-Leucine | Thermo Scientific | A1231122 | |
| Macrofire SP CCD 카메라 | 옵트로닉스 | 올림푸스 현미경과 함께 사용 | |
| : 황산 마그네슘 헵타 하이드레이트 | VWR | 97062-134 | |
| Milli-Q Direct 8 정수 시스템 | Millipore | C85358 | |
| Moticam X3 | Motic | 제품 생산 중단, Moticam X5 Plus로 대체되었습니다. 복합 현미경과 함께 사용 | |
| Oleic acid | Thermo Scientific | 031997-14 | |
| Olympus BX51 정립 현미경 | Olympus | 단종, BX53M | |
| 인산칼륨, 단염기 | 성 Fisher Scientific | BP362-500 | |
| Semi-Micro 양면 일회용 플라스틱 큐벳 | VWR | 97000-590 | |
| 염화나트륨, 크리스탈 | VWR VW1494-01 | ||
| 수산화나트륨 | Fisher Scientific | S318-500 | |
| 트윈 80 | MP Biomedicals | 103170 | |
| 황화아연 헵타하이드레이트, 결정질/ACS | MP 바이오메디컬 | 219145290 |
참고문헌
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
