여기에서는 신경 장애에 대한 microRNA(miRNA) 바이오마커의 공급원으로 작은 세포외 소포체를 얻기 위해 최소량의 신선 냉동 뇌 조직 절편과 크기 배제 크로마토그래피와 결합된 접근 가능한 고속 원심분리 방법을 사용하여 프로토콜을 구축합니다.
이 논문에서
요약
초록
작은 세포외 소포체(sEV)는 세포-세포 통신의 중요한 매개체로, 단백질, 지질, 핵산(microRNA, mRNA, DNA)과 같은 다양한 화물을 운반합니다. microRNA sEV 화물은 생물학적 장벽(예: 혈액-뇌 장벽)을 통과하고 다양한 체액을 통해 접근할 수 있는 sEV의 능력으로 인해 강력한 비침습적 질병 바이오마커로서 잠재적인 유용성을 가지고 있습니다. 체액의 sEV 바이오마커에 대한 수많은 연구에도 불구하고 조직 또는 세포 특이적 sEV 하위 집단을 식별하는 것은 특히 뇌에서 여전히 어려운 일입니다. 우리의 연구는 크기 배제 크로마토그래피(SEC)를 사용하여 최소량의 동결된 인간 뇌 절편에서 sEV를 분리하는 기존 방법을 조정하여 이 문제를 해결합니다.
윤리적 승인 후, 약 250μg의 신선 냉동 인간 뇌 조직(Manchester Brain Bank [UK]에서 획득)을 3개의 공여자 조직에서 절편화하고 콜라겐분해효소 유형 3/Hibernate-E 용액에서 중간 교반한 후 연속 원심분리 및 여과 단계로 배양했습니다. 그런 다음, SEC 공법을 이용하여 sEV를 분리하고, MISEV 가이드라인에 따라 특성화하였다. 이러한 sEV 내에서 RNA를 분리하기 전에 용액을 Proteinase-K 및 RNase-A로 처리하여 non-sEV 세포외 RNA를 제거했습니다. RNA의 양과 질은 qPCR 및 small RNA 염기서열분석 실험을 위해 추가로 확인 및 처리되었습니다.
sEV의 존재는 형광 나노입자 추적 분석(fNTA) 및 표면 마커에 대한 웨스턴 블롯(CD9, CD63, CD81)을 통해 확인되었습니다. 크기 분포 (50-200 nm)는 NTA와 전자 현미경으로 확인되었다. 용해된 sEV 내 총 RNA 농도는 3-9ng/μL 범위였으며 선택된 후보 microRNA에 대한 qPCR에 의한 성공적인 정량화에 사용되었습니다. MiSeq에 대한 Small RNA 염기서열분석은 샘플당 140만-500만 번의 판독으로 고품질 데이터(Q >32)를 제공했습니다.
이 방법은 최소한의 뇌 조직 부피에서 sEV를 효율적으로 분리하고 특성화하여 비침습적 바이오마커 연구를 촉진하고 공평한 질병 바이오마커 연구를 약속하여 신경퇴행성 질환 및 잠재적으로 다른 장애에 대한 통찰력을 제공합니다.
서론
세포외 소포체(EV)는 모든 다세포 유기체에서 세포 간 통신의 핵심 역할을 하는 것 중 하나입니다1. EV는 단백질, 지질 및 핵산과 같은 다양한 화물 하중을 수용 세포로 쉽게 전달할 수 있는 세포 유래 지질 이중막 입자입니다. EV는 30nm에서 최대 1μM에 이르는 광범위한 크기 범위를 가질 수 있습니다. 평균 직경 크기가 <200nm인 지질 결합 소포로 정의되는 소형 EV(sEV)는 혈액-뇌 장벽을 통과할 수 있는 능력이 있습니다. 따라서 그들은 신경퇴행성 질환 및 알츠하이머병(AD), 전두측두엽 치매(FTD), 파킨슨병(PD) 및 암과 같은 기타 상태의 프리온과 같은 확산 및 악화에 연루되어 있습니다 2,3. 또한 sEV는 혈액, 뇌척수액(CSF), 타액 및 소변과 같은 다양한 생체 유체에서 발견될 수 있으므로 바이오마커 및 비침습적 진단 분야에 걸쳐 유익한 용도로 사용할 수 있습니다. 예를 들어, 알츠하이머병 연구는 타우/Aβ 또는 Aβ42/Aβ404와 같은 생체 유체 병원성 단백질 비율의 사용을 지적할 수 있습니다.
sEV의 알려진 화물 중 하나는 microRNA(miRNA)로, mRNA의 3'-UTR 영역에 결합하고 일반적으로 단백질 발현을 부정적으로 조절하는 약 22개의 뉴클레오티드 길이로 구성된 작은 비암호화 RNA 분자 그룹입니다. 많은 세포질 역할에 관여하는 miRNA는 또한 암 및 신경 퇴행성 질환을 포함한 다양한 질병의 발병기전과 관련이 있습니다. Cheng 등은 알츠하이머병 환자의 혈청 유래 sEV miRNA 발현 서명에 대한 고처리량 염기서열분석 분석을 수행했습니다5. 신경영상 기록 및 연령, 성별 및 APOE ε4 대립유전자 발현에 대한 알려진 위험 요인과 결합하면 87%의 민감도와 77%의 특이도로 AD를 예측하는 것으로 나타났습니다. 또한, 연구에서는 잠재적으로 초기 PD6을 진단할 수 있는 2개의 상향 조절된 CSF miRNA(miR-151a-3p, let-7f-5p)와 3개의 하향 조절된 miRNA(miR-27a-3p, miR-125a-5p 및 miR-423-5p)를 확인했습니다. 병리학적 질환의 경우 병리학적 상태가 질병의 특정 특징적인 증상보다 선행할 수 있는 반면, 신경퇴행에서는 병리학적 특징의 축적이 인지 기능 저하보다 훨씬 일찍 발생합니다.
MicroRNA는 다양한 기능과 고차원의 후성유전학적 조절로 인해 단백질보다 잠재적으로 더 효과적인 바이오마커입니다. 연구자들은 뇌 조직을 사용하여 질병 및 그 아형에 대한 특정 뇌 유래 sEV(BDsEV) miRNA 서명을 잠재적으로 식별할 수 있습니다. 예를 들어, 뉴런 및 신경교 마커가 있는 sEV는 서로 다른 miRNA 화물을 나타낼 수 있으며, 이를 통해 보다 정확한 질병 검출 방법을 얻을 수 있습니다. 또한, BDsEV는 신경병원성 단백질의 시냅스 횡단 확산에 큰 역할을 하는 것으로 제안됨7. 이전 보고서에서는 갓 동결된 뇌 조직에서 sEV를 얻기 위해 면역침전 및 밀도 구배(자당 구배) 초원심분리를 제안했습니다 8,9. 그러나 이러한 접근 방식에는 고품질 sEV 샘플을 얻기 위해 초원심분리기 및 다운스트림 정제 방법을 갖춘 특정 인프라가 필요합니다10. 보다 최근의 보고서에서는 접근 방식 11,12,13에 대한 몇 가지 수정 및 개선을 제안했습니다. 그러나 그럼에도 불구하고 인간 조직에서 sEV 유래 microRNA의 분리 및 연구는 여전히 널리 적용되지 않습니다. 이 프로토콜에 설명된 접근 방식은 이 기술에 대한 접근성을 향상시키기 위해 뇌 유래 sEV 연구를 위한 정제된 단계별 프로토콜을 제공하는 것을 목표로 합니다. 우리는 최소한의 뇌 조직을 사용하여 프로토콜을 수립했으며, 여기서 크기 배제 크로마토그래피를 사용하여 순수한 sEV를 분리하고 이러한 sEV의 microRNA 화물에서 고품질 차세대 염기서열분석 데이터를 보여주었습니다.
프로토콜
이 작업은 Manchester Brain Bank(REC 참조 09/H0906/52)와 University of Salford의 윤리 위원회(응용 프로그램 ID: 3408)에 의해 윤리적으로 승인되었습니다.
1. 동결된 뇌 조직 절편에 콜라겐분해효소를 이용한 세포내 기질의 분해
- 멸균된 메스를 사용하여 250mg의 냉동 뇌 조직(약 0.4mm 두께의 조각)을 냉각판에 얇게 자르고 75U/mL 콜라겐분해효소 III형/동면산-E 용액 2mL를 추가합니다.
- 각 샘플을 37°C의 수조에서 20분 동안 배양합니다. 5분 지점에서 각 샘플을 두 번 뒤집어 혼합합니다. 10분 시점에서 10mL 일회용 플라스틱 스트라이프를 사용하여 각 샘플을 세 번 부드럽게 피펫팅합니다.
- 각 샘플을 얼음 위에 놓고 1x 프로테아제 억제제 칵테일과 1x 인산가수분해효소 억제제를 첨가합니다. 이것은 효소 반응을 멈추고 콜라겐 분해 효소 III형을 사용한 분해의 종말점입니다.
- 각 뇌 조직 샘플을 300x g 에서 4°C에서 10분 동안 원심분리합니다. 각 상층액과 추가 원심분리기를 2000 x g 에서 4°C에서 15분 동안 수집합니다.
- 각 상층액을 다시 모으고 0.22μm 필터를 통해 여과합니다. 각 여과액을 10,000 x g 에서 4°C에서 48분 동안 여과합니다.
- 상층액을 수집하고 각 샘플에 2:1의 비율로 침전 버퍼를 추가합니다. 4 °C에서 밤새 배양하십시오.
- 각 시료를 10,000 x g 에서 4°C에서 96분 동안 원심분리하고 펠릿을 100μL의 세포외 소포체(EV)가 없는 PBS에 재현탁합니다.
2. 크기 배제 크로마토그래피 컬럼 준비
- 사용하기 전에 사전 준비된 SEC 컬럼을 실온(RT)에서 15분 동안 평형을 이룹니다.
알림: 나사 캡보다 먼저 하단 캡을 제거해야 합니다. - 평형 조정 후 컬럼 상단에서 방부제 버퍼를 제거하고 250μL의 EV-free PBS를 사용하여 컬럼을 두 번 세척합니다. 각 PBS 세척은 중력을 통해 컬럼으로 들어가도록 남아 있습니다.
3. 크기 배제 크로마토그래피를 사용한 작은 세포외 소포의 분리
- 재현탁된 펠릿을 SEC 컬럼 상단에 추가하고 50 x g 에서 30초 동안 컬럼을 원심분리합니다. 플로우 스루를 폐기합니다.
- 180μL의 EV-free PBS를 SEC 컬럼 상단에 추가하고 50 x g 에서 컬럼을 1분 동안 원심분리하여 뇌에서 유래한 sEV가 컬럼에서 용리되도록 합니다.
참고: 위에서 자세히 설명한 프로토콜 부분은 그림 1에 요약되어 있습니다.
4. 웨스턴 블로팅(western blotting)에 의한 작은 세포외 소포 마커 확인
- 웨스턴 블롯 분석 전에 sEV를 용해하려면(모든 멤브레인 및 세포질 화물이 분석되었는지 확인하기 위해), 분리된 sEV 샘플을 용해 및 추출 완충액(1x 프로테아제 억제제 및 1x 인산가수분해효소 억제제)에서 1:1로 희석합니다.
- 샘플을 4°C에서 30분 동안 교반합니다.
- 14,000 x g 에서 15분 동안 원심분리기 시료
- 단백질 상층액을 수집하고 단백질 분석 키트를 사용하여 단백질 농도를 측정합니다.
- 시료를 4x Laemmli 완충액과 혼합하고 사전 염색된 단백질 래더에 대해 각 웰에 20μg의 단백질을 로드합니다.
- 분해되면 단백질을 0.45μm 니트로셀룰로오스 멤브레인으로 옮깁니다. 이식 후 5% BSA에서 2시간 동안 멤브레인을 차단합니다.
- 1차 항체로 멤브레인을 밤새 배양합니다(표 1).
- 세척 완충액(PBS의 경우 1% Tween20)으로 멤브레인을 세 번 세척하고 항마우스 2차 항체를 사용하여 염색합니다. 그 후, 세척 버퍼(PBS의 경우 1% Tween20)로 3회 세척합니다.
- 블롯을 이미징하기 전에 원고에서 위의 단계를 따르십시오.
- 양고추냉이 과산화효소(HRP) 기질을 사용한 이미지.
5. 나노입자 추적 분석(NTA)을 통한 작은 세포외 소포체 확인
- NTA를 수행하여 샘플에 있는 모든 입자의 농도와 크기를 분석합니다. PBS의 각 샘플을 1:1000의 희석 계수로 희석하여 이를 수행합니다.
- 샘플을 NTA 기기에 주입하고 550nm의 파장에서 샘플을 판독합니다. 이 단계에서 입자 수량을 사용하여 MISEV 지침에서 권장하는 대로 입자당 단백질의 양(일반적으로 펨토그램으로 표시)을 측정합니다.
- 다음으로, 형광 NTA의 경우 PBS에서 1:1000의 희석 계수로 희석된 세포 마스크 오렌지(CMO)(샘플 내의 모든 생물학적 입자 염색)를 수행합니다. 이로부터 sEV 시료를 이용하여 CMO 염료를 1:10의 희석계수로 희석한다 - 이 희석 단계를 4°C에서 30분간 암흑 속에서 배양한다.
- PBS를 사용하여 두 번째 CMO 희석액을 1:1000의 희석 계수로 희석합니다.
참고: CMO 염료의 최종 희석은 1:10 000 000이어야 합니다. - NTA 기기를 사용하여 550nm의 파장에서 각 sEV 샘플의 CMO를 판독합니다.
- 테트라스파닌 형광 항체( 재료 표 참조)의 경우 먼저 각 항체를 PBS에 1:10의 희석 계수로 희석합니다. 이로부터 sEV 시료를 이용하여 각 염료를 1:10의 희석계수로 희석하고, 4°C에서 2시간 동안 암흑 속에서 희석 단계를 배양한다.
- PBS를 사용하여 두 번째 항체 희석액을 1:1000의 희석 계수로 희석합니다.
참고: 각 테트라스파닌 항체의 최종 희석량은 1:100 000이어야 합니다. - NTA 기기를 사용하여 550nm 파장에서 sEV 샘플의 형광 항체 판독값을 읽습니다.
6. 투과전자현미경(TEM)에 의한 작은 세포외 소포체 확인
참고: 이 프로토콜은 리버풀 대학의 생체 의학 현미경 시설에서 수행했습니다.
- 먼저 글루타르알데히드를 사용하여 sEV 샘플을 수정하고 우라닐 아세테이트를 사용하여 염색합니다.
- 등급이 매겨진 일련의 알코올을 통해 TEM에 사용할 수 있는 샘플을 탈수합니다.
- 적절한 투과 전자 현미경을 사용한 이미지 샘플.
7. Proteinase K 및 RNase A 처리
- 50 μL의 분리된 뇌 유래EV에 1 μL의 20 μg/μL proteinase K를 첨가하고 37 °C에서 30분 동안 배양합니다.
- 1x proteinase inhibitor cocktail을 첨가하여 각 반응을 중지하고 얼음에서 10분 동안 배양합니다.
- 배양 후 각 샘플에 10 μg/μL RNase A 1 μL를 추가하고 37 °C에서 30분 동안 추가로 배양합니다.
참고: 즉시 섹션 8로 이동합니다.
8. 작은 세포외 소포체에서 총 RNA 분리
- 전체 RNA를 분리하려면 50μL의 뇌 유래 EV(BDsEV) 샘플에 700μL의 고품질 RNA 회수 용해 시약을 추가합니다. 각 샘플을 1시간 동안 교반합니다.
- 클로로포름 140μL를 추가하고 각 샘플을 20초 동안 세게 흔든 다음 RT에서 3분 동안 배양합니다.
- 12,000 x g 에서 4°C에서 15분 동안 시료를 원심분리하고 시료에서 계면을 수집합니다. 100% 에탄올의 1.5배 부피를 추가합니다.
- 700μL의 계기/에탄올 혼합물 RNA 분리 컬럼을 추가하고 ≥8000 x g 에서 실온에서 15초 동안 원심분리합니다.
참고: 모든 계기/에탄올 샘플을 사용하여 이 단계를 반복합니다. - 컬럼에 700μL의 세척 버퍼를 추가하고 ≥8000 x g 에서 15초 동안 원심분리합니다. 플로우 스루를 폐기합니다.
- 500μL의 완충액 RPE를 추가하고 ≥8000 x g 에서 15초 동안 다시 원심분리합니다. 플로우 스루를 폐기합니다.
- 500μL의 80% 에탄올을 넣고 ≥8000 x g 에서 2분 동안 원심분리합니다. 플로우 스루를 폐기합니다.
- 이 시점에서 뚜껑을 연 상태에서 5분 동안 최대 속도(>8000 x g)로 컬럼을 원심분리하여 컬럼 멤브레인을 건조시킵니다.
- 컬럼을 새 수집 튜브로 옮기고, 14μL의 RNase-free 물을 컬럼 멤브레인에 직접 첨가하고, ≥8000 x g 에서 1분 동안 원심분리하여 BDsEV에서 총 RNA를 용리합니다.
- miRNA 정량화 분석 키트를 사용하여 샘플로 전체 microRNA를 정량화하고, 정량화 형광측정기에서 샘플을 측정하고 miRNA 분석 유형을 선택합니다.
9. 작은 RNA 시퀀싱
- 시료 내 miRNA를 정량화한 후 Small RNA-Seq Library Prep Kit를 사용하여 cDNA 라이브러리를 합성합니다.
참고: 이 프로토콜을 사용하여 라이브러리 생성에는 3' 어댑터 ligation, purification, 5' adapter ligation 및 reverse transcription의 4단계가 포함되었으며, 최종적으로 RNA/cDNA 라이브러리가 형성됩니다. 라이브러리 생성 후, 종말점 PCR 증폭은 인덱스 프라이머가 추가되면서(멀티플렉싱 목적으로 사용됨) 발생하며, 그 후 샘플이 정제됩니다. - RNA 품질을 테스트하려면 각 제제의 크기와 피크 강도를 자세히 설명하는 품질 관리 응용 프로그램 분석을 사용하십시오.
- DNA 농도를 테스트하려면 dsDNA 분석 유형을 선택하여 정량화 형광계에서 DNA 정량화를 측정합니다.
- 시약 키트를 사용하여 Small RNA Seq에 대한 샘플을 준비한 후 샘플을 플로우 셀(flow cell)에 로드합니다.
결과
BDsEV의 존재를 확인하기 위해 웨스턴 블로팅(western blotting), NTA 및 TEM의 세 가지 기술이 사용되었습니다(그림 3). 웨스턴 블롯 결과(그림 3A 및 보충 파일 1)는 5개의 양성 마커(CD9, CD63, CD81, Flot-1 및 TSG101)가 모두 존재하고 sEV(음성 대조군으로 사용됨)에 Calnexin이 없음을 보여 세포 내용물에 대한 오염이 없음을 확인합니다. 예상대로 뇌 균질체(BH)는 테스트된 마커에 대한 sEV에서 관찰된 것보다 더 많은 단백질을 보여줍니다. TEM 이미지는 BDsEV의 형태와 샘플 내 상대적 크기를 확인했으며(그림 3B), 이는 나노 입자 추적 분석(그림 3C)을 통해 추가로 확인되었습니다.
그림 3C (상단 패널)는 50-200nm 사이의 분리된 입자 크기를 보여줍니다. NTA 데이터에서 산란 결과를 표시된 입자의 100%로 취하면 CMO는 지질 이중층을 갖는 입자(그림 3C, 하단 패널)의 약 52.35%를 나타냅니다. 이러한 CMO 염색 입자 중 34.66%는 CD9, 15.49%는 CD63, 12.01%는 CD81을 함유했습니다. NTA 제어 데이터에 대해서는 보충 파일 2 를 참조하십시오.
분리된 RNA의 정량화 데이터(표 2)는 3.24-8.76(ng/μL) 범위의 수준을 보여주며, 이는 cDNA 라이브러리를 생성할 때 정규화된 값입니다. TapeStation 분석 결과(그림 4)는 약 120-160 bp의 주요 피크를 보여주며, 이보다 낮은 피크는 약 50 bp이고 다른 작은 피크는 약 484 bp입니다.
차세대 염기서열분석 데이터에 대한 품질 검사는 어댑터 트리밍 후 매우 높은 품질의 판독을 보여줍니다(그림 5A). 모든 염기서열 위치는 >30의 Phred 점수를 나타내며, 이는 1000개의 뉴클레오티드 중 1개 미만의 오류율을 나타냅니다. 그림 5B 는 대부분의 염기서열이 약 21-22 bp임을 보여주며, 이는 microRNA의 예상 크기 범위와 일치합니다. Samtools 플래그스타트 분석 바이오툴을 사용하여 추가 다운스트림 매핑(BowTie2 사용)을 통해 1,304,100개의 정렬된 염기서열 중 1,116,264개(85%)가 인간 게놈의 microRNA 영역(빌드 hg38; 표 3).
총 miRNA 중 808개의 miRNA가 3개의 샘플 모두를 통해 발현되었으며, 3개의 샘플 모두에서 344개의 miRNA가 공유되고(~43%), 대조군 1과 대조군 2에서 5개가 공유되고, 대조군 1과 대조군 3에서 183개가 공유되고, 대조군 2와 대조군 3에서 16개가 공유되었습니다(그림 6). 이 데이터에서 세 가지 BDsEV 모두에서 가장 많이 발현된 miRNA는 has-let-7b-5p, has-miR-143-3p, has-miR-30a-5p, has-miR-221-3p 및 has-let7i-5p입니다. 마찬가지로, BDsEV 샘플(판독 >10)에서 가장 적게 차등적으로 발현된 상위 5개의 miRNA는 has-miR-128-2-5p, has-miR-182-5p, has-miR-193b-5p, has-miR-448 및 has-miR-505-3p입니다. 모든 원시 및 정규화된 읽기 횟수는 보충 파일 3에 제공됩니다.
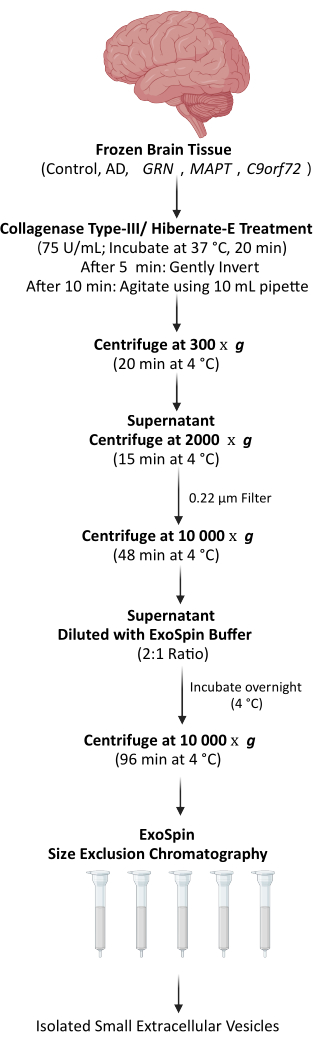
그림 1: 조직 처리 워크플로우. 이 그림은 크기 배제 크로마토그래피를 사용하여 신선 냉동 뇌 절편에서 뇌 유래 sEV(BDsEV)를 분리하는 단계별 프로세스를 보여줍니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
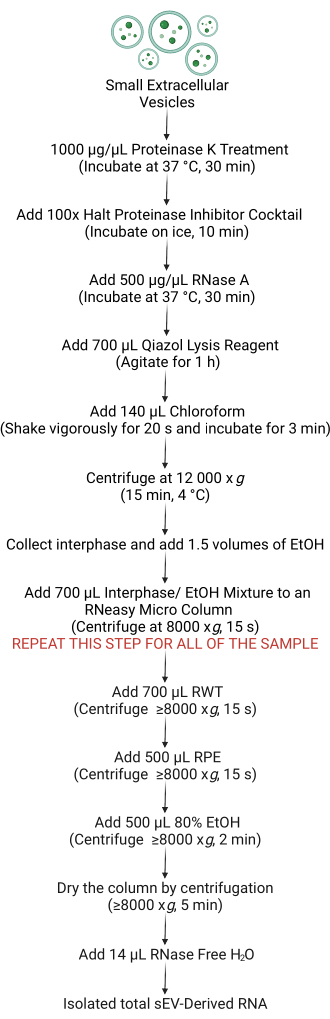
그림 2: BDsEV의 RNA 분리 워크플로우. 이 그림은 proteinase K 및 RNase A를 사용하여 세포외 RNA를 제거하는 전처리 단계를 포함하여 BDsEVs에서 total RNA를 분리하는 단계적 프로세스를 보여줍니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
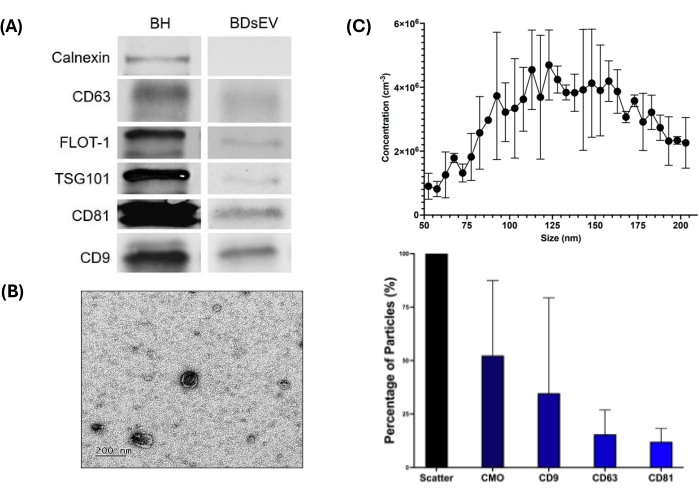
그림 3: BDsEV 특성화 워크플로우. 이 그림은 BDsEV를 특성화하는 다양한 방법을 보여줍니다. (A) sEV 특이적 단백질 마커를 검출하기 위한 웨스턴 블롯. BH 뇌 균질화. Calnexin은 sEV에 대한 음성 대조군으로, sEV의 부재 및 BH의 존재는 sEV 시료의 순도를 확인합니다. 다른 마커의 경우, 예상대로 단백질 양은 sEV 샘플보다 BH에서 더 높습니다(웰당 20μg의 단백질이 로드됨). (B) 200μM 스케일의 BDsEV에 대한 대표 투과 전자 현미경(TEM) 이미지로, 지질 이중층 막으로 예상되는 형태를 확인합니다. (C) 모든 입자에 대한 나노 입자 추적 분석(NTA)을 위한 크기 분포 플롯(상단 패널). 각 데이터 점은 3개의 반복실험에 걸친 변동을 나타냅니다. 생물학적 입자(sEV)에 대한 정규화된 비율 및 특정 표면 마커(하단 패널)에 대한 상대적 비율(3중 웰의 평균 ± SEM으로 표시된 데이터(n = 3)). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
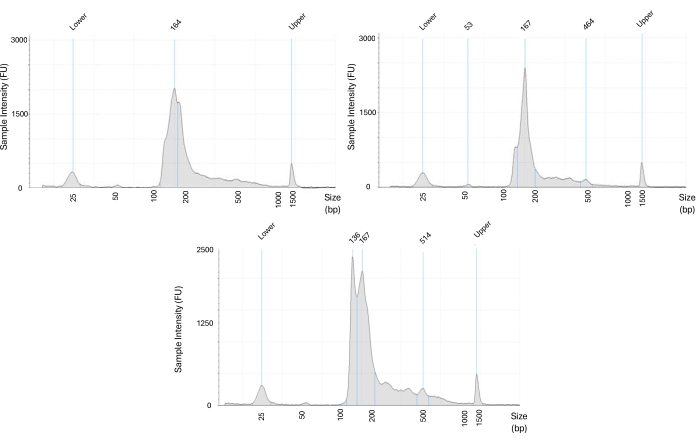
그림 4: cDNA 라이브러리 준비를 위한 품질 검사. cDNA 라이브러리 전처리 후 개별 샘플에 대한 Tapestation 분석. 각 그래프에 표시된 피크는 각 준비의 크기(가로 축, bp)와 각 피크의 각 강도(세로 축, FU)를 표시합니다. 그림에서 볼 수 있듯이 예상되는 small RNA library는 약 120-160bp에서 최고조에 달합니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
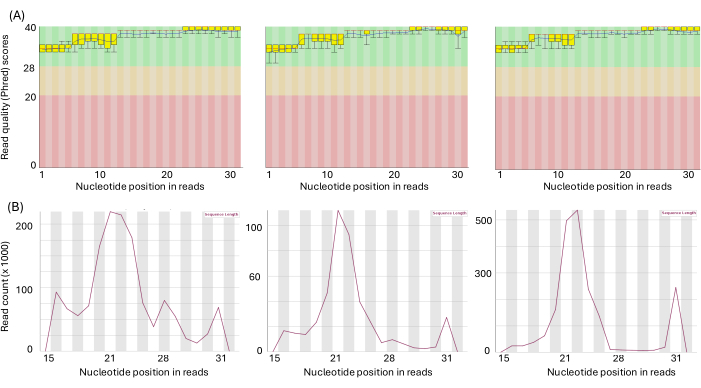
그림 5: miRnome 염기서열분석에 대한 품질 검사. (A) 어댑터 트리밍 후 개별 샘플의 판독 품질에 대한 FASTQC 플롯. 가로축은 뉴클레오티드 위치를 나타내고, 세로축은 Phred 점수를 나타냅니다. 각 위치에 대한 상자 그림은 각 위치에 대한 모든 읽기에 걸친 Phred 점수의 분포를 보여줍니다. 녹색 영역 내의 모든 분포는 고품질 샘플 준비를 암시하는 매우 높은 품질의 데이터(>Q30)를 확인합니다. (B) 각 샘플에 대한 염기서열 길이 분포는 세 샘플 모두에 대해 대부분의 판독이 약 21-22개의 뉴클레오티드(microRNA의 예상 크기 범위)임을 보여줍니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
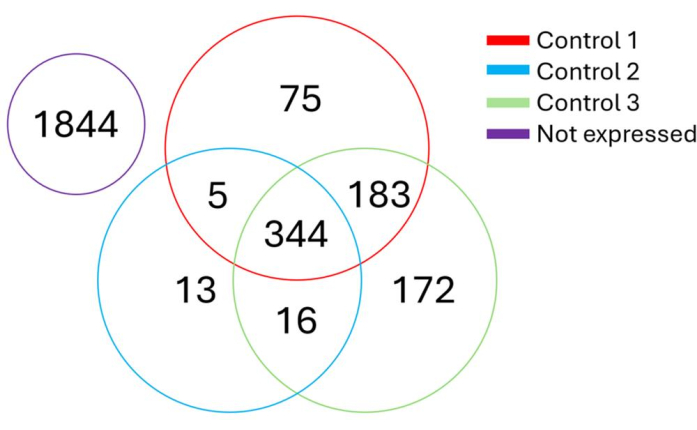
그림 6: 모든 샘플에서 MicroRNA 발현의 중복. 각 샘플에서 검출된 miRNA의 수(판독 횟수 ≥ 10)와 하나 이상의 샘플에서 공유되는 특정 microRNA가 벤 다이어그램에 나와 있습니다. 모든 원시 및 정규화된 읽기는 보충 파일 3에 표시됩니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 항체 에피토프 | 항체의 희석 인자 |
| 마우스 Anti-CD9 | 1:2000 |
| 마우스 안티 CD63 | 1:2000 |
| 마우스 안티-CD81 | 1:2000 |
| 마우스 안티 플로틸린 1 | 1:2000 |
| 마우스 안티-TSG101 | 1:1000 |
| 마우스 안티 칼넥신 | 1:10 000 |
| Anti-mouse 2차 항체 | 1:3000 |
표 1: BDsEV의 특성화에 사용되는 항체 에피토프 및 각각의 희석 인자.
| 견본 | miRNA 농도 (ng/μL) |
| 1 | 8.76 |
| 2 | 3.24 |
| 3 | 5.33 |
표 2: 분리된 RNA의 정량화 데이터.
| 견본 | 정렬된 시퀀스 | 매핑된 miRNA | 백분율(%) |
| 대조 시료 1 | 1 444 665 | 1 133 437 | 78.46 |
| 대조 시료 2 | 442 808 | 381 631 | 86.18 |
| 대조 샘플 3 | 2 024 828 | 1 983 726 | 97.97 |
| 평균의 | 1 304 100.33 | 1 166 264.67 | 89.43 |
표 3: 정렬되고 성공적으로 매핑된 miRNA 염기서열의 양.
보충 파일 1: 보충 웨스턴 블롯 분석 데이터. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 2: 보충 NTA 제어 데이터. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 3: miRNA 발현 분석의 원시 및 정규화된 판독 횟수. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 파일 4: 보충 단백질 농도 데이터. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
뇌에서 유래한 작은 세포외 소포체와 그 microRNA 화물을 분리하기 위한 이 수정 및 개선된 프로토콜은 다운스트림 제품의 품질과 수량을 손상시키지 않으면서 최소한의 조직을 사용할 수 있는 가능성을 보여줍니다. 바이오마커 발견 분야에서, 세포 및 조직 유형에 특이적인 분자 식별자를 식별하면 체액을 사용하는 비침습적 진단 테스트의 보다 접근하기 쉬운 수단으로 이어질 수 있습니다. 또한, 여기에 설명된 접근 방식은 다양한 세포 유형(신경 조직 대 신경교세포 조직), 조직 유형(해마 조직 대 전전두엽 피질 조직) 및 생체 유체 내에서 특정 sEV 하위 집단을 식별하기 위한 프레임워크를 제공하며, 이를 통해 화물 적재 신호, 병태 생리학 및 질병 범위에 대한 더 큰 이해를 제공할 것입니다. 이전에 Vella 등에서 개략적으로 설명한 바와 같이, 밀도 구배 초원심분리(최대 180,000 x g의 속도 사용)8와 함께 BDsEV 분리에 450mg에서 1g을 사용해야 한다고 제안되었습니다. 이 방법론에서는 더 적은 양(>50% 감소)의 신선 냉동 뇌 조직 샘플(250-450mg)을 사용하여 sEV를 성공적으로 분리했습니다. sEV를 분리하는 데 사용되는 뇌 조직의 양이 감소하면 비용과 소모품이 줄어듭니다. 마찬가지로, 초원심분리(180,000 x g) 대신 고속 원심분리(10,000 x g)와 결합된 SEC의 적용을 통해 프로토콜에 더 쉽게 접근할 수 있게 되었습니다.
fNTA와 TEM을 사용하여 sEV의 크기 범위 프로파일이 MISEV 지침13,14에서 권장하는 특성적인 30-200nm 크기 범위 내에 속한다는 것을 확인했으며, TEM은 얻은 sEV의 형태학적 확인을 제공합니다. 그림 3C 및 보충 파일 4에서 볼 수 있듯이 입자의 >87%는 <250nm 크기 범위이며 샘플은 평균적으로 10.56fg protein/BDsEV를 나타냅니다. 작은 세포외 소포체의 특정 종은 크기와 모양이 다양하며, 엑소좀과 같은 특징적으로 더 작은 하위 개체군은 생물 발생의 특성으로 인해 불규칙한 구조를 가지고 있다고 하는 미세소포에 비해 균일한 형태를 갖는 것으로 관찰됩니다15. fNTA의 경우, 산란 판독값(520nm)을 생성하여 샘플의 총 입자를 분석하여 크기 프로필 및 농도에 대한 세부 정보를 제공했습니다. 판독 값에 따르면 입자의 50% 이상이 생물학적(CMO 염색을 통해)이었으며, 테트라스파닌 마커를 표시하는 sEV의 크기 범위에 속하는 생물학적 입자 집단이 있었으며, 대조군 샘플에서 CD9(34.66%)가 가장 우세했습니다. 반면, 웨스턴 블로팅의 경우, 특징적인 막과 세포질 단백질 화물의 존재는 sEV의 존재에 대한 증거를 제공했으며, Calnexin의 부재는 BDsEV에 세포 오염이 없음을 확인했습니다. 다운스트림 처리에 사용할 수 있는 miRNA가 다른 세포외 RNA가 아닌 sEV 화물의 일부임을 추가로 확인하기 위해 sEV를 Proteinase K 및 RNase A 효소로 처리한 후 sEV 막을 파괴하여 BDsEV 외부의 세포외 공간에 외부에 존재하는 단백질과 RNA를 분해했습니다16.
sEV에서 총 RNA를 추출하고 qRT-PCR 및 차세대 염기서열분석(소형 RNA용)과 같은 다운스트림 애플리케이션을 위해 준비했습니다. 품질 관리 분석을 사용한 표준 검사는 염기서열분석이 가능한 고품질 샘플과 cDNA 라이브러리를 보여주었습니다. cDNA 라이브러리는 약 120-160 bp에서 피크를 이루며, 이는 다양한 길이의 어댑터 서열을 가진 miRNA 유래 cDNA 피크에 기인하며, 더 작은 피크는 어댑터 이량체를 나타낼 수 있습니다.
FASTQC 및 CutAdapt를 사용한 차세대 염기서열분석 데이터를 분석하면 BDsEV miRNA에서 얻은 고품질 결과를 확인할 수 있습니다. 그림 5에서 볼 수 있듯이 각 위치 판독은 Q 점수가 30(Q30)보다 높으며 오류 확률이 0.001-0.0001(1000-10,000분의 1)임을 보여줍니다. 또한, 염기서열 길이 분포 분석(그림 6)은 miRNA의 특성 범위(19-25bp) 내에 속하는 우세한 피크를 보여주며, 이는 얻은 데이터의 높은 품질과 특이성을 시사합니다.
향후 수많은 연구에서 조직 샘플의 양을 줄임으로써 비용과 자원을 절약할 수 있을 뿐만 아니라 시약 비용도 절감할 수 있을 뿐만 아니라 접근성이 향상되었기 때문에 이 방법의 이점을 얻을 수 있습니다. 필요한 조직의 양을 줄이면(>50%) 이 방법도 더욱 윤리적입니다. 정밀 의료에 대한 전 세계적인 노력에 발맞춰 여기에 자세히 설명된 개선된 워크플로우는 BDsEV 및 화물을 사용하는 비침습적(또는 최소 침습적) 경로를 통해 정확한 세포 유형별 바이오마커를 시작할 수 있는 비교적 저렴한 도구를 제공합니다. 이것은 광범위한 신경학적 상태에 사용할 수 있습니다. 이 방법의 가능한 한계는 연구자가 sEV 분리를 위해 인간 뇌 이외의 조직을 사용하려는 경우 프로토콜을 조정해야 한다는 것입니다. 장기적으로 이 개선된 방법은 비침습적 조직 특이적 바이오마커 발견 및 검증을 전 세계적으로 보다 공평하고 접근하기 쉽게 만들 것입니다.
공개 사항
저자 중 누구에게도 이해 상충이 없습니다.
감사의 글
이 연구는 영국 알츠하이머 협회(Alzheimer's Society UK)의 조셉 모건(Joseph Morgan) 박사 과정 학생(보조금 번호 549/SERA-52)과 샐퍼드 대학교(University of Salford)의 혁신 전략 기금(보조금 SEFA-39)의 자금 지원을 받았습니다. 뇌 조직은 Brains for Dementia Network의 Manchester brain bank(REC Reference 09/H0906/52)에서 얻었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 소 혈청 알부민 | Merck | A9418-100G | |
| 셀 마스크 주황색 플라즈마 멤브레인 염색 | ThermoFisher Scientific | C10045 | |
| 콜라겐 분해 효소 III형 | StemCell Technologies | 07422 | |
| ExoSpin 컬럼 및 버퍼 | 세포 유도 시스템 Ltd. | EX01-50 | 이 키트에는 이 실험에 사용된 SEC 컬럼, 침전 버퍼 및 EV 프리 PBS가 포함되어 있습니다. |
| Halt Protease Inhibitor Cocktail (100x) | ThermoFisher Scientific | 78429 | |
| Hibernate-E Medium | ThermoFisher Scientific | A1247601 | |
| Laemmli Sample Buffer (4x) | BioRad | 1610747 | |
| Lexogen Small RNA-Seq Library Prep Kit | Lexogen | 052.24 | 이 키트에는 i7 Index 프라이머 플레이트가 있는 Small RNA 준비 시약 상자가 포함되어 있습니다. |
| miRNeasy Micro Kit (50) | Qiagen | 217084 | 이 키트에는 고품질 RNA 회수 용해 시약(Qiazol), RNA 분리 컬럼, 분리 버퍼(RWT, RPE) 및 RNase free water가 포함되어 있습니다. |
| MiSeq 시약 키트 v3 | Illumina | MS-102-3001 | 이것은 Illumina 준비 키트 |
| 니트로셀룰로오스 막, 0.45 μ m | ThermoFisher Scientific | 88018 | |
| PE/Dazzle 594 anti-human CD63 Antibody | BioLegend | 143914 | fNTA 분석에 사용 |
| PE/Dazzle 594 anti-human CD81 항체 | BioLegend | 349520 | fNTA 분석에 사용 |
| PE/Dazzle 594 anti-human CD9 항체 | BioLegend | 312118 | fNTA 분석에 사용 |
| PhosSTOP | Merck | ||
| Pierce BCA 단백질 어세이 키트 | ThermoFisher Scientific | 23225 | |
| Proteinase K | ThermoFisher Scientific | 25530049 | |
| Qubit microRNA 어세이 키트 | ThermoFisher Scientific | Q32880 | |
| Qubit 1X dsDNA HS 어세이 키트 | ThermoFisher Scientific | Q33230 | |
| Qubit 3.0 형광측정기 | ThermoFisher Scientific | Q33216 | |
| RIPA 용해 및 추출 버퍼 | ThermoFisher Scientific | 89901 | |
| RNase A | ThermoFisher Scientific | EN0531 | |
| SuperSignal West Femto 최대 감도 기판 | ThermoFisher Scientific | 34094 |
참고문헌
- Jia, Y., et al. Small extracellular vesicles isolation and separation: Current techniques, pending questions and clinical applications. Theranostics. 12 (15), 6548-6575 (2022).
- Fornari, S., Schäfer, A., Jucker, M., Goriely, A., Kuhl, E. Prion-like spreading of Alzheimer's disease within the brain's connectome. J R Soc Interface. 16 (159), 20190356(2019).
- Zhang, P., et al. Tumor-derived small extracellular vesicles in cancer invasion and metastasis: molecular mechanisms, and clinical significance. Mol Cancer. 23 (1), 18(2024).
- Constantinides, V., et al. CSF Aβ42 and Aβ42/ Aβ40 ratio in Alzheimer's disease and frontotemporal dementia. Diagnostics. 13 (4), 783(2023).
- Cheng, L., et al. Prognostic serum miRNA biomarkers associated with Alzheimer's disease shows concordance with neuropsychological and neuroimaging assessment. Mol Psychiatry. 20 (10), 1188-1196 (2015).
- Roser, A. E., Caldi Gomes, L., Schünemann, J., Maass, F., Lingor, P. Circulating miRNAs as diagnostic biomarkers for Parkinson's disease. Front Neurosci. 12, 625(2018).
- Jackson, N., Guerrero-Muñoz, M. J., Castillo-Carranza, D. L. The prion-like transmission of tau oligomers via exosomes. Front Aging Neurosci. 14, 974414(2022).
- Vella, L., et al. A rigorous method to enrich for exosomes from brain tissue. J Extracell Vesicles. 6 (1), 1348885(2017).
- Yousif, G., Qadri, S., Parray, A., Akhthar, N., Shuaib, A., Haik, Y. Exosomes derived neuronal markers: Immunoaffinity isolation and characterization. Neuromolecular Med. 24 (3), 339-351 (2022).
- Kumar, K., et al. Recent advances in microfluidic approaches for the isolation and detection of exosomes. TRAC-Trend Anal Chem. 159, 116912(2023).
- Ransom, L., et al. Human brain small extracellular vesicles contain selectively packaged, full-length mRNA. Cell Rep. 43 (4), 114061(2024).
- Gomes, P., et al. A novel isolation method for spontaneously released extracellular vesicles from brain tissue and its implication for stress-driven brain pathology. Cell Commun Signal. 21 (1), 35(2023).
- Welsh, J., et al. Minimal information for studies of extracellular vesicles (MISEV 2023): From basic to advanced approaches. J Extracell Vesicles. 13 (2), e12404(2023).
- Théry, C., et al. Minimal information for studies of extracellular vesicles 2018 (MISEV2018): a position statement of the International Society for Extracellular Vesicles and update of the MISEV2014 guidelines. J Extracell Vesicles. 7 (1), 1535750(2018).
- Pirisinu, M. The long journey of extracellular vesicles towards global scientific acclamation. Adv Pharm Bull. 13 (3), 489-501 (2023).
- Bender, A., Sullivan, B. P., Lillis, L., Posner, J. D. Enzymatic and chemical-based methods to inactivate endogenous blood ribonucleases for nucleic acid diagnostics. J Mol Diagn. 22 (8), 1030-1040 (2020).
재인쇄 및 허가
