이 기사에서는 생쥐와 쥐에서 물리적 구속 스트레스를 사용하여 스트레스 반응을 유도하는 절차를 다룹니다. 설치류 모델에서 구속 응력을 선택하고 사용할 때 관찰해야 하는 추가 고려 사항에 대해 설명합니다.
이 논문에서
요약
초록
모든 동물 종에서 스트레스가 많은 조건에 노출되면 스트레스 반응을 유발합니다. 설치류 모델을 사용하여 응력의 영향을 연구하는 한 가지 방법은 구속 응력 절차입니다. 억제 스트레스는 생리학, 유전학, 신경생물학, 면역학 및 스트레스의 영향을 받는 기타 시스템의 변화를 조사하기 위해 수십 년 동안 사용되어 왔습니다. 시술 수행의 용이성, 저렴한 비용, 스트레스 노출의 강도와 지속 시간에 대한 스케일에 대한 수많은 수정으로 인해 방대한 연구 문헌에서 쥐와 쥐의 억제 스트레스를 사용했습니다. 한 예로, 이 연구는 형질전환 마우스의 억제 스트레스가 혈장 코르티코스테론 수치와 광유전학적으로 유도된 노르에피네프린 방출에 미치는 영향을 보여주는 이전에 발표된 데이터를 제시합니다. 급성 억제 스트레스는 혈장 코르티코스테론 수치를 증가시켰지만, 이 효과는 반복적인 억제 스트레스 이후 쥐에서 무뎌졌습니다. 그러나, 선조체 말단의 기층핵에서 자극된 노르에피네프린 방출은 반복 억제 스트레스 그룹에서만 증가했다. 이러한 데이터는 종속 측정에 대한 구속 매개변수의 중요한 고려 사항을 강조합니다. 비교를 위해 쥐의 구속 스트레스에 대한 추가 설명도 포함되어 있습니다. 마지막으로, 구속의 매개변수(예: 급성 대 만성)와 동물 피험자의 특성(변형, 성별, 연령)의 영향에 대해 논의합니다.
서론
스트레스에 대한 보편적인 경험으로 인해, 스트레스 노출 후 반응이 변화되는 메커니즘에 대한 연구는 수십 년 동안 일관된 연구 분야였습니다1. 이러한 연구는 반복적이거나 예측할 수 없는 스트레스 요인에 장기간 노출되어 발생하는 생리적 및 행동 기능의 부적응 변화를 유발하는 스트레스 경험으로부터 급성 스트레스 요인에 대한 적응력과 반응성을 높이는 데 도움이 될 수 있는 스트레스의 측면을 분석하기 시작했습니다. 스트레스 요인에 대한 이러한 반응의 대부분은 뇌 기능, 시상하부-뇌하수체-부신(HPA) 축, 자율신경계의 교감신경 및 부교감 신경 분지, 면역 체계에 영향을 미칩니다. 스트레스 요인에 노출되면 부신피질자극호르몬(ACTH)과 글루코코르티코이드 호르몬(예: 영장류 및 기타 포유류의 코르티솔, 설치류의 코르티코스테론)과 같은 글루코코르티코이드 호르몬이 증가하기 위해 부신피질자극호르몬(corticotropin-releasing factor, CRF)의 방출이 증가한다2. 또한, 에피네프린과 노르에피네프린은 교감신경계 반응의 일환으로 말초와 뇌 전체로 분비됩니다3. 이러한 화학적 신호는 면역 기능, 신진대사, 생식 및 신경 반응성과 같은 여러 생리학적 시스템과 상호 작용합니다4.
스트레스가 많은 경험은 불안과 우울증의 증가, 학습 및 기억의 변화, 의사 결정 및 실행 기능의 손상, 약물 사용 장애에 대한 감수성 등을 포함한 수많은 상태와 관련이 있습니다. 이러한 각 영향은 스트레스 요인의 매개변수와 스트레스를 경험하는 개인의 특성4에 따라 달라진다. 스트레스 요인의 특성은 급성 또는 만성, 통제 가능 또는 예측 불가능과 같이 관찰된 결과를 크게 변화시킵니다. 스트레스의 이러한 측면은 인간의 경험과 동물 모델 간에 일관되게 나타난다. 따라서 동물 연구에서 스트레스를 모델링하려면 종, 성별 및 상태에 적합한 스트레스 노출 매개변수를 선택하는 데 신중한 고려를 사용해야 합니다.
설치류를 대상으로 한 연구에는 많은 스트레스 요인이 있지만(사회적 고립 스트레스 또는 사회적 패배와 같은 심리사회적 스트레스 요인, 코르티솔 또는 요힘빈 투여와 같은 약리학적 스트레스 요인, 발 충격 및 구속과 같은 신체적 스트레스 요인, 조건을 결합하거나 번갈아 가며 발생하는 다중 모드 스트레스 요인 포함), 이 원고의 초점은 생쥐와 쥐의 억제 스트레스 사용에 있을 것입니다. 억제 스트레스는 수행하기 쉽고, 저렴하고, 다양한 크기의 설치류에 맞게 조정할 수 있고, 급성 및 장기 기간에 모두 적용할 수 있으며, 피험자에게 부정적인 해를 거의 주지 않기 때문에 다른 스트레스 요인보다 선택될 수 있습니다5. 이 원고는 억제 스트레스 노출에 의해 유발되는 지속적인 변화에 초점을 맞추고 있지만, 일부 연구에서는 설치류의 억제를 사용하여 스트레스 요인에서 벗어나는 것과 관련된 적극적인 대처 행동을 포함하여 억제 중에 발생하는 메커니즘과 행동을 조사합니다 6,7,8,9. 이 원고의 목표는 쥐 또는 쥐 피험자에 대한 구속 스트레스의 영향을 평가하기 위한 방법론적 고려 사항을 제공하는 것입니다.
프로토콜
실험 및 프로토콜은 노스캐롤라이나 대학교 채플힐(생쥐)과 페어필드 대학교(쥐)의 기관 동물 관리 및 사용 위원회(IACUC)의 승인을 받았으며 NIH10의 지침을 따릅니다.
1. 생쥐의 구속 스트레스
참고: 생쥐는 스트레스가 생리학과 신경 시스템에 미치는 영향을 연구할 때 많은 이점을 제공합니다. 형질전환 마우스 계통이 널리 보급됨에 따라 유전자와 스트레스 노출 간의 상호 작용에 대한 기계론적 조사가 쉽게 실현 가능합니다. 형질전환 마우스를 사용하든 야생형 마우스를 사용하든 배경 균주를 고려하는 것이 좋습니다. 또한 크기와 사회적 주택으로 인해 생쥐는 다른 종에 비해 공간 활용도에서 이점을 제공합니다.
- 구속 스트레스 노출
- 마우스를 homecage control, acute restraint stress 또는 chronic restraint stress 그룹에 무작위로 할당합니다.
- 응력 노출 길이를 결정합니다. 급성 스트레스 요인의 경우, 구속 장치에 갇힌 상태에서 5분에서 최대 12시간 동안 지속되는 단일 세션을 사용하십시오. 만성 스트레스 요인의 경우, 세션이 급성 스트레스 요인의 길이와 일치해야 하지만 짧게는 3일에서 길게는 21일 동안 매일 반복해야 합니다.
참고: 쥐는 구속 상태에 있는 동안 음식과 물에 접근할 수 없기 때문에 가정용 통제 동물도 음식과 물에 접근할 수 없어야 하는지 여부를 고려하십시오. - 50mL 원뿔형 튜브를 수정하여 통풍구를 추가합니다.
- 1/8" 비트가 있는 전동 드릴을 사용하여 각 원추형 튜브 주위에 구멍 간격을 균등하게 하여 튜브의 모든 영역에서 공기 흐름을 보장합니다.
- 마우스가 튜브에서 향하는 방향에 관계없이 마우스가 공기에 접근할 수 있도록 이 구멍을 배치합니다. 수정 후 날카로운 모서리가 남아 있지 않은지 확인하십시오.
참고: 이 변형된 원뿔형 튜브는 대부분의 성인 마우스(~20-40g)에 효과적이어야 하지만 작은/어린 마우스 또는 더 큰 균주를 억제하지 못할 수 있습니다.
- 동물 사육 및 행동 테스트와는 별도로 실험실에서 구속이 할당된 동물을 캡이 부착된 개조된 원뿔형 튜브에 넣어 지정된 구속 기간 동안 튜브에 쥐를 가둡니다.
참고: 시험실 설계의 세부 사항은 시설에서 사용할 수 있는 공간에 따라 달라질 수 있습니다. 방에는 흄 후드 및 기타 실험실 장비 및/또는 실험실 테이블/벤치가 포함되거나 빈 절차실이 될 수 있습니다. 그러나 실내 설정에 관계없이 구속실 환경은 스트레스 반응의 맥락에 의한 변화를 피하기 위해 반복적인 구속 노출에 대해 일관되게 유지되어야 합니다11. - 고정 튜브를 평평한 표면에 수평으로 놓습니다. 필요한 경우 실험실용 테이프 또는 피펫 대야/시약 저장통으로 튜브를 고정하여 마우스가 내부에 있는 상태에서 굴러가지 않도록 합니다.
참고: 스트레스 조건에서 생쥐는 초음파 발성을 생성합니다. 연구 설계가 다른 제한된 피험자로부터 건전한 격리를 필요로 하는지 여부를 고려하십시오12. 코르티코스테론과 스트레스 반응의 다른 지표는 일주기 리듬을 따릅니다. 따라서 조명 조건과 스트레스 요인의 시간에 대한 고려가 이루어져야 합니다. 스트레스 그룹 전반에 걸쳐, 억제는 하루 중 일정한 시간에, 가급적이면 빛의 주기 초기에 발생해야 합니다 13,14,15. 여기에 제시된 연구를 위해 마우스를 불을 켠 후 약 3시간 동안 구속했습니다. - 최소 20분마다 각 동물을 억제 스트레스 중에 모니터링하십시오. 동물이 비정상적인 반응(느린 호흡, 움직임 부족)을 보이는지 육안으로 확인합니다. 관찰되는 경우 구속 튜브에서 마우스를 제거하고 수의사에게 문의한 다음 마우스를 연구에서 제외합니다.
- 마우스를 가정용 케이지로 되돌리고 음식과 물에 접근할 수 있도록 합니다.
2. 쥐의 구속 스트레스
참고: 더 큰 설치류인 쥐는 스트레스의 영향을 조사할 때 고려해야 할 이점이 있습니다. 쥐와 마찬가지로 쥐는 스트레스 노출에 대한 차등 반응을 보이는 다양한 균주를 가지고 있습니다16,17. 또한, 쥐의 크기가 커지면 쥐가 약물 자가 투여와 같은 특정 행동 조치와 함께 더 쉽게 사용할 수 있습니다.
- 구속 스트레스 노출
- 쥐를 homecage control, acute restraint stress 또는 chronic restraint stress 그룹에 무작위로 할당합니다.
- 응력 노출 길이를 결정합니다. 급성 스트레스 요인의 경우, 구속 장치에 갇힌 상태에서 5분에서 최대 12시간 동안 지속되는 단일 세션을 사용하십시오. 만성 스트레스 요인의 경우, 세션이 급성 스트레스 요인의 길이와 일치해야 하지만 짧게는 3일에서 길게는 21일 동안 매일 반복해야 합니다.
참고: 쥐는 구속 상태에 있는 동안 음식과 물에 접근할 수 없기 때문에 가정 케이지 통제 동물도 음식과 물에 접근할 수 없어야 하는지 고려하십시오. - 시중에서 판매되는 구속 튜브의 경우 아래 설명된 단계를 따르십시오.
참고: 시중에서 판매되는 쥐용 구속 튜브를 사용할 수 있습니다. 이 장치는 금속 와이어, 용기, 둥근 바닥 및 평평한 바닥 옵션이 있는 플라스틱/플렉시 유리 튜브를 포함한 다양한 디자인을 가지고 있습니다. 각 옵션은 사용이 간편합니다.- 쥐를 장치에 삽입한 다음 피험자의 크기에 맞게 조정된 플러그를 추가하고 제자리에 고정합니다. 구속 튜브에 넣었을 때, 머리에서 꼬리로 돌아가는 것을 방지하기 위해 쥐가 꼭 맞게 갇혀 있지만 쉽게 숨을 쉴 수 있는지 확인하십시오.
알림: 이 장치는 쥐를 제지하도록 설계되었으며 호흡을 위해 수정할 필요가 없습니다. 이 연구는 장치를 고정하기 위해 튜브 아래 플랫폼에 흡입 컵을 포함하는 테일 베이너 억제 장치(Table of Materials)를 사용합니다. 이 장치의 또 다른 이점은 꼬리가 장치 외부에서 접근할 수 있어 튜브에 삽입 및 제거하거나 꼬리 정맥에서 혈액을 채취하는 동안 구속하는 동안 피험자를 제어할 수 있다는 것입니다.
- 쥐를 장치에 삽입한 다음 피험자의 크기에 맞게 조정된 플러그를 추가하고 제자리에 고정합니다. 구속 튜브에 넣었을 때, 머리에서 꼬리로 돌아가는 것을 방지하기 위해 쥐가 꼭 맞게 갇혀 있지만 쉽게 숨을 쉴 수 있는지 확인하십시오.
- 동물 사육 및 행동 테스트와 분리된 시험실에서 구속이 할당된 애니마를 지정된 구속 기간 동안 구속 튜브에 놓습니다. 고정 튜브를 평평한 표면에 수평으로 놓습니다.
참고: 스트레스 조건에서 쥐는 초음파 발성도 생성합니다. 연구 설계가 다른 제한된 피험자로부터 건전한 격리를 필요로 하는지 여부를 고려합니다. - 최소 20분마다 각 동물을 억제 스트레스 중에 모니터링하십시오. 동물이 비정상적인 반응(느린 호흡, 움직임 부족)을 보이는지 육안으로 확인합니다. 관찰되면 구속 튜브에서 쥐를 제거하고 수의사에게 연락한 다음 연구에서 쥐를 제외합니다.
- 쥐를 집 우리로 되돌려 놓고 음식과 물을 얻을 수 있도록 합니다.
3. 스트레스 평가
- HPA 활성화 측정
- 적절한 경우, 구속 스트레스에 노출되거나 자택 우리에서 제거된 후, 피험자의 목을 빠르게 잘라 트렁크의 혈액을 헤파린화된 관으로 모으십시오.
- 원심분리를 통해 플라즈마를 분리하고 -80°C에서 플라즈마 샘플을 보관합니다. 효소 결합 면역흡착 분석법(ELISA) 키트를 사용하여 혈액 코르티코스테론을 분석합니다.
참고: 코르티코스테론은 스트레스 노출, 특히 급성 스트레스의 정도를 나타내는 지표로 자주 사용되지만, 코르티코스테론 수치가 스트레스로 인한 행동 변화와 항상 상관관계가 있는 것은 아니다6. 또한, 코르티코스테론 방출을 조절하는 HPA 축 반응은 동일한 스트레스 요인에 반복적으로 노출되면 습관화된다18. 또는 부신피질영양호르몬(ACTH)이 급성 스트레스 요인의 강도를 측정하는 더 신뢰할 수 있는 척도가 될 수 있다4. 스트레스 요인 노출이 중단된 후 약 한 시간 동안 상승 상태를 유지하지만 심각하고 장기간(약 > 2시간) 스트레스는 생성에 피로를 줄 수 있습니다.
- 행동 효과
- 적절한 경우, 억제 스트레스 노출 또는 가정 케이지에서 제거한 후 적절한 행동 작업으로 설치류의 행동 수행을 평가합니다.
참고: 다양한 행동 모델에 대한 억제의 효과에 대한 추가 정보는 논의 섹션에서 찾을 수 있습니다.
- 적절한 경우, 억제 스트레스 노출 또는 가정 케이지에서 제거한 후 적절한 행동 작업으로 설치류의 행동 수행을 평가합니다.
- 신경생물학
- 대안적으로 또는 추가적으로 구속, 스트레스 노출 또는 통제 후 신경생물학적 기능을 평가합니다. 광범위한 분석법을 통해 세포, 시냅스 및 회로에 대한 억제 응력 효과를 조사할 수 있습니다. 분석에 따라 생체 내 측정 장치를 이식하거나 뇌 조직을 적출하여 선택한 분석을 수행합니다.
참고: 단백질 합성 및 후성유전학적 변형에서 세포 유형 특이적 변화에 대한 스트레스의 영향은 McEwen과 동료들에 의해 철저히 검토되었습니다1. 이러한 유전적 및 단백질 변형은 가소성이 시냅스 연결과 회로를 변화시키도록 유도합니다. 이러한 연구를 수행하기 위해 스트레스 노출 후 뇌 조직을 채취하고 유전체학, 단백질체학, 체외 생리학 및 기타 분석을 수행합니다. 또는 미세 투석, 고속 스캔 순환 전압전류법(FSCV), 섬유 측광 등과 같은 생체 내 측정을 통해 신경생물학적 변화를 평가할 수 있습니다. 이러한 접근법은 신경화학적 방출과 신경세포 활성화를 기록하는데, 둘 다 구속 스트레스 노출후 2,19 그리고 현재 구속 중 8,9,20 이다. 억제 스트레스의 영향 기저에 있는 신경생물학적 메커니즘을 평가하기 위한 도구 상자는 빠르게 확장되어 스트레스의 복잡성에 대한 새로운 통찰력을 제공하고 있습니다.
- 대안적으로 또는 추가적으로 구속, 스트레스 노출 또는 통제 후 신경생물학적 기능을 평가합니다. 광범위한 분석법을 통해 세포, 시냅스 및 회로에 대한 억제 응력 효과를 조사할 수 있습니다. 분석에 따라 생체 내 측정 장치를 이식하거나 뇌 조직을 적출하여 선택한 분석을 수행합니다.
결과
이전에 발표된 연구21에서, 이 원고에 기술된 억제 스트레스 절차는 코르티솔과 노르에피네프린의 조절에 대한 억제 스트레스의 영향을 평가하기 위해 사용되었으며, 이는 프로토콜 3.3에 언급된 스트레스에 의해 유발된 신경생물학의 광범위한 변화 가능성에 속한다. 본 연구에서는 생쥐의 억제를 위해 위에서 설명한 프로토콜을 활용하였다. 이 논문의 구속 초점 범위를 벗어나는 추가 세부 사항, 예를 들어 뇌 영역, 광유전학적 자극 매개변수 또는 FSCV에 대한 이론적 근거는 참조된 원고에서 찾을 수 있습니다.
노르아드레날린성 뉴런에서 채널로돕신을 선택적으로 발현하는 수컷 및 암컷 형질전환 마우스(DBH:Cre+/-::Ai32+/-)를 사용하고, 생체 외 FSCV21을 사용하여 선조체 말단(BNST)의 침대핵에서 자극된 노르에피네프린 방출을 측정했습니다. 마우스는 프로토콜 1에 기술된 바와 같이 급성(2시간) 및 만성적으로(5일 동안 2시간/일) 또는 가정 케이지 통제에 따라 제지되었습니다. 노출 후, 프로토콜 3.1에 설명된 대로 코르티코스테론 분석을 위해 일부 피험자로부터 혈액을 채취했습니다. 급성 억제 스트레스 직후 마우스는 코르티코스테론 수치가 상승했지만 반복적인 스트레스로 인해 반응이 무뎌졌습니다(그림 1 참조). 노르에피네프린 방출에 대한 억제 스트레스의 영향을 평가하기 위해 추가 마우스를 사용했습니다. 최종 스트레스 노출 후 24시간 후, 뇌 조직을 빠르게 적출하고 절개하여 BNST에서 노르에피네프린 방출을 기록했습니다. 흥미롭게도, 급성 억제는 자극된 노르에피네프린 방출에 영향을 미치지 않았지만, 반복적인 스트레스 노출은 자극 매개변수에 걸쳐 자극된 노르에피네프린 방출을 크게 증가시켰습니다(그림 2 참조). 이러한 결과는 프로토콜 2,17, 22에 설명된 접근 방식을 사용하여 쥐의 노르에피네프린 방출에 대한 억제 스트레스의 영향에 대한 이전 조사와 일치합니다.

그림 1: 가정 케이지 제어(순진) 및 급성(단일) 및 만성(반복) 구속 스트레스에 따른 혈장에서 코르티코스테론. 급성 억제 스트레스를 2시간 동안 한 번 실시한 후, 혈장 코르티코스테론 수치는 순진한 스트레스 및 반복 스트레스 피험자에 비해 상승했습니다. 결과는 평균 ± SEM으로 표시됩니다. N = 그룹당 5-6마리의 마우스. **p < 0.05, ***p < 0.005. 이 그림은 Schmidt et al.21의 허가를 받아 수정되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
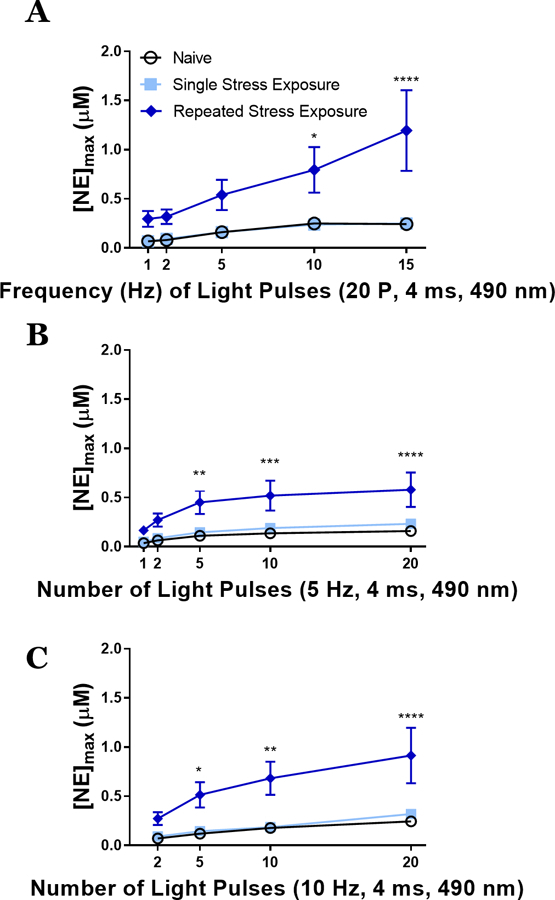
그림 2: 광유전학적으로 자극된 노르에피네프린 방출은 만성(반복된) 억제 스트레스 후에 증가한다. 최종 스트레스 노출 다음 날, 생쥐의 선조체 말단의 침대 핵에서 광유전학적으로 자극된 노르에피네프린 방출을 측정하기 위해 생체 외 고속 스캔 순환 전압전류법을 수행했습니다. (A) 20 펄스 (20 P) 자극의 주파수 (Hz)의 변화는 반복 된 스트레스 그룹에서 더 많은 노르에피네프린을 방출했습니다. (나, 다) 5Hz(B) 또는 10Hz(C) 자극 주파수에서 펄스 수(2-20)의 변화는 반복되는 스트레스 그룹에서 더 많은 노르에피네프린 방출을 나타냈습니다. 평균 ± SEM; n = 7−8 슬라이스/그룹을 제공하는 5−6 마우스/그룹. *p < 0.05, **p < 0.05, ***p < 0.005, and ****p < 0.0001. 이 그림은 Schmidt et al.21의 허가를 받아 수정되었습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
설치류 모델에서 스트레스가 생리적, 신경생물학적, 행동 기능에 미치는 영향을 조사하려면 설치류에게 스트레스를 유발하는 조건을 사용해야 합니다. 이러한 고려 사항 중에는 피험자에서 스트레스 반응을 일으키는 조건이 있습니다. 억제는 인간에 대한 스트레스 효과와 일치하는 설치류의 생리적 및 행동적 반응을 생성하는 검증된 절차입니다. 이 프로토콜과 유사한 방법론을 사용하여 불안, 우울증, 통증 및 약물 사용 장애를 포함한 정신 장애 모델과 관련된 여러 분자, 세포, 내분비 및 생리학적 반응을 평가하기 위해 억제가 사용되었습니다 1,19. 여기에서는 발표된 한 연구의 데이터가 설치류에 대한 억제의 예로 제시되어 있지만, 억제의 효과는 이 특정 예를 넘어 광범위한 종속 조치로 확장됩니다. 억제는 마우스와 쥐에서 수행하기 쉽고, 확립 비용이 저렴하며, 사용된 매개변수에 따라 다양한 수준의 스트레스 반응을 유도하도록 조정할 수 있기 때문에 스트레스 요인으로 사용하기 위해 선택될 수 있습니다.
다른 스트레스 유발 접근법과 비교했을 때, 억제는 연구 설계 과정에서 고려해야 할 몇 가지 제한 사항이 있다 4,23. 주목할 만한 것은, 억제 스트레스가 항상 간헐적 발충격과 같은 다른 신체적 스트레스 요인에서 관찰되는 행동 변화를 유발하는 것은 아니라는 점이다24. 이러한 불일치는 다양한 환경에서 발생할 수 있다는 구속의 장점으로 인한 것일 수 있는 반면, 풋쇼크는 쇼크 그리드 바닥이 장착된 테스트 챔버에 더 국한됩니다. 응력 상황은 결과적인 효과에 큰 영향을 미친다11. 또한, 전통적인 구속 튜브 또는 장치 내부에 감금하는 것은 구속 중에 피험자에 대한 접근을 제한하기 때문에 단점입니다. 이러한 제한을 극복하고 구속 세션 동안 신경생물학적 데이터 수집을 위한 테더링을 허용하기 위해 새로운 구속 장치(예: "REcording Signal TRansients ACCessible IN a Tube (RESTRAINT)"가 개발되었습니다 8,9,20. 이 장애를 해결하기 위한 또 다른 접근법은 고정(immobilization) 스트레스를 구속(restraut)과 유사한 기법으로 사용하는 것이다 - 종종 고정(immobilization)과 구속(straint)은 동의어로 사용되지만 중요한 차이점이 있다25. 고정 스트레스는 동물의 팔, 다리 및 머리를 표면에 고정하는 것과 관련된 반면, 구속은 제한 장치 내부에 배치하는 것과 관련이 있습니다. 이와 같이, 고정 스트레스는 움직임을 제한하는 동시에 혈액, 뇌척수액, 동공 반응 또는 스트레스 연구에 흥미를 가질 수 있는 기타 생리학적 효과를 채취하기 위해 피험자에 대한 접근을 제공합니다. 설치류에서 스트레스를 유발하는 데 사용된 추가 스트레스 요인에는 환경적 추위 스트레스, 코르티코스테론 또는 요힘빈과 같은 약리학적 제제 투여, 사회적 패배 또는 포식자 냄새 노출에 대한 윤리학적으로 관련된 경험, 만성 예측 불능 스트레스(CUS)와 같은 다중 모드 스트레스가 포함됩니다. 이러한 대체 응력 방식은 응력의 특정 측면을 모델링할 때 장점이 있기 때문에 사용하도록 선택됩니다. 예를 들어, 억제가 마우스와 쥐에서 흉초음파 초음파 모델의 한 측면임에도 불구하고26, 흉부 초음파 검사의 영향은 만성 억제 스트레스에 대한 동등한 노출에 의해 생성된 효과와 구별될 수 있습니다27,28. 반복 구속의 예측 가능성은 미래의 구속 에피소드에 대한 반응을 감소시켜 동형 구속 스트레스의 효과를 제한합니다. 대안으로, 흉강초음파 및 기타 이형형 스트레스 모델은 습관화를 최소화하기 위해 스트레스 요인 또는 컨텍스트를 회전시킵니다11,18. 이러한 예측할 수 없는 스트레스 모델은 통제력과 기대 상실을 완전히 요약하기 위해 인간의 정신 질환 측면을 더 잘 모델링할 수 있습니다. 다른 스트레스 양식이 더 잘 해결할 수 있는 억제의 또 다른 단점은 스트레스 감수성과 스트레스 완충에 대한 사회적 기여입니다 29,30,31. 설치류와 인간은 특정 관계와 위계를 가진 사회적 동물입니다. 억제 스트레스가 사회화를 포함하지는 않지만, 사회적 패배 스트레스와 같은 심리사회적 스트레스 요인은 설치류에게 윤리학적으로 관련된 스트레스 요인을 제공한다 32,33,34.
억제 스트레스의 사용에서, 투여의 강도와 반복은 조작될 수 있는 매개변수이다5. 보다 강력한 구속 응력을 생성하기 위해 스터디 설계는 구속 장치에서 더 긴 시간을 필요로 할 수 있습니다. 짧게는 5분 또는 길게는 12시간까지가 급성 또는 장기간의 구속 세션에 대한 가능한 매개변수이며, 각각35,36. 일단 구속 노출 기간이 결정되면, 스트레스 요인의 반복도 다양한 수준의 스트레스를 유발하는 요인이 될 수 있다35,37. 반복적인 구속 스트레스가 반드시 관찰된 효과의 증가를 의미하는 것은 아니라는 점에 유의해야 합니다. 종종 반복되는 억제 스트레스는 스트레스 반응을 습관화하거나 감소시킨다18. 여기에 제시된 데이터에서 우리는 반복적인 억제 스트레스에 대한 코르티코스테론 반응의 습관화를 관찰하는 한편, 동시에 반복 스트레스 노출 그룹에서만 자극된 노르에피네프린 방출의 차이를 측정했습니다. 그러므로, 습관화 효과를 결정하기 전에 반복적인 억제의 효과를 주의 깊게 조사해야 한다35.
또한, 구속 스트레스를 사용하는 연구에서 사용된 주거 조건의 결과를 고려해야 한다. 스트레스를 받은 동종과의 상호 작용은 설치류의 스트레스 반응에 영향을 미친다 30,38,39. 그러므로, 실험 집단 간에 일관된 반응을 유지하기 위해, 피험자들은 개별적으로 수용되거나, 동일한 스트레스 상태를 경험하는 모든 케이지 동료와 함께 그룹으로 수용되어야 한다37. 비판적으로, 이러한 모든 피험자의 사회적 고립 접근법의 단점은 사회적 고립 주거가 스트레스 요인이기도 하다는 것입니다 40,41. 그러나 주거 환경에 관계없이 스트레스 노출은 결과 측정에 영향을 미치는 스트레스의 사회적 완충을 방지하기 위해 가능한 한 격리되어 이루어져야 한다30. 이러한 주거 조건과 함께, 환경적 광 주기와 관련된 스트레스 노출 타이밍을 고려해야 합니다14,15. 일부 연구에서 지적한 바와 같이37, 코르티코스테로이드 수치는 일주기 리듬을 따르기 때문에 빛 주기의 다른 시간에 스트레스 요인을 투여하면 일관되지 않은 효과가 나타날 수 있습니다. 따라서 구속을 위한 균일한 시작 시간을 설정하고 유지하는 것이 필수적입니다. 예를 들어, 운동 스트레스가 코르티코스테론의 일주기 조절에 미치는 영향을 조사한 한 논문에 따르면, 코르티코스테론을 대조군에서는 코르티코스테론이 광주기의 후반부에 최고조에 달하지만, 스트레스를 받은 쥐에서는 코르티코스테론이 안정된 피크 없이 높은 상태를 유지한다13. 이러한 발견에 비추어 볼 때, 빛의 주기 초기에 설치류에게 스트레스를 가하는 것이 가장 큰 효과를 내기 위해 권장됩니다.
구속 조건의 매개변수 외에도, 동물 피험자의 특성은 구속 스트레스 요인을 사용하는 연구에서 고려해야 할 중요한 요소였다. 예를 들어, 많은 연구에서 억제 스트레스를 사용한 성별 차이가 보고되었다 12,35,37,42,43,44. 이러한 차이의 기저에 있는 메커니즘을 이해하는 것은 조사할 가치가 있으며 사람들이 스트레스를 경험할 때 공평한 치료를 위한 더 나은 결과로 이어질 수 있습니다. 아마도 여성과 남성은 스트레스 요인을 다르게 경험하고 처리하는 방식이 다르기 때문에 여성의 불안과 우울증이 증가할 수 있다44. 예를 들어, 억제 스트레스는 남성의 학습 성취도를 감소시키지만 여성의 학습 성취도를 증가시킨다45. 역사적으로 설치류에 대한 억제 스트레스 연구는 피험자를 수컷으로 제한했지만, 앞으로는 남녀를 모두 포함하는 실험을 설계해야 합니다. 마우스 또는 랫트 종에서 억제(및 기타) 스트레스 요인을 사용하여 실험을 설계할 때 고려해야 할 또 다른 주제 특성은 균주 46,47,48,49,50,51입니다. 변형 효과는 여러 패러다임에서 관찰되었으며, 일부 변형은 억제 스트레스에 대한 악화된 반응을 나타냅니다. 마지막으로, 구속 스트레스를 사용할 때 피험자의 연령을 고려해야 합니다. 임산부를 제지함으로써 받는 스트레스에 대한 태아기의 노출부터 고령층의 억제에 이르기까지, 억제 스트레스는 어느 시점에나 적응할 수 있다. 스트레스 반응의 차이는 수명 45,52,53,54,55,56에 걸쳐 나타났습니다. 노화가 발생함에 따라 신체 크기의 변화를 수용하기 위해 다양한 억제 장치를 필요로 하는 것 외에도 억제 스트레스 요인을 사용할 때 노화와 관련된 스트레스 경험을 고려해야 합니다.
3.2에 설명된 행동 과제이든 3.3에 설명된 신경생물학적 변수이든 적절한 결과 측정의 선택은 고려가 필요합니다. 우선, 급성, 경미한 스트레스 노출은 일부 학습 과제의 수행 능력을 향상시키는 것으로 나타났지만, 강렬하거나 만성적인 스트레스 노출은 학습 및 기억 과제의 수행 능력을 저하시킨다57. 이러한 인지 능력의 변화는 전전두엽 피질(prefrontal cortex), 편도체(amygdala) 및 해마(hippocampus) 사이의 회로 조절 장애에 의해 조절되는 것으로 생각됩니다. 그러나 억제 스트레스가 인지적 유연성에 미치는 영향은 일관성 없는 연구 결과와 더 혼합되어 있으며, 이는 억제의 다양한 매개변수가 반전 학습 또는 세트 시프팅을 어떻게 변화시키는지에 대한 명확한 그림을 그리는 데 방해가 된다58. 약물의 행동 효과와 관련하여, 억제 스트레스는 다른 스트레스 요인과 마찬가지로 여러 약물 계열에서 약물 사용 장애와 관련된 행동을 증가시키는 것으로 나타났다59. 그러나, 이러한 효과는 억제 스트레스가 재발의 조작적 조건화 모델에서 약물 탐색을 유도하는 것으로 보고되지 않았지만, 복직을 포함한 조건화된 장소 선호 과제에 의해 측정된 약물 효과의 연상 학습을 증가시킨다는 점에서 다소 선택적이다60. 이러한 불일치는 구속 장치가 조작적 조건화 챔버와 별도의 컨텍스트를 생성하는 반면 발충격 응력은 조작 환경에서 발생할 수 있기 때문에 발생하는 것으로 생각됩니다. 이러한 한계를 극복하기 위해, 스트레스 노출과 조작적 자가 투여 세션 중에 제시될 수 있는 단서를 짝지어 스트레스로 인한 약물 복용 및 약물 추구가 증가하는 것으로 나타났습니다61. 만성적인 자제가 약물 관련 행동에 미치는 영향은 잘 규명되어 있지 않다. 불안 및 우울증과 같은 정서 장애의 모델을 고려할 때, 인간과 동물 모델 모두에서 스트레스 노출은 불안 측정을 증가시킵니다. 설치류의 경우, 불안에 대한 억제 스트레스 평가에는 센터와 비교하여 경기장의 벽을 따라 동물의 운동 반응을 추적하여 측정한 열린 필드 장치에서의 티그모타시스 반응이 포함됩니다. 제지 후 불안과 같은 행동을 보이는 동물은 측면 근처에서 더 많은 시간을 보내고 중앙 교차로가 적습니다. 불안을 측정하는 또 다른 접근 방식은 높은 플러스 미로입니다. 이 작업은 바닥에서 약 3피트 높이로 올라간 십자가 모양의 장치를 사용합니다. 장치의 두 팔에는 벽 장벽이 포함됩니다. 두 개의 팔에는 열린 측면이 있습니다. 불안과 유사한 행동을 보이는 동물은 열린 팔보다 둘러싸인 팔에서 더 많은 시간을 보냅니다62,63. 우울증과 유사한 행동은 설치류를 물통에 넣고 떠다니는 반응과 비교하여 몸부림치는 반응을 측정하는 강제 수영 과제를 통해 평가됩니다64. 탈출하기 위한 몸부림의 중단이 정말로 우울증과 같은 행동을 나타내는 것인지에대한 의문이 제기되었지만, 이 과제는 항우울제 약물을 선별하는 것으로서 유용성을 보여주었다. 우울증과 유사한 행동은 스트레스로 인한 자당 선호도 감소를 통해서도 평가할 수 있다66. 달콤한 액체에 대한 이러한 섭취의 변화는 임상적 우울증의 무쾌감증 측면에 대한 평가로 간주된다.
요약하면, 생쥐와 쥐에 대한 억제는 생리학, 유전학, 면역학 및 신경 과학 연구에서 스트레스와 불안 반응을 일으키는 검증된 절차입니다. 다른 스트레스 유발 접근법과 비교했을 때, 억제는 저렴하고, 수행하기 쉽고, 불안, 우울증, 약물 사용 장애, 외상 후 스트레스 장애를 포함한 인간 장애의 측면을 모델링하는 데 유용하며, 광범위한 매개변수로 조정할 수 있습니다. 이러한 이유로 억제 스트레스는 설치류에 대한 스트레스의 영향을 결정하는 유용한 방법입니다.
공개 사항
보고할 이해 상충이 없습니다.
감사의 글
Holly Rahurahu와 Sam Shaffer가 제공한 편집 피드백에 감사드립니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 50mL 범용 스크류캡 원뿔형 튜브 | 글로브 사이언티픽 | 6288 | |
| 일회용 피펫 분지 | 피셔 사이언티픽 | 13-681-500 | |
| 코르티코스테론 | 아버 분석 | K014-H | |
| Tailveiner Restrainer Tube | Braintree Scientific | RTV |
참고문헌
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
재인쇄 및 허가
