이 프로토콜은 고순도의 인간 모유에서 세포외 소포를 신속하게 분리하고 효과적으로 분리할 수 있도록 설계되었습니다.
이 논문에서
요약
초록
약 20-1000nm 크기의 나노 크기 입자인 세포외 소포(EV)는 치료 잠재력으로 인해 빠르게 주목을 받고 있습니다. 특히, 인간 모유 유래 세포외 소포(HBMDEV)는 주로 미숙아에게 영향을 미치는 장 질환인 괴사성 소장결장염의 실험 모델에서 보호를 제공하여 사망률이 50%에 달하는 것으로 나타났습니다. 그러나 감동 초원심분리, 크기 배제 크로마토그래피 등과 같은 전통적인 세포외 소포 분리 기술은 시간이 많이 걸리거나 특수 기기가 필요하며 둘 다 임상 환경에서 실용적이지 않습니다. 따라서 환자에게 HBMDEV를 신속하게 반응적으로 투여할 수 있는 간단한 분리 방법이 필요합니다. 여기서 제안된 것은 지방과 세포 파편을 제거하기 위한 인간 모유의 원심분리와 고수율 및 기능성 세포외 소포를 생성하는 나머지 탈지유의 빠른 한외여과의 조합입니다. 이 기술을 사용하면 임상 환경에서 실용적인 치료 옵션으로 HBMDEV를 사용할 수 있습니다.
서론
세포외 소포(EV)는 엔도좀 경로(미세소포체가 원형질막과 융합하여 세포 화물이 세포외 공간으로 방출되는 것을 촉진할 때) 또는 원형질막 경로(즉, 발아)를 통해 크기가 약 20-1000nm인 유비쿼터스 나노입자입니다. EV에는 지질, 단백질, 핵산, 다양한 대사산물 및 출처에 따라 기타 내용물과 같은 숙주 세포 화물이 포함되어 있습니다. 또한 EV는 세포간 통신, 혈관신생, 면역 억제, 종양 미세환경 리모델링, 암 진행 등에 중요합니다.1,2,3,4. 특히, 인간 모유(HBM)는 EV가 풍부하고 수유부가 쉽게 접근할 수 있습니다5. 최근에는 인간 모유 유래 EV(HBMDEV)가 질병 치료를 위한 치료 벡터로 주목을 받고 있습니다 1,2. 미숙아 또는 저체중아 신생아는 괴사성 소장결장염을 포함한 여러 감염에 취약합니다. 회장 또는 결장 괴사를 특징으로 하는 괴사성 장염은 경미한 장 염증에서 영아 사망률이 50%에 달하는 다기관 장기 부전까지 다양합니다6. 모유 유래 EV를 사용한 전처리는 시험관 내 및 생체 내 NEC의 실험 모델에서 장 염증으로부터 보호하기에 충분합니다 2,7. 따라서 HBMDEV의 활용은 임상 환경에서 NEC 치료를 위한 실행 가능한 옵션이 될 수 있습니다.
HBMDEV의 치료 가능성에도 불구하고 시간이 많이 걸리거나 특수 장비가 필요하다는 점에서 현재의 격리 기술을 사용하는 데 알려진 한계가 있으며 둘 다 임상 환경에서 보편적으로 실용적이지 않습니다. EV 격리의 "황금 표준"에는 여러 차례의 차등 초원심분리가 포함되며, 이는 EV의 만족스러운 수율을 생성하지만 구조적 무결성과 기능에 영향을 미칠 수 있습니다 8,9. 또한, 초원심분리 시간은 최소 2시간일 수 있으며, 이는 임상 환경에서 비용이 많이 드는 자원입니다9. 절연 키트는 시간을 절약하고 어느 정도 비용 효율적인 것으로 입증되었습니다. 그러나 이러한 방법을 사용한 분리는 수율이 낮아 확장성이 낮아집니다. 따라서 EV 수율을 희생하지 않으면서 시간을 절약하고 비용 효율적인 HBMDEV 분리 기술이 필요합니다.
이 프로토콜은 기존의 임상적으로 이용 가능하고 FDA 승인 도구를 사용하여 HBM에서 EV를 신속하게 분리하는 단계별 방법을 설명하는 것을 목표로 합니다. 이를 달성하기 위해 표준 원심분리와 임상 등급 필터 확장 시스템을 활용하여 HBM에서 EV를 분리했습니다. 이러한 소포는 예상 크기 범위 내에 있고, 알려진 EV와 일치하는 형태를 나타내며, EV 마커가 풍부하며, 기존의 초원심분리 분리 기술을 사용하여 분리된 EV와 기능적으로 유사합니다. 따라서 이 HBM EV 분리 프로토콜은 임상 환경에서 HBM에서 분리된 EV의 실용적이고 신속한 분리 및 적용을 허용할 수 있습니다.
프로토콜
모유는 버밍엄에 있는 앨라배마 대학교(UAB) 지역 집중 치료실에서 수집되었습니다. 환자가 사용하기 위해 모유를 해동한 후 수집한 샘플을 수집했으며 환자는 전체 수유를 할 수 없었습니다. 이러한 사료는 일반적으로 폐기되지만 연구 목적으로 수집되었습니다. 비식별화된 개인으로부터 샘플을 수집하여 실험 시간까지 -80°C에서 보관했습니다. 이 컬렉션은 UAB 내부 검토 위원회 프로토콜 N160203002의 승인을 받았습니다. 사용된 시약과 장비는 재료표에 나와 있습니다.
1. 세포외 소포 분리(차등 초원심분리)
- 생물 안전 캐비닛에서 모유를 15mL 원추형 튜브의 멸균 PBS에 1:10으로 희석합니다.
- 모유를 300 x g 으로 4°C에서 10분 동안 원심분리합니다. 원심분리 후에는 유지방(최상층), 유청유 또는 탈지유(중간 수성층), 세포 및 기타 파편(하단에 펠릿)의 3개의 뚜렷한 층이 있어야 합니다. 생물 안전 캐비닛에서 펠릿은 방해받지 않고 70μm 필터(지방을 더 쉽게 제거할 수 있음)를 통해 유지방과 유청 층을 걸러냅니다. 흐름을 새 튜브로 옮깁니다.
- 샘플을 4°C에서 10분 동안 2600 x g 으로 원심분리합니다. 이 단계에서 잔여 유지방, 세포 및 파편이 제거됩니다. 생물 안전 캐비닛에서 70μm 필터를 통해 상청액을 여과합니다. 상청액을 초원심분리기 튜브로 옮깁니다. 초원심분리 전에 튜브에 최소 10mL의 액체가 있는지 확인하십시오.
- 샘플을 4°C에서 45분 동안 20,000 x g 으로 초원심분리합니다. 초원심분리 후, 1.2단계와 유사한 3개의 층이 있을 수 있습니다: 유지방, 유청 또는 탈지유, 세포 및 기타 파편. 생물 안전 캐비닛에서 펠릿을 방해하지 않고 70μm 필터를 통해 유지방과 유청 층을 걸러냅니다. 상청액을 15mL 원추형 튜브로 옮깁니다.
- 생물 안전 캐비닛에서 주사기는 0.22μm 필터로 모유를 여과합니다. 상청액을 새로운 초원심분리기 튜브로 옮깁니다. 초원심분리 전에 튜브에 최소 10mL의 액체가 있는지 확인하십시오.
- 샘플을 4°C에서 70분 동안 110,000 x g 로 초원심분리합니다. 상청액을 흡인하고 펠릿을 멸균 PBS 10mL에 재현탁합니다.
- 샘플을 110,00 x g 에서 4°C에서 70분 동안 다시 초원심분리합니다.
- 생물 안전 캐비닛에서 펠릿을 150-200μL의 멸균 PBS에 재현탁합니다.
2. 세포외 소포 분리(급속여과법)
- 생물 안전 캐비닛에서 멸균 PBS에 모유(1:10)를 희석합니다.
- 모유를 300 x g 으로 4°C에서 10분 동안 원심분리합니다. 원심분리 후에는 유지방(최상층), 유청유 또는 탈지유(중간 수성층), 세포 및 기타 파편(바닥에 펠릿)의 세 가지 뚜렷한 층이 있어야 합니다. 생물 안전 캐비닛에서 펠릿은 방해받지 않고 70μm 필터(지방을 더 쉽게 제거할 수 있음)를 통해 유지방과 유청 층을 걸러냅니다. 흐름을 새 튜브로 옮깁니다.
- 샘플을 2600 x g에서 4°C에서 10분 동안 원심분리합니다. 이 단계에서 잔여 유지방, 세포 및 파편이 제거됩니다. 생물 안전 캐비닛에서 70μm 필터를 통해 상청액을 걸러냅니다. 상청액을 15mL 튜브로 옮깁니다.
- 생물 안전 캐비닛에서 0.22μm, 16인치 필터 확장 세트를 5.4mL PBS로 프라이밍합니다.
- 프라임 시스템에는 주사기에 멸균 PBS 5.4mL를 넣고 튜브의 다른 쪽 끝에서 PBS가 떨어질 때까지 시스템을 세척합니다.
- 주사기는 0.22μm, 16인치 필터 확장 세트를 통해 모유를 여과합니다. 이 단계에서 잔여 유지방, 세포 및 파편이 제거됩니다.
알림: 샘플에 존재하는 파편의 양에 따라 둘 이상의 필터 확장 세트가 필요할 수 있습니다. - 15mL 원추형 튜브에 플로우 스루를 수집합니다.
3. 나노사이트 추적 분석
- 멸균 PBS에서 샘플(1:1000)을 희석합니다. 급속 여과된 샘플은 희석하지 않은 상태로 사용할 수 있습니다.
- 샘플을 잠시 소용돌이치십시오. 샘플 1mL를 투베르쿨린 주사기에 넣습니다.
- 주사기를 주입 장치에 부착하고 주사기를 고정합니다.
- 분사 펌프를 50으로 설정합니다. 카메라를 켜서 보는 파티클이 너무 많거나 너무 적지 않은지 확인합니다. 입자의 흐름이 일정한지 확인하고 샘플 흐름에 건너뛰거나 갑작스러운 점프가 없는지 확인하십시오.
- 분사 펌프를 100으로 설정합니다. 프로토콜을 실행합니다.
참고: 소프트웨어는 총 5번의 읽기에 대해 분당 한 번 읽도록 설정되었습니다. - 샘플을 읽습니다.
- PBS로 샘플 사이에 Nanosight를 플러시합니다.
참고: 나노입자 추적 분석 시스템을 사용하여 밀리리터당 입자 크기와 입자 농도를 결정했습니다. 초원심분리 시료의 평균 농도는 3.30e+08 +/- 4.08 e+06 입자/mL인 반면, 급속여과법은 5.50e+08 +/- 1.16e+08입자/mL였다.
4. 세포외 소포의 음성 염색 및 투과 전자 현미경
참고: 엑소좀 농도가 108 범위인 샘플을 투과 전자 현미경(TEM)에 사용했습니다.
- 방전 장치를 사용하여 20mA에서 25초 동안 글로우 방전 형태/탄소 필름 코팅 메쉬 구리 EM 그리드.
- 그리드에 7μL의 EV 현탁액을 로드하고 1분 동안 배양합니다.
- Whatman 여과지로 그리드 아래에서 심지하여 샘플을 그리드 쪽으로 멀어지지 않고 그리드 쪽으로 "당기는" 방식으로 초과분을 흡수합니다.
- 피펫으로 EM 그리드 표면에 여과된 1% 우라닐 아세테이트(UA) 용액 7μL로 샘플을 즉시 염색합니다.
- 15초 후, 그리드 가장자리를 여과지와 접촉시켜 그리드에서 과도한 UA 용액을 제거했습니다. 80kv의 TEM에서 즉시(24시간 이내) 샘플을 봅니다.
5. 단백질 농도
- 아세톤은 -20°C에서 1시간 동안 250μL의 정제된 EV(1:4)를 침전시킵니다.
참고: 초원심분리 방법에 정제된 엑소좀 100μL를 사용하십시오. - 샘플을 16,000 x g 에서 30분 동안 원심분리합니다.
- 펠릿을 자연 건조시킨 다음 100μL의 RIPA 완충액에 재현탁합니다.
- BCA 단백질 분석 키트 프로토콜에 따라 단백질 농도를 결정합니다. 흡광도는 마이크로플레이트 리더를 사용하여 562nm에서 측정되었습니다.
참고: 모유 1mL는 일반적으로 초원심분리를 사용하여 약 1.3μg/mL의 단백질을 생성하고 급속 여과를 사용하여 약 0.2-1μg/mL의 단백질을 생성합니다.
6. 웨스턴 블롯
- 1 부피 단백질 샘플을 4 부피 레인 마커와 함께 배양하고 샘플 완충액을 줄인 다음 90°C에서 7분 동안 끓입니다.
- SDS 10% 겔에 10μg의 단백질을 70V에서 15분 동안 로드하고 실행합니다. 그런 다음 전압을 100V로 높이고 추가로 90분 동안 작동합니다.
- 15V에서 30분 동안 반건식 장치를 사용하여 겔을 니트로셀룰로오스 멤브레인으로 옮깁니다.
- 멤브레인을 TBS-0.1% 트윈(TBS-T)으로 각각 10분 동안 3회 세척합니다.
- Fast Blocking Buffer 용액(1x로 희석)을 사용하여 멤브레인을 30분 동안 차단합니다.
- 1차 항체(Hsp70-1:1000; CD63-1:1000 및 CD9-1:1000)을 1x 완충 용액에 넣고 로커10,11,12에서 4°C에서 하룻밤 동안 사용했습니다.
- TBS-T로 멤브레인을 각각 10분 동안 세 번 세척합니다.
- TBS-T의 2% 우유에 조사된 모든 단백질(Hsp70, CD9 및 CD63)에 대해 1:1000 희석으로 (H+L) HRP-접합체 항마우스 2차 항체를 첨가하고 로커에서 실온에서 2시간 동안 배양합니다.
- TBS-T로 멤브레인을 각각 10분 동안 세 번 세척합니다.
- ECL(1:1)을 사용하여 현상하고 현상액으로 필름을 찍습니다.
7. IEC-6 세포의 시험관 내 배양
- 1.0 x 10⁶ 세포를 T-25 플라스크에 5mL의 완전한 RPMI 배지에 시드합니다. 세포가 밤새 부착되도록 하십시오.
- 전체 배지를 제거하고 1-2mL의 PBS로 세척합니다.
- PBS를 흡인하고 EV가 없는 완전 RPMI 5mL를 추가합니다.
- 웰당 400μM, H, 2, O2 의 최종 농도와 10μg/mL의 EV를 밤새 세포에 동시에 추가합니다.
- 배지를 제거하고 1-2mL의 PBS로 세포를 세척합니다.
- PBS를 흡인하고 트립신 1mL를 첨가합니다.
- 세포를 37°C의 인큐베이터에 5분 동안 넣습니다.
- 전체 RPMI의 두 배를 추가하여 트립신을 비활성화합니다. 세포를 15mL 튜브로 옮기고 125 x g 에서 5분 동안 원심분리합니다.
- 상청액을 흡인하고 펠릿을 PBS 1mL에 재현탁합니다.
- 세포 계수기를 사용하여 세포 수를 계산합니다.
결과
초원심분리 및 신속 분리를 이용한 EV 분리
독단적으로 HBM으로부터의 EV 분리에는 유지방 및 기타 큰 입자를 제거하기 위한 원심분리, 여과, 여러 차례의 초원심분리 및 PBS에서 EV 농축 샘플의 재현탁이 포함됩니다. 급속 여과 방법은 원심분리를 활용하여 유지방과 세포 파편을 제거한 다음 0.22μm 필터 확장 필터를 통해 여과하여 잔류 파편을 추가로 제거하여 기존 초원심분리에 필적하는 EV 농축 샘플을 생성합니다(그림 1).
필터 확장 급속 여과 시스템의 HBMDEV 특성화
Nanosight 추적 분석은 초원심분리(그림 2A)와 급속 필터 분리 HBMDEV(그림 2B) 사이에 비슷한 입자 크기를 보여주었습니다. 두 방법 모두 분리된 EV의 평균 크기가 약 100nm임을 나타냅니다. EV는 숙주 세포에서 다양한 표적으로 분비하기 위해 다양한 화물(즉, 단백질, 지질, miRNA 등)을 운반합니다. 따라서, 조사된 첫 번째 표적 단백질은 열충격 단백질 70(Hsp70)으로, EV를 통해 수송되는 것으로 알려진 단백질이다13. 웨스턴 블롯 분석은 급속 여과를 사용하여 분리된 EV가 초원심분리를 사용하여 분리된 EV와 유사한 Hsp70 발현을 나타냈음을 보여줍니다(그림 3A 및 보충 그림 1A). 또한, EV는 CD9 및 CD63과 같은 테트라스파닌의 표면 발현을 통해 식별될 수 있습니다14. 웨스턴 블롯 분석은 급속 여과를 통해 분리된 EV가 실제로 CD9(그림 3B 및 보충 그림 2B) 및 CD63(그림 3C 및 보충 그림 3C)을 발현하는 것으로 나타났습니다. 마지막으로, 투과 전자 현미경을 통한 HBMDEV의 형태학적 분석은 두 분리 기술 간에 유사한 소포 형태를 나타냈습니다(그림 4A-D).
여러 실험실에서 EV가 세포 스트레스 동안 세포 생존을 촉진하는 보호 특성을 부여한다는 것을 보여주었습니다 2,3,7. 이전에 발표된 보고서와 유사하게 신속 여과 방법을 사용하여 분리된 EV는 과산화수소 유도 세포 사멸로부터 장 상피 세포(IEC-6)를 보호할 수 있습니다2 (그림 5A,B). 이러한 데이터는 급속 여과 방법을 사용하여 분리된 HBMDEV가 차등 초원심분리를 사용하여 분리된 HBMDEV와 비교 품질을 가질 뿐만 아니라 기능적으로도 유사하다는 것을 시사합니다.
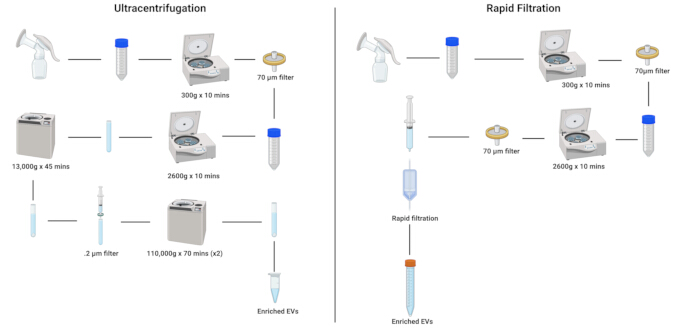
그림 1: 인간 모유에서 EV를 분리하는 초원심분리와 급속여과 방법의 차이점을 설명하는 개략도. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
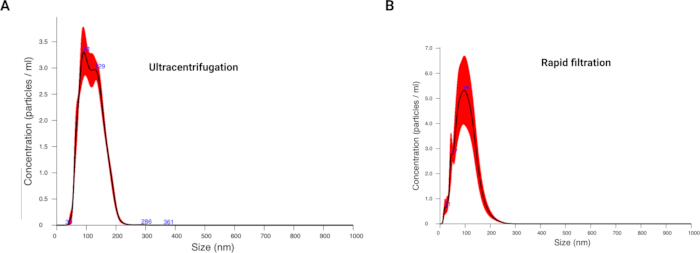
그림 2: 초원심분리 및 급속여과 방법을 사용하여 인간 모유에서 분리된 EV의 나노사이트 추적 분석. (A) 초원심분리를 사용하여 분리된 인간 모유 EV(1x PBS에서 1:1000로 희석)의 NTA. 표시된 데이터는 3-4개의 독립적인 시험을 단일로 표현한 것입니다. (B) 급속 여과를 사용하여 분리된 인간 모유 EV의 NTA. 표시된 데이터는 3-4개의 독립적인 시험을 단일로 표현한 것입니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
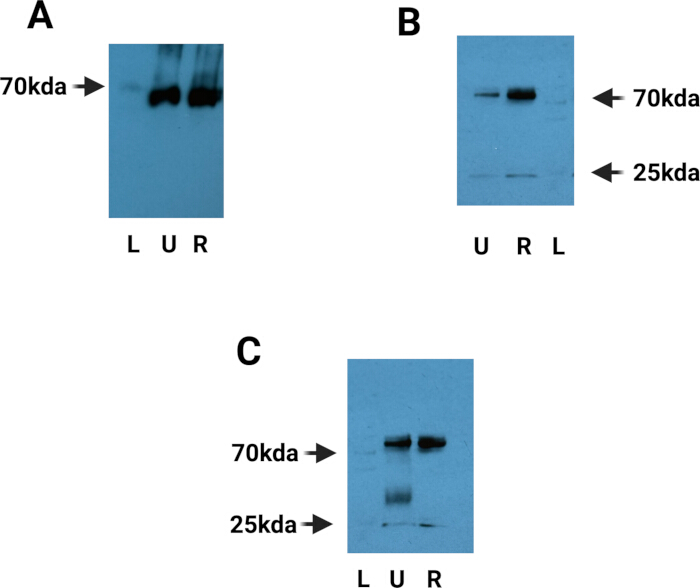
그림 3: 초원심분리 및 급속 여과를 사용하여 분리된 EV의 웨스턴 블롯 분석. (A) 열충격 단백질 70(Hsp70) 10μg의 1초 노출. "L"은 사다리를 나타내고, "U"는 초원심분리를 나타내며, "R"은 급속 여과를 나타냅니다. 급속 여과에 의해 얻은 샘플을 110,000 × g 에서 70분 동안 원심분리하여 두 번 농축했습니다. 표시된 이미지는 4개의 독립적인 시험 중 하나를 나타냅니다. (B) CD9 10μg의 22초 노출. "L"은 사다리를 나타내고, "U"는 초원심분리를 나타내며, "R"은 급속 여과를 나타냅니다. 급속 여과 샘플은 70분 동안 110,000 × g에서 원심분리하여 농축하고 2회 수행했습니다. 표시된 이미지는 4개의 독립적인 시험 중 하나를 나타냅니다. (C) CD63 10μg의 22초 노출. "L"은 사다리를 나타내고, "U"는 초원심분리를 나타내며, "R"은 급속 여과를 나타냅니다. 급속 여과 샘플은 70분 동안 110,000 × g에서 원심분리하여 농축하고 2회 수행했습니다. 표시된 이미지는 4개의 독립적인 시험 중 하나를 나타냅니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
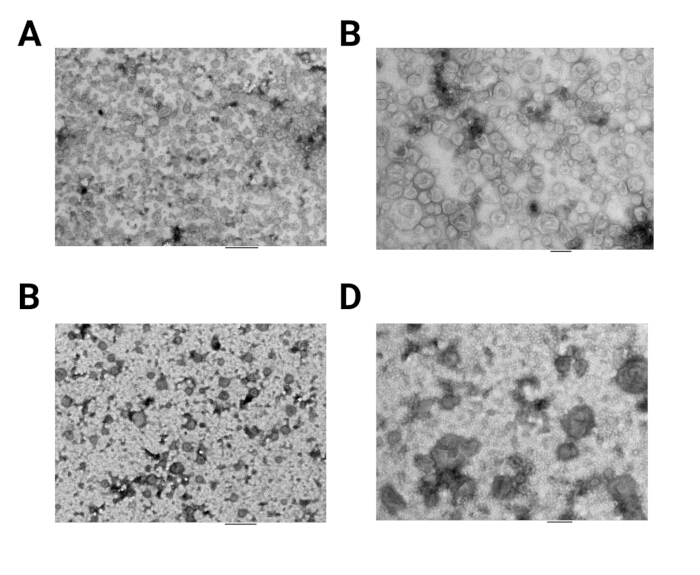
그림 4: 초원심분리 및 급속여과를 사용하여 분리된 EV의 투과전자 현미경 분석. (A) 8,000× 배율의 초원심분리를 사용하여 분리된 EV의 전자 현미경 사진. 스케일 바 = 800nm. 표시된 이미지는 세 가지 독립적인 시험 중 하나를 나타냅니다. (B) 20,000× 배율의 초원심분리를 사용하여 분리된 EV의 전자 현미경 사진. 스케일 바 = 200nm. 표시된 이미지는 세 가지 독립적인 시험 중 하나를 나타냅니다. (C) 8,000× 배율의 급속 여과를 사용하여 분리된 EV의 전자 현미경 사진. 스케일 바 = 800nm. EV는 70분 동안 110,000 × g 에서 원심분리하여 농축하고 2회 수행했습니다. 표시된 이미지는 세 가지 독립적인 시험 중 하나를 나타냅니다. (D) 20,000× 배율의 급속 여과를 사용하여 분리된 EV의 전자 현미경 사진. 스케일 바 = 200nm. EV를 110,000 × g 에서 70분 동안 원심분리하여 농축하고 2회 수행했습니다. 표시된 이미지는 세 가지 독립적인 시험 중 하나를 나타냅니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
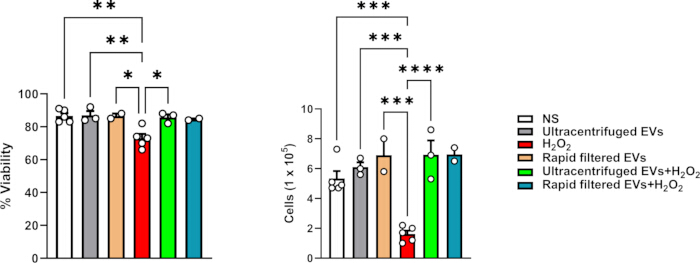
그림 5: 초원심분리 및 급속 여과를 사용하여 분리된 EV의 기능 분석. (A) EV가 없는 완전 RPMI-1640 배지에서 배양된 IEC-6 세포의 세포 생존력. 세포를 400μM, H, 2, O2 및 10μg/mL의 EV로 동시에 하룻밤 동안 처리했습니다. 표시된 데이터는 두 개의 독립적인 시험 중 하나를 나타냅니다. (B) EV가 없는 완전 RPMI-1640 배지에서 배양된 IEC-6 세포의 세포 수. 세포를 400μM, H, 2, O2 및 10μg/mL의 EV로 동시에 하룻밤 동안 처리했습니다. 표시된 데이터는 두 개의 독립적인 시험 중 하나를 나타냅니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
보충 그림 1: 초원심분리 및 급속 여과를 사용하여 분리된 EV에서 Hsp70의 웨스턴 블롯 특성화. 10μg의 열충격 단백질 70(Hsp70)을 1초 동안 노출시켰습니다. "L"은 사다리를 나타내고, "U"는 초원심분리를 나타내며, "R"은 급속 여과를 나타냅니다. 급속 여과 샘플은 70분 동안 110,000 × g에서 원심분리하여 농축하고 2회 수행했습니다. 각 샘플은 단일 생물학적 복제를 나타냅니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 2: 초원심분리 및 급속여과를 사용하여 분리된 EV에서 CD9의 웨스턴 블롯 특성화. CD9 10μg의 5분 노출. "L"은 사다리를 나타내고, "U"는 초원심분리를 나타내며, "R"은 급속 여과를 나타냅니다. 급속 여과 시료를 110,000 × g 에서 70분 동안 원심분리하여 농축하고 2회 수행하였다. 각 샘플은 단일 생물학적 복제를 나타냅니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
보충 그림 3: 초원심분리 및 급속 여과를 사용하여 분리된 EV에서 CD63의 웨스턴 블롯 특성화. 10μg의 CD63을 10분 동안 노출시킵니다. "L"은 사다리를 나타내고, "U"는 초원심분리를 나타내며, "R"은 급속 여과를 나타냅니다. 급속 여과 시료를 110,000 × g 에서 70분 동안 원심분리하여 농축하고 2회 수행하였다. 각 샘플은 단일 생물학적 복제를 나타냅니다. 이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
EV는 다양한 염증 메커니즘을 조절하고 보호 이점을 제공할 수 있다는 문헌에 따르면 주목을 받고 있습니다 2,7. 그러나 임상 환경에서 EV의 실제 사용의 한계는 EV를 분리하고 충분한 수율을 추출하는 데 필요한 시간입니다 8,15. 여기에서는 FDA 승인 여과 시스템을 사용하여 HBM에서 EV를 빠르고 효율적으로 분리하기 위한 단계별 프로토콜이 설명되었습니다. 이 방법의 유용성은 수율 저하 없이 기존 EV 절연 방법을 절반으로 줄입니다. 따라서 이 프로토콜은 가까운 장래에 EV 요법이 승인될 경우 임상 환경에서 인간 모유 유래 EV의 실제 치료 적용을 허용할 수 있습니다.
기존 EV 격리 프로토콜은 소스 유체에서 EV의 일관되고 효과적인 수율을 입증했습니다. 그러나 황금 표준, 차등 초원심분리, 상용 키트 사용 등 전통적인 격리 수단에는 한계가 없는 것은 아닙니다. 차등 초원심분리를 통한 EV의 분리는 효과적이지만 최소 ~3시간 2,8,15의 결합된 스핀 시간을 포함하는 프로토콜에서는 시간이 많이 걸립니다. EV 수를 적절하게 정량화하기 위한 프로토콜과 결합된 격리 시간은 임상 환경에서 시간 제약 하에서 사용하기 어렵게 만들 것입니다. 더욱이 상용 키트는 효과적이지만 비용이 많이 듭니다. 또한 이러한 키트의 높은 비용을 감안할 때 키트당 처리할 수 있는 샘플 수가 적습니다 8,15.
이 프로토콜은 EV 수율이나 순도를 희생하지 않고 시간과 비용을 절약하는 이러한 제한에 대한 솔루션을 제공합니다. 이 프로토콜이 효과적이려면 프로토콜을 수행할 때 따라야 하는 주요 단계가 있습니다. 모유의 희석 및 초기 원심분리는 우유 샘플에서 세포외 파편과 유지방을 제거하는 데 필요합니다. 이 잔해물을 제거하는 것은 필터 확장 시스템의 막힘을 방지하는 데 중요하므로 하나의 샘플에 여러 필터를 사용할 필요가 없습니다. 또한 PBS로 필터 확장 시스템을 세척하는 것은 샘플을 준비하기 위해 필터를 프라이밍하기 때문에 중요합니다. 프라이밍은 프라이밍 과정에서 샘플이 손실되지 않도록 하는 데 도움이 됩니다. 모유 샘플의 함량에 따라 여과 전에 샘플을 희석 및 원심분리하는 것과 관계없이 하나 이상의 필터 확장 세트가 필요할 수 있다는 점에 유의해야 합니다. 이 경우 둘 이상의 필터를 사용할 수 있습니다. 그러나 새로운 필터 확장 세트는 샘플을 여과하기 전에 프라이밍해야 합니다.
이 프로토콜은 인간 모유에서 EV를 분리하는 데 효과적이고 일관되지만 고려해야 할 몇 가지 제한 사항이 있습니다. 샘플을 여과 하기 전에 원심분리 단계(두 스핀 사이의 총 시간 ~20분)가 필요합니다. 원심분리 없이 희석된 시료를 여과하려고 하면 필터 확장 시스템이 반복적으로 막히고 시료가 손실되며 EV 분리 프로토콜에 추가 시간이 추가됩니다. 더욱이 NTA 및 TEM 분석에서 입증된 바와 같이 샘플은 순수하지 않았습니다. 여과 전에 원심분리되지 않은 샘플을 사용하려고 하면 원치 않는 오염 물질이 샘플에 유입될 수 있으며, 이는 분리된 EV의 향후 다운스트림 적용에 따라 표적을 벗어난 효과를 생성할 수 있습니다. 또한 이 프로토콜은 인간 모유에서 EV를 분리하는 경우에만 구현되었습니다. 따라서 다른 유체로부터 EV를 분리하는 이 프로토콜의 효능은 조사되지 않았습니다. 모든 체액의 수성 특성을 감안할 때 이 프로토콜을 사용하여 EV를 다른 소스로부터 분리하는 경우 EV 순도와 수율에 차이가 없을 것으로 예상됩니다.
또한 이 프로토콜은 작은 세포외 소포(sEV)를 분리하는 데 효율적이라는 점에 유의해야 합니다. NTA에 따르면 HBM 유래 EV의 크기는 ~100nm였으며, 이는 샘플에 더 큰 EV가 존재하지 않음을 시사합니다. 그 이유는 이 연구 당시 실험실의 주요 초점인 엑소좀 및 기타 더 작은 EV의 분리에 주로 사용되는 0.22μm 필터를 사용하여 샘플을 필터링했기 때문입니다. 이론적으로 기공 크기가 더 큰 필터를 사용하면 더 큰 EV를 격리할 수 있습니다. 그러나 이러한 질문은 본 연구의 범위를 벗어납니다.
인간 모유 유래 EV는 임상 사용을 위해 쉽게 접근할 수 있는 천연 치료 원천을 나타냅니다. EV 작업을 임상 환경에 도입하는 데 있어 한 가지 제한 사항은 모든 시설에서 잠재적으로 사용할 수 있는 실용적인 방법으로 EV를 격리하는 것입니다. 이 프로토콜은 이러한 한계를 극복하도록 설계되었으며 병원 환경에서 쉽게 적용할 수 있으며 상업적으로 이용 가능한 기존 병원 등급의 FDA 승인 여과 시스템을 사용하여 구현하거나 표준 초원심분리기보다 훨씬 저렴한 가격에 구입할 수 있습니다. 이 방법은 비용 효율적이며 임상 환경에서 이미 사용되는 여과 시스템에서 EV가 풍부하고 순수한 샘플을 생성합니다.
공개 사항
저자는 이 기사의 연구, 저자 및/또는 출판과 관련하여 잠재적인 이해 상충이 없음을 선언했습니다.
감사의 글
이미지와 그림은 biorender.com 사용하여 생성되었습니다. 이 간행물에 보고된 연구는 UAB 고해상도 이미징 시설의 지원을 받았습니다. 이 작업은 NIH/NICHD 5R21HD104481의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| (H+L) HRP 켤레 안티마우스 | 바이오-래드 | 1721011 | |
| (H+L) HRP 켤레 안티래빗 | 바이오-래드 | 1706515 | |
| 0.20 주사기 필터 | 피셔브랜드 | 09-719C | |
| 0.70 um 셀 스트레이너 | 코닝 | 431751 | |
| 150만 트리스 HCL | 자체 제작 | ||
| 15 mL 튜브 | 팔콘 | 352096 | |
| 16인치 필터 확장 세트 | B-브라운 | FE2012F | |
| 1M 트리스 HCL | 테크노바 | T1068 | |
| 1배 PBS | 깁코 | 10010-031 | |
| 50 mL 튜브 | 팔콘 | 353070 | |
| 5배 환원 샘플 버퍼 | 써모 사이언티픽 | 39000 | |
| 아실아마이드 | 피셔 사이언티프 | BP1410-1 | |
| 암포테리신 B | 깁코 | 15290-018 | |
| AMT 나노스프린트43 마크-II 카메라 | AMT | ||
| 안티-앤티 | 깁코 | 15240-062 | |
| 안티-CD63 | 노부스비오 | NBP2-32830 | |
| 안티-CD9 | 인비트로젠 | 10626D | |
| APS | 써모 사이언티픽 | 17874 | |
| BCA 단백질 분석 키트 | 피어스 | 23227 | |
| 벡맨 진공관 | 벡맨은 coulter | 344059 | |
| 브라이트스타 ECL 케미루미네센트 | 알칼리 사이언티픽 | XR92 | |
| 엑소좀 고갈된 FBS | 피셔 사이언티브 | NC0464480 | |
| 고속 차단 버퍼 | 피어스 | 37575 | |
| 태아 소 혈청 | 라이프 테크놀로지 | 10082147 | |
| HSP70 | 인비트로젠 | MA3-006 | |
| 인간 인슐린 | 시그마-올드리치 | I9278-5ML | |
| 과산화수소 | 피셔 사이언티브 | H325-500 | |
| IEC-6 | ATCC | CRL-1592 | |
| JEOL 1400 플래시 템 | JEOL USA 주식회사 | ||
| 레인 마커 감소 시료 버퍼 | 써모 사이언티픽 | 39000 | |
| 분유 | 바이오월드 | 30620074-1 | |
| 나노사이트 NS 300 | 말번 인스트루먼트 주식회사 | ||
| 니트로셀룰로오스 막 | 생명체 기술 | 88018 | |
| PELCO 이지글로우 방전 장치 | 테드 펠라 | ||
| 프로테아제 억제제 미니 정제 | 피어스 | A32955 | |
| RIPA 버퍼 | 피어스 | 89901 | |
| RPMI 1640 | 피셔 사이언티프 | 11875119 | |
| SDS | 피셔 사이언티프 | BP2436-200 | |
| T-25 플라스크 | 써모 사이언티픽 | 156367 | |
| TBS | 자체 제작 | ||
| 테메드 | 바이오-래드 | 161-0801 | |
| 트립신 EDTA | 깁소 | 25200-056 | |
| 트윈 20세 | 써모 사이언티픽 | J20605-AP |
참고문헌
- Galley, J. D., Besner, G. E. The therapeutic potential of breast milk-derived extracellular vesicles. Nutrients. 12 (3), 745(2020).
- Martin, C., et al. Human breast milk-derived exosomes attenuate cell death in intestinal epithelial cells. Innate Immun. 24 (5), 278-284 (2018).
- Hock, A., et al. Breast milk-derived exosomes promote intestinal epithelial cell growth. J Pediatr Surg. 52 (5), 755-759 (2017).
- Alexander, M., et al. Exosome-delivered microRNAs modulate the inflammatory response to endotoxin. Nat Commun. 6, 7321(2015).
- Lasser, C., et al. Human saliva, plasma, and breast milk exosomes contain RNA: Uptake by macrophages. J Transl Med. 9, 9(2011).
- Chan, C. C., et al. Type I interferon sensing unlocks dormant adipocyte inflammatory potential. Nat Commun. 11 (1), 2745(2020).
- Miyake, H., et al. Human breast milk exosomes attenuate intestinal damage. Pediatr Surg Int. 36 (2), 155-163 (2020).
- Gao, J., et al. Recent developments in isolating methods for exosomes. Front Bioeng Biotechnol. 10, 1100892(2022).
- Patel, G. K., et al. Comparative analysis of exosome isolation methods using culture supernatant for optimum yield, purity and downstream applications. Sci Rep. 9 (1), 5335(2019).
- Gandhi, J., Naik, M. N., Mishra, D. K., Joseph, J. Proteomic profiling of Aspergillus flavus endophthalmitis-derived extracellular vesicles in an in vivo murine model. Med Mycol. 60 (9), myac064(2022).
- Palinski, W., et al. Lysosome purinergic receptor p2x4 regulates neoangiogenesis induced by microvesicles from sarcoma patients. Cell Death Dis. 12 (9), 797(2021).
- Tantengco, O. aG., Radnaa, E., Shahin, H., Kechichian, T., Menon, R. Cross talk: Trafficking and functional impact of maternal exosomes at the feto-maternal interface under normal and pathologic statesdagger. Biol Reprod. 105 (6), 15621576(2021).
- Caruso Bavisotto, C., et al. Exosomal hsp60: A potentially useful biomarker for diagnosis, assessing prognosis, and monitoring response to treatment. Expert Rev Mol Diagn. 17 (9), 815-822 (2017).
- Feng, X., et al. Latest trend of milk-derived exosomes: Cargos, functions, and applications. Front Nutr. 8, 747294(2021).
- Li, P., Kaslan, M., Lee, S. H., Yao, J., Gao, Z. Progress in exosome isolation techniques. Theranostics. 7 (3), 789-804 (2017).
재인쇄 및 허가
