세포주는 숙주 세포 외부에서 배양할 수 없는 세포 내 유기체에 대한 연구에 유용합니다. Wolbachia에 감염된 계통은 많은 발견을 가능하게 했지만 이러한 계통 내의 이질성으로 인해 다양한 실험 결과가 나올 수 있습니다. Wolbachia에 감염된 JW18 세포에서 단일 세포 클론 및 연속 배양을 생성하기 위한 프로토콜을 제시합니다.
방법 논문
Wolbachia에 감염된 Drosophila melanogaster JW18 세포주에서 단클론 배양 생성
이 논문에서
요약
초록
세포주는 생물학 연구에서 널리 사용되는 모델입니다. 이들은 숙주 유기체 외부로 효율적으로 증식할 수 없는 세포 내 박테리아 연구에 특히 유용합니다. 많은 무척추 동물의 세포 내 공생체인 Wolbachia는 곤충 숙주에 강력한 생식 및 항바이러스 효과를 유발합니다. Wolbachia에 감염된 곤충 세포는 Wolbachia 표현형을 연구하는 데 널리 사용되었습니다. 그러나 이러한 세포주는 종종 잠재적으로 다양한 표현형과 실험적 치료에 대한 반응을 가진 세포의 혼합 집단으로 구성됩니다. 특히, Wolbachia 가 있는 세포주는 한 계대에서 다음 계대까지 다양한 성장 속도와 다양한 Wolbachia 감염 유병률을 나타내는 것으로 보고되었습니다. 이 문제를 해결하기 위해 Wolbachia에 감염된 Drosophila melanogaster 유래 JW18 세포주에서 단클론 세포주를 생성했습니다. 이러한 클론 계통은 서로 다른 시점에 확립되었으며 서로 다른 Wolbachia 감염 상태를 보여줍니다. 이러한 변동성은 부모 JW18 집단에 적용된 모든 치료법이 전체 배양의 생리학에 영향을 미치는 것이 아니라 하위 집단의 선택으로 이어질 수 있음을 시사합니다. 여기에서는 Wolbachia에 감염된 곤충 세포에서 단일 세포 클론 및 연속 클론 배양을 생성하는 프로토콜을 제시하여 보다 통제되고 재현 가능한 실험을 가능하게 합니다.
서론
초파리 멜라노가스터 세포는 유전자 연구, 질병 연구 및 고처리량 약물 스크리닝을 위한 플랫폼으로 널리 사용됩니다1. 그들은 또한 지구상에서 가장 널리 퍼진 세포 내 미생물 중 하나인 Wolbachia를 연구하는 데 도움이 됩니다. Wolbachia는 곤충 종의 40-70%에서 발견되는 그람 음성 절대 세포 내 박테리아 2,3,4로, 모체로 퍼져 생식 조작을 유도합니다 5,6,7,8. Wolbachia는 또한 감염된 숙주에게 항바이러스 보호 9,10,11,12,13,14,15 를 제공할 수 있으며, 이는 생식 조작과 함께 모기에서 인간으로의 아르보바이러스 전염을 통제하는 데 이용되고 있습니다 16,17. 다양한 시스템에서 Wolbachia는 세포사멸(apoptosis)18을 조절하고, 필수 영양소를 공급하며19, 유전자 및 단백질 발현을 변화시키는 것으로 나타났습니다 20,21,22,23,24,25.
세포주는 단순한 생물학, 편의성 및 대량으로 증식할 수 있는 능력 때문에 Wolbachia를 연구하기 위한 모델로 부상했습니다. 세포주는 Wolbachia가 새로운 숙주와 공생하도록 사전 적응하고(pre-adaption) 26 Wolbachia가 돌연변이를 축적할 수 있도록 하는 데 유용한 것으로 입증되었습니다27,28. 그들은 필라리아 질환29 및 볼바키아-숙주 번역 상호 작용30 연구에 도움이 될 수 있는 항 볼바키아 화합물을 스크리닝하는 데 사용되었습니다. 세포주는 Wolbachia 공생 29,30,31에 대한 연구에서 필수적이지만, 대부분의 Wolbachia 표현형의 기저에 있는 메커니즘은 아직 알려지지 않았습니다. 이는 세포 배양 모델 시스템이 여전히 개선될 수 있음을 시사합니다.
Wolbachia에 감염된 곤충 세포주는 곤충 배아와 유충에서 유래합니다. Aedes albopictus 배아에서 유래 한 Aa 23은 최초의 안정적인 Wolbachia 감염 line32였으며 이후 Wolbachia 공생33 , 34 , 35 에 대한 많은 연구에 사용되었습니다. JW18 세포주는 D. melanogaster29,36에서 생성된 최초의 자연 Wolbachia 감염 세포 중 하나였습니다. 멜에 감염된 파리의 1시간에서 15시간 배아에서 유래한 이 세포주는 다른 초파리 세포주(1182-4H 및 S2R+37)에 대한 볼바키아(Wolbachia)의 공급원으로도 작용했습니다. 배아는 만능 세포의 비율이 높기 때문에 플라스틱에서 자라도록 적응함으로써 개별 세포 계통에 따라 다른 새로운 특성을 얻을 수 있습니다. 이것은 이러한 세포에서 관찰된 세포 형태와 Wolbachia 감염 빈도의 이질성을 설명할 수 있습니다29.
Aag2와 같은 모기 세포주에 대한 연구에서 단클론 세포주와 부모 세포주가 세포 특성의 변화로 인해 치료에 다르게 반응할 수 있음을 보여주었기 때문에 JW18 배양 내의 세포 다양성은 우려를 불러일으킵니다38. 결과적으로, 혼합된 세포 집단에 치료를 투여하면 오해의 소지가 있는 결과를 초래할 수 있습니다. 치료제에 대한 동질적인 세포 집단의 반응을 연구하기 위해(개별 세포 유형에 대한 선택이 아님) 부모 JW18 세포주에서 단클론 배양을 생성했습니다. 이러한 세포에서 단클론 배양을 생성하려는 이전 시도는 없었습니다. 이 프로토콜은 부모 JW18 세포주에서 단일 세포를 분리한 다음 유지 관리하고 플라스크로 옮겨 지속적인 클론 배양을 확립하는 것을 포함합니다. 우리는 개별 라인의 Wolbachia 감염 상태를 확인했으며, 이 주요 특징이 다르다는 것을 보여주었습니다. 균질한 세포 배양은 향후 실험의 정확성과 재현성을 보장하는 데 중요합니다.
프로토콜
참고: 살아있는 세포 및 그 배지에 대한 모든 작업은 오염을 방지하기 위해 생물 안전 캐비닛에서 수행해야 합니다.
1. 배지 준비
- Shield 및 Sang Insect 배지에 10% 소 태아 혈청(FBS)을 보충하여 신선한 배양 배지를 준비합니다.
- 소비된 매체 및 컨디셔닝된 매체
- 25°C에서 10% FBS가 보충된 신선한 방패와 Sang 곤충 배지가 포함된 25cm2 플라스크에서 JW18 세포를 성장시킵니다. 세포가 포화도(~1주)에 도달할 때까지 배양합니다.
- 세포 성장에 사용된 1주일 된 세포 배양 배지를 여과하여 Wolbachia, 세포 파편 및 기타 오염 물질을 제거합니다: 5μm 멸균 필터를 사용한 다음 50mL 주사기에 장착된 0.2μm 멸균 필터를 사용합니다.
- 사용한 배지의 20%를 새 배지로 보충하여 컨디셔닝 배지를 준비합니다. 하나의 96웰 플레이트(~30mL)에 대해 충분한 컨디셔닝 배지를 준비합니다. 혈청학적 피펫을 사용하여 여과된 사용한 배지 6mL와 10% FBS가 보충된 24mL의 신선한 Shield 및 Sang Insect 배지를 혼합합니다.
2. 96웰 플레이트의 준비
- JW18 세포 현탁액의 제조
- 세포 스크레이퍼를 사용하여 1주일 된 융합 플라스크에서 세포를 긁어내고 혈청학 피펫을 사용하여 다시 현탁시킵니다.
- Neubauer 챔버를 사용하여 세포를 계수하고 컨디셔닝 배지로 희석하여 2 x 10³ cells/mL의 최종 농도를 달성합니다.
- 플레이트에 컨디셔닝된 배지 추가
- 준비된 컨디셔닝된 배지를 시약 저장소로 옮깁니다.
- 멀티채널 피펫을 사용하여 웰 A1을 제외한 100μL의 컨디셔닝 배지를 96웰 플레이트의 각 웰에 추가합니다.
- 세포 현탁액의 연속 희석
- 200μL의 세포 현탁액을 well A1에 추가합니다.
- 단일 채널 피펫을 사용하여 웰 A1에서 웰 B1로 100μL를 옮기고 그림 1A와 같이 부드럽게 혼합합니다(기포 방지).
- 연속 희석 다운 컬럼 1을 반복하여 마지막 웰에서 최종 100μL를 버립니다.
- 플레이트 전체의 희석
- 100μL의 컨디셔닝 배지를 첫 번째 컬럼의 각 웰에 총 부피 200μL에 추가합니다. 부드럽게 혼합합니다.
- 멀티채널 파이펫을 사용하여 첫 번째 컬럼에서 두 번째 컬럼으로 100 μL를 전달합니다. 부드럽게 섞는다.
- 플레이트 전체의 모든 열(1-12)에 대해 이 과정을 반복합니다(그림 1A).
- 재현탁 후 마지막 컬럼에서 100μL를 버립니다. 이 시점에서 각 웰에는 100μL의 세포 현탁액이 포함되어 있습니다.
- 모든 웰에 100μL의 배양 배지를 추가하여 각 웰의 최종 부피를 200μL로 만듭니다.
3. 단세포 식별
- 접시를 덮고 파라필름으로 밀봉한 다음 적절하게 라벨을 붙입니다.
- 현미경으로 플레이트를 관찰하고 각 웰에 단일 세포가 있는지 주의 깊게 확인합니다(그림 1B). 웰과 가장자리를 철저히 스캔하여 세포가 하나만 있는지 확인하십시오.
참고: 이것은 프로토콜에서 가장 중요한 단계 중 하나입니다. - 단일 세포의 웰 수를 96웰 플레이트 맵(종이에)에 기록합니다.
참고: 단일 세포는 플레이트의 오른쪽과 아래쪽을 향한 웰에서 발견될 가능성이 더 높습니다. - 단일 세포가 식별되고 표시되면 플레이트를 25°C의 인큐베이터에 보관합니다. 2일마다 세포를 모니터링합니다.
4. 세포의 유지 및 이동
- 셀 모니터링
참고: JW18 세포는 일반적으로 단일 세포에서 분열을 시작하는 데 3일이 걸리며, 클론 집단은 다른 속도로 성장할 수 있습니다(그림 2).- 2-3일마다 우물을 모니터링하여 박테리아 오염이 있는지 확인하고 배지가 마르지 않았는지 확인합니다. 우물이 마르는 것 같으면 필요에 따라 새 매체를 보충하십시오.
- 세포 확장
- 세포가 96웰 플레이트에서 합류점에 도달하면 24웰 플레이트로 이동합니다(그림 1D).
- 그런 다음 세포를 6웰 플레이트로 옮기고 마지막으로 플라스크로 옮깁니다(그림 1E, F).
참고: 이 단계적 확장은 연속적인 클론 세포주를 확립할 가능성을 높입니다.
- 세포 동결
- 클론 배양이 확립되면 나중에 사용할 수 있도록 세포의 일부를 동결합니다.
- 세포 스크레이퍼를 사용하여 플라스크에서 세포를 긁어내고 15mL 원심분리 튜브로 옮깁니다. 250 x g 에서 4°C에서 5분간 원심분리기.
- 2x 동결 배지(20% FBS 및 10% DMSO가 보충된 Shield 및 Sang Insect Medium)를 준비합니다.
- 원심분리 후 상층액의 일부를 버리고 최종 원하는 부피의 절반을 남깁니다. 동일한 부피의 2x 동결 매체를 잔류 상층액에 첨가하고 피펫을 사용하여 펠릿을 부드럽게 재현탁합니다.
- 현탁액 1mL를 각 1.5mL 극저온에 분취하고 바이알을 얼음 위에 놓습니다. 바이알을 -80°C에서 하룻밤 동안 보관한 다음 다음 날 장기 보관을 위해 액체 질소 탱크로 옮깁니다.
- 클론 배양이 확립되면 나중에 사용할 수 있도록 세포의 일부를 동결합니다.
5. Wolbachia 상태를 확인하기 위한 PCR
- 페놀-클로로포름 방법39를 사용하여 단클론 배양 샘플에서 DNA를 추출합니다.
- 스크랩된 세포와 재현탁한 세포 1mL를 1.5mL 마이크로 원심분리 튜브에 넣고 290 x g 의 세포를 4°C에서 5분 동안 원심분리합니다. 상등액(세포 배양 배지)을 버리고 튜브를 얼음 위에 놓습니다.
- 250M Tris HCl(pH 0.1), 0.1M EDTA 및 0.1% SDS로 구성된 용액 A의 1μL를 추가합니다. 세포를 재현탁하고 가열 블록에서 70°C에서 30분 동안 배양합니다.
- 배양 후 8M 칼륨 아세테이트 35μL를 넣고 튜브를 부드럽게 흔든(와류 방지) 얼음 위에서 30분 더 배양합니다.
- 13,000 °C에서 15 분 동안 4 rpm으로 회전하고 상층액을 새 튜브로 옮기고 동일한 부피의 페놀 클로로포름을 첨가합니다. 잘 흔들고 다시 돌리면서 이 단계를 한 번 반복합니다.
- 상층액을 새 튜브로 옮긴 다음 150μL의 이소프로판올을 넣고 흔든 다음 10,000rpm에서 5분 동안 회전합니다. 상등액을 조심스럽게 제거하고 1mL의 70% 에탄올로 펠릿을 세척하고 13,000rpm으로 회전합니다.
- 펠릿을 실온에서 10분 동안 건조시킨 후 100μL의 TE 완충액에 재현탁합니다. DNA를 정량화하고 -20°C에서 보관합니다.
- 단클론 배양 샘플에서 추출한 DNA로 기존 PCR을 수행하여 DreamTaq Green PCR 마스터 믹스를 사용하여 Wolbachia를 검출합니다. DNA 품질 관리를 위해 Wolbachia 및 Drosophila rpl32 프라이머41에는 wsp 81F 및 wsp 691R primers40을 사용하십시오.
- 마스터 믹스 7.5 μL, 10 μM에서 각 프라이머 0.5 μL, 1:50으로 희석된 DNA 1 μL 및 분자 등급 물 5.5 μL를 추가하여 15 μL의 반응 혼합물을 얻습니다.
- 다음 PCR 프로그램을 사용하십시오 : 94 ° C 4 분, 30 사이클 x (94 ° C 40 초, 55 ° C 40 초, 72 ° C 30 초), 72 ° C 10 분. PCR 후, 4 °C에서 샘플을 저장합니다.
- 얻어진 PCR 산물을 90V에서 TAE 완충액에 2% 아가로스 젤로 넣고 아가로스 젤 전기영동을 수행하여 밴드를 시각화합니다. DNA ladder를 추가하여 wsp (632 bp) 및 rpl32 (194 bp)의 밴드를 식별합니다.
6. 세포주에서 Wolbachia 감염을 시각화하기 위한 FISH 염색
- Quasar 670 태그가 부착된 16s rRNA FISH 프로브 세트로 Wolbachia를 염색하기 위한 부착 세포에 대한 Stellaris FISH 프로토콜에 설명된 대로 형광 FISH(Fluorescent in situ hybridization)를 수행합니다. Hoechst 33342로 핵산을 염색합니다.
참고: 이 프로브 세트는 wMel 16S rDNA 염기서열을 기반으로 설계되었으며 Schneider et al.42 에 발표된 프로브 세트와 일치합니다( 보충 표 S1 참조).- 제조업체의 지침에 따라 시약(고정 완충액, 혼성화 완충액, 세척 완충액 A 및 B, 재구성 맞춤형 프로브 세트)을 준비합니다43.
- 24웰 배양판에서 70% 에탄올 멸균 18mm 원형 커버 유리에서 부착 세포를 성장시킵니다. 세포가 원하는 농도에 도달하면 성장 배지를 흡인하고 1mL의 1x PBS로 세척합니다. 고정 완충액 1mL를 추가하고 실온에서 10분 동안 배양합니다. 1x PBS 1mL로 세포를 두 번 세척합니다.
- 커버슬립을 70% 에탄올 1mL에 세포와 함께 담그어 투과하고 4°C에서 밤새 배양합니다. 혼성화 전 최대 1주일 동안 이 온도에서 샘플을 에탄올에 보관하십시오. 에탄올을 흡인하고 Wash Buffer A 1mL를 첨가합니다. 실온에서 2-5분 동안 배양합니다.
- 150mm 배양 접시에 물에 적신 종이 타월과 파라필름 층을 놓아 가습 챔버를 준비합니다. 12.5μM 프로브 스톡 1μL를 파라필름에 함유한 100μL의 혼성화 완충액을 피펫으로 만듭니다. 커버 유리를 부드럽게 뒤집어 세포를 아래로 향하게 하여 혼성화 버퍼의 드롭 위에 놓습니다. 파라필름으로 챔버를 덮고 밀봉한 다음 37°C의 어둠 속에서 최소 4시간(필요한 경우 최대 16시간) 동안 배양합니다.
- 혼성화 후, 커버 유리 세포 면을 1mL의 Wash Buffer A가 포함된 새 웰로 조심스럽게 옮기고 37°C에서 30분 동안 배양합니다. 완충액을 흡입하고 0.5μL의 20mM Hoechst 스톡을 700μL의 세척 완충액 A에 추가합니다. 어둠 속에서 30분 동안 37°C에서 배양합니다.
- Hoechst 용액을 제거하고 1mL의 세척 버퍼 B를 첨가하십시오. 실온에서 2-5분 동안 배양합니다. 마지막으로, 현미경 슬라이드에 작은 방울(10μL)의 장착 매체를 놓고 덮개 유리 셀을 아래로 향하게 하여 낙하 위에 장착합니다. 과도한 장착 매체를 부드럽게 흡수하고 투명 매니큐어로 커버 유리 주변을 밀봉합니다.
- 슬라이드를 4°C에서 보관하고 가능한 한 빨리 이미징을 진행하십시오.
- ImageJ44를 사용하여 이미지를 처리합니다. 채널을 분할하고 필요에 따라 색상 팔레트를 변경합니다.
결과
단일 세포 현탁액 및 도금을 준비하는 날(0일차)부터 연속 세포주 확립(45일 또는 77일차, 그림 2)까지 광학 현미경으로 단클론 배양을 확립하는 과정을 시각화했습니다. 세포 분열의 첫 징후는 웰당 이미 4개의 세포가 있는 3일째(도금 후 4일, 도금은 0일에 수행됨)에 관찰되었습니다(그림 2). 14일째에 클론은 단층(JW18-B9, C7 및 E5) 또는 구(JW18-G4)로 성장했는데, 이는 통과 중에 중단되었습니다. 28일째에는 세포주 간 성장의 차이가 가장 뚜렷했습니다. JW18-C7 배양은 45일째에 합류한 반면, 나머지 클론 배양은 77일째에야 확립되었습니다. 또한 세포 형태의 차이를 포착하기 위해 확립 후 30개의 다른 배양을 시각화했습니다(그림 3).
단클론 배양의 Wolbachia 감염 상태를 확인하기 위해 PCR(그림 4) 및 FISH(그림 5)를 수행했습니다. 우리는 하나의 클론(JW18-C7)을 제외한 모든 클론이 wsp 유전자에 대한 띠를 생성하는 것을 관찰했으며, 이는 Wolbachia 감염을 나타냅니다. FISH는 PCR 결과를 확증했다: 클론 JW18-B9, JW18-E5 및 JW18-G4는 볼바키아 감염을 유지한 반면, 클론 JW18-C7은 볼바키아를 가지고 있지 않았다. 전반적으로, 혼합된 JW18 세포 집단에서 4개의 클론 배양을 확립할 수 있었으며, 그 중 3개는 원래의 Wolbachia 감염을 유지했습니다. 원시 데이터는 Figshare에서 액세스할 수 있습니다. https://figshare.com/s/15fde47ca7338f31dda9.
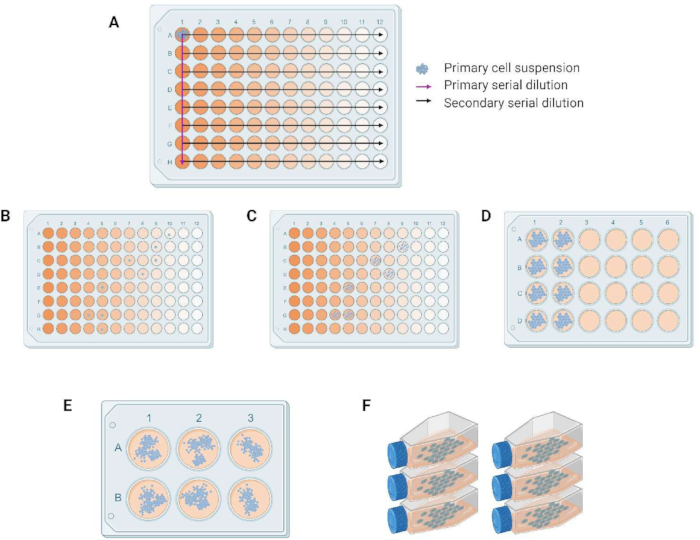
그림 1: 단클론 배양 생성을 위한 워크플로우. (A) 96웰 플레이트의 1차 및 2차 희석액. (B) 연속 희석 후 단일 세포. (씨-E) 세포의 증식 및 96웰에서 24웰 및 6웰 플레이트로의 이동의 진행. (F) 25cm2 세포 배양 플라스크에서 연속 배양. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
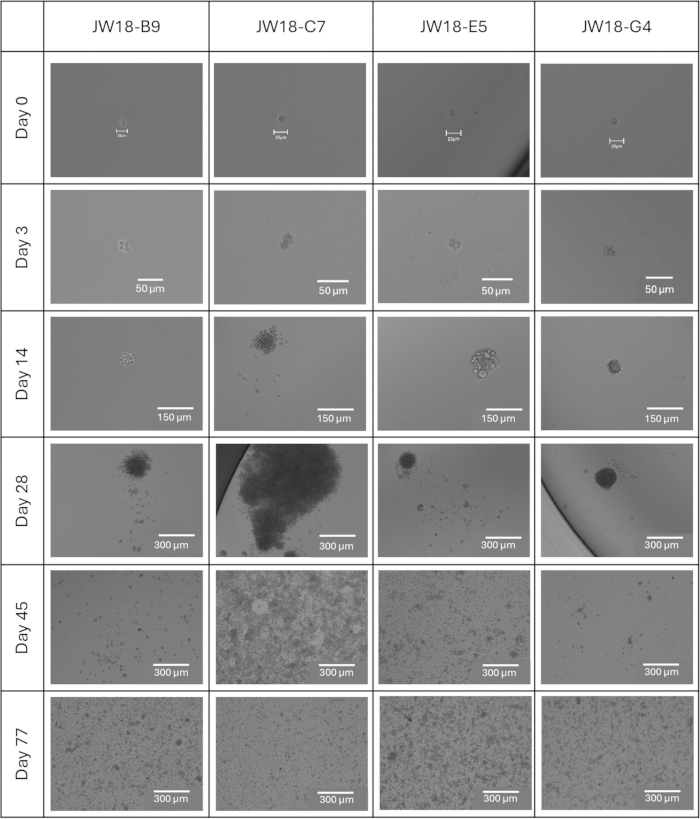
그림 2: JW18 클론 세포주가 단세포에서 다세포 배양으로 진행됨. 0일(도금 당일)부터 77일째까지, 25cm2 세포 배양 플라스크에서 모든 라인이 성공적으로 확립된 클론 라인의 명시야 이미지. 눈금자 = 25μm(0일차), 50μm(3일차), 150μm(14일차), 300μm(28일, 45일, 77일). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
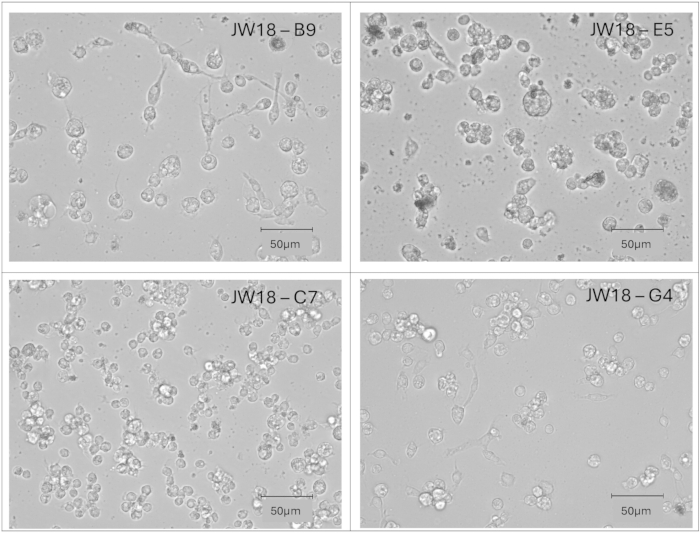
그림 3: 개별 JW18 클론 계통의 형태. 확립 후 통로 30에서 세포 형태를 보여주는 클론 라인의 명시야 이미지. 스케일 바 = 50μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
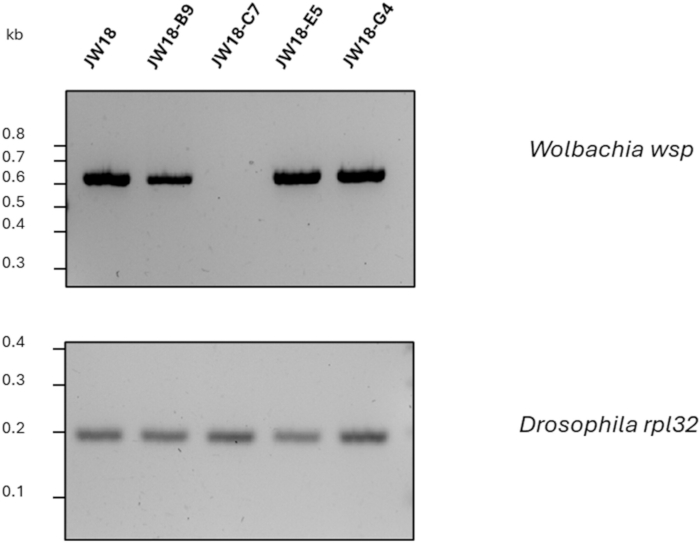
그림 4: PCR로 조사한 클론 배양의 Wolbachia 상태. JW18 모세포주 및 클론 라인 JW18-B9, JW18-C7, JW18-E5 및 JW18-G4에서 Wolbachia에 대한 PCR(통로 11 설립 후 발굴). Wolbachiawsp band는 Wolbachia의 존재를 확인하고 Drosophilarpl32 band는 DNA 품질 관리 PCR입니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
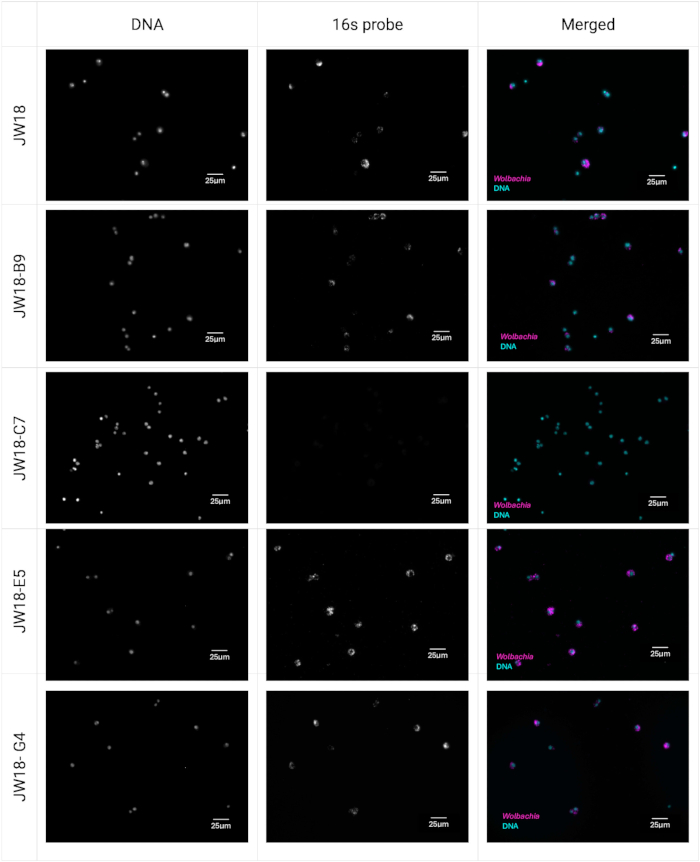
그림 5: FISH가 조사한 클론 배양의 Wolbachia 상태.JW18 모세포주 및 클론 JW18-B9, JW18-C7, JW18-E5, JW18-G4는 확립 후 통로 13에서 FISH 염색에 의해 시각화되었습니다. Wolbachia는 마젠타색으로 설정된 Quasar 670 태그가 지정된 16s rRNA Stellaris FISH 프로브로 염색되고 핵산은 청록색의 Hoechst 33342로 염색됩니다. 스케일 바 = 25μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
보충 표 S1: Wolbachia w Mel 16S rDNA에 대해 설계된 올리고뉴클레오티드 프로브 및 Schneider 등에 의해 발표된 프로브와의 비교.42. 이 표를 다운로드하려면 여기를 클릭하십시오.
토론
여기에서는 다른 초파리 및 곤충 세포주에 적용할 수 있는 JW18 D.melanogaster 세포주에서 단일 세포 클론을 생성하기 위한 표준화된 방법을 간략하게 설명합니다. 이 프로토콜은 개별 세포를 분리하기 위해 96웰 플레이트에 걸쳐 준비된 세포 현탁액을 연속적으로 희석하는 것을 포함합니다. 그런 다음 이러한 세포는 최적의 조건에서 배양되어 연속 배양을 확립합니다. 이 프로토콜은 또한 세포 생존 및 단일 세포 분열을 촉진하기 위해 20% 조건화된 배지를 추가하는 것을 포함합니다45,46.
프로토콜의 중요한 단계는 연속 희석 후 각 웰에 단일 세포가 있는지 확인하는 것입니다. 이 단계는 전체 프로토콜의 성공에 필수적이므로 세심한 주의가 필요합니다. 향후 단일 세포 기원을 쉽게 확인할 수 있도록 다양한 각도에서 선택한 웰의 이미지를 캡처하는 것이 좋습니다.
또 다른 중요한 단계는 배양 접시 간에 세포를 옮기는 것입니다. 연속 배양의 성공적인 확립을 보장하려면 세포가 합류점에 도달한 후에만 이식되어야 합니다. 세포 성장이 2주 이상 정체된 경우 배지를 새로 고치면 추가 성장을 촉진할 수 있습니다. 합류 전에 세포를 조기에 옮기면 세포가 사멸할 수 있습니다.
이 프로토콜은 FACS(Fluorescence-Activated Cell Sorting)38,46와 같이 일반적으로 사용되는 다른 방법보다 시간이 많이 걸리고 노동 집약적이지만 몇 가지 이점을 제공합니다. 여기에는 비용 효율성, 세포 손상 위험 최소화, 형광 마커에 대한 요구 사항 없음, 고가의 장비 및 최적화 시간이 포함됩니다. 전반적으로 이 프로토콜은 연속 세포주에서 균일한 곤충 세포 집단을 생성하는 데 매우 적합합니다.
monoclonal cultures의 특성
본 연구 결과는 단클론 배양이 형성 속도와 Wolbachia 감염 상태 측면에서 차이가 있음을 보여줍니다(그림 2, 그림 4 및 그림 5). Wolbachia-free 클론 JW18-C7은 당사의 단일 세포 분리 프로토콜에서 합류점에 도달하는 가장 빠른 클론이었습니다. Wolbachia 는 이 세포 계통에 항상 없었을 수도 있고, 숙주 세포의 분열 속도를 따라갈 수 없기 때문에 손실되었을 수도 있습니다. 또한 클로닝 프로토콜의 초기 낮은 세포 밀도로 인해 손실되었을 수도 있습니다. 그러나 다른 클론 세포주에서는 이러한 일이 발생하지 않았기 때문에 가능성은 낮다고 생각합니다. JW18-C7이 Wolbachia (다른 테트라사이클린 처리 클론과 함께)에 실험적으로 감염되면 이 선이 공생체에 허용되는지 여부에 대한 답이 될 수 있습니다.
세포 이질성은 JW18 세포주에만 국한되지 않으며 다른 Wolbachia 감염 세포주에 대해 이전에 보고된 바 있습니다 32,47,48,49,50,51,52. 이전의 개선 시도는 D. simulans 난자 또는 Aa23 세포에서 C7-10 A. albopictus 세포주53으로 Wolbachia를 전달하는 것과 관련이 있습니다. C7-10은 Wolbachia 전이54,55 하기 수년 전에 복제되었으며, 이러한 전이는 우리가 연구하고자 하는 자연 감염을 구성하지 않습니다.
개별 JW18 클론에 대한 Wolbachia 감염 상태와 단클론 배양 시기의 차이(세포 분열 속도의 차이를 나타냄)는 특정 치료에 대한 반응으로 Wolbachia 역가와 곤충 세포 성장률을 연결하는 이전 연구에 심오한 영향을 미칠 수 있습니다. 치료 시 변경된 세포 수, 공생체 밀도 또는 유전자 발현의 변화는 혼합 집단에서 모든 세포의 상태 변화보다는 특정 특성을 가진 세포 유형에 대한 선택에서 비롯될 수 있습니다. 따라서 주요 특성의 변동성이 있는 혼합 세포 집단에 치료를 투여하면 편향되고 재현 불가능한 결과가 나올 수 있습니다.
공개 사항
저자는 공개할 이해 상충이 없습니다.
감사의 글
JW18 세포주와 이를 사용하는 방법에 대한 유용한 제안에 대해 William Sullivan(University of California, Santa Cruz, USA), Laura Serbus(Florida International University, USA) 및 Luis Teixeira(Universidade Católica Portuguesa, 포르투갈, 리스본)에게 감사드립니다. 프로토콜에 대한 유용한 제안을 해주신 Nidhi Krishna Shrivastava(폴란드 크라쿠프 Jagiellonian University)에게 감사드립니다. 원고를 교정해 주신 Yuliya Chykunova(폴란드 크라쿠프 Jagiellonian University)에게 감사드립니다.
그림 1 은 BioRender(Chrostek, E. (2024) https://BioRender.com/o69b306)로 제작되었습니다.
이 작업은 EC에 수여된 ERC 시작 보조금(보조금 계약 ID: 101040311)과 NF에 수여된 정확한 및 자연 과학 박사 대학(Jagiellonian University)의 박사 펠로우십에 의해 지원됩니다. 그러나 표현된 견해와 의견은 저자의 견해일 뿐이며 반드시 유럽연합 또는 유럽연구이사회 집행기구의 견해와 의견을 반영하는 것은 아닙니다. 유럽 연합이나 부여 기관은 이에 대해 책임을 지지 않습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.22 & 마이크로; M 주사기 플리터  | TPP | 99722 | 메 마른 |
| 10x 인산염 완충 식염수(PBS) | 써모피셔 사이언티픽 | 70011044 | 메 마른 |
| 12 또는 18mm 원형 커버 유리 | 모든 브랜드 | ||
| 15 mL Falcon 튜브 | 제노플라스트 | 601052 | 메 마른 |
| 24웰 플레이트 | 사이토원 | CC7682-7524 | 조직 배양 처리 |
| 5 & 마이크로; M 주사기 필터 | 왓맨 | 10462000 | 메 마른 |
| 6-웰 플레이트 | 사이토원 | CC7682-7506 | 조직 배양 처리 |
| 96웰 플레이트 | 사이토원 | CC7682-7596 | 조직 배양 처리 |
| 아가로스 | 써모피셔 사이언티픽 | 제66501.30 | |
| 세포 배양 플라스크, 25cm2 | 그라이너 바이오 원 | 391-3103 | 메 마른 |
| 셀 스크레이퍼 | 그라이너 바이오 원 | 391-3010 | 메 마른 |
| 투명 매니큐어 | 모든 브랜드 | ||
| CryoPure 바이알 | 사르슈테트 | 72.379 | 메 마른 |
| DMSO, 세포 배양 등급 | 머 크 | D2650-100ML | 메 마른 |
| DreamTaq PCR 마스터 믹스 | 써모피셔 사이언티픽 | K1081 | |
| EDTA | 머 크 | 324503-100GM | 메 마른 |
| 전기영동 전원 공급 장치 | 머 크 | 추신 251-2 | |
| 에펜도르프 집중 장치 플러스 | 머 크 | EP5305000509 | 모든 브랜드의 진공 농축기를 대신 사용할 수 있습니다. |
| 에탄올 | 머 크 | 1009861000 | |
| EVOS M5000 이미징 시스템 | 써모피셔 사이언티픽 | AMF5000 | 모든 브랜드의 도립 현미경을 사용하여 클론 진행을 모니터링할 수 있습니다. FISH를 시각화하려면 형광 현미경이 필요합니다. |
| 태아 소 세럼 | 머 크 | F9665 | 열 비활성화 |
| 포름알데히드 | 써모피셔 사이언티픽 | 047377.9엘 | |
| 포름아미드 | 머 크 | F7503-100ML | |
| 겔 전기영동 탱크 | 클리버 사이언티픽 | 엠스미디 | |
| 겔 이미저 | 바이오래드 | 12009077 | GelDoc Go 겔 이미징 시스템 |
| GeneRuler 100 bp DNA 사다리 | 써모피셔 사이언티픽 | SM0243 | |
| 가열 블록 | 써모피셔 사이언티픽 | 88870005 | |
| Herasafe 2025 클래스 II 생물학적 안전 캐비닛 | 써모피셔 사이언티픽 | 51033314 | 모든 브랜드의 생물학적 안전 캐비닛은 내부의 멸균 환경을 유지하는 한 사용할 수 있습니다. |
| Hoechst 33342 용액 (20 mM) 5 mL | 써모피셔 사이언티픽 | 62249 | 어둠 속에 보관하십시오. |
| 염산 | 머 크 | 258148-2.5L | |
| 인테그라 바이오사이언스 코퍼레이션 PIPETBOY acu 2 피펫 보조 장치 | 피셔 사이언티픽 | NC0085686 | 모든 브랜드의 혈청학적 피펫 제어기를 사용할 수 있습니다. |
| 이소프로파놀 | 머 크 | I9516-1L | |
| 실험실 냉동고 | 립헤르 | LGUex 1500 메디라인 | 일정한 온도를 유지할 수 있는 모든 냉동고가 적합합니다. |
| 액체 질소 탱크 | 써모피셔 사이언티픽 | CY50985 | |
| 현미경 슬라이드 | 머 크 | CLS294875X25-72개 | |
| 분자 등급 물 | |||
| 다중 채널 피펫 | 에펜도르프 | 3125000036 | |
| 나노드롭 | 페클랩 | ND-1000 시리즈 | |
| 노이바우어 혈구측정기 | 머 크 | BR717810-1개 | |
| 파라필름 M 씰링 필름 | 머 크 | HS234526B-1개 | |
| 펠티에 냉각 인큐베이터 | 멤머트 | IPP55플러스 | 일정한 25를 유지할 수 있는 인큐베이터가 있습니까? C가 적합합니다. JW18 세포주 또는 그 클론에는 CO2 대조군이 필요하지 않습니다. |
| 페놀/클로로포름/이소아밀 알코올(25:24:1) | 써모피셔 사이언티픽 | 327115000 | |
| 피펫 세트 | 에펜도르프 | EP2231300008 | |
| 아세트산칼륨 | 머 크 | P1190-500G | 메 마른 |
| 퀘이사 670 태그 16s rRNA FISH 프로브 집합 | 바이오서치 기술 | 맞춤 제작된 프로브 시퀀스는 표 1에서 찾을 수 있습니다. | |
| 냉장 마이크로 원심분리기 | 랩넷 | C2500-R | |
| RPL32 프라이머 포워드 5'-CCGCTTCAAGGGACAGTATC-3' | 유로핀스 유전체학 | 논문에 인용된 참고 문헌을 기반으로 맞춤 제작 | |
| RPL32 프라이머 리버스 5'-CAATCTCCTTGCGCTTCTTG-3' | 유로핀스 유전체학 | 논문에 인용된 참고 문헌을 기반으로 맞춤 제작 | |
| SDS | 써모피셔 사이언티픽 | AM9823 | 메 마른 |
| 혈청학적 피펫 | 코 닝 | 357771 | |
| Shields and Sang M3 곤충 미디엄 | 머 크 | S8398 | 메 마른 |
| Stellaris RNA FISH 혼성화 완충액 | 바이오서치 기술 | 에스엠에이프-HB1-10 | 메 마른 |
| Stellaris RNA FISH 세척 완충액 A | 바이오서치 기술 | SMF-WA1-60 | 메 마른 |
| Stellaris RNA FISH 세척 완충액 B | 바이오서치 기술 | 에스엠에이프-WB1-20 | 메 마른 |
| 멸균 시약 저장소 | 써모피셔 사이언티픽 | 8094 | 메 마른 |
| TAE 버퍼 | 머 크 | 1061741000 | 1x |
| TE 버퍼 | 머 크 | 93283 | 메 마른 |
| 열 순환기 | 신젠바이오텍 | 써모블록 96 | 대신 모든 브랜드의 열 순환기를 사용할 수 있습니다. |
| 트리스 베이스 | 머 크 | 10708976001 | 메 마른 |
| 초저온 냉동고 | PHC 법인 | MDF-DU502VH-PE | -80을 유지할 수 있는 실험실 냉동고는 무엇입니까? C를 사용할 수 있습니다. |
| Vectashield 마운팅 매체 | 벡터 연구소 | H-1000-10 | |
| wsp 프라이머 포워드 5'-TGGTCCAATAAGTGATGAAGAAAC-3' | 유로핀스 유전체학 | 논문에 인용된 참고 문헌을 기반으로 맞춤 제작 | |
| wsp 프라이머 리버스 5'-AAAAATTAAACGCTACTCCA-3' | 유로핀스 유전체학 | 논문에 인용된 참고 문헌을 기반으로 맞춤 제작 |
참고문헌
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: current challenges and opportunities. Wiley Interdiscip Rev Dev Biol. 8 (3), e339(2019).
- Hilgenboecker, K., Hammerstein, P., Schlattmann, P., Telschow, A., Werren, J. H. How many species are infected with Wolbachia? A statistical analysis of current data. FEMS Microbiol Lett. 281 (2), 215-220 (2008).
- Zug, R., Hammerstein, P. Still a host of hosts for Wolbachia: analysis of recent data suggests that 40% of terrestrial arthropod species are infected. PLoS One. 7 (6), e38544(2012).
- Weinert, L. A., Araujo-Jnr, E. V., Ahmed, M. Z., Welch, J. J. The incidence of bacterial endosymbionts in terrestrial arthropods. Proc R Soc B. 282 (1807), 20150249(2015).
- Hoffmann, A. A., Turelli, M. Unidirectional incompatibility in Drosophila simulans: inheritance, geographic variation and fitness effects. Genetics. 119 (2), 435-444 (1988).
- O'Neill, S. L., Giordano, R., Colbert, A. M., Karr, T. L., Robertson, H. M. 16S rRNA phylogenetic analysis of the bacterial endosymbionts associated with cytoplasmic incompatibility in insects. Proc Natl Acad Sci U S A. 89 (7), 2699-2702 (1992).
- Stouthamer, R., Breeuwer, J. A. J., Luck, R. F., Werren, J. H. Molecular identification of microorganisms associated with parthenogenesis. Nature. 361 (6407), 66-68 (1993).
- Rousset, F., Bouchon, D., Pintureau, B., Juchault, P., Solignac, M. Wolbachia endosymbionts responsible for various alterations of sexuality in arthropods. Proc R Soc Lond B Biol Sci. 250 (1328), 91-98 (1992).
- Hedges, L. M., Brownlie, J. C., O'Neill, S. L., Johnson, K. N. Wolbachia and virus protection in insects. Science. 322 (5902), 702(2008).
- Teixeira, L., Ferreira, Á, Ashburner, M. The bacterial symbiont Wolbachia induces resistance to RNA viral infections in Drosophila melanogaster. PLoS Biol. 6 (12), e1000002(2008).
- Glaser, R. L., Meola, M. A. The native Wolbachia endosymbionts of Drosophila melanogaster and Culex quinquefasciatus increase host resistance to West Nile virus infection. PLoS One. 5 (8), e11977(2010).
- van den Hurk, A. F., et al. Impact of Wolbachia on infection with chikungunya and yellow fever viruses in the mosquito vector Aedes aegypti. PLoS Negl Trop Dis. 6 (11), e1892(2012).
- Aliota, M. T., et al. The wMel strain of Wolbachia reduces transmission of chikungunya virus in Aedes aegypti. PLoS Negl Trop Dis. 10 (4), e0004677(2016).
- Kean, J., et al. Fighting arbovirus transmission: natural and engineered control of vector competence in Aedes mosquitoes. Insects. 6 (1), 236-278 (2015).
- Joubert, D. A., et al. Establishment of a Wolbachia superinfection in Aedes aegypti mosquitoes as a potential approach for future resistance management. PLoS Pathog. 12 (2), e1005434(2016).
- Ross, P. A. Designing effective Wolbachia release programs for mosquito and arbovirus control. Acta Trop. 222, 106045(2021).
- Flores, H. A., O'Neill, S. L. Controlling vector-borne diseases by releasing modified mosquitoes. Nat Rev Microbiol. 16 (8), 508-518 (2018).
- Pannebakker, B. A., Loppin, B., Elemans, C. P. H., Humblot, L., Vavre, F. Parasitic inhibition of cell death facilitates symbiosis. Proc Natl Acad Sci U S A. 104 (1), 213-215 (2007).
- Hosokawa, T., Koga, R., Kikuchi, Y., Meng, X. -Y., Fukatsu, T. Wolbachia as a bacteriocyte-associated nutritional mutualist. Proc Natl Acad Sci U S A. 107 (2), 769-774 (2010).
- Zheng, Y., et al. Differentially expressed profiles in the larval testes of Wolbachia-infected and uninfected Drosophila. BMC Genomics. 12 (1), 595(2011).
- Xi, Z., Gavotte, L., Xie, Y., Dobson, S. L. Genome-wide analysis of the interaction between the endosymbiotic bacterium Wolbachia and its Drosophila host. BMC Genomics. 9 (1), 1(2008).
- Lindsey, A. R. I., Bhattacharya, T., Hardy, R. W., Newton, I. L. G. Wolbachia and virus alter the host transcriptome at the interface of nucleotide metabolism pathways. mBio. 12 (1), e03472-e03520 (2021).
- Detcharoen, M., Schilling, M. P., Arthofer, W., Schlick-Steiner, B. C., Steiner, F. M. Differential gene expression in Drosophila melanogaster and D. nigrosparsa infected with the same Wolbachia strain. Sci Rep. 11 (1), 11336(2021).
- Gruntenko, N. E., et al. Drosophila melanogaster transcriptome response to different Wolbachia strains. Int J Mol Sci. 24 (24), 17411(2023).
- Frantz, S. I., Small, C. M., Cresko, W. A., Singh, N. D. Ovarian transcriptional response to Wolbachia infection in D. melanogaster in the context of between-genotype variation in gene expression. G3 (Bethesda). 13 (5), jkad047(2023).
- McMeniman, C. J., et al. Host adaptation of a Wolbachia strain after long-term serial passage in mosquito cell lines. Appl Environ Microbiol. 74 (22), 6963-6969 (2008).
- Woolfit, M., et al. Genomic evolution of the pathogenic Wolbachia strain, wMelPop. Genome Biol Evol. 5 (11), 2189-2204 (2013).
- Martinez, J., Sinkins, S. P. Rapid evolution of Wolbachia genomes in mosquito cell culture. bioRxiv. , (2023).
- Serbus, L. R., et al. A cell-based screen reveals that the albendazole metabolite, albendazole sulfone, targets Wolbachia. PLoS Pathog. 8 (9), e1002922(2012).
- Grobler, Y., et al. Whole genome screen reveals a novel relationship between Wolbachia levels and Drosophila host translation. PLoS Pathog. 14 (11), e1007445(2018).
- Rainey, S. M., et al. Wolbachia blocks viral genome replication early in infection without a transcriptional response by the endosymbiont or host small RNA pathways. PLoS Pathog. 12 (4), e1005536(2016).
- O'Neill, S. L., et al. In vitro cultivation of Wolbachia pipientis in an Aedes albopictus cell line. Insect Mol Biol. 6 (1), 33-39 (1997).
- Fenollar, F., Maurin, M., Raoult, D. Wolbachia pipientis growth kinetics and susceptibilities to 13 antibiotics determined by immunofluorescence staining and real-time PCR. Antimicrob Agents Chemother. 47 (5), 1665-1671 (2003).
- Fallon, A. M., Witthuhn, B. A. Proteasome activity in a naïve mosquito cell line infected with Wolbachia pipientis wAlbB. In Vitro Cell Dev Biol Anim. 45 (8), 460-466 (2009).
- Molloy, J. C., Sommer, U., Viant, M. R., Sinkins, S. P. Wolbachia modulates lipid metabolism in Aedes albopictus mosquito cells. Appl Environ Microbiol. 82 (10), 3109-3120 (2016).
- Andrianov, B. V., Goriacheva, I. I., Alexandrov, I. D., Gorelova, T. V. Establishment of a new continuous cell line of Drosophila melanogaster strain infected by the intracellular endosymbiotic bacterium Wolbachia pipientis under natural conditions. Russ J Genet. 46 (1), 9-12 (2010).
- Fattouh, N., Cazevieille, C., Landmann, F. Wolbachia endosymbionts subvert the endoplasmic reticulum to acquire host membranes without triggering ER stress. PLoS Negl Trop Dis. 13 (3), e0007218(2019).
- Fredericks, A. C., et al. Aedes aegypti (Aag2)-derived clonal mosquito cell lines reveal the effects of pre-existing persistent infection with the insect-specific bunyavirus Phasi Charoen-like virus on arbovirus replication. PLoS Negl Trop Dis. 13 (11), e0007346(2019).
- Kirby, K. S. A new method for the isolation of ribonucleic acids from mammalian tissues. Biochem J. 64 (3), 405-408 (1956).
- Zhou, W., Rousset, F., O'Neill, S. Phylogeny and PCR–based classification of Wolbachia strains using wsp gene sequences. Proc R Soc Lond B Biol Sci. 265 (1395), 509-515 (1998).
- Chrostek, E., et al. Wolbachia variants induce differential protection to viruses in Drosophila melanogaster: a phenotypic and phylogenomic analysis. PLoS Genet. 9 (12), e1003896(2013).
- Schneider, D. I., Parker, A. G., Abd-alla, A. M., Miller, W. J. High-sensitivity detection of cryptic Wolbachia in the African tsetse fly (Glossina spp). BMC Microbiol. 18 (S1), 140(2018).
- Stellaris RNAFISH protocol for adherent cells. , LGC Biosearch Technologies. https://biosearchassets.biosearchtech.com/assetsv6/bti_stellaris_protocol_adherent_cell.pdf (2021).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 9 (7), 671-675 (2012).
- Freshney, I. Cloning and selection. Culture of Animal Cells: a Manual of Basic Technique. , 207(2010).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Sci Signal. 8 (393), (2015).
- Fenollar, F., et al. Culture and phenotypic characterization of a Wolbachia pipientis isolate. J Clin Microbiol. 41 (12), 5434-5441 (2003).
- Dobson, S. L., Marsland, E. J., Veneti, Z., Bourtzis, K., O'Neill, S. L. Characterization of Wolbachia host cell range via the in vitro establishment of infections. Appl Environ Microbiol. 68 (2), 656-660 (2002).
- Frentiu, F. D., Robinson, J., Young, P. R., McGraw, E. A., O'Neill, S. L. Wolbachia-mediated resistance to dengue virus infection and death at the cellular level. PLoS One. 5 (10), e13398(2010).
- Voronin, D. A., Bochernikov, A. M., Baricheva, E. M., Zakharov, I. K., Kiseleva, E. V. Influence of Drosophila melanogaster genotype on biological effects of endosymbiont Wolbachia (stamm wMelPop). Tsitologiia. 51 (4), 335-345 (2009).
- Venard, C. M. -P., Crain, P. R., Dobson, S. L. SYTO11 staining vs FISH staining: a comparison of two methods to stain Wolbachia pipientis in cell cultures. Lett Appl Microbiol. 52 (2), 168-176 (2011).
- Casper-Lindley, C., et al. Rapid fluorescence-based screening for Wolbachia endosymbionts in Drosophila germ line and somatic tissues. Appl Environ Microbiol. 77 (14), 4788-4794 (2011).
- Khoo, C. C. H., Venard, C. M. P., Fu, Y., Mercer, D. R., Dobson, S. L. Infection, growth and maintenance of Wolbachia pipientis in clonal and non-clonal Aedes albopictus cell cultures. Bull Entomol Res. 103 (3), 251-260 (2013).
- Singh, K. R. P. Cell cultures derived from larvae of Aedes albopictus (Skuse) and Aedes aegypti (L.). Curr Sci. 36 (19), 506-508 (1967).
- Nouri, N., Fallon, A. M. Pleiotropic changes in cycloheximide-resistant insect cell clones. In Vitro Cell Dev Biol. 23 (3), 175-180 (1987).
재인쇄 및 허가
