이 기사에서는 소 테카 세포와 과립막 세포의 공동 배양 모델을 제시합니다. 이 방법은 난포 내 체세포 사이의 측분비 통신 및 기질 수송 연구에 초점을 맞춘 분석을 위한 신뢰할 수 있는 기초가 될 수 있는 잠재력을 가지고 있습니다.
이 논문에서
요약
초록
과립막(GC)과 테카 세포(TC)의 신뢰할 수 있는 공동 배양은 소 난소 난포의 두 세포 구획 사이의 상호 작용, 신호 전달 경로 및 기질 교환에 대한 보다 포괄적인 이해를 촉진할 수 있는 잠재력을 가지고 있습니다. 상업적으로 이용 가능한 세포 배양 삽입물을 활용하여 소 GC와 TC의 재현 가능한 공동 배양 모델이 확립되었습니다. 일차 테카 및 과립막 세포는 세포주에 비해 삽입막에 부착하는 데 훨씬 더 많은 시간이 필요한 것으로 관찰되었습니다. 처음에 TC는 배지 누출을 방지하기 위해 접종 용기 역할을 하는 잘린 튜브와 함께 거꾸로 된 삽입 멤브레인에 시딩되었습니다. 72시간의 배양 기간 후, 삽입물을 뒤집어 GC를 멤브레인의 반대쪽에서 배양할 수 있도록 했습니다. 이 공동 배양은 37°C 및 5% CO2에서 추가로 6일 동안 배양했으며 격일로 배지를 교환했습니다. 마커 유전자의 발현은 세포 유형 특이적 패턴을 나타냈으며, CYP17A1 는 TC에서 매우 풍부하고 GC에서는 발현되지 않았습니다. 반대로, CYP19A1 GC에서는 높은 수준, TC에서는 낮은 수준만 나타났습니다. 호르몬 분석은 에스트라디올의 합성으로 입증된 바와 같이 생리학적 공동 배양 시스템의 존재를 뒷받침했습니다. 이 수정된 공동 배양 모델은 난포의 체세포 사이의 측분비 신호 전달 및 기질 수송에 대한 재현 가능한 연구를 지원합니다.
서론
난포 형성 동안 황체 형성 호르몬(LH)의 급증은 난소의 생리적 변화의 연쇄를 유발하여 궁극적으로 배란 중에 성숙한 난모세포의 방출로 이어집니다 1,2. 이 과정은 난모세포 성숙에 필수적인 지원을 제공하고 적절한 배란 기능을 보장하는 난포 체세포에 의해 엄격하게 조절됩니다3. 난포는 두 가지 유형의 스테로이드 생성 체세포, 즉 과립막 세포(GC)의 내부 층과 테카 세포(TC)의 외부 층으로 구성됩니다. 이 중 GC는 LH 급증 이후 가장 뚜렷한 형태학적 및 기능적 변화를 겪으며, 이는 난포 발달의 마지막 단계를 조율하는 데 중요한 역할을 강조합니다4. 결과적으로, GC는 난포 형성, 배란 및 황체 형성에 영향을 미칠 수 있는 요인 분석에 상당한 관심을 끌고 있습니다.
에스트라디올 활성 상태를 모방하는 소 GC의 세포 배양 모델은 이전에 확립되었습니다 5,6,7,8,9,10,11. 이 무혈청 배양 모델은 GC 생리학의 신뢰할 수 있는 분석과 신호 전달 경로, 유전자 조절 및 호르몬 합성에서 가능한 이펙터 분석을 가능하게 합니다 12,13,14. 그러나 난포 구조는 2-세포-2-성선 자극 호르몬 가설15에서 강조된 바와 같이 훨씬 더 복잡합니다. 이것은 스테로이드 합성이 두 층 사이에서 구획화되는 맥락에서 세포 유형의 의존성과 상호 연결된 특성을 강조합니다.
많은 연구에서 이전에 확립된 GC 단일 배양 시스템과 유사한 TC 배양 모델을 설명했습니다 16,17,18. 그러나 돼지 테카 세포와 과립막 세포의 공동 배양 시스템이 보고되었으며, 여기서 두 세포 집단은 TC에 대한 GC의 4:1 비율로 단일 접시에서 배양됩니다 19,20,21. 이 모델에서는 과립막과 테카 세포 사이에 기능적 시스템과 상호 작용이 있음을 보여줄 수 있으며, 이는 단일 배양보다 공동 배양 시스템에서 더 많은 양의 에스트라디올을 나타냅니다. 그러나 이 모델은 두 세포 유형이 다르게 영향을 받을 수 있기 때문에 과립막과 테카 세포 사이의 상호 작용 및 기질 교환을 적절하게 분석할 수 없다는 점에 유의해야 합니다. 따라서 GC와 TC의 분자 수준에 대한 분석은 정교한 분류 절차 없이는 거의 불가능하며, 이는 그 자체로 세포 생리학에 영향을 미칠 수 있습니다. 또한, 이 모델은 GC와 TC가 기저막으로 분리될 때 LH 서지 이전의 상황을 정확하게 복제하지 못할 수 있다는 점을 고려하는 것이 중요합니다3. 소에서는 두 세포 유형이 콜라겐 막의 양쪽에서 배양되어 생체 내 상황을 보다 정확하게 반영하는 막 기반 세포 배양 시스템이 제안되었습니다 22,23,24,25,26.
멤브레인 기반 시스템의 초기 개념을 채택한 이 방법은 두 세포 구획 사이의 측분비 신호 전달에 대한 향후 연구를 가능하게 하기 위해 세포 배양 삽입물이 있는 소 GC 및 TC에 대한 공동 배양 모델을 확립하는 것을 목표로 했습니다. 제시된 방법은 맞춤형 멤브레인 시스템 대신 상업적으로 이용 가능한 행잉 세포 배양 인서트를 활용하여 더 높은 재현성, 표준화된 품질 및 향상된 제품 안정성과 같은 이점을 제공합니다. 이 접근 방식은 실험 전반에 걸쳐 일관성을 보장하므로 여포 세포 상호 작용을 연구하는 연구자에게 귀중한 도구가 됩니다. 배양 절차에는 인서트의 밑면에 1.7-1.8 x 10⁵ 테카 세포의 초기 파종, 이어서 반전 후 상부 표면에 약 1.0 x 10⁵ 과립막 세포 및 72시간 사전 배양이 포함됩니다. 배양은 표준 조건(37°C, 5% CO2)에서 정의된 배지에서 유지되며 배지는 격일로 교환됩니다. 구획 전반에 걸쳐 측분비 교환을 가능하게 하기 위해 폴리에틸렌 테레프탈레이트(PET)와 같은 폴리에스테르로 만든 0.4μm 세포 배양 인서트가 사용되었습니다(시중에서 이용 가능). 이 기공 크기의 막은 세포 이동을 방지하면서 호르몬, 성장 인자 및 단백질과 같은 가용성 거대 분자의 확산을 허용합니다27,28.
측분비 통신을 유지하면서 공간적 분리를 가능하게 함으로써, 이 공동 배양 시스템은 과립막-테카 세포 상호 작용, 신호 전달 경로 및 기질 교환을 조사하기 위한 생리학적으로 관련된 환경을 제공합니다. 이 모델은 호르몬 조절, 유전자 발현 분석 또는 약물 테스트와 같은 통제 된 조건이 필요한 연구에 특히 적합합니다. 난포 역학, 생식 생리학 또는 난소 장애에 관심이 있는 연구자는 이 방법이 연구에 적용할 수 있음을 알 수 있습니다. 또한 표준화된 인서트를 사용하면 배양 기간, 세포 유형 또는 처리 조건의 수정을 포함하여 다양한 실험 요구 사항에 쉽게 적응할 수 있습니다.
프로토콜
소 난소는 지역 상업용 도축장에서 얻었습니다. 이 실험 설정에서 난소의 준비는 받은 후 2시간 이내에 수행됩니다. 도축장 부산물 수집은 독일 법률에 따라 윤리적 승인이 필요하지 않습니다.
참고: 소 GC의 분리 및 냉동 보존은 이미 이전 방법 보고서6 에 설명 및 표시되었으며 그에 따라 수행될 수 있습니다.
1. 난소 난포 절제술을 위한 시약 준비 및 설정
- 난소 수송을 위해 100 IU 페니실린, 0.1 mg/mL의 스트렙토마이신 및 0.5 μg/mL의 암포테리신이 보충된 1x PBS(pH 7.4)를 준비합니다. 용액은 4°C에서 최대 4주 동안 보관할 수 있습니다.
- 25 mM HEPES, 100 IU 페니실린, 0.1 mg/mL의 스트렙토마이신 및 0.5 μg/mL의 암포테리신이 보충된 10x 행크스 염 완충액을 함유한 분해 용액을 준비합니다. 소화 용액은 4°C에서 2-3주 동안 보관할 수 있습니다.
- 계획된 각 해부 난포에 대해 1.5mL 튜브에 1mL의 소화 용액을 채우고 용액을 37°C로 예열합니다.
- 10 μL의 콜라게나제 NB8을 첨가하여 준비 직전에 0.1% 농도의 분해 용액을 달성합니다.
- 준비, 격리 및 세척 절차를 위해 다음 접시를 준비하십시오.
- 해부를 위해 난소를 배치하기 위한 최소 직경 3cm의 유리 접시.
- 세척용 1mL 1x PBS(항생제 보충)가 포함된 6웰 플레이트.
- 약 10μL의 분해 용액이 들어 있는 12웰 접시.
- 냉동 보존을 위해 80% 송아지 태아 혈청(FCS)과 20% DMSO로 구성된 냉동 용액을 준비합니다.
참고: 냉동 보존을 위한 DMSO의 최종 농도는 10%입니다.
2. 소 테카 세포의 후속 소화를 통한 난포 절개
- 층류 벤치 아래에서 세포 소화 절차와 세포 배양 작업을 수행합니다.
- 난소를 1x PBS(항생제 보충, 단계 1.1 참조)로 2-3회 세척하여 표면에서 혈액 및 기타 잔류물을 제거합니다. 난소를 텀블러에 넣고 난소가 덮이도록 PBS 1개를 채운 다음 용액을 버립니다. 난소가 깨끗해질 때까지 이 단계를 3-4회 반복합니다.
- 하나의 난소를 유리 접시에 넣고 자로 측정한 5-11mm의 난포를 선택하여 해부합니다.
- 3mL 주사기와 18G 바늘로 선택한 모낭 하나에 구멍을 뚫어 난포액을 흡인합니다. 난포액을 버리십시오.
- 흡인 중에 바늘이 삽입된 지점부터 시작하여 가위로 모낭을 자릅니다. 정확한 절단을 위해 쌍안경을 사용하십시오.
- 모낭의 절단면에 핀셋을 사용하여 가장 안쪽 층인 테카 인테나를 잡습니다.
- 열린 모낭 벽의 안쪽에서 theca interna를 벗겨 보십시오.
참고: 난포의 나이나 단계에 따라 테카 세포층이 더 쉽게 벗겨져 온전한 테카층이 될 수 있습니다.
- 1x PBS(항생제 보충, 단계 1.1 참조)로 채워진 접시에 테카 세포층을 넣어 나머지 과립막 세포를 제거합니다.
- 메스로 막 안쪽에서 과립막 세포를 부드럽게 긁어냅니다. 세포는 큰 클러스터에서 쉽게 분리되어야 합니다.
- 1x PBS로 채워진 새 접시에 테카 세포층을 넣어 세척합니다.
- 느슨한 세포를 제거하기 위해 신선한 1x PBS를 소용돌이치며 멤브레인을 조심스럽게 헹구십시오.
참고: 다음 단계부터 층류 상자 아래에서 작업하십시오.
- theca interna를 12웰 플레이트의 준비된 소화 용액(단계 1.2 및 1.3.3 참조)으로 옮기고 메스를 사용하여 1-3mm로 추정되는 작은 조각으로 자릅니다.
참고: 서로 다른 기원의 조직 막힘을 방지하기 위해 서로 다른 난포의 테카 세포를 독립적으로 소화하는 것이 좋습니다. - 테카 스니펫을 준비된 1.5mL 반응 튜브로 옮깁니다(단계 1.2.1 및 1.2.2 참조). 테카를 보온병 쉐이킹 인큐베이터에서 37°C에서 800rpm으로 45-50분 동안 배양합니다.
- 30분 동안 흔든 후 반응 튜브를 3-5초 동안 소용돌이치기 시작하고 진탕 인큐베이터에 다시 넣습니다.
- 남은 배양 시간 동안 이 단계를 3-4회 반복합니다.
- 배양 후 소화된 세포를 피펫으로 재현탁합니다.
- 50mL 튜브에 놓인 100μm 세포 스트레이너로 여과하여 소화되지 않은 조직을 제거하고 즉시 세포의 계수 및 냉동 보존을 진행하여 분해 배지를 제거합니다.
3. TC의 계수 및 냉동 보존
- 생존 세포의 수를 계산하려면 1.5μL의 0.25% 트리판 블루 용액이 담긴 튜브를 준비합니다. 살아있는 세포는 염색되지 않은 상태로 유지되는 반면, 죽은 세포는 부서진 세포 장벽을 통해 트리판 블루가 접근하기 때문에 파란색으로 나타납니다.
- 소화된 세포 현탁액 15μL를 트리판 블루 용액에 넣고 부드럽게 혼합합니다.
- 10μL의 혼합물을 혈구계의 양쪽 챔버에 넣습니다. 챔버당 하나의 큰 사각형에 있는 살아있는(= 무색) 세포의 수를 세십시오.
- 표준 지침에 따라 두 챔버 제곱의 평균으로 살아있는 세포의 수를 결정합니다. 살아있는 세포의 비율은 난소마다 다를 수 있습니다.
- 테카 세포 현탁액의 소화되지 않은 부분을 동결하여 의도된 비교를 위해 (단계 2.9 참조) 비배양 대조군으로서 GC와의 잠재적 교차 오염에 대한 평가를 수행합니다( 그림 2 참조).
- 100μm 세포 여과기(단계 2.10 참조)에 남아 있는 각 해부된 interca의 소화되지 않은 조직을 라벨이 부착된 튜브로 옮깁니다.
- -80°C에서 보관하기 전에 튜브를 액체 질소로 충격 동결합니다.
- 특히 필요한 세포 수와 관련하여 세포 배양의 개선된 계획을 용이하게 하기 위해 분리된 테카 세포의 냉동 보존을 수행합니다.
- 소화된 세포 현탁액을 실온(평균 20°C)에서 5분 동안 500 x g 으로 원심분리합니다. 상청액을 버리십시오.
- 세포 펠릿을 1mL의 100% FCS에 조심스럽게 녹입니다. 1mL의 동결 배지(1.4단계 참조)를 세포 용액에 첨가합니다. 냉동 보존을 위한 DMSO의 최종 농도는 10%입니다. 혼합물을 지정된 2mL 크라이오 바이알로 옮깁니다.
- 온도 감소를 제어하기 위해 바이알을 더 차가운 장치에 넣으십시오. 이 설정에서는 -80°C에서 최소 4시간 동안 놓았을 때 -1°C/min의 동결 속도를 보장하는 특정 냉동 용기가 사용되었습니다. 그 후 바이알은 액체 질소 저장 시스템에 보관할 수 있습니다.
4. 세포 배양 작업을 위한 준비
- 1.5mL 반응 튜브에서 뚜껑을 잘라냅니다. 그런 다음 메스(가급적 따뜻함) 또는 적절한 호스 절단기를 사용하여 개구부에서 약 1cm 떨어진 반응 튜브를 자릅니다. 그런 다음 절단된 튜브와 뚜껑을 오토클레이브합니다. 뚜껑은 세포 배양의 후속 절차에 필요할 수 있습니다(단계 5.5 참조).
참고: 1.5mL 튜브가 선택한 인서트에 단단히 맞는지 확인하십시오. - 배양에 GC 및 TC가 부착되도록 인서트를 0.02% 콜라겐 R로 코팅해야 합니다.
알림: 멸균 층류 후드 아래에서 코팅 절차를 수행합니다.- 정제수(세포 배양에 적합)를 사용하여 0.02% 콜라겐 R 용액을 준비합니다. 필요한 각 세포 배양 삽입물에 대해 이 용액 80μL를 준비합니다.
- 인서트를 24웰 플레이트의 뚜껑에 거꾸로 놓습니다. 40μL의 콜라겐 R 용액을 인서트의 멤브레인에 부드럽게 첨가하여 제자리에 유지되도록 합니다. 콜라겐 R 용액을 층류 후드 아래에서 4-5시간 동안 건조시킵니다.
- 인서트를 돌려 24웰 플레이트의 웰에 걸어 두 번째 면을 40μL의 콜라겐 R 용액으로 다시 코팅합니다. 용액을 4-5시간 동안 다시 건조시키십시오.
- 오염을 줄이기 위해 10-15분 동안 UV 광선으로 인서트를 조사합니다.
- 인서트는 24웰 플레이트(바람직하게는 멸균 분배 백) 및 4°C의 냉장고에 보관해야 하며 최대 4주 동안 사용할 수 있습니다.
- 다음과 같이 미디어 8,10을 준비합니다.
참고: 멸균 층류 후드 아래에서 배지 준비 절차를 수행합니다.- α-Minimial Essential Medium(α-MEM)에 2 mM L-글루타민, 0.084% 중탄산나트륨, 0.1% BSA, 20 mM HEPES, 4 ng/mL 아셀렌산나트륨, 5 μg/mL 트랜스페린, 10 ng/mL 인슐린 및 1 mM 비필수 아미노산을 보충합니다.
참고: 일관성을 보장하려면 전체 실험에 충분한 배지를 미리 준비하는 것이 좋습니다. 준비된 배지는 4°C에서 보관할 수 있습니다. 설명된 설정의 경우 세포 배양 웰당 750μL를 사용합니다. - 또한, 100 IU 페니실린, 0.1 mg/mL의 스트렙토마이신 및 0.5 μg/mL의 암포테리신을 준비된 배지에 첨가한다.
- 수조에서 배지를 37°C로 예열합니다.
참고: 배지를 예열한 후 항생제는 약 48시간 동안 안정적입니다. 따라서 온난화를 위해 원하는 양의 매체만 분취하십시오. - 또한, 생리학적 세포 환경을 위해 20 ng/mL의 난포 자극 호르몬(FSH), 50 ng/mL의 R3 IGF-1 및 2 μM 안드로스텐디온으로 α-MEM을 보충합니다 7,8,10,11.
참고: 배양 또는 배지 교환이 시작되기 직전에 이러한 구성 요소를 추가하십시오. 손상된 활동을 방지하려면 FSH 및 IGF-1 원액의 반복적인 동결-해동 주기를 피하는 것이 필수적입니다.
- α-Minimial Essential Medium(α-MEM)에 2 mM L-글루타민, 0.084% 중탄산나트륨, 0.1% BSA, 20 mM HEPES, 4 ng/mL 아셀렌산나트륨, 5 μg/mL 트랜스페린, 10 ng/mL 인슐린 및 1 mM 비필수 아미노산을 보충합니다.
5. TC와 GC의 공동 배양
- 테카 세포 배양을 위한 접종 챔버를 준비합니다(그림 1A).
- 코팅된 인서트를 거꾸로 더 큰 플레이트(예: 12웰 플레이트)에 놓습니다.
- 절단 및 고압멸균된 튜브를 거꾸로 된 인서트에 놓습니다(4.1단계 참조). 매체 누출을 방지하기 위해 튜브가 인서트에 단단히 고정되어 있는지 확인하십시오.
- 냉동 보존된 테카 세포를 37°C의 수조에서 3-5분 동안 빠르게 해동하고 해동 직후 세포 현탁액을 예열된 배지로 옮깁니다.
- 테카 세포 현탁액을 실온(평균 20°C)에서 3분 동안 500 x g 으로 원심분리하고 상청액을 버립니다. 보충된 α-MEM을 추가하고 세포를 조심스럽게 재현탁합니다.
- 접종 챔버에 삽입물당 1.7-1.8 x 10⁵ 세포를 최종 부피 200 μL 배지에 시드합니다. 조건당 최소 3개의 기술 반복실험을 포함합니다.
- 세포 배양 접시를 뚜껑으로 닫으려면 접종 챔버를 사용할 때 접시와 뚜껑 사이의 거리를 늘려야 할 수도 있습니다.
- 1.5mL 반응 튜브에서 절단 및 고압멸균된 캡을 사용하고(4.1단계 참조) 세포 배양 플레이트의 각 모서리에 놓습니다. 캡은 플레이트의 뚜껑을 약간 들어 올리는 지지대 역할을 하여 배양 접시를 적절하게 덮으면서 접종 챔버를 위한 충분한 공간을 제공합니다.
- 웰 플레이트를 조심스럽게 닫아 안정적으로 유지되고 멤브레인이나 챔버에 닿지 않도록 합니다.
- 플레이트를 가습된 세포 배양 인큐베이터로 부드럽게 옮깁니다.
- 테카 세포를 5% CO2 와 함께 37°C에서 3일 동안 배양하여 멤브레인에 세포가 부착될 수 있도록 합니다.
- 배양 3일 후 인서트를 돌려 GC로 파종할 준비를 합니다(그림 1B).
- 24웰 플레이트를 준비하고 원하는 각 웰에 500μL의 배지를 채웁니다.
- 피펫을 사용하여 접종 챔버에서 모든 배지를 제거합니다. 핀셋으로 인서트에서 접종 챔버를 조심스럽게 제거합니다.
- 테카 세포가 부착된 인서트를 준비된 24웰 플레이트에 넣고 TC가 아래로 향하도록 합니다(자세한 내용은 그림 1B 참조).
- 냉동 보존에서 과립막 세포를 시드하려면 5.2 및 5.3단계를 수행합니다.
- 인서트 내부에 배치된 250μL의 최종 부피에 인서트당 약 1.0 x 10⁵ 개의 세포를 시드합니다.
- 그 후, 공동 배양을 37°C에서 5% CO2 와 함께 6일 더 배양합니다.
- 배양 배지의 2/3만 교체할 때 GC 시딩 후 48시간마다 배지 교환을 수행합니다. 이렇게 하면 절차의 스트레스가 줄어들고 새로 추가된 미디어에 적응하는 데 도움이 됩니다.
6. 배양된 테카 및 과립막 세포의 후속 분석
- 위상차 현미경을 사용하여 세포 배양 전반에 걸쳐 테카 및 과립막 세포의 형태학적 평가를 수행하여 두 세포 유형의 부착 및 확산을 모니터링합니다( 그림 3 참조).
- 스테로이드 호르몬 분석을 위해 배지를 수집하고 -20°C에서 동결합니다. 적절한 방법을 사용하여 원하는 스테로이드 호르몬의 농도를 분석합니다(예: 이 워크플로우에서 에스트라디올은 RIA 5,29를 통해 분석됨).
참고: 스테로이드 호르몬 분석은 배양의 생리학적 상태를 평가하는 데 도움이 됩니다7. - 유전자 발현을 분석하려면 먼저 적절한 기술(예: 키트 절차)을 사용하여 RNA를 분리합니다.
참고: 분리 절차 중에 두 세포 유형이 서로 독립적으로 준비된다는 점에 유의하십시오.- 적절한 시약(예: 트립신 또는 아큐타제)으로 막의 양쪽에서 세포를 해리합니다. 멤브레인이 해리 배지로 완전히 둘러싸여 있도록 인서트(예: 200μL의 아큐타제 200μL)와 플레이트의 웰(예: 500μL의 아큐타제) 모두에 해리 배지를 놓습니다.
- 인서트에서 과립막 세포를 수집하는 반면, 분리된 테카 세포는 웰에서 수집할 수 있습니다. 모든 세포 유형을 1.5mL 튜브로 옮깁니다.
- 세포를 500 x g 에서 3분 동안 원심분리하고 상청액을 버립니다.
- 세포를 용해하고 RNA 분리를 수행한 후 RNA 농도를 측정합니다.
참고: 대부분의 분리 절차에서 세포 용해 후 프로토콜을 중단할 수 있으므로 샘플을 -20°C에서 단기간 보관할 수 있습니다. 더 오래 보관하려면 용해된 세포를 -80°C에서 보관할 수 있습니다. - 그 후, cDNA를 합성하여 qPCR에 의해 관심 전사체의 풍부도를 측정합니다. cDNA 합성은 랜덤 헥사머 및 올리고-dT 프라이머와 함께 100ng의 RNA를 사용합니다. qPCR을 위해, 유전자 특이적 프라이머를 앞서 기술한 바와 같이 사용하였다5,30. 간단히 말해서, 사이클 조건은 다음과 같습니다: 95°C에서 5분 동안 사전 배양, 95°C에서 20초 동안 40사이클 변성, 60°C에서 15초 동안 어닐링, 72°C에서 15초 동안 확장 및 10초 동안 단일 지점 형광 획득. 5가지 다른 농도(5x10-12- 5x10-16g DNA/반응)의 외부 표준물질을 공동 증폭했습니다. 전사체 풍부도의 정규화를 위해 RPLP0 및 TBP의 기하 평균을 계산했습니다.
- 잠재적인 교차 오염을 제거하려면 TC 및 GC의 새로 분리된 세포 제제에서 CYP17A1 및 CYP19A1 세포 특이적 마커의 유전자 발현을 분석하여 테카 및 과립막 세포 제제의 순도를 평가합니다(그림 2).
참고: 통계적 평가에는 상이한 세포 배양의 최소 3회 반복이 포함되어야 합니다. 이 실험 설정에서는 정규성과 분산을 확인한 후 t-테스트 또는 일원 분산 분석을 수행했습니다.
결과
TC와 GC는 난포 구획화에 기반한 잘 확립된 기계적 분리 기술을 사용하여 분리되었지만, 교차 오염의 위험을 제거하기 위해 세포 유형 특이적 유전자 CYP17A1 및 CYP19A1 의 발현을 평가했습니다. CYP17A1 는 새로 분리된 TC에서만 발현된 반면, CYP19A1 는 새로 분리된 GC에서 주로 발현되었습니다(그림 2).
공동 배양 시스템은 멤브레인 삽입물의 반대쪽에 있는 소 테카 세포와 과립막 세포의 구획화를 가능하게 하여 생체 내 공간 조직을 모방합니다. 배양 3일 후, TC는 콜라겐 코팅 삽입 멤브레인의 표면을 가로질러 퍼지면서 납작하고 길쭉한 형태를 나타내며 성공적인 부착을 나타냅니다(그림 3A). 전체 9일 기간 동안 단독으로 배양했을 때 TC는 계속 증식하여 9일까지 합류에 도달했습니다(그림 3B). 대조적으로, 콜라겐 코팅된 삽입 막에서 6일 동안 단독으로 배양된 GC는 시험관 내 GC의 특징인 섬유아세포 유사 표현형을 개발했습니다(그림 3C). 또한, 앞서 설명한 바와 같이, GC는 배양 5,7,31,32에서 이러한 세포의 전형적인 특징인 클러스터를 형성하는 경향이 있었다. 공동 배양 시스템에서, 각각의 시간 일치 단일 배양과 비교할 때 TC 또는 GC에서 명백한 형태학적 차이가 관찰되지 않았으며(그림 3D), 이는 삽입 기반 환경이 정상적인 세포 거동을 유지한다는 것을 나타냅니다. 그러나 기술적 한계로 인해 공동 배양의 현미경적 평가는 특히 다른 세포와 독립적으로 TC 형태를 구별하고 평가하는 데 여전히 어려운 과제로 남아 있습니다. 이러한 한계를 극복하기 위해 면역염색을 위한 세포 특이적 항체가 없는 경우 세포 식별을 위한 대체 전략을 탐색함에 따라 세포 고정을 위한 최적화된 프로토콜이 현재 다루어지고 있습니다.
공동 배양 시스템의 기능은 호르몬 생산과 TC 및 GC에 대한 주요 마커 유전자의 발현을 분석하여평가되었으며33,34, 세포 유형 특이적 스테로이드 생성 역할을 확인했습니다. GC 단일 배양과 공동 배양 모델을 비교한 결과 시험관 내에서 유사한 에스트라디올(E2) 수준이 생성되는 것으로 나타났습니다. 그러나 예상대로 TC 단일 배양은 테카 세포가 독립적으로 E2를 합성하는 능력이 부족하다는 2-세포-2-성선 자극 호르몬 가설(그림 4A)15과 일치하여 무시할 수 있는 양의 E2만 생성했습니다.
배양 조건의 생리학적 관련성을 추가로 평가하기 위해 핵심 마커 유전자(33)의 발현을 조사했습니다. 2-세포-2-성선 자극 호르몬 가설에 따르면, CYP19A1는 주로 GC에서 발현된 반면, CYP17A1는 주로 TC에서 검출되었으며, 이는 단일 배양 및 공동 배양 조건 모두에서 관찰되는 패턴입니다(그림 4B,C). 특히, 에스트라디올 농도의 차이가 관찰되지 않았음에도 불구하고 CYP19A1의 전사체 풍부도는 GC 단일 배양에 비해 공동 배양 시스템 내의 GC에서 더 높았습니다.
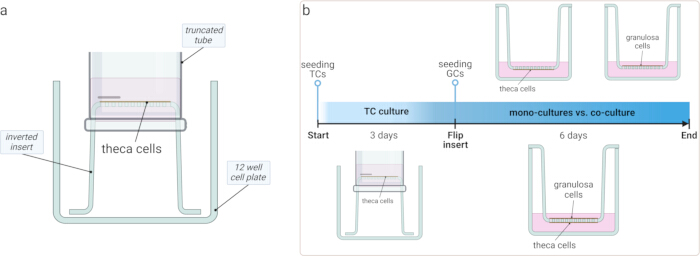
그림 1: 세포 배양 설정의 개략도. (A) 초기 배양 기간 동안 배지 누출을 방지하기 위해 거꾸로 된 인서트에 잘린 튜브를 사용하는 맞춤형 접종 챔버를 보여주는 다이어그램. (B) 실험 절차의 타임라인: 부착을 허용하기 위해 TC를 거꾸로 된 삽입물에서 3일 동안 배양했습니다. 삽입물을 뒤집고 GC를 반대쪽에 시드한 후 추가로 6일 동안 배양했습니다. 이 연구는 TC와 GC를 TC-GC 공동 배양 시스템과 별도로 배양했습니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
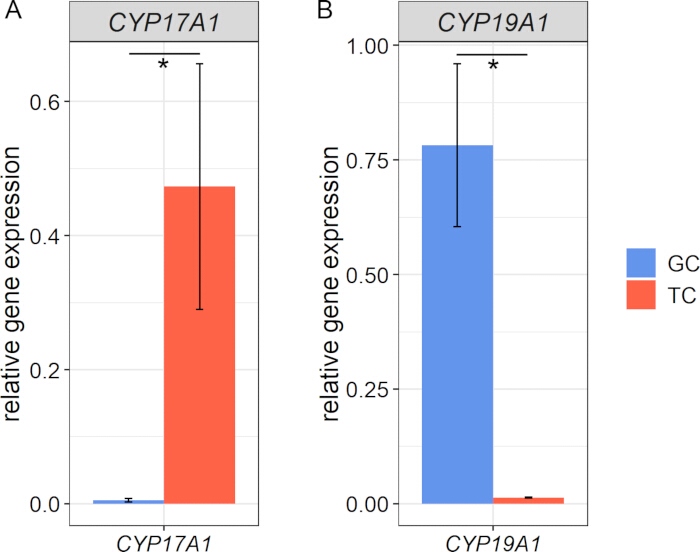
그림 2: 새로 분리된 과립막 및 테카 세포에서 세포 유형 특이적 마커의 유전자 발현. (A) CYP17A1 는 TC에서만 독점적으로 발현된 반면, (B) CYP19A1 는 주로 GC에서 검출되어 배양 전에 분리된 세포 집단의 특이성과 초기 순도를 확인했습니다. 데이터는 참조 유전자 RPLP0 및 TBP의 기하 평균으로 정규화된 상대 발현으로 표시됩니다. 평균의 평균과 표준 오차가 표시되고, 데이터는 정규성과 분산에 대해 테스트되었으며, 별표는 유의미한 차이를 나타냅니다(n=3, t-검정). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
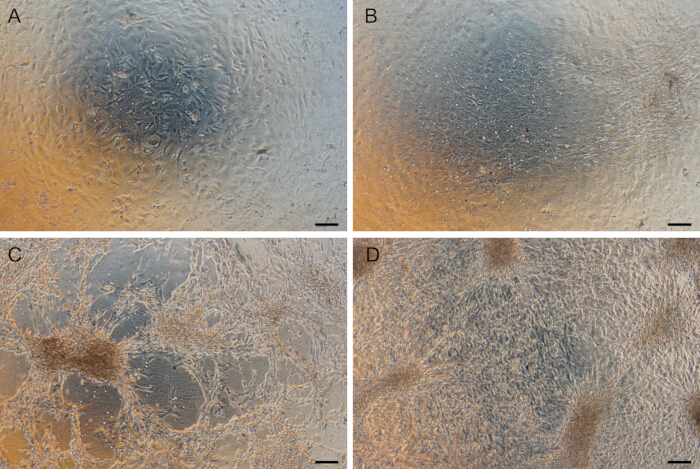
그림 3: 배양 중인 테카 및 과립막 세포의 형태. (A) 3일 동안 배양된 TC를 콜라겐 코팅된 삽입 멤브레인에 부착했습니다. (B) TC는 단일 배양에서 전체 9일 기간 후에 합류할 정도로 성장했습니다. (C) GC는 배양 6일 후 전형적인 섬유아세포 유사 표현형을 나타냅니다. (D) TC와 GC의 공동 배양은 각각의 시간 일치 단일 배양에 비해 명백한 형태학적 차이를 나타내지 않습니다. 이 이미지는 GC 배양 6일과 TC 배양 9일 후(공동 배양 실험의 종점에서) 촬영되었습니다. 스케일 바 100 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
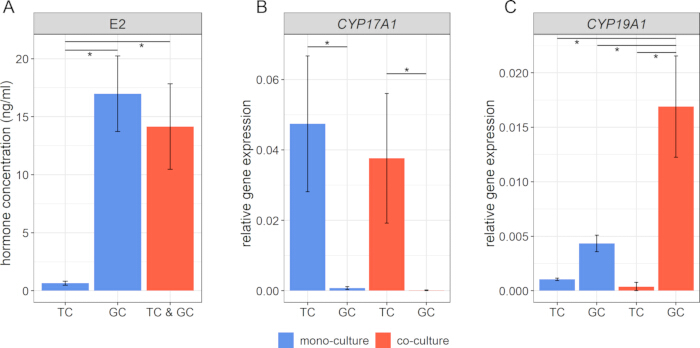
그림 4: 공동 배양 시스템의 기능적 마커 분석. (A) 에스트라디올(E2)의 호르몬 농도는 세포 배양 시스템의 생리학적 기능을 확인합니다. (나, 씨) TC 마커 CYP17A1 와 GC 마커 CYP19A1 의 유전자 발현 분석은 두 세포 집단의 동일성과 기능 상태를 보여줍니다. 참조 유전자 RPLP0 및 TBP 의 기하 평균을 사용하여 상대 발현을 계산했습니다. 평균과 평균의 표준 오차가 표시되고, 데이터는 정규성과 분산에 대해 테스트되었으며, 별표는 유의미한 차이를 나타냅니다(n=3, 일원 분산 분석). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
이 공동 배양 모델을 수행하기 위한 전제 조건은 교차 오염을 방지하기 위해 두 세포 유형을 잘 분리하는 것입니다. 두 세포 제제의 순도는 TC 특이적 마커 CYP17A1 와 GC 특이적 마커 CYP19A1의 유전자 발현에 의해 평가되었습니다 . 앞서 살펴본 바와 같이, GC 및 TC 분리 기술은 관련 교차 오염을 나타내지 않았다30.
이 공동 배양 모델은 막의 반대쪽에 있는 테카 세포와 과립막 세포의 동시 배양을 허용하여 난포 내의 공간 조직을 모방하고 두 세포 집단의 생리학적 상태를 지원합니다3. 모델의 타당성은 2세포-2-성선 자극 호르몬 가설15과 일치하는 호르몬 생산 프로필 및 유전자 발현 패턴에 의해 강화됩니다. 예상대로 TC 단일 배양에서 낮은 에스트라디올 수치는 테카 세포만으로는 에스트라디올을 합성할 수 없음을 확인시켜 난포 스테로이드 생성에 대한 확립된 지식을 뒷받침합니다35. 공동 배양된 GC에서 더 높은 CYP19A1 발현에도 불구하고 에스트라디올 수치는 GC 단일 배양과 비슷하게 유지되었으며, 이는 기질 가용성, 피드백 억제 또는 효소 활성 차이와 같은 조절 메커니즘의 영향을 시사합니다. 신호 전달 경로와 기본 메커니즘에 대한 추가 탐구는 향후 연구의 주제로 보증됩니다. 그럼에도 불구하고 본 연구에서 제공한 바와 같이 소 TC와 GC의 기능적 공동 배양 시스템의 구축이 필수적입니다. 본 연구는 공동 배양 모델의 기능의 핵심 지표로서 에스트라디올 생산 및 CYP17A1 및 CYP19A1의 mRNA 발현 수준에 초점을 맞췄습니다. 둘 다 과립막 및 테카세포 기능의 민감한 마커를 나타내며 4,8,36 2-세포-2-성선 자극 호르몬 가설15과 직접 일치합니다. 단백질 발현의 중요성을 인식하면서도 신뢰할 수 있는 항체가 부족하여 정확한 평가가 불가능했습니다. 따라서 단백질 수준에 대한 포괄적인 분석은 이 초기 조사의 범위를 벗어났습니다.
일반적으로, 이 모델은 난포의 구조를 부분적으로 모방하는 전통적인 2D 배양 모델의 추가 개발입니다.3. 결과는 GC 및 TC 생리학에 대한 민감한 마커의 발현에 의해 밝혀진 두 세포 구획의 생리학적 상태를 뒷받침합니다.
기존의 2D 배양 모델에 비해 장점은 공간적 분리를 유지하면서 테카와 과립막 세포 사이의 측분비 상호 작용을 촉진하여 생체 내 난포 구조를 더 잘 모방한다는 것입니다. 대조적으로, TC와 GC가 단일 웰에서 혼합되는 접시 내 공동 배양 시스템에는 이러한 구조적 조직이 부족합니다. 이러한 시스템을 사용하는 연구는 일반적으로 4:1 19,20,21의 GC:TC 비율을 적용했지만, 이 접근법은 생체 내에서 발견되는 구획화를 반영하지 않으므로 기질 교환을 분석하는 데 실현 가능하지 않을 수 있습니다. 또한, 이 GC-TC 혼합물을 복잡한 방식으로 분류해야 하는 경우 세포 수준에서 발견된 변화를 쉽게 감지할 수 없습니다.
과립막 세포와 테카 세포에 대한 3차원 공동 배양 모델은 여전히 부족하지만 초기 시도는 유망한 결과를 보여주었습니다. Kotsuji 22,23,24,37 그룹은 이전에 콜라겐 막을 물리적 분리제로 사용하여 배양에서 과립막과 테카 세포의 상호 작용을 설명했습니다. 그러나 이 시스템은 맞춤형 콜라겐 멤브레인에 의존하여 재현성과 표준화가 어려웠습니다. 대조적으로, 제시된 공동 배양 모델은 재현성, 표준화 및 제품 품질을 향상시켜 실험실 전반에 걸쳐 더 넓은 적용 가능성을 보장하는 상업적으로 이용 가능한 교수형 배양 인서트의 이점을 누리고 있습니다. 본원에 제시된 모델은 이전 모델보다 더 높은 에스트라디올 생산을 초래했지만, 세포 배양 보충제의 통일성, 특히 사용된 농도26 또는 IGF-1 22,23,24,37의 추가 사용이 부족하기 때문에 이들 모델의 비교가 어렵다.
절차에서 가장 중요한 단계 중 하나는 접종 챔버 내에서 TC를 배양하는 것입니다. 챔버가 거꾸로 된 인서트에 단단히 배치되었는지 확인하는 것은 TC 부착 및 생존을 손상시킬 수 있는 매체 누출을 방지하는 데 필수적입니다. 따라서 핀셋을 사용하여 거꾸로 된 인서트의 접종실을 단단히 누르고 접종실의 배치를 육안으로 검사하는 것이 좋습니다. 또한 접종 챔버를 제거하고 3일 후에 인서트를 뒤집으려면 기술적 정밀도가 필요합니다. 부착된 셀을 방해 및/또는 손상시키지 않고 이 단계를 수행하기 위해 일부 기술 교육이 필요할 수 있습니다. 또 다른 중요한 고려 사항은 GC의 파종 밀도입니다. 인서트당 1.0 x 10⁵ 세포의 최적 수준을 초과하는 더 높은 세포 밀도는 GC의 분화로 이어질 수 있으며 잠재적으로 스테로이드 생성 출력에 영향을 미칠 수 있습니다. 또한, 제시된 냉동 보존 방법은 두 세포 유형 모두에 대해 80-90%의 해동 후 생존율을 산출했습니다.
설명된 모델은 과립막과 테카 세포 상호작용을 연구하기 위한 생리학적이고 재현 가능한 시스템을 제공하지만 몇 가지 제한 사항을 고려해야 합니다. 이 방법은 다른 종에도 적용할 수 있습니다. 그러나 종별 차이로 인해 세포 밀도, 타이밍 또는 배지 구성과 같은 세포 배양 매개변수의 최적화가 필요할 수 있습니다. 이 모델의 확장성은 세포 배양 삽입물의 가용성으로 제한되지만 대부분의 이펙터 연구에는 충분할 수 있습니다. 마지막으로, 이 공동 배양 모델은 난포의 생체 내 상황을 모방하기 위한 한 걸음 더 나아갔지만 여전히 난소 난포의 완전한 복잡성이 부족합니다.
결론적으로, 제시된 모델은 배양 기간 연장, 세포 수 또는 비율 조정, 추가 요인 통합 등 다양한 실험 요구 사항을 수용하도록 쉽게 수정될 수 있습니다. 추가 개발을 통해 이 시스템은 두 세포 구획 사이의 여포 기능, 스테로이드 생성 및 세포 신호 전달을 연구하는 데 유용한 도구를 나타냅니다. 또한 생식 독성학에 적용할 수 있는 잠재력을 갖고 있어 다양한 화합물이 여포 세포에 미치는 영향을 평가할 수 있는 통제된 플랫폼을 제공합니다.
공개 사항
모든 저자는 이해 상충이 없음을 선언합니다.
감사의 글
탁월한 기술 지원을 해주신 Veronica Schreiter, Maren Anders 및 Olivier Seidel에게 감사의 말씀을 전하고 싶습니다. 또한, 이 연구를 위해 난소를 입수한 상업용 도축장 "DANISH CROWN Teterower Fleisch GmbH"(독일)에게 감사의 말씀을 전하고 싶습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 10x 행크의 균형 소금 용액 HBSS(w Mg/Ca, 페놀 레드) | 바이오& 팔다 | 모텔. L201-10 | 초순수에 용해; pH를 분해 용액(HBSS 및 HEPES)의 7.4로 조정하고 사용하기 전에 멸균 여과를 수행합니다. |
| 18G 바늘, 40mm, 직경 1.2 mm | 로스 | 281T.1 | 일회용 바늘, 단축키 |
| 3ml 주사기(Omnifix Luer) | 로스 | LY22.1 | |
| 아큐타제 | 머 크 | A6964 | 회사 지점: Sigma-Aldrich |
| 암포테리신 B(250 및 마이크로 g/ml) | 바이오& 팔다 | 모텔. AB17.01050 | |
| 안드로스텐디온 | 머 크 | 46033 | 우리는 10% 에탄올에 희석된 100mM의 원액을 사용합니다. 회사 지점: Supelco |
| 쌍안경 Carl Zeiss Technival2 | 칼 자이스 예나 | 해당 없음 | 입사등 Schott KL 1600 LED와 함께 사용 |
| BSA (5%) | 머 크 | A3311 | 회사 지점: Sigma-Aldrich |
| 셀 스트레이너(100 & micro; m 기공 크기) | 사르슈테트 | 83.3945.100 | 50 ml 원심분리 튜브에 장착 |
| 콜라겐 R (0.2 %) | 세르바 | 47254 | |
| 콜라게나제 NB8 (10%) | 노드마크 | S1745601 | |
| CoolCell LX 세포 냉동 용기 | 머 크 | CLS432002 | 코닝 제품 |
| 냉동 보존 바이알(2 ml) | TPP 파우스트 | TPP89020 | |
| 배양 접시, 12웰, 평평한 바닥 | TPP 파우스트 | TPP92112 | |
| 배양 접시, 24웰, 평평한 바닥 | TPP 파우스트 | TPP92424 | |
| 배양 접시, 6웰, 평평한 바닥 | TPP 파우스트 | TPP92006 | |
| DMSO | 로스 | 4720.1 | |
| DPBS w/o Ca2+, Mg2+ | 바이오& 팔다 | 모텔. L182-10 | 사용하기 전에 초순수와 오토클레이브에 녹이십시오. |
| 에스트라디올, 17b-[2,4,6,7-3H] | 하트만 애널리틱 | ART1555 | |
| 송아지 태아 혈청(FBS Superior stabil) | 바이오& 팔다 | FBS. S0615 | |
| FSH(~7,000 IU/mg; 인간 뇌하수체에서 추출) | 머 크 | F4021 | 우리는 2 & micro의 원액을 사용하는 것을 선호합니다. g/ml, 0.9% NaCl로 희석; 회사 지점: Sigma-Aldrich |
| 교수형 세포 배양 인서트(0.4 & micro; m 기공 크기) | 셀QART | 9320412 | 주문하는 동안 인서트의 다양한 속성에 유의하십시오. 위상차 현미경을 위해 투명한 PET 멤브레인을 선호합니다. |
| 헤페스 (1M) | 로스 | 9105.2 | pH를 분해 용액(HBSS 및 HEPES)의 7.4로 조정하고 사용하기 전에 멸균 여과를 수행합니다. |
| 홀로트랜스페린(소) | 머 크 | T1283 | 멸균수에 용해; 회사 지점: Sigma-Aldrich |
| innuPREP RNA 미니 키트 2.0 | IST 이누스크린 | 845-KS-2040250 | |
| 인슐린(10mg/ml, 소 췌장에서 추출) | 머 크 | I0516 | 1x PBS에 용해; 회사 지점: Sigma-Aldrich |
| L-글루타민(200mM) | 바이오& 팔다 | 모텔. K0283 | |
| LR3-IGF-1 | 머 크 | 나1146 | 우리는 200 & micro의 원액을 사용합니다. g/ml, 10 mM HCl 및 1 mg/ml BSA와 함께 1x PBS에 용해; 회사 지점: Sigma-Aldrich |
| NanoDrop 1000 분광 광도계 | 열과학 | 해당 없음 | RNA 농도 측정 |
| NEA(100배) | 바이오& 팔다 | 모텔. K0293 | |
| 페니실린/스트렙토마이신 (10,000 IU/10 mg/ml) | 바이오& 팔다 | 모텔. A2213 | |
| 세포 배양에 적합한 정제수 | 머 크 | W3500 | 회사 지점: Sigma-Aldrich |
| SensiFAST cDNA 합성 키트 | 바이오라인 | 바이오-65054 | 유통 파트너인 BioCat을 통해 공급 |
| 중탄산나트륨(7.5%) | 바이오& 팔다 | 모텔. 엘1713 | |
| 아셀렌산나트륨 | 머 크 | S9133 | 멸균수에 용해; 회사 지점: Sigma-Aldrich |
| 써모 셰이커 TS-100C | 피셔 사이언티픽 | 12357627 | HC18 블록과 함께 사용(카탈로그 번호 12337627) |
| &알파;-MEM | 바이오& 팔다 | 모텔. F0915 |
참고문헌
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
재인쇄 및 허가
