배아 원시 생식 세포의 만능 줄기 세포 유래 대리 모델인 원시 생식 세포 유사 세포(PGCLC)의 안정적인 시험관 내 증폭은 기술적 과제에 직면해 있습니다. 이 프로토콜은 혈청 또는 피더층 세포가 없는 시험관 내 조건에서 PGCLC의 장기 확장을 지원합니다.
이 논문에서
요약
초록
원시 생식 세포(PGC)는 모든 남성 및 여성 생식계열 세포의 공통 전구체입니다. PGC는 착상 전후 포유류 배아에서 발생하며 생식선 안라지의 성적 분화 시 성별 특이적 생식 세포 전구체가 됩니다. 인간 만능 줄기 세포에서 생성된 PGC-유사 세포(PGCLC)로 일반적으로 알려진 시험관 내 모델은 인간 배아 PGC의 유용한 대용물로, 시험관 내에서 인간 배우자 형성을 탐색할 수 있는 독특한 기회를 제공합니다. 여기에 제시된 프로토콜은 인간 PGCLC의 장기 시험관 내 확장을 지원합니다. 새로 분리된 PGCLC는 처음에 STO 피더 층에서 유지된 다음 기저막 추출물에서 피더가 없는 상태로 확장됩니다. 장기 배양 PGCLC(LTC-PGCLC)는 CD38 양성 세포로 형광 활성화 세포 분류(FACS)가 풍부할 수 있으며 노화와 같은 명백한 제한 없이 순수하고 피더가 없으며 혈청이 없는 단조로운 배양으로 수천만 개의 세포로 쉽게 증폭됩니다. 새로 분리된 수천 개의 PGCLC로부터 100만 개 이상의 인간 PGCLC의 순수 개체군을 얻는 것이 실질적으로 가능합니다. 인간 LTC-PGCLC 세포 배양은 인간 생식 세포 생물학 및 다운스트림 생식계열 세포로의 분화를 연구하는 데 유용하고 편리한 시험관 내 모델입니다.
서론
원시 생식 세포(PGC)는 모든 생식계열 세포의 초기 전구체입니다. 인간 PGC는 이식 후 초기에 후방 에피블러세포(아마도 헌신되지 않은 양막 전구체 세포)에서 나타나며, 임신 2-3주에 배아를 형성합니다 1,2,3,4,5,6,7. 인간과 마우스 PGC 모두의 특전을 위해 뼈 형태 형성 단백질(BMP) 및 WNT3에 의해 활성화된 신호 전달 경로가 중요한 역할을 합니다 3,6. BLIMP1, PRDM14 및 TFAP2C의 세 가지 전사 인자의 유도가 마우스 PGC의 사양화에 필요한 반면, 인간 PGC 사양에서는 PRDM14의 역할이 감소합니다. 마우스 PGC 사양에는 없어서는 안 될 존재이지만 인간 PGC 사양에는 필수 불가결한 SOX17은 EOMES 또는 EOMES 및 TBXT 7,8,9 모두에 독점적으로 의존하는 방식으로 BMP 신호 전달에 의해 유도됩니다. 인간 PGC는 임신 5-6주에 등쪽 장간막을 통해 생식기 융기의 생식선 안라겐으로 후방 후모세포에서 이동한다 10,11,12,13,14,15,16. 인간 PGC 이동은 화학주성에 의해 주도될 수 있지만 실험적 확인을 기다리고 있습니다. 이동성 인간 PGC의 전사체 프로파일은 동일한 단계에서 마우스 PGC의 전사체 프로파일과 동일하지 않습니다17,18. 예를 들어, 인간 PGC는 생식선 안라겐에 정착하기 전에도 DAZL을 발현하는 반면, 마우스 PGC는 생식선 정착 후에만 DAZL을 발현합니다9. 생식선 체세포의 성별 특이적 분화가 시작되면 PGC는 또한 prospermatogonia(임핵세포라고도 함) 또는 oogonia로 분화됩니다.
인간 배아 PGC에 대한 접근은 기술적, 윤리적 장벽으로 인해 극도로 어렵기 때문에 만능줄기세포에서 유래한 PGC 유사 세포(PGCLC)의 사용이 점점 대중화되고 있습니다3. 마우스 PGCLC는 고급 글로벌 게놈 DNA(gDNA) 탈메틸화를 특징으로 하는 PGC의 이동 후 단계와 유사하며 수정 능력이 있는 정자와 난모세포를 생성할 수 있습니다 19,20,21. 대조적으로, 인간 PGCLC는 제한된 전체 gDNA 탈메틸화를 가진 배아 PGC의 초기 단계와 유사합니다 7,22,23,24. 인간 PGCLC가 상대적으로 미성숙한 상태임에도 불구하고 난소25,26 또는 prospermatogonia27과 유사한 생식 세포의 보다 진행된 단계로 시험관 내 분화가 가능하다는 증거가 축적되고 있습니다.
Irieet al. 2015년 인간 만능 줄기 세포에서 1세대 PGCLC를 발표한 이후7, 많은 실험실에서 인간 PGCLC 생산을 위한 다양한 프로토콜을 발표했습니다. 초기의 표준 프로토콜은 종종 배아체 7,22,24,26,28,29라고 하는 만능 세포 응집체의 형성을 포함합니다. 인간 PGCLC는 비교 가능한 전사체 프로파일을 공유하는 다양한 응집체 기반 프로토콜을 사용하여 생산될 수 있으며, 이들 모두는 PRDM1, SOX17, TFAP2C, POU5F1 및 NANOS3와 같은 주요 PGC 마커 유전자를 강력하게 발현하는 반면, 다능성 마커 SOX2 또는 후기 단계 PGC 마커 DDX4의 발현은 일반적으로 억제된다24. 확장성과 편의성 향상을 위해 단층 세포 배양으로부터 인간 PGCLC를 생산하려는 성공적인 시도도 보고되었습니다30. PGCLC의 수율은 상대적으로 적지만, 위장 형성 단계 배아의 만능 줄기 세포 유래 시험관 내 모델에서 인간 PGCLC의 성공적인 생산은 생식계열 사양 및 초기 단계 PGC 발달의 메커니즘 해명에 크게 기여합니다 31,32,33,34,35,36.
다양한 세포 배양 방법을 사용하여 생산된 인간 PGCLC의 수율과 품질이 향상되고 있지만, 인간 PGCLC의 세포 배양 확장에 대한 기술적 어려움은 화학적 또는 유전자 스크리닝과 같은 다량의 균질한 세포 집단이 필요한 실험 및 생식계열 세포의 고급 단계 생산에 상당한 장애물이 됩니다26. Gell et al. 줄기 세포 인자(SCF) 및 2.5% 송아지 태아 혈청(FCS)을 포함하는 FR10 기반 배지에서 STO 피더에서 최대 21일 동안 인간 PGCLC의 유지를 보고했습니다. 그러나 PGCLC는 PGC 유사 정체성에서 생식계열 세포 발달과 관련이 없을 수 있는 다른 유형의 세포로 갈라지는 경향이 있었습니다37. Murase et al. 모든 계대에서 FACS에 의해 배양에서 이러한 원치 않는 세포를 반복적으로 제거했으며 인간 PGCLC가 시험관 내에서 장기간 증식 가능성을 유지할 수 있음을 보여주었습니다 38. 나중에, 무라세 등. 2.5% FCS39를 함유하는 배지에서 인간 PGCLC의 성공적인 증폭을 보고했지만, 그들의 방법은 외인성 벡터로부터 마우스 SCF의 막 결합 형태를 발현하는 m220 마우스 배아 세포의 자발적으로 출현된 MMC 내성 서브클론인 m220-5 피더층 세포를 필요로 한다. 현재 m220-5 세포는 아직 공개적으로 액세스할 수 있는 저장소에 보관되지 않았습니다. 따라서 비표준 피더 세포 자원이 필요하지 않고 동물 유래 시약이 없는 간단한 조건에서 PGC 유사 특성을 유지하면서 시험관 내에서 인간 PGCLC 배양을 다수의 균질 세포로 확장하는 것은 여전히 주요 과제로 남아 있습니다.
위의 기술적 장애물을 극복하기 위해, 혈청 또는 피더층 세포가 없는 상태에서 PGC와 유사한 특성을 유지하면서 균질한 세포 집단으로서 인간 PGCLC의 장기간 시험관 내 확장을 가능하게 하는 방법이 개발되었습니다41. 인간 PGCLC는 텔로머라아제를 발현하기 때문에 이러한 세포는 최소 150일 동안 노화의 징후나 다른 유형의 세포로부터의 편차 없이 일정한 속도로 증폭됩니다. 장기 배양 PGCLC(LTC-PGCLC)는 인간 PGC 유사 전사체 특성을 유지하지만, 이들의 전체 gDNA는 반복되는 계대에서 적당히 탈메틸화됩니다. LTC-PGCLS는 만능 배아 생식 세포 유사 세포(EGCLC)로 쉽게 전환되어 iPSC 유사 전사체 및 gDNA 메틸롬을 복원하지만 H19 RNA 발현의 각인 대립유전자 제한은 손실됩니다. LTC-PGCLC는 또한 xrTestis 이종 오가노이드 배양에서 prospermatogonia와 유사한 DAZL 발현 세포로 분화할 수 있습니다27. 따라서, 인간 LTC-PGCLC 모델은 PGCLC의 생물학적 특성을 영구적으로 유지하고 안정적인 세포주로서 시험관 내에서 쉽게 확장되는 안정적으로 유지되는 다능성 관련 세포 배양 자원의 새로운 유형을 나타냅니다.
이 기사에서는 표준 STO 피더층 세포에 의한 일시적 지원을 통해 신선하게 분리된 FACS가 풍부한 순수 인간 PGCLC 집단을 무혈청, 장기 유지 배양에 적응시킨 다음 기저막 추출물(BME)에 대한 피더가 없는 상태에서 적용하는 방법을 설명합니다. 이 방법은 이전에 기술된 바와 같이, 배아형 신체 의존성 프로토콜(24,41,42) 또는 Sasaki et al22, 그리고 Overeem et alal(30)에 의해 보고된 단층 배양 방법을 사용하여 생산된 인간 PGCLC의 시험관 내 확장을 지원한다. 41 상기된 바와 같이 제조된 인간 PGCLC에 적용될 때, 10,000 세포의 초기 집단은 4 - 4.5 일의 집단 배가 시간(41)으로 1.5 - 2 개월 내에 거의 1 x 10⁹ 세포로 확장될 수 있다. 다른 방법으로 생산된 인간 PGCLC에 대한 이 방법의 적용 가능성도 예상됩니다.
프로토콜
1. 세포 배양 배지의 준비
- 표 1, 표 2, 표 3 및 표 4에 설명된 대로 미디어를 준비합니다. 이러한 미디어의 분취량을 냉동 보관하십시오.
- 표 1에 설명된 대로 PGCLC 기초 배지를 준비합니다. 40mL 분취량을 만들고 -20°C에서 6개월 동안 보관합니다. 표 2에 설명된 대로 STO 배지 1을 준비합니다. 50mL 분취량을 50mL 원심분리기 튜브에 4°C에서 1개월 동안 보관합니다.
- 표 3에 설명된 대로 STO 배지 2를 준비합니다. 즉시 사용하십시오. 표 4에 설명된 대로 Mitomycin-C 처리된 STO 세포(MMC-STO) 저장 배지를 준비합니다. 10mL 분취량을 -20°C에서 6개월 동안 보관합니다.
주의 : 디메틸 설폭사이드는 위험한(가연성 액체) 것으로 간주되므로 열, 스파크, 화염 또는 뜨거운 표면에서 멀리 보관해야 합니다. 폐기에 대한 현지 규제 프로토콜을 따르십시오.
2. MMC 처리 STO 세포의 제조
참고: STO 세포의 MMC 처리는 생존력을 크게 손상시키지 않으면서 증식 활성을 비활성화합니다. MMC-STO 세포는 인간 PGCLC의 초기 배양(단계 4) 동안 피더층 세포로 사용되며 무세포 컨디셔닝 배지의 공급원(단계 3)으로 사용됩니다.
- 4개의 P15 접시에서 STO 배지 1에서 합류에 가까워질 때까지 STO 세포를 성장시킵니다. STO 배지 1을 23mL/접시로 변경합니다. 10 mg/mL 농도 MMC 23 μL/접시를 배지에 직접 첨가하여 최종 농도 10 μg/mL가 되도록 합니다.
- 잘 소용돌이치고 CO2 인큐베이터에서 37°C에서 4시간 동안 배양합니다.
주의: MMC는 다량을 삼키면 치명적이며 발암 물질이 의심됩니다. 이 화합물의 취급 및 폐기는 현지 규제 프로토콜을 따라야 합니다. - 실온에서 20mL/접시 Dulbecco의 PBS(Ca/Mg free)로 세포를 2회 세척합니다.
- CO2 인큐베이터에서 2분 동안 4mL/접시 TrypLE Express로 세포를 해리합니다. 부드러운 피펫팅으로 세포를 단일 세포 현탁액에 현탁시킵니다.
- 세포 현탁액(8mL) 접시 2개를 얼음처럼 차가운 STO 배지-1 30mL가 들어 있는 50mL 원심분리기 튜브로 옮깁니다. 다른 두 접시에 대해 반복하여 38mL 세포 현탁액 튜브 2개를 만듭니다.
- 혈구계 또는 자동 세포 계수기를 사용하여 세포 생존력을 평가하기 위해 0.2% 트리판 블루가 있는 상태에서 세포를 계산합니다.
- 세포를 4°C에서 5분 동안 300 x g 로 원심분리합니다. 상청액을 버리십시오. 세포 펠릿을 얼음처럼 차갑게 냉동된 세포 저장 배지에 5 x 10⁶ cells/mL로 재현탁합니다.
- 극저온 바이알에 MMC 처리된 STO 세포의 1mL 분취량을 준비합니다. 스티로폼 상자 또는 서속 냉동 장치에 세포를 천천히 동결하고 -80°C에서 최대 12개월 동안 보관합니다.
3. STO 컨디셔닝 배지(S-CM)의 제조
참고: MMC-STO 세포의 무세포 컨디셔닝 배지(2단계에서 준비됨)는 PGC 유사 특성을 잃은 세포로의 편차를 억제하면서 인간 PGCLC의 생존 및 증식을 지원합니다.
- 1일차: 냉동 스톡에서 MMC 처리된 STO 세포를 해동하고 5 x 10⁶ 세포를 10mL/접시 STO 배지가 있는 젤라틴 코팅 P10 접시에 접종합니다 2. 배치의 일반적인 크기는 4-8개의 P10 접시로 구성됩니다. CO2 인큐베이터에서 37°C에서 밤새 세포를 배양합니다.
- 젤라틴으로 웰을 코팅하려면 0.1% 젤라틴 1mL/웰을 첨가하고 실온에서 최소 20분 동안 배양합니다. 여분의 젤라틴 용액을 흡인하고 마를 때까지 생물 안전 캐비닛에 우물을 열어 둡니다. 젤라틴 코팅 플라스틱 제품을 실온에서 2주 동안 또는 4°C에서 3개월 동안 보관하십시오.
- PGCLC 기초 배지의 분취량을 4°C에서 밤새 해동합니다.
참고: 이 배지를 더 높은 온도에서 더 빨리 해동하는 것은 권장하지 않습니다. PGCLC 기초 배지를 4°C에서 1주일 이상 보관하지 마십시오. - 2일차: STO 배지 2를 제거하고 폐기합니다. 따뜻한 DPBS(~10mL/접시)로 세포를 세척한 다음 따뜻한 PGCLC 기초 배지(2mL/접시)로 세척합니다. 따뜻한 PGCLC 기초 배지(12mL/접시)를 넣고 CO2 인큐베이터에서 밤새 37°C에서 세포를 배양합니다.
- 3일차: 50mL 원심분리기 튜브에 모든 컨디셔닝된 배지를 수집합니다. PGCLC 기초 배지(12mL/접시)를 반복하고 다음날 동일한 STO 세포 배양에서 컨디셔닝된 배지를 수집하기 위해 배양합니다. 300 x g 로 수집된 컨디셔닝 배지를 4°C에서 5분 동안 원심분리합니다. 15mL 원심분리기 튜브에 상청액(S-CM)의 10mL 분취량을 만듭니다. S-CM에서 MMC-STO 세포의 오염을 방지하기 위해 50mL 튜브 바닥에 남아 있는 배지의 마지막 3mL를 복용하지 마십시오. 분취량을 -80°C에서 최대 6개월 동안 보관합니다.
- 4일: PGCLC 기저 배지에서 5-6일 배양 후 MMC-STO 단층 배양이 악화될 때까지 매일 3.4단계를 반복하여 S-CM을 수확합니다. 접시에서 25% 이상의 세포가 분리되면 수확을 중지합니다.
4. 장기 배양에 대한 인간 PGCLC의 적응
- MMC-STO 피더 층에서 새로 분리된 인간 PGCLC를 배양합니다. 이전에 발표된 방법(Mitsunaga et al.24; Kobayashi et al.41). 인간 PGCLC 유도에 대한 자세한 프로토콜도 발표되었습니다42,43.
- 최대 28일 동안 초기 증폭 후, PGCLC를 피더가 없는 배양물로서 BME에서 LTC-PGCLC로 유지합니다. PGCLC 배양의 이 두 단계 동안 SCF 보충과 함께 STO 조절 배지(S-CM, 3단계에서 준비됨)를 사용하지만 FCS는 포함하지 않습니다. ROCK 억제제는 계대 직후에만 필요합니다.
참고: BME로서 우리 실험실에서는 ESC 등급 마트리겔이 사용되었습니다. 다른 상용 제품은 LTC-hPGCLC의 장기적인 확장을 지원하지 않았습니다. - 1일차: 젤라틴 코팅된 6웰 플레이트에서 MMC 처리된 STO 피더층 세포를 3mL/웰 STO배지 2로 8 x 10⁴ 세포/cm2 로 접종합니다. CO2 인큐베이터에서 37°C에서 피더 층을 밤새 배양합니다.
- 2일차: 배양액에서 STO 배지를 버리고 따뜻한 Dulbecco's MEM(무혈청), 3mL/웰로 세포를 세척합니다. 0.1 mM 2-메르캅토에탄올, 50 μg/mL 아스코르브산, 100 ng/mL 인간 재조합 SCF 및 10 μM Y-27632를 새로 보충한 S-CM 3 mL/웰을 첨가합니다. 500 - 2,000개의 새로 분리된 인간 PGCLC를 각 웰의 STO 피더 층에 접종합니다. CO2 인큐베이터에서 37°C에서 밤새 세포를 배양합니다.
참고: 혈청의 존재는 낮은 농도에서도 인간 PGCLC에서 원치 않는 유형의 세포가 출현하는 경향이 있습니다41. 인간 PGCLC의 성장은 SCF41에 엄격하게 의존합니다. Y-27632는 접종 시 단일 세포 인간 PGCLC의 생존을 지원하지만 유지 배양 중에는 필요하지 않습니다. 2-메르캅토에탄올, 아스코르브산, SCF 및 Y-27632를 배지에 신선하게 첨가합니다. 일반적인 실험에서 PGCLC는 6웰 플레이트의 모든 웰에 접종됩니다. 더 많은 수의 PGCLC를 출발 물질로 사용할 수 있는 경우 웰당 최대 10,000개의 PGCLC까지 더 높은 밀도가 허용됩니다. - 3일차: 배지의 절반(1.5mL/웰)을 0.1mM 2-메르캅토에탄올, 50μg/mL 아스코르브산, 100ng/mL 인간 재조합 SCF를 새로 보충하지만 Y-27632는 없는 따뜻한 S-CM로 대체합니다. 매체의 강한 흐름에 의해 피더 층에서 분리될 수 있는 PGCLC를 방해하지 마십시오.
- 5일 - 28일: 격일로 4.5단계를 반복합니다. PGCLC는 일반적으로 4.5일의 인구 배가 시간41에서 증식하기 때문에 PGCLC의 작은 클러스터는 6-7일 또는 그 이후에 나타납니다(그림 1A-D). 클러스터는 14-15일까지 더욱 분명해질 것입니다(그림 1E,F). 올바른 PGCLC에서 벗어난 비정상적인 형태학적 특성을 갖는 원치 않는 유형의 세포 클러스터가 나타나면 이러한 클러스터를 포함하는 웰을 폐기하거나 단계 4.9의 뒷부분에서 설명하는 차등 접착 기술을 사용하여 비정상적인 세포를 제거하려고 시도합니다.
- PGCLC가 확장하여 배양 영역의 20% 이상을 덮는 클러스터를 형성하면(~28일), 세포 박리 용액(CDS)을 사용하여 세포를 해리합니다. PGCLC 배양 웰에서 S-CM을 제거하고 세포를 세척하지 않고 예열된 CDS를 1mL/웰로 추가합니다. PGCLC가 웰에서 분리될 때까지 CO2 인큐베이터에서 37°C에서 5분 동안 세포를 배양합니다.
참고: Accutase는 경미한 해리를 위한 CDS로 권장됩니다. CDS를 37°C에서 5분 이상 예열하지 마십시오. PGCLC 분리는 부드러운 피펫팅을 통해 촉진될 수 있지만 PGCLC는 단일 세포 현탁액으로 완전히 해리될 필요는 없습니다. PGCLC의 작은 응집체는 생존력을 증가시킬 수 있습니다. 원치 않는 유형의 세포가 나타나고 빠르게 성장하는 경우, 피더 세포 및 대부분의 원치 않는 세포 유형보다 일찍 분리되는 경향이 있는 PGCLC의 선택적 수집을 위해 세포 분리 동안 CDS에서 배양 시간을 조정하십시오. 원치 않는 유형의 세포의 지속적인 출현이 PGCLC의 확장을 방해하는 경우, 단계 4.9에 설명된 대로 젤라틴 코팅 웰에 대한 더 빠른 접착을 사용하여 원치 않는 세포를 제거하려고 시도하십시오. FACS에 의한 PGCLC의 농축은 살아있는 PGCLC의 상당 부분을 잃는 경향이 있으므로 그에 따라 피더 층의 면적 크기를 줄입니다. - CDS에 의한 세포 박리를 막으려면 세포 현탁액을 10배 부피의 따뜻한 PGCLC 기저 배지로 희석하고 4°C에서 5분 동안 300 x g 으로 원심분리합니다. Accutase와 같은 일부 CDS의 효소 활성은 혈청 또는 트립신 억제제에 의해 억제되지 않습니다. 상청액을 버리고 0.1 mM 2-메르캅토에탄올, 50 μg/mL 아스코르브산, 100 ng/mL 인간 재조합 SCF 및 10 μM Y-27632를 새로 보충한 따뜻한 S-CM 3 mL에 세포를 재현탁합니다.
- 세포 현탁액을 0.1% 젤라틴으로 코팅된 6웰 플레이트의 웰에 접종하고 CO2 인큐베이터에서 37°C에서 30분 동안 배양하여 젤라틴 코팅 웰에 빠르게 부착되는 MMC-STO 세포(및 원치 않는 유형의 세포)를 제거합니다.
참고: 피더 세포의 접착력을 평가하기 위해 배양 20분과 30분에 위상차 현미경으로 세포를 검사하는 것이 좋습니다. 배양 시간을 최대 45분까지 연장해야 할 수도 있습니다. MMC 처리된 STO 세포는 S-CM에서 증식 및 악화될 수 없기 때문에 피더 세포를 제거하기 위해 FACS 또는 MACS를 사용하는 것은 일반적으로 필요하지 않습니다. - 비정상적인 유형의 세포가 고갈된 PGCLC를 기저막 매트릭스 코팅 웰로 옮겨 인간 PGCLC의 피더 없는 장기 배양을 시작합니다. 6웰 플레이트의 단일 웰의 경우 1 x 10⁵ 개의 생존 가능한 PGCLC를 접종하는 것이 좋습니다.
참고: 일반적으로 최대 6개의 웰에서 hPGCLC를 풀링하여 1 x 10⁵ 생존 가능한(트리판 블루 염색 음성) PGCLC를 수집하고 접종 세포 밀도를 증가시키기 위해 단일 웰에 시딩해야 합니다. 수확된 PGCLC의 수가 1 x 10⁵에 도달하지 않으면 상대적으로 높은 PGCLC 밀도를 얻기 위해 12웰 또는 24웰 플레이트와 같은 더 작은 크기의 웰을 사용하십시오. 첫 번째 계대배양 시점까지 대부분의 MMC-STO 피더층 세포는 악화되어 계대 절차를 견디지 못합니다. 소수의 생존 가능한 MMC-STO 세포는 차등 접착 기술에 의해 효과적으로 제거됩니다. BME로 코팅된 웰에서 몇 개의 MMC-STO 세포가 오염되더라도 다중 계대 중에 배양에서 사라집니다. - 인간 PGCLC는 개별 세포 간의 직접적인 물리적 접촉의 유의미한 징후 없이 고도로 분산된 세포 집단으로 성장합니다(그림 1). 긴밀한 세포 간 상호작용을 나타내는 세포 클러스터가 나타나면(그림 2A), 단계 4.7에 설명된 기술을 사용하여 배양을 계대시킵니다. 일반적으로 일주일에 한 번 계대(1:4)로 충분합니다.
참고: 인간 PGCLC의 FACS 농축은 일반적으로 필요하지 않습니다. 그러나, 단계 4.11에 기술된 반복적인 차등 접착 기술 후에 원치 않는 변칙 세포를 효과적으로 제거할 수 없는 경우, CD38-양성 세포로서 인간 PGCLC의 FACS 농축의 몇 주기42,43은 LTC-hPGCLC의 순수 집단의 확립을 용이하게 한다. 피더 층이 없는 상태에서 BME-코팅된 접시에서 성장하는 PGCLC 유래 변칙 세포의 예는 그림 3에 나와 있다. 원치 않는 유형의 세포를 유도할 위험을 줄이기 위해 PGCLC 세포 배양의 상대적으로 높은 밀도를 유지하는 것이 중요합니다.- 앞서 설명한 바와 같이 BME코팅 접시를 준비한다42,43. BME를 냉장고나 냉장실의 얼음 위에서 밤새 해동합니다. 냉동 BME를 실온에서 해동하거나 따뜻한 수조를 사용하지 마십시오.
- 분취량 BME(~200μL; 분취량의 부피는 각 배치에 대해 제조업체에 의해 결정되고 바이알 라벨에 표시됨)를 멸균 및 사전 냉각된 저결합 원심분리기 튜브 또는 얼음 위의 세포 동결 보존 튜브에 분취합니다. 응고를 방지하기 위해 디스펜싱하는 동안 BME를 얼음처럼 차갑게 유지하는 것이 중요합니다. 분취량을 -80°C에서 보관합니다.
- BME 1 분취량을 얼음처럼 차가운 DMEM/F12 25mL로 희석하고 10cm 접시 3개(~8mL/접시) 또는 6웰 플레이트 4개(총 24웰, 웰당 1mL)에 퍼뜨립니다. 접시를 실온에서 최소 1시간 동안 배양합니다. 코팅 후 접시는 투명 필름으로 밀봉하여 실온에서 최대 1주일 동안 보관할 수 있습니다.
- 사용하기 직전에 접시에서 배지를 흡인하십시오. 코팅된 접시를 씻을 필요가 없습니다.
- 원치 않는 유형의 세포의 출현을 억제하기 위해 BME에서 상대적으로 높은 밀도의 LTC-PGCLC 배양을 유지합니다. 계대 PGCLC는 세포가 25% 이상의 융합성에 도달할 때 권장됩니다. 배지의 절반(1.5mL/웰)은 0.1mM 2-메르캅토에탄올, 50μg/mL 아스코르브산 및 100ng/mL 인간 재조합 SCF를 새로 보충한 따뜻한 S-CM로 교체해야 합니다.
참고: PGCLC를 더 낮은 밀도로 접종하면 원치 않는 세포가 생성될 위험이 증가합니다. 인간 PGCLC의 인구 배가 시간은 약 4.5일41이므로 일상적인 주간 계대는 일반적으로 장기 배양을 유지하는 데 적합합니다. ROCK 억제제(Y-27632)의 포함은 PGCLC 생존력을 향상시키기 위해 계대 후에만 필요합니다. - 매체의 강한 흐름에 의해 피더 층에서 분리될 수 있는 PGCLC를 방해하지 마십시오.
참고: 인간 PGCLC는 텔로머라아제를 발현하기 때문에 텔로미어의 단축 또는 노화 관련 β-갈락토시다아제의 발현과 같은 명백한 노화 징후 없이 증식합니다41. - 인간 PGCLC가 상당한 양의 원치 않는 유형의 세포를 생성하지 않고 안정적인 증식을 얻었을 때, 마커 유전자의 발현 프로파일링을 통해 PGC 유사 특성을 조사합니다.
참고: 원치 않는 세포 유형의 오염 가능성을 평가하기 위해 각 단일 세포의 특성화에 적합한 분석 접근법(예: 면역형광, FACS 또는 단일 세포 RNA-seq)을 사용하는 것이 좋습니다. 이러한 분석 결과가 PGCLC의 PGC 유사 특성을 뒷받침하는 경우 LTC-hPGCLC 배양의 확립이 확인됩니다. - LTC-PGCLC를 세포 동결 배지(극저온 바이알당 1 x 10⁶ 세포/mL)에 보관합니다. 총 10,000개의 인간 PGCLC를 초기 재료로 시작하여 1 x 10⁶ PGCLC의 총 수율은 6주 안에 달성할 수 있습니다. 극저온 바이알이 들어 있는 종이 또는 플라스틱 상자를 단단히 밀봉할 수 있는 스티로폼 상자에 넣습니다. 밀봉된 상자를 -80°C 냉동실에 밤새 넣어 천천히 얼립니다. 그런 다음 바이알을 -80°C 냉동고 또는 액체 질소 탱크에 넣습니다.
- 냉동 세포 바이알에서 배양을 시작하려면 아래에 설명된 단계를 따르십시오.
- 바이알 바닥을 물에 담근 상태에서 수동으로 흔들어 37°C 수조에서 세포를 빠르게 해동합니다. 내용물의 >80%가 바이알에서 해동되면 보푸라기가 없는 티슈 또는 이에 상응하는 실험실로 바이알을 말리고 알코올 면봉으로 캡 주위를 닦습니다.
- 예열된(37°C) PGCLC 기저 배지가 들어 있는 15mL 원심분리기 튜브로 세포를 옮깁니다. 작은 냉동 세포가 바이알에 남아 있으면 피펫팅을 통해 PGCLC 기초 배지로 회수합니다.
- 세포를 실온에서 5분 동안 300 x g 으로 즉시 원심분리하고 상청액을 제거합니다.
- 0.1 mM 2-메르캅토에탄올, 50 μg/mL 아스코르브산, 100 ng/mL 인간 재조합 SCF 및 10 μM Y-27632를 새로 보충한 9 mL의 예열된 S-CM로 세포 펠릿을 재현탁합니다. 1,000mL 피펫 팁을 사용하여 세포를 부드럽게 현탁시킵니다.
- 배양을 시작하기 위해 BME 코팅 플레이트의 3웰에 3mL/웰을 접종합니다. 세포가 고르게 분포되도록 플레이트를 수직 및 수평으로 부드럽게 흔듭니다. 흔들림의 원형 운동은 세포를 우물의 중앙으로 이동시키므로 피하십시오. 냉동 스톡에서 회수 직후 세포의 생존율은 일반적으로 80% 이상입니다.
결과
대표적인 결과 - PGCLC는 일반적으로 접종 후 2주 이내에 MMC-STO 피더 층에 눈에 보이는 클러스터를 형성합니다(그림 1A-D). PGCLC가 피더 없는 배양을 위한 준비가 되기까지 약 3-4주가 걸립니다. PGCLC는 강한 세포동역학적 활성을 나타내기 때문에 피더층에 클러스터를 형성할 때 세포간 상호 작용이 약합니다(그림 1E,F). 클러스터 밖으로 이동하는 PGCLC가 종종 관찰됩니다(그림 1F, 빨간색 화살촉). 피더층이 없으면 LTC-PGCLC는 세포 밀도가 높을 때에도 세포간 접착의 징후가 거의 없는 흩어진 세포로 성장합니다(그림 3). 각 LTC-PGCLC는 새로 분리된 인간 PGCLC의 원래 형태를 유지하여 활성 세포질분열의 징후를 보여줍니다. PGC 유사 형태학적 특성에서 벗어난 세포가 나타나면(그림 2), 반복적인 차등 접착 기술에 의한 PGCLC의 농축은 종종 배양 품질을 향상시킵니다. 비정상적인 세포가 지속되면 CD38 양성 세포로서 PGCLC의 가끔 FACS 농축이 도움이 될 수 있습니다.
선행 간행물에서는 인간 PGCLC를 PRDM1 양성, TFAP2C 양성이지만 SOX2 음성 세포로 확인했습니다41. 그들은 또한 POU5F1을 발현하지만, 그들의 전구체 iPS세포는 또한 이 다능성 마커41을 발현한다. 유전적으로 유도 가능한 마커, 면역형광, FAC 또는 단일 세포 RNA-seq를 사용하여 확장되는 인간 PGCLC의 단일 세포 수준 수율 및 마커 발현 프로파일을 가장 빠른 기회에 확인하는 것이 좋습니다. 그러나 이러한 확증적 분석이 없으면 피더 세포의 존재 여부에 관계없이 인간 PGCLC의 수율 및 품질은 그림 1, 그림 2 및 그림 3과 같이 표준 위상차 현미경을 사용하여 편리하게 추정할 수 있습니다.
장기 배양 동안 LTC-PGCLC는 이전의 단일 세포 RNA-seq 데이터가 입증한 바와 같이 활발하게 증식하는 하위 집단을 포함하는 균질한 세포 집단을 유지합니다41. 초기 단계 PGCLC 마커인 GATA2 및 GATA3의 발현이 빠르게 손실되는 것을 제외하고는 원래 PGCLC의 전사체 프로파일이 대체로 유지됩니다41. 인간 iPSC의 전체 DNA 메틸화 수준은 약 73%이며, 새로 생산된 PGCLC에서는 약 64%로 감소합니다41. 전체 DNA 메틸화 수준은 시험관 내 확장 12주 후 LTC-PGCLC에서 약 54%로 더욱 감소합니다41. 인간 LTC-PGCLC의 대부분의 전사체 및 후생유전학적 특성은 여러 각인 제어 영역의 대립유전자 특이적 후생유전학적 표시가 PGCLC에서 지워지고 결코 되돌리지 않는다는 점을 제외하고는 만능 배아 생식 세포로 전환될 때 원래 iPSC의 특성으로 완전히 역전됩니다41.
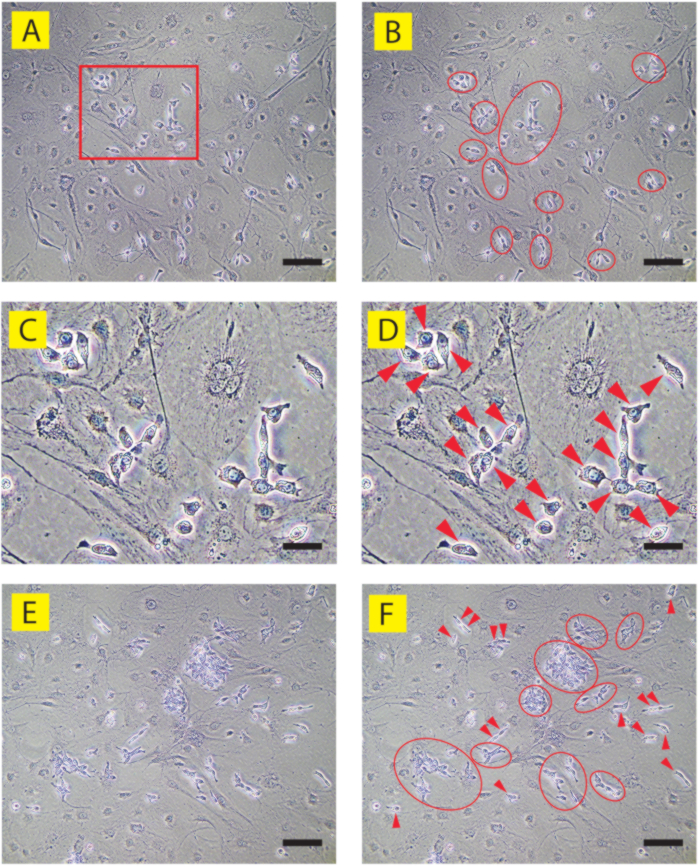
그림 1: STO 피더 층(인간 iPSC 클론 9A13)에서 올바른 인간 PGCLC의 위상차 이미지. (A, C, E)는 각각 (B, D, F)에 주석이 달려 있습니다. (A-D) 6일차 문화. 빨간색 사각형으로 표시된 (A)의 일부가 (C, D)로 확대됩니다. 대부분의 PGCLC는 종종 느슨한 클러스터(빨간색 타원형)를 형성하는 분산된 세포로 관찰됩니다. 개별 PGCLC(빨간색 화살촉)는 서로 밀접한 접촉을 형성하지 않으며 위상차 현미경에서 악화되고 평평하며 널리 퍼진 STO 피더 세포에서 돌출된 세포로 쉽게 식별됩니다. (E, F) 15일차 문화. PGCLC의 여러 클러스터는 쉽게 식별되는 반면(빨간색 타원형) 세포간 접촉은 여전히 느슨합니다. 일부 PGCLC는 클러스터 외부에서 발견되며, 종종 중립(빨간색 화살촉)으로 발견되며, 이는 매우 악화된 피더층 위와 사이에서 무작위로 이동하는 동안 활발한 증식을 반영합니다. 스케일 바 = 50 μm(A, B, E, F) 또는 15 μm(C, D). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
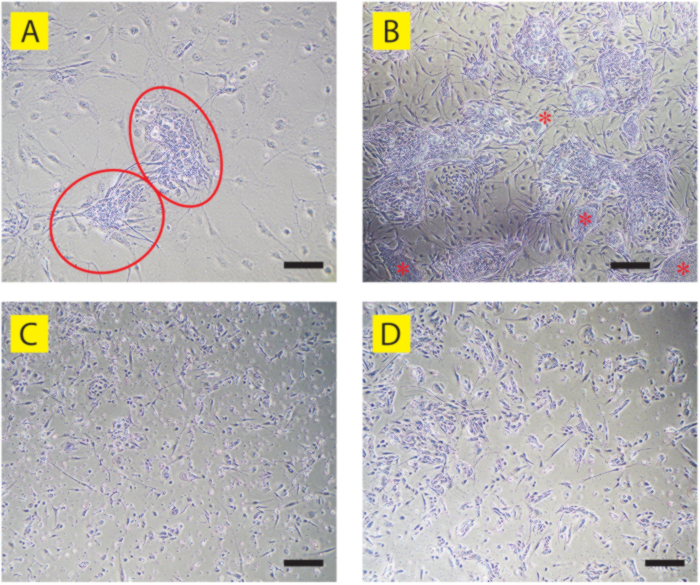
그림 2: PGC 유사 특성에서 벗어난 인간 PGCLC의 위상차 이미지. (A) PGCLC의 두 개의 비정상적인 클러스터(빨간색 타원)가 STO 피더 층에 있는 9A13 PGCLC의 9일차 배양에서 나타났습니다. 올바른 PGCLC 클러스터(그림 1A-D 참조)와는 달리, 세포는 각 개별 세포의 경계를 모호하게 하는 강한 세포간 접촉을 나타냅니다. (B) (A)에 표시된 인간 PGCLC 배양의 18일째 배양. 여러 개의 변칙적인 PGCLC 클러스터가 관찰되며, 그 중 일부는 전구체 인간 iPSC(빨간색 별표)와 유사한 조밀한 콜로니를 보여줍니다. 클러스터 사이에서 발견되는 대부분의 섬유아세포 유사 길쭉한 세포도 PGCLC 유래 변칙 세포인 반면, 대부분의 STO 피더 세포는 악화되고 제거됩니다. (C) LTC-hPGCLC(인간 iPSC 클론 B6)는 BME로 코팅된 피더가 없는 접시에서 대규모 세포 사멸 및 변칙적 형태를 보여줍니다. (D) BME로 코팅된 피더가 없는 접시에서 비정상적인 형태를 갖는 세포로 크게 편향된 LTC-hPGCLC(인간 iPSC 클론 T548). 이러한 비정상적인 LTC-hPGCLC를 그림 3B에 표시된 올바른 LTC-hPGCLC와 비교하십시오. 스케일 바 = 50 μm(A, B) 또는 100 μm(C, D). 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
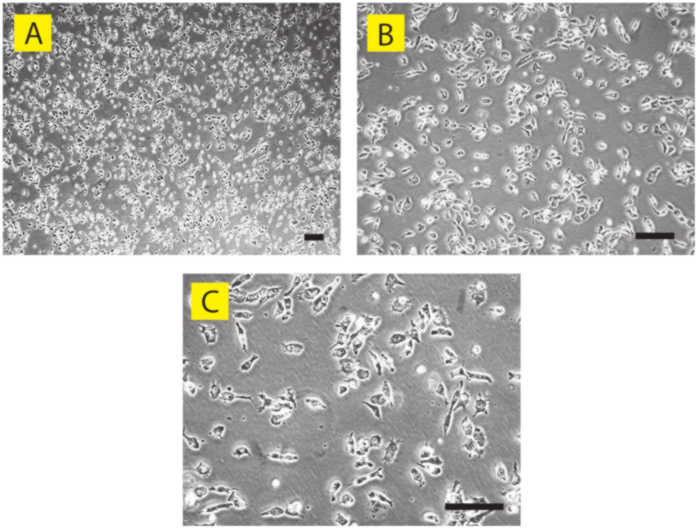
그림 3: 피더가 없는 배양(인간 iPSC 클론 A4)으로서 올바른 인간 PGCLC의 위상차 이미지. BME 코팅 접시에서 LTC-PGCLC의 56일째 피더 없는 배양은 (A) 저배율, (B) 중배율 및 (C) 고배율로 표시됩니다. 세포 밀도가 상대적으로 높음에도 불구하고 각 개별 PGCLC는 최근에 세포 분열을 완료한 세포를 제외하고는 밀접한 세포간 접촉을 형성하지 않습니다. 활성 세포질분열로 인해 일부 PGCLC는 길쭉한 형태를 보이는 반면 다른 PGCLC는 둥근 모양입니다. 스케일 바 = 50 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| PGCLC 기초 배지 | |
| 재료 | 음량 |
| 글래스고의 MEM | 500 밀리리터 |
| 녹아웃 혈청 대체(KSR) | 75 밀리리터 |
| MEM NEAA (100X) | 6 밀리리터 |
| 피루브산나트륨(100X) | 6 밀리리터 |
| 페니실린-스트렙토마이신 (100X) | 6 밀리리터 |
표 1: PGCLC 기초 배지. PGCLC 기저 배지(593mL)의 구성.
| STO 미디엄 1 | |
| 재료 | 볼륨e |
| Dulbecco의 MEM | 445 밀리바이트 |
| 태아 송아지 세럼 | 50 밀리리터 |
| 페니실린-스트렙토마이신 (100X) | 5 밀리리터 |
표 2: STO 매체 1. STO 배지 1(500mL)의 구성.
| STO 미디엄 2 | |
| 재료 | 음량 |
| Dulbecco의 MEM | 47 밀리리터 |
| 태아 송아지 세럼 | 2.5 밀리바이트 |
| 페니실린-스트렙토마이신 (100X) | 0.5 밀리미터 |
| FGF2 (200 μg/mL) | 2.5 μL |
표 3: STO 배지 2. STO 세포의 성장 증강을 위해 FGF2가 보충된 STO 배지 2의 조성물(50mL).
| MMC-STO 저장 매체 | |
| 재료 | 음량 |
| Dulbecco의 MEM | 42.5 밀리바이트 |
| 태아 송아지 세럼 | 5 밀리리터 |
| 디메틸 설폭사이드 | 2.5 밀리바이트 |
표 4: MMC-STO 저장 매체. MMC 처리된 STO 피더 세포(50mL)의 냉동 스톡을 준비하는 데 사용되는 MMC-STO 저장 매체의 구성.
토론
이 기사에서 설명하는 인간 PGCLC 유지 관리 방법은 특정 장치나 비표준 재료가 필요하지 않고 비교적 간단합니다. 이전에 발표된 인간 PGCLC 유지 방법은 PGCLC 유사 상태에서 세포의 상당한 편차로 인해 빈번한 FACS 분류가 필요합니다38. 이러한 방법은 또한 비표준 피더층 세포주(m220-5)를 필요로 하며, 이는 공개 및 국제적으로 접근 가능한 저장소(39,40)를 통해 쉽게 구할 수 없다. 배지에 FCS를 포함하면 특정 로트의 혈청 성능에 대한 의존성으로 인해 불확실성이 발생합니다. 대조적으로, 현재 제시된 방법은 혈청 또는 기타 동물 기반 시약 없이 높은(> 90%) 생존율을 유지하면서 냉동 보관할 수 있는 수백만 개의 인간 PGCLC를 쉽게 얻을 수 있습니다. 이 프로토콜에는 많은 공개 저장소에서 일반적으로 사용할 수 있는 표준 STO 피더층 세포주가 필요합니다. 이 방법은 인간 PGCLC를 기존 세포주처럼 취급할 수 있는 전례 없는 수준의 편의성을 제공합니다. 이 방법을 사용하여 달성된 인간 PGCLC의 무제한 공급은 인간 생식 세포 및/또는 배우자의 실험적 생산, 불임(시험관 내 배우자 형성 시도 포함) 또는 생식 세포 종양과 같은 인간 생식 세포 장애의 평가, 장래의 생식 세포 독성 물질의 독성학적 평가와 같은 분야에서 인간 PGCLC 적용의 범위를 넓힐 것입니다.
이 방법은 인간 PGCLC로부터 원치 않는 유형의 세포의 출현을 최소화하기 위해 S-CM에서 FCS를 배제합니다41. 몇몇 iPSC 클론은 피더 의존 단계 또는 그 이후에 원치 않는 유형의 세포를 생성하는 경향이 있었고 그 중 일부는 PGCLC의 FACS 정제를 2회 또는 3회 거쳐야 했습니다. 그러나 LTC-PGCLC 배양이 50% 이상의 컨플루언도로 확립되면 일반적으로 FACS 정제의 필요성이 감소합니다. 시험관 내 인간 PGCLC의 성장은 SCF41의 존재에 엄격하게 의존합니다. LTC-PGCLC의 성장률이 감소하면 다른 로트 또는 제조업체의 SCF 시약을 테스트하는 것이 좋습니다. 인간 PGCLC는 텔로머라아제를 발현하기 때문에 시험관 내에서 장기 확장 동안 노화를 경험하지 않습니다 41. 다양한 인종적 배경을 가진 남성 및 여성 인간 iPSC에서 파생된 LTC-PGCLC를 확립하는 데 성공적으로 사용되었습니다41. 현재 제시된 방법의 성공적인 적용의 예로는 남성 인간 iPSC 클론 A4 및 A5 (백인 신생아), PGP1 (백인 성인) 및 9A13 (일본 성인), 및 여성 iPSC 클론 ATCC-BXS0116 (백인) 및 ATCC-BXS0115/ACS-1029 (히스패닉)가 있다. 이 방법과 예측 마커의 일반적인 적용 가능성은 향후 연구에서 확립되어야 합니다.
인간 PGCLC의 간헐적인 FACS 정제의 필요성은 전구체 iPSC 클론에 따라 다릅니다. 일부 iPSC 클론은 CD38 양성 세포로서 PGCLC를 초기 분리한 후 FACS 농축이 필요하지 않은 반면, 일부 PGCLC는 피더 의존 단계 동안 FACS에 의해 CD38 양성 세포로 최대 3배까지 농축되어야 했습니다. FACS가 풍부한 PGCLC를 새로 준비된 MMC-STO 피더에 접종했습니다. FACS 농축은 일반적으로 PGCLC가 피더 없이 BME에서 안정적인 증폭을 시작하면 모든 계대에서 필요하지 않습니다.
각 계대에서 개별 iPSC 클론에 대해 원치 않는 세포 유형으로 편차한 세포와 PGC 유사 특성을 유지하는 세포의 비율에 대한 자세한 데이터는 현재 사용할 수 없습니다. 일반적으로 LTC-hPGCLC 배양은 반복 계대로 배양 2-4주 후에 안정화됩니다. 인간 PGCLC가 원치 않는 유형의 세포를 생성하는 경향이 있는 경우, 대부분의 원치 않는 세포가 PGCLC보다 배양 접시에 더 강하게 부착되는 경향이 있기 때문에 차등 접착 방법은 PGCLC를 효과적으로 농축할 수 있습니다. 차등 접착의 반복적인 시도가 PGCLC 농축에 도움이 되지 않는 경우, CD38 양성 세포로서 인간 PGCLC의 FACS 농축은 종종 원치 않는 세포를 제거하고, 그 이후에는 차등 접착 방법만을 사용하여 순수 LTC-hPGCLC를 유지할 수 있습니다. Overeem et al.에 의해 기술된 2-D 방법을 사용하여 생성된 인간 PGCLC의 장기 배양을 확립하는 것은 때때로 어려웠습니다. 그러나 세포사멸 촉진 유전자의 CRISPR 녹아웃을 통해 세포사멸 저항성을 얻은 동일한 인간 PGCLC는 LTC-hPGCLC로 쉽게 확장되었습니다. 각 개별 인간 iPSC 및 PGCLC와 이 방법의 호환성에 대한 세부 사항은 향후 연구에서 검토되어야 합니다.
MMC 처리된 STO 피더층 세포는 초기에 새로 분리된 인간 PGCLC의 생존 및 증식을 지원하는 반면, 빠르게 증식하는 PGCLC는 STO 컨디셔닝 배지 및 접시의 BME 코팅에 의해 지지되는 한 피더층 없이 시험관 내에서 확장됩니다. 다른 접근법에 비해 현재 제시된 방법의 고유한 이점은 LTC-hPGCLC를 피더가 없는 배양으로 확립할 수 있다는 것입니다. MMC-STO 피더층 세포는 배양 5-6일 후 S-CM 배지에서 초기 악화 징후를 보입니다. 6-7일(그림 1A-D)까지 피더 층은 약간의 손상을 보이며 이는 14-15일(그림 1E,F)에 더 분명해집니다. 피더 세포가 없는 경우, 새로 분리된 인간 PGCLC의 생존율은 일반적으로 낮은데, 이는 분명히 세포 배양 접시의 바닥에 부착하는 효율성이 낮기 때문입니다. MMC-STO 세포에 의해 침착된 세포외 기질 단백질은 MMC-STO 세포가 악화된 후에도 PGCLC의 접착 및 생존을 촉진하는 것으로 추측됩니다. 인간 PGCLC의 수가 14-15일까지 눈에 보이는 클러스터를 형성할 수 있을 만큼 충분히 커지면 PGCLC 자체에 의해 침착된 세포외 기질은 추가 생존 및 증식을 지원하기에 충분할 수 있습니다. 이러한 가정을 뒷받침하여, 고밀도(예: 12웰 플레이트의 웰에 있는 100,000개의 세포)로 새로 분리된 인간 PGCLC를 피더가 없는 BME로 코팅된 웰에 접종하면 종종 LTC-hPGCLC 배양의 성공적인 확장이 시작됩니다. 한편, MMC-STO 컨디셔닝 배지의 사용은 인간 PGCLC 배양 전반에 걸쳐 절대적으로 필요하며, 이는 MMC-STO 세포에 의한 지속적인 컨디셔닝의 중요성을 강조합니다.
원치 않는 유형의 세포의 출현을 억제하기 위해 BME에서 LTC-PGCLC 배양의 상대적으로 높은 밀도를 유지하는 것이 중요합니다. PGCLC는 25% 이상의 합류성으로 계대하는 것이 좋습니다. PGCLC를 더 낮은 밀도로 접종하면 원치 않는 세포가 생성될 위험이 높아집니다. 인간 PGCLC의 인구 배가 시간은 약 4.5일41이므로 일상적인 주간 계대는 일반적으로 장기 배양을 유지하는 데 적합합니다. PGCLC의 상당 부분이 PGC 유사 특성에서 벗어나고 차등 접착 기술 또는 FACS가 원치 않는 세포를 제거하기에 불충분한 경우, 젤라틴 코팅 대신 BME 코팅 웰에 MMC-STO 피더 층을 접종하는 것을 고려하거나, PGCLC 접종 전 3일 또는 4일로 MMC-STO 세포의 배양을 연장합니다.
원치 않는 세포 유형 간의 형태학적 및 마커 발현 특성은 표준 위상차 현미경으로 쉽게 식별할 수 있지만 크게 다릅니다(그림 2). 응집된 성장 특성 또는 편평한 외관을 보이는 세포는 PGC와 유사한 특성에서 벗어납니다. PRDM1 또는 TFAP2C와 같은 표준 PGC 마커의 발현은 일반적으로 이러한 원치 않는 세포에서 감소하지만, 원치 않는 세포 집단을 면역형광 염색, FACS 또는 단일 세포 RNA-seq에 의해 확인할 수 있는 설득력 있는 PGC 유사 세포 집단과 구별하기 위한 명확한 기준은 현재 사용할 수 없습니다. 현재 LTC-hPGCLC의 확장 중에 나타나는 비-PGC 세포 유형의 정체성 또는 관련성은 알려져 있지 않습니다.
이 기사에 제시된 방법은 STO 피더 층 셀을 사용하지만 SNL 76/7 셀은 컨디셔닝된 배지 및 피더 층의 생산에도 사용할 수 있습니다. 일부 PGCLC 배양은 특히 접종 크기(>100,000개 세포)로 배양을 시작할 때 피더 의존성 배양을 거치지 않고 장기 배양에 적응할 수 있었습니다. 반면, LTC-PGCLC 배양을 확립하는 것은 개시 크기가 10,000개 세포보다 작을 때 어려울 수 있습니다. STO 컨디셔닝 배지의 주요 성분은 이전에 설명되었지만 장기적인 PGCLC 확장을 지원하는 성분은 아직 확인되지 않았습니다44.
공개 사항
저자는 공개할 이해 상충이 없습니다.
감사의 글
이 작업은 NIH 보조금 R01ES035401, R21ES034468, R21HD110839, R21DA059789 및 TS에 대한 R21CA290650의 지원을 받았습니다. TS는 또한 John Templeton Foundation 보조금 63299(PI, John McCarrey, University of Texas, San Antonio)의 하위 수상자이기도 합니다. 제시된 연구의 일부는 James Patrick Stowe Fund(PI, Philip Saylor, Massachusetts General Hospital)의 지원도 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 6웰 세포 배양 플레이트 | 코 닝 | 3506 | |
| 아큐타제 | 혁신적인 셀 기술 | AT104 | -20 > C 6개월 동안. |
| 세포 배양 처리 10cm 플라스틱 접시 (P10 접시) | 코 닝 | 353003 | |
| 세포 배양 처리 15cm 플라스틱 접시 (P15 접시) | 코 닝 | 353025 | |
| 극저온 바이알 | 밀리포어-시그마 | CLS431417 | |
| 크라이오스토르 CS10 | STEMCELL 기술 | 7930 | 4°C에 보관하십시오. |
| 디메틸 설폭사이드 | 피셔 사이언티픽 | BP231-1 | 실온에서 보관하십시오. 세포 배양 등급. |
| 덜베코; s 인산염 완충 식염수(Ca/Mg free) (DPBS) | 깁코 | 14190144 | 실온에서 보관하십시오. 세포 배양 등급. |
| Dulbecco의 최소 필수 배지 (Dulbecco's MEM) | 코 닝 | 10-013-CM | 4°C에서 보관하십시오. n4.5g/L 포도당, 1X L-글루타민 및 1X 피루브산 나트륨을 함유한 배지를 사용하십시오. |
| 태아 송아지 세럼 | CPS 세럼 | FBS-500 | -20 > 12개월 동안 C. |
| 젤라틴 | STEMCELL 기술 | 7903 | 물에 0.1%. 메 마른. |
| Glasgow's Miminum Essential Medium (Glasgow's MEM) | 깁코 | 11710-035 | 4°C에 보관하십시오. |
| 인간 재조합 섬유아세포 성장 인자 2(FGF2) | 페프로테크 | 100-18B | -80 &g에서 보관하십시오. C 3개월 동안. |
| 인간 재조합 줄기 세포 인자(SCF) | 페프로테크 | 300-07 | 제조업체의 지침에 따라 물에 재구성하십시오. -80 &g에서 보관하십시오. C 3개월 동안. |
| 녹아웃 세럼 리플레이스큐 | 깁코 | 10828-028 | -20 > C 6개월 동안. |
| 마트리겔(인간 배아 줄기 세포 인증) | 코 닝 | 354277 | |
| 최소 필수 배지 비필수 아미노산(MEM NEAA) | 깁코 | 11140-050 | 4°C에 보관하십시오. |
| 미토마이신-C(물에 10mM) | 밀리포어-시그마 | M5353 | 미토마이신-C(MMC)를 물에 녹이고 멸균 필터(0.22mM 기공 크기)합니다. 100mL 분취량을 -20 °에서 보관하십시오. 6개월 동안 C. 냉동 MMC를 해동하려면 온수조(>60 &g; C) 짙은 보라색 용액으로. |
| 페니실린-스트렙토마이신 (100X) | 깁코 | 15140-122 | 4°C에 보관하십시오. |
| 플라스틱 원심분리기 튜브(15mL) | 코 닝 | 352196 | |
| 플라스틱 원심분리기 튜브(50mL) | 코 닝 | 352070 | |
| 피루브산나트륨(100X) | 깁코 | 11360-070 | 4°C에 보관하십시오. |
| STO 마우스 배아 섬유아세포 | ATCC | CRL-1503 | |
| 트리판 블루 (0.4 %) | 피셔 사이언티픽 | 티10282 | 실온에서 보관하십시오. |
| 트리플레 익스프레스 | 깁코 | 12604-013 | 실온에서 보관하십시오. |
| Y-27632(수중 10mM) | 토크리스 | 1254 | ROCK 억제제인 Y-27362를 물에 10mM로 용해시키고 필터 멸균(0.22mM 기공 크기)합니다. 100mL 분취량을 -20 °에서 보관하십시오. 6개월 동안 C. |
참고문헌
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공