여기에서는 증폭 준비 세포 용해, 재조합효소 중합효소 증폭 및 CRISPR/Cas12a 분석을 사용하여 Lotmaria passim 및 Nosema ceranae 와 같은 꿀벌 병원체에서 DNA를 검출하는 간단하고 빠른 절차를 설명합니다.
방법 논문
RPA/CRISPR/Cas12a 시스템과 결합된 알칼리 용해를 통한 트리파노소마티드 기생충 및 노세마 세라네 의 현장 DNA 검출
이 논문에서
정오 공지
Important: There has been an erratum issued for this article. View Erratum Notice
요약
초록
미세한 병원체를 현장에서 조기에 감지하는 것은 꿀벌 군집의 효과적인 관리와 건강을 위해 필수적입니다. 현재 꿀벌 병원체의 분자 검출을 위한 황금 표준은 qPCR 또는 RT-qPCR입니다. 여기에서는 현장 배치 가능한 DNA 병원체 검출을 위한 빠르고 민감하며 비용 효율적인 대안을 제시합니다. 이 방법은 일벌 복부의 직접 증폭 가능한 세포 용해와 재조합효소 중합효소 증폭(RPA), 리포터 프로브의 CRISPR/Cas12a 매개 트랜스 분할 및 측면 유동 분석을 통한 검출을 결합합니다. 우리는 Nosema ceranae 및 Lotmaria passim에 감염된 꿀벌에서 이 프로토콜을 성공적으로 검증했습니다. 설명된 프로토콜은 간단한 열 블록을 사용하여 또는 실온에서 수행할 수 있으며 꿀벌의 모든 DNA 기반 병원체 또는 장내 미생물군에 잠재적으로 적용할 수 있습니다. 전체 프로세스는 약 180분이 소요되며 qPCR에 필적하는 감도를 달성하여 96개의 기생충 copies/μL만 검출합니다. 결론적으로, 이 접근 방식은 복잡한 실험실 장비 없이 꿀벌 감염에 대한 신뢰할 수 있고 신속한 현장 진단을 위한 유망한 도구를 제공하므로 현장 군집 감시에 이상적입니다.
서론
꿀벌은 식물의 수분과 관련된 핵심 종이며 식물 번식, 생물 다양성 및 식량 안보에 필수적입니다1. 그들의 수분 서비스는 경제적 가치가 높은 다양한 작물에 혜택을 주며 세계 농업에 연간 약 2,350-5,770억 달러를 기여합니다. 그러나 전 세계적으로 꿀벌 개체수의 감소는 생태 안정성과 작물 생산성에 대한 잠재적 영향으로 인해 심각한 우려를 불러일으켰으며, 이로 인해 부채가 많은 가난한 국가에서 48억에서 163억 달러의 손실이 발생한 것으로 추산됩니다2. 꿀벌 실종의 대량은 살충제 살포, 서식지 손실, 기후 변화, 바이러스, 박테리아, 곰팡이 및 원생동물을 포함한 병원체에 의한 감염과 같은 여러 요인 간의 여러 상호 작용을 포함합니다.
이러한 미생물 중 장내 기능을 방해하는 미세포자균인 Nosema spp.와 트리파노소마티드 기생충( 특히 Lotmaria passim)은 전 세계 꿀벌 군집에 널리 분포되어 있습니다3, 4. 최근 연구 결과에 따르면 L. passim 감염은 무증상일지라도 꿀벌의 면역 관련 유전자를 하향 조절하고 에너지 대사를 변화시켜 추가적인 스트레스 하에서 회복력을 손상시킬 수 있습니다5. 마찬가지로, Nosema spp. 감염은 꿀벌의 수명을 단축시키고, 면역 기능을 억제하며, 군체의 수렵 역학을 방해하여 꿀 생산량을 감소시키고 군체의 폐사율을 증가시킵니다. 더욱이, Nosema spp.와 trypanosomatids를 모두 포함하는 동시 감염은 시너지 효과를 일으켜 생리적 스트레스를 악화시키고 숙주 방어를 약화시킬 수 있습니다. 이러한 결과는 여러 병원체를 동시에 모니터링하는 것의 중요성을 강조합니다.
이러한 위협에 대처하기 위해서는 신속하고 정확한 진단 도구의 개발이 필요하며, 이는 다시 이러한 병원체의 생물학, 전파 및 생존 전략에 대한 더 깊은 이해에 달려 있습니다6. 광학 현미경 및 분자 증폭을 포함한 기존 방법을 통한 이러한 병원체의 검출은 여전히 신뢰할 수 있지만 특정 한계에 직면해 있습니다. qPCR, RTqPCR(다양한 온도에서 사이클링 필요) 및 루프 매개 증폭(LAMP, 일정한 온도에서 작동)과 같은 등온 방법의 예가 곰팡이, 바이러스, 박테리아 또는 원생동물 기생충에 대해 개발되었습니다 6,7,8,9,10. 그러나 이러한 방법을 구현하려면 훈련된 인력 및 잘 갖춰진 실험실 시설과 함께 특수 장비가 필요하므로 현장 응용 프로그램 및 대규모 모니터링에 대한 실용성이 제한됩니다. 이러한 문제를 해결하기 위해 재조합효소 중합효소 증폭(RPA)을 통한 DNA 표적 증폭과 CRISPR/Cas12a 기반 검출 방식인 빠르고 특이적이며 민감한 접근 방식인 새로운 분자 기술이 개발되었습니다. 이 방법은 등온으로 작동하며 현장 또는 현장 진단에 적합한 시각적 결과를 생성한다고 Shao et al.11 및 Xiao et al.12은 말합니다.
RPA는 일반적으로 37°C에서 42°C 사이의 일정한 온도에서 작동하는 간단하고 빠른 DNA 증폭 방법입니다. 재조합효소(recombinase enzyme), 단일가닥 DNA 결합 단백질(single-stranded DNA-binding protein) 및 가닥 치환 중합효소(strand-dischief polymerase)에 의존하여 열 사이클링 없이 DNA를 증폭합니다. RPA는 속도, 최소한의 장비 요구 사항 및 원유 샘플과의 호환성으로 인해 현장 테스트 및 현장 진단에 특히 적합합니다 11,12,13. 특이성을 높이기 위해 동일한 온도 범위 내에서 기능하는 Cas12a 엔도뉴클레아제를 사용하여 RPA 제품을 검출할 수 있습니다. Cas12a는 증폭된 표적 염기서열로 Cas12a를 안내하고 DNA의 상보적 염기서열에 결합하는 짧은 RNA인 CRISPR 가이드 RNA(gRNA)에 결합합니다. 결합하면 Cas12a가 활성화되고 특히 단일 가닥 DNA(ssDNA)에 대해 담보(트랜스) 절단 활성을 나타냅니다. 이를 통해 형광단 또는 비오틴으로 표지된 ssDNA 리포터 분자를 사용할 수 있으며, 이는 측면 유동 스트립 판독을 포함한 형광 또는 시각적 신호를 생성할 수 있습니다. RPA와 CRISPR/Cas12a는 함께 빠르고 민감하며 현장 또는 자원이 제한된 환경에서 사용하기에 적합한 강력한 분자 진단 플랫폼을 형성합니다12.
이 분자 진단 접근법의 실용성을 더욱 향상시키기 위해 꿀벌복부 11,14의 수산화나트륨(NaOH) 용해를 기반으로 하는 간소화된 증폭 준비 세포 용해(ARCL) 방법을 구현하여 광범위한 샘플 준비 및 실험실 시약의 필요성을 제거했습니다. 등온 증폭 및 CRISPR/Cas12a 검출 시스템과 결합된 이 신속한 핵산 추출 기술은 시간과 비용을 크게 절감하는 진정한 현장 배포 가능한 워크플로우를 가능하게 합니다. 중요한 것은 이 분석법이 꿀벌의 병원체 검출을 위한 현재 황금 표준인 qPCR에 필적하는 품질, 높은 감도 및 특이성을 유지한다는 것입니다.
여기에서 우리는 꿀벌에서 Nosema ceranae 및 L. passim 을 검출하기 위해 이 방법론을 성공적으로 적용했습니다(그림 1). 이 방법을 표준 qPCR 분석법과 비교하고 자연적으로 감염된 샘플을 사용하여 성능을 검증했습니다. 우리의 연구 결과는 이 접근 방식이 꿀벌 건강에 대한 현장 기반 모니터링을 위한 실용적이고 신뢰할 수 있는 대안이며, 양봉에 대한 대규모 감시 및 조기 개입 노력에 대한 강력한 잠재력을 가지고 있음을 보여줍니다.
프로토콜
모든 절차는 무척추 동물과 함께 작업하고 개념 증명에 필요한 가장 적은 수의 꿀벌을 사용하기 위한 기관 및 국가 지침에 따라 수행되었습니다. 꿀벌은 환기가 잘되고 적절한 온도를 가진 특수 벌통 상자에 넣어 운송되어 분석될 때까지 -20°C의 실험실에 보관되었습니다.
1. HotSHOT 알칼리 세포 용해
- 용액 준비
- HotSHOT 용해 완충액 - 100mL 준비
- NaOH 99.993mg과 EDTA 8.32mg의 무게를 달고 증류수 90mL를 넣고 섞습니다. pH를 12로 조정하고 부피를 100mL로 조정합니다. 오토 클레이 브.
- 40mM 트리스-HCl, pH 5
- Tris 484.544mg에 탈이온수 90mL를 넣고 HCl로 pH를 5로 조정한 다음 부피를 100mL로 가져옵니다.
- HotSHOT 용해 완충액 - 100mL 준비
- Lysis 프로토콜
- 멸균 메스를 사용하여 꿀벌의 복부를 절개하고 절개된 조직을 1.5mL 미세 원심분리 튜브로 옮깁니다.
참고: 병원균 검출을 위해 복부만 사용하고 나머지 신체 부위는 폐기했습니다. - 400μL의 HotSHOT buffer를 추가하고, 일회용 절굿공이를 사용하여 조직을 침식한 다음, 볼텍싱(vortexing)을 통해 조직을 더욱 균질화합니다.
참고 : 유봉은 0.1 N NaOH 용액에서 밤새 재료를 배양하여 오염을 제거한 다음 이중 탈 이온수로 헹군 다음 한 번의 오토 클레이브 사이클을 거친 후 인큐베이터에서 건조하여 오염을 제거 할 수 있습니다. - 균질액을 95°C에서 10분 동안 배양하여 세포를 용해시킵니다. 배양 후에는 즉시 튜브를 얼음 위에 올려 식히십시오.
- 반응을 중화하려면 400mM Tris-HCl의 동일한 부피 (40 μL)를 첨가하여 용액에서 20 mM Tris-HCl의 최종 농도를 얻습니다.
참고: 이 용해 절차는 그림 2에 설명되어 있습니다.
- 멸균 메스를 사용하여 꿀벌의 복부를 절개하고 절개된 조직을 1.5mL 미세 원심분리 튜브로 옮깁니다.
2. RPA에 의한 등온 증폭
참고: 프라이머의 설계는 다른 프라이머 설계 도구를 사용할 수 있지만 eprimer3 소프트웨어 도구(https://www.bioinformatics.nl/cgi-bin/emboss/eprimer3)의 도움으로 이루어졌습니다.
- 작업 솔루션 준비
- RPA 프라이머 솔루션
- 제조업체의 지침에 따라 100μM 농도의 원액 을 준비합니다. 예를 들어, 100μL의 디에틸 피로카보네이트(DEPC) 처리된 물에 10.0nmol의 동결건조된 프라이머를 재구성하고 -20°C에서 보관합니다. 원료를 1:10으로 희석하여 10μM 농도에서 작업 용액을 준비합니다. 0.2mL 튜브에 90μL의 DEPC 처리된 물과 100μM의 원액 10μL를 혼합합니다. 이러한 용액은 -20°C에서 보관하십시오.
- RPA 프라이머 솔루션
- RPA 프로토콜
- 수행할 반응 횟수에 따라 마스터 믹스를 준비합니다. 음성 대조군(ARCL을 DEPC 처리된 물로 대체)과 병원체 DNA(이 예에서는 세포 배양 L. passim promastigotes 및 Nosema spp.에 양성인 꿀벌의 DNA)를 모두 포함합니다. (현미경으로 검출된 포자)) (표 1).
알림: 항상 얼음 위에서 RPA 마스터 믹스를 준비하고 필터 팁을 사용하여 오염을 방지하십시오. - 마스터 믹스 46.5μL의 부분 표본을 각 0.2mL 튜브로 옮깁니다.
- 표 2에 명시된 부피에 따라 마그네슘 아세테이트(MgOAc)와 템플릿 DNA를 튜브의 캡에 추가합니다. 튜브를 간단히 원심분리하여 내용물을 혼합하고 RPA 반응을 시작합니다.
알림: 더 나은 재현성을 위해 사용하기 전에 모든 구성 요소를 잠시 와류와 원심분리하십시오. 반응을 검증하기 위해 각 배치에 positive 및 negative control을 포함해야 합니다. - RPA 증폭 반응을 위해 39°C에서 40분 동안 샘플을 배양합니다.
참고: 배양 후 RPA 반응은 섹션 3에 설명된 다운스트림 검출(예: CRISPR/Cas12a 기반 분석)에 직접 사용할 수 있습니다.
- 수행할 반응 횟수에 따라 마스터 믹스를 준비합니다. 음성 대조군(ARCL을 DEPC 처리된 물로 대체)과 병원체 DNA(이 예에서는 세포 배양 L. passim promastigotes 및 Nosema spp.에 양성인 꿀벌의 DNA)를 모두 포함합니다. (현미경으로 검출된 포자)) (표 1).
3. CRISPR/Cas12a에 의한 병원체 DNA 검출
참고: RPA 후 감지는 다양한 방법으로 수행할 수 있습니다. 이 프로토콜에서는 형광(FAM-TTTTTTTT-MGB) 및 면역크로마토그래피 스트립(Biotin-TTTTTTTT-FITC)에 의한 검출을 자세히 설명합니다.
모든 절차는 깨끗하고 DNA가 없는 공간(예: PCR 전용 공간)에서 수행합니다. 0.5% 표백제로 작업 표면과 피펫을 청소한 다음 70% 에탄올을 사용합니다. 항상 필터 팁을 사용하고 장갑을 착용하십시오. DNA 또는 증폭된 물질은 시약 준비 구역과 분리된 영역에서 취급합니다. 모든 시약을 얼음 위에서 해동하고 준비하는 동안 추운 상태를 유지하십시오.
- 작업 솔루션 준비
- 크르RNA
참고: Nosema ceranae 및 Lotmaria passim crRNA의 설계는 EuPaGDT(Eukaryotic Pathogen CRISPR guide RNA/DNA Design Tool) http://grna.ctegd.uga.edu/ 를 사용하여 수행되었습니다. 맞춤형 crRNA 설계를 위해 GPP sgRNA Designer(https://portals.broadinstitute.org/gpp/public/analysis-tools/sgrna-design) 또는 CHOPCHOP(https://chopchop.cbu.uib.no/)과 같은 다른 소프트웨어를 사용할 수 있습니다.- 100 μM crRNA 원액을 준비하려면 동결건조된 각 crRNA 10 nmol을 100 μL의 DEPC 처리수로 재구성하고 -20 °C에서 보관합니다. 1μM 작업 용액을 준비하려면 0.2mL 튜브에서 100μM 원액 1μL를 DEPC 처리된 물 99μL와 혼합하여 1:100 희석을 수행합니다(그림 3).
알림: 두 솔루션 모두 -20 °C에서 보관해야 합니다.
- 100 μM crRNA 원액을 준비하려면 동결건조된 각 crRNA 10 nmol을 100 μL의 DEPC 처리수로 재구성하고 -20 °C에서 보관합니다. 1μM 작업 용액을 준비하려면 0.2mL 튜브에서 100μM 원액 1μL를 DEPC 처리된 물 99μL와 혼합하여 1:100 희석을 수행합니다(그림 3).
- Cas12a 제제
참고: Cas12a는 1μM 또는 100μM의 농도로 제공될 수 있습니다.- 100μM로 공급되는 경우 100μM Cas12a 효소 1μL와 키트에 제공된 희석제 99μL를 혼합하여 사용하기 전에 1μM 작업 용액으로 희석합니다(1:100 희석, 그림 3).
참고: Cas12a 효소 농도는 샘플 유형에 따라 조정할 수 있습니다. 효소는 글리세롤 기반 희석제에 저장되므로 잠재적인 억제 효과를 피하기 위해 추가된 효소의 부피가 총 반응 부피의 20%를 초과하지 않도록 하는 것이 중요합니다.
- 100μM로 공급되는 경우 100μM Cas12a 효소 1μL와 키트에 제공된 희석제 99μL를 혼합하여 사용하기 전에 1μM 작업 용액으로 희석합니다(1:100 희석, 그림 3).
- FAM 및 비오틴 프로브 용액 준비
참고: FAM 프로브는 동결건조 형태로 제공됩니다.- 100μM 원액을 준비하려면 프로브 1nmol당 DEPC 처리수 1μL를 추가하여 프로브를 재현탁합니다(예: 102nmol의 경우 DEPC 처리수 102μL 추가). 원액을 -20°C에서 보관하십시오. 검출 마스터믹스에 사용하려면 원자재를 1:10(DEPC 처리된 물 90μL와 100μM FAM 10μL)으로 희석하여 10μM 작업 용액을 얻습니다(그림 3).
- 크르RNA
- CRISPR/Cas12a 검출 프로토콜
- 형광 기반 검출(FAM 프로브)
- 1.5mL 마이크로 원심분리기 튜브에서 앰플리콘을 제외하고 표 3에 설명된 대로 반응 혼합물을 준비합니다.
- 와류를 사용하여 철저히 혼합하고 혼합물을 PCR 튜브에 분배합니다.
- 그런 다음 각 튜브에 4μL의 RPA 앰플리콘(2.2단계에서 설명)을 추가합니다.
- 37°C에서 120분 동안 형광 판독 기능이 있는 열순환기에서 반응을 배양하고 매분 형광을 기록합니다.
- 선택 사항: 배양이 끝나면 반응을 0.2mL 튜브로 옮기고 이미징을 위한 겔 문서화 시스템을 사용하여 시각화합니다.
- 측면 유동 테스트에서 비오틴 프로브를 사용한 검출
- 1.5mL 마이크로 원심분리기 튜브에 표 4에 표시된 성분을 추가합니다.
- 섹션 3.2.1에 설명된 대로 혼합물을 만들고 혼합하여 PCR 플레이트에 분배합니다. 마지막으로 각 웰에 4μL의 앰플리콘을 추가합니다.
- 37°C에서 thermocycler(형광 판독 없이) 또는 열 블록에서 120분 동안 배양합니다.
- 검체를 0.2mL 튜브로 옮기고 면역 스트립으로 검출을 수행합니다. 이를 위해 각 튜브에 50μL의 러닝 버퍼와 10μL의 반응 혼합물을 추가하고 스트립을 튜브에 직접 삽입합니다. 실온에서 15분 동안 배양하고 그림 3과 같이 10분 동안 담근 후 결과를 읽습니다.
- 형광 기반 검출(FAM 프로브)
결과
여기에서는 RPA 증폭 및 형광 및/또는 측면 유동 접근법에 의한 CRISPR/Cas12a 기반 검출과 결합된 일벌 복부의 알칼리 용해를 사용하는 빠른 현장 방법을 설명했습니다. 전체 워크플로우의 스키마는 그림 3에 나와 있으며, 일벌 복부의 HotSHOT 알칼리 용해 스키마는 그림 4에 나와 있습니다. RPA/CRISPR/Cas12a 분석의 대표적인 결과는 그림 5에 나와 있습니다. L. passim 및 N. ceranae를 검출하기 위해 열순환기를 사용하여 FAM 표지 프로브를 사용하여 상대 형광 단위(RFU)를 정량화했습니다(그림 4A). RPA 반응은 10ng의 DNA를 사용하여 수행되었으며 형광 데이터는 그래프에 표시되었습니다(그림 4B). 분석의 마지막 단계에서 원뿔형 튜브의 샘플을 겔 이미징 시스템을 사용하여 촬영했습니다(그림 4C). 비오틴 표지 프로브를 사용한 검출을 위해 샘플을 열 블록에서 배양했습니다(그림 4A). 검출 용액은 제조업체의 지침에 따라 준비되었으며 측면 흐름 스트립에 적용되었습니다(그림 4B, C). 이 방법을 통해 두 꿀벌 병원체를 모두 성공적으로 검출할 수 있었습니다.
RPA 반응의 효율성을 결정하기 위해 이 방법을 참조된 키트를 사용하여 꿀벌에서 정제된 DNA를 사용하는 표준 qPCR과 비교했습니다(재료 표 참조). 총 32개의 꿀벌 샘플을 두 가지 방법 모두에 대해 L. passim의 β-tubulin 유전자를 표적으로 하는 프라이머로 테스트한 다음 형광 프로브의 CRISPR/Cas12a 트랜스 절단으로 검출했습니다. 특히, 그 결과 12개의 샘플에서 qPCR이 양성으로 밝혀졌으며, RPA/CRISPR/Cas12a는 16개의 샘플에서 L. passim을 검출했습니다(그림 5A). 이는 RPA 반응 성능이 최적 표준 DNA 증폭 방법인 PCR보다 더 민감하다는 것을 나타냅니다.
마찬가지로, 66 ng에서 6 fg 범위의 L. passim DNA의 연속 희석을 사용하여 병원체 모델로서 L. passim DNA에 대한 CRISPR/Cas12a 검출과 결합된 qPCR 및 RPA의 검출 한계(LOD)를 결정했습니다. qPCR은 약 96개의 기생충에 해당하는 6pg만 검출했습니다(그림 5B). 이에 비해 RPA의 LOD는 96개의 기생충에 해당했습니다(그림 5C, D).
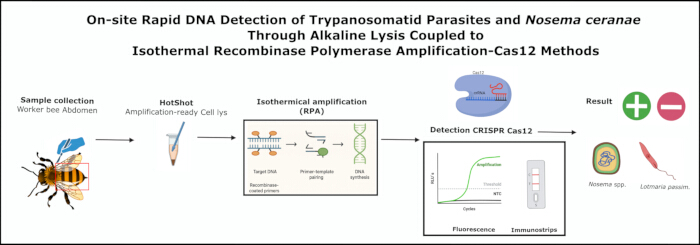
그림 1: 꿀벌에서 RPA 증폭 및 Cas12 검출 방법과 결합된 HotSHOT 알칼리 용해의 일반적인 워크플로우. 약어: RPA = recombinase polymerase amplification; CRISPR = Clustered Regularly Interspaced Short Palindromic Repeats; Cas = CRISPR 관련 단백질. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
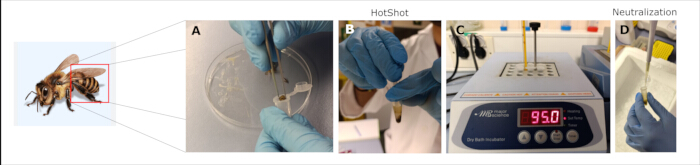
그림 2: HotSHOT 버퍼를 사용한 증폭 준비 세포 용해 처리. (A) 메스로 꿀벌의 복부를 잘라 원심분리기 튜브에 넣는다. (B) 유봉으로 400μL의 HotShot으로 침용합니다. (C) 95 ° C의 온도 블록에서 10 분 동안 배양하십시오. (D) 400 μL의 40 mM Tris-HCl로 중화합니다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
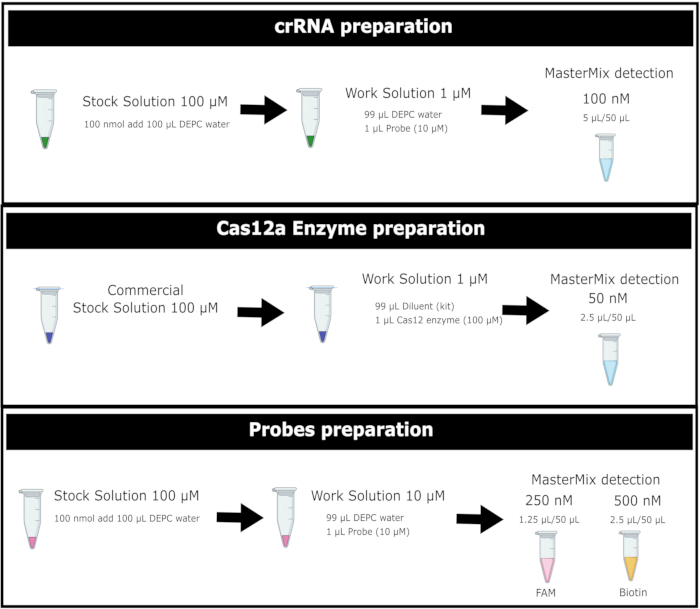
그림 3: Cas12a 효소 및 FAM 및 Biotin 표지 리포터 프로브 용액 준비를 위한 일반적인 워크플로우. 약어: DEPC-물 = 디에틸 피로카보네이트 처리된 물; crRNA= RNA 크리스퍼; Cas12 = CRISPR 관련 단백질의 유형. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
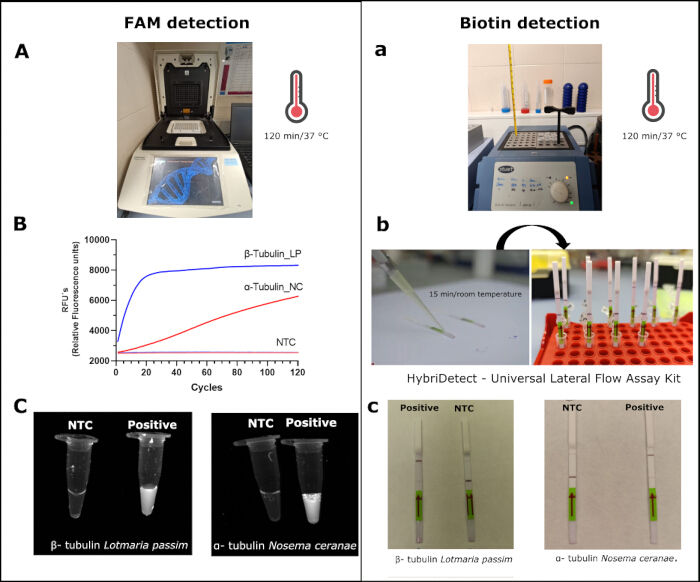
그림 4: FAM 및 비오틴 프로브를 사용한 CRISPR/Cas12a 방법에 의한 Lotmaria passim 및 Nosema ceranae 검출. FAM 검출을 위해 (A) 샘플은 열순환기에서 배양되고 있습니다. (B) L. passim 및 N.ceranae의 상대 형광 단위(RFU); (C) 사진 문서화 시스템에서 동일한 샘플의 시각화. 비오틴 테스트에서, (a) 열 블록에서 배양하는 샘플; (b) 샘플이 키트로부터 면역스트립에 첨가되었습니다(재료 표 참조). (c) 배양 후의 결과. 약어: LP= Lotmaria passim; NC = Nosema ceranae; NTC = 템플릿 컨트롤 없음; RFU: 상대 형광 단위 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
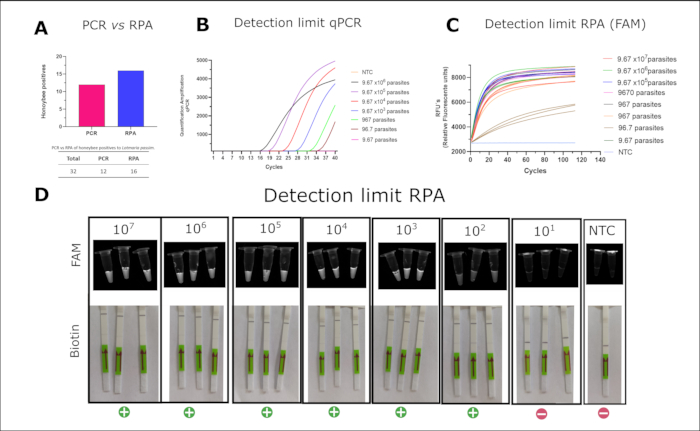
그림 5: qPCR과 RPA의 비교 및 Lotmaria passim의 검출 한계. (A) 기존 qPCR 및 RPA를 사용한 꿀벌 샘플에서 L. passim 검출. (B) SsoFast EvaGreen을 사용한 L. passim 의 qPCR 검출 한계. (C) FAM 표지 프로브와 함께 CRISPR/Cas12a를 사용한 L. passim 의 검출 한계; (D) 겔 이미징 시스템(맨 위 줄)에서 동일한 CRISPR/Cas12a 검출( C에서)의 시각화 및 비오틴 표지 프로브(맨 아래 줄)와 함께 CRISPR/Cas12a를 사용한 해당 측면 유동 결과. 약어: RPA = recombinase polymerase amplification; qPCR= 정량적 중합효소 연쇄 반응. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 시약 | 최종 집중 | 10 μL | 50 마이크로L |
| 2x 반응 버퍼 | 1배 | 5 μL | 25 마이크로L |
| dNTP(10mM) | 1.8 밀리미터미터 | 1.8 μL | 9 μL |
| 10x 기본 E-믹스 | 1배 | 1 μL | 5 μL |
| 포워드 프라이머(10μM) | 480 nM | 0.5 μL | 2.4 μL |
| 리버스 프라이머(10μM) | 480 nM | 0.5 μL | 2.4 μL |
| 20x 코어 반응 믹스 | 1배 | 0.5 μL | 2.5 μL |
| DEPC 물 | -- | 0.7 μL | 3.7 μL |
표 1: 최종 부피가 10 μL 및 50 μL이고 해당 작업 농도가 있는 RPA용 마스터믹스 성분:
| 시약 | 최종 집중 | 10 μL 반응 | 50 μL 반응 |
| 280 mM 마그네슘 | 1.8 밀리미터미터 | 0.5 μL | 2.5 μL |
| 디에이지 | 10-0.1 ng | 1 μL | 2 μL |
표 2: RPA 반응에서 샘플당 첨가되는 시약의 양
| 시약 | [재고] | [결승전] | 1배(μL) |
| Cas12a 효소 | 1 μM | 50nM | 2.5 |
| cRNA (세포) | 1 μM | 100nM | 5 |
| FAM 프로브 | 10 μM | 250 nM | 1.25 |
| NEB 버퍼 10x | 10배 | 1배 | 5 |
| RPA 앰플리콘 | - | - | 4 |
| 물 | - | - | 32.25 |
| 합계 | 50 |
표 3: CRISPR/Cas 12a 방법에 의한 FAM 검출을 혼합하기 위한 시약의 농도.
| 시약 | [재고] | [결승전] | 1배(μL) |
| Cas12a 효소 | 1 μM | 50nM | 2.5 |
| cRNA (세포) | 1 μM | 100nM | 5 |
| 비오틴 프로브 | 10 μM | 500nM | 2.5 |
| NEB 버퍼 10x | 10배 | 1배 | 5 |
| RPA 앰플리콘 | - | - | 4 |
| 물 | - | - | 31 |
| 합계 | 50 |
표 4: CRISPR/Cas 12a 방법에 의한 혼합 비오틴 검출을 만들기 위한 시약의 농도.
토론
이 연구에서는 꿀벌 병원체를 감지하기 위한 실용적인 분자 진단 프로토콜을 개발하고 검증했습니다. 이 워크플로우는 증폭 가능한 세포 용해, RPA를 사용한 등온 증폭 및 CRISPR/Cas12a를 통한 고도의 특이적 검출을 통합합니다. 평가된 화학적 DNA 추출 방법 중 HotSHOT 알칼리 용해 프로토콜은 비용, 속도 및 단순성 측면에서 상당한 이점을 제공합니다. 상용 키트 없이 증폭 준비 용해물을 효율적으로 생산합니다. 이 방법은 꿀벌 14,15,16,17,18의 병원체 검출을 포함하여 다양한 응용 분야에서 신뢰할 수 있는 것으로 입증되었습니다. 고온 알칼리성 조건은 DNA 가닥 사이의 세포막과 수소 결합을 방해하여 다운스트림 증폭에 적합한 단일 가닥 DNA를 방출합니다. PCR 억제제의 존재 또는 차선의 중화와 같은 잠재적인 한계가 있지만, 알칼리 용해는 고세균19, 박테리아20 및 곰팡이14와 같은 다양한 유기체에서 효과적으로 작동하는 것으로 나타났으며 PCR, qPCR 및 LAMP21 및 RPA12와 같은 등온 방법과 호환됩니다.
RPA/CRISPR/Cas12a 시스템은 강력한 특이성과 만족스러운 민감도를 보여주었습니다. 각 병원체의 보존 영역을 표적으로 하는 crRNA를 사용하여 숙주 DNA 또는 관련 없는 미생물에 대한 교차 반응 없이 정확한 식별이 가능했습니다. 이전에 꿀벌에 이 시스템을 적용한 결과, 변형된 날개 바이러스 유형 A및 B에 대해 약 6.5 × 10² 및 6.2 × 101 copies/μL의 검출 한계를 달성했습니다. 그러나 이러한 분석은 신속한 RNA 및/또는 DNA 추출이 가능한 현장 조건에 최적화되지 않았습니다. 이 연구에서는 DNA 병원체(N. ceranae 및 L. passim)에 대해 특별히 이 방법을 조정하여 현장 호환 검출이 가능했습니다.
본 연구 결과에 따르면 RPA/CRISPR/Cas12a는 양성 시료 식별에서 기존 PCR을 능가했으며(16 대 12), 이는 미처리 용해물에서도 효과적인 CRISPR/Cas12a 측부 절단 활성을 사용하여 개선된 신호 때문일 수 있습니다. PCR 기반 방법에 비해 민감도 개선은 이전에 Yersinia enterocolitica22, Diaporthe aspalathi23 또는 Vibrio vulnificus24와 같은 다양한 병원체 모델에서 보고되었습니다. 또한 정량 분석을 통해 실험실 조건(~96 기생충 사본/μL)에서 RPA/CRISPR/Cas12a 및 qPCR의 검출 한계와 동등한 수치가 나타났습니다. 이는 crRNA가 제공하는 추가 염기서열 인식으로 인해 TaqMan qPCR과 유사한 특이성을 가진 방법의 우수한 성능을 의미합니다. 또한, 이 분석은 최소한의 장비만 필요하고, 열순환기 또는 형광 판독기에 의존하지 않으며, 이전에 다른 병원체에 대해 개발된 것과 같이 측면 유동 스트립을 사용하여 시각화할 수 있습니다25,26. 이는 해석을 단순화하고 현장 기술자와 양봉가가 테스트에 쉽게 접근할 수 있도록 합니다.
현재 프로토콜은 강력한 결과를 제공하지만 추가 개선이 가능합니다. 다른 DNA 기반 꿀벌 병원체를 표적으로 하도록 분석을 조정하려면 RPA 프라이머와 crRNA를 재설계하기만 하면 됩니다. RNA 바이러스의 경우, 꿀벌의 DWV-A 및 DWV-B를 포함하여 여러 바이러스성 감염성 질환 26,27,28에 대해 이전에 입증된 바와 같이 역전사 단계(RT-RPA)를 포함하도록 프로토콜을 확장할 수 있습니다15. 또한 현재 약 180분인 총 분석 시간은 각 단계의 타이밍을 줄이기 위한 프로토콜 최적화를 통해 줄일 수 있습니다. 또 다른 대안은 모든 RPA/CRISPR/Cas12a 시약을 단일 반응으로 결합하는 원팟 RPA/CRISPR/Cas12a입니다. 이 올인원 방법론은 광범위한 바이러스 및 박테리아 병원체 25,26,29의 검출에 성공적으로 적용되었습니다. 그 외에도 ssDNA 프로브가 Cas12a 검출을 위해 확장되고 대중화되었음에도 불구하고 일부 연구에서는 dsDNA30의 안정성으로 인해 테스트에 유용할 수 있는 dsDNA(trans-cleavage double-stranded DNA) 프로브의 Cas12a 용량을 보고했습니다. 이를 통해 결과 도출 시간을 30분 미만으로 단축하여 현장 적용 가능성을 더욱 높일 수 있습니다. 또한 RPA 및 CRISPR 시약을 동결건조하면 시약 안정성이 향상되고 콜드 체인의 필요성이 없어져 원격 또는 리소스가 부족한 환경에 대한 적합성이 향상됩니다. 동결건조 시약을 사용한 RPA/CRISPR/Cas12a의 성공적인 성능은 SARS-Cov226를 포함한 Actinobacillus pleuropneumonia31 및 호흡기 감염 바이러스28,32의 검출에 대해 성공적으로 확인되었습니다.
요약하면, 이 연구는 꿀벌 병원체 감지를 위한 완전한 현장, 비용 효율적 및 휴대용 분자 진단 플랫폼을 제시합니다. 이 방법론은 현재 약 180분 동안 지속되지만 총 타이밍은 여전히 추가 개선이 필요할 수 있습니다. 우리는 개념 증명 대상으로 L. passim 및 Nosema spp.에 초점을 맞췄지만, 이 시스템은 모듈식이며 광범위한 DNA 기반 꿀벌 병원체(예: Paenibacillus 유충 또는 Melisococcus plutonious)에 적응할 수 있을 뿐만 아니라 관심 있는 공생 공생체를 모니터링할 수 있습니다. 이 접근 방식은 전통적인 실험실 환경을 넘어 분자 진단에 대한 접근성을 확장하고 양봉에 대한 조기 개입 전략을 지원합니다. 보다 광범위하게는, 우리의 결과는 현장 준비 진단 응용 분야에서 CRISPR 기반 기술의 실행 가능성을 보여줍니다.
공개 사항
저자는 공개할 이해 상충이 없습니다.
감사의 글
이 작업은 안달루시아 정부의 농업 생산성 및 지속 가능성에 대한 유럽 혁신 협회(AEI)의 운영 그룹에 대한 지원이라는 제목으로 "그라나다 지방의 양봉장에서 꿀벌 질병의 신속한 모니터링을 위한 새로운 분자 도구"(GOPG-GR-23-0002) 보조금의 지원을 받았습니다. 우리는 또한 R+D+I 시스템의 지식 생성 및 과학 및 기술 강화를 위한 스페인 프로그램의 지원, MCIN/AEI/10.13039/501100011033 및 "ERDF/EU"가 자금을 지원하는 PID2021-126938OB-I00 보조금의 지원에 감사드립니다. 우리는 APAG(Asociación de Pequeños Apicultores de Granada) 및 FAECA(Cooperativas Agroalimentarias de Granada)의 양봉가들이 제공한 도움과 자원에 매우 감사했습니다. 이 연구는 D. Pedro García Olmedo의 박사 학위 논문의 일부입니다. 기초 및 시스템 생물학 박사 과정 (University of Granada, UGR).
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.2 mL DNAse 및 RNAse가 없는 Eppendorf 튜브 | 액시젠 | MTC-02-C | |
| 1.5 mL DNAse 및 RNAse가 없는 Eppendorf 튜브 | 액시젠 | MTC-150-C | |
| 10 & 뮤; L 저보유 필터링 팁 | 랩클리닉 | 5-063-P5-0 | |
| 100 & 뮤; L 저보유 필터링 팁 | 랩클리닉 | 5-120-P5-0 | |
| 1000 & 무; L 저보유 필터링 팁 | 랩클리닉 | 5-203-P4-0 | |
| BH-200 시리즈 스튜어트 드라이 블록 히터 | 콜-파머 | EW-36610-00 | |
| DEPC 처리수 | 앰비콘 | AM9906 | |
| EDTA | 시그마-알드리치 | 798681 | |
| 엔젠 lba cas12a(cpf1) | 뉴잉글랜드 바이오랩스 | M0653T | |
| 시그마-알드리치 | 시그마-알드리치 | 64-17-5 | |
| HCl | 시그마-알드리치 | 7647-01-0 | |
| 마이크로튜브 유봉 | 피셔브랜드 | 12141364 | |
| 밀레니아 젠라인 하이브리디텍트 | 밀레니아 | MGHD 1 | |
| 나오 | 시그마-알드리치 | 221465 | |
| RPA 키트 TwistAmp Liquid Basic | 트위스트앰프 | TALQBAS01 | |
| 메스 블레이드 | 스완-모튼 | 201 | |
| 싱글 샤넬 파이펫 PIPETMAN P1000L 마이크로피펫 금속 배출 | 길슨 | F144059M | |
| 싱글 샤넬 피펫 PIPETMAN P100L 마이크로피펫 금속 이젝트 | 길슨 | F144057M | |
| 싱글 샤넬 파이펫 PIPETMAN P10L 마이크로피펫 금속 이젝트 | 길슨 | F144055M | |
| 차아염소산나트륨 | |||
| 터치 실시간 PCR 검출 시스템 | 바이오래드 | CFX96 시리즈 | |
| 트리스-HCl | 시그마-알드리치 | 티1503 | |
| 트위스트Amp 리퀴드 베이직 | 트위스트 | TALQBAS01 |
참고문헌
- Goulson, D., Nicholls, E., Botías, C., Rotheray, E. L. Bee declines driven by combined stress from parasites, pesticides, and lack of flowers. Science. 347 (6229), 1255957(2015).
- Murphy, J. T., Breeze, T. D., Willcox, B., Kavanagh, S., Stout, J. C. Globalisation and pollinators: pollinator declines are an economic threat to global food systems. People and Nature. 4 (3), 773-785 (2022).
- Zattara, E. E., Aizen, M. A. Worldwide occurrence records suggest a global decline in bee species richness. One Earth. 4 (1), 114-123 (2021).
- Carreira de Paula, J., et al. Promastigote EPS secretion and haptomonad biofilm formation as evolutionary adaptations of trypanosomatid parasites for colonizing honeybee hosts. NPJ Biofilms Microbiomes. 10 (1), 27(2024).
- Requier, F., et al. First large-scale study reveals important losses of managed honeybee and stingless bee colonies inLatin America. Sci Rep. 14 (1), 10079(2024).
- Babin, A., Schurr, F., Rivière, M. P., Chauzat, M. P., Dubois, E. Specific detection and quantification of three microsporidia infecting bees, Nosema apis, Nosema ceranae, and Nosema bombi, using probe-based real-time PCR. Eur J Protistol. 86, 125935(2022).
- Cameron, T. C., Wiles, D., Beddoe, T. Current status of loop-mediated isothermal amplification technologies for the detection of honeybee pathogens. Front Vet Sci. 8, 659683(2021).
- Schurr, F., et al. Validation of quantitative real-time RT-PCR assays for the detection of six honeybee viruses. J Virol Methods. 270, 70-78 (2019).
- Xu, G., et al. Triplex real-time PCR for detection of Crithidia mellificae and Lotmaria passim in honeybees. Parasitol Res. 117 (2), 623-628 (2018).
- D'Alvise, P., Seeburger, V., Gihring, K., Kieboom, M., Hasselmann, M. Seasonal dynamics and co-occurrence patterns of honeybee pathogens revealed by high-throughput RT-qPCR analysis. Ecol Evol. 9 (18), 10241-10252 (2019).
- Shao, G., Zhu, X., Hua, R., Chen, Y., Yang, G. Development of a copro-RPA-CRISPR/Cas12a assay to detect Echinococcus granulosus nucleic acids isolated from canine feces using NaOH-based DNA extraction method. PLoS Negl Trop Dis. 18 (12), e0012753(2024).
- Xiao, Y., Fei, D., Li, M., Ma, Y., Ma, M. Establishment and application of CRISPR-Cas12a-based recombinase polymerase amplification and a lateral flow dipstick and fluorescence for the detection and distinction of deformed wing virus types A and B. Viruses. 15 (10), 2041(2023).
- Li, Z., et al. Cas-OPRAD: a one-pot RPA/PCR CRISPR/Cas12 assay for on-site Phytophthora root rot detection. Front Microbiol. 15, 1390422(2024).
- Osmundson, T. W., Eyre, C. A., Hayden, K. M., Dhillon, J., Garbelotto, M. M. Back to basics: an evaluation of NaOH and alternative rapid DNA extraction protocols for DNA barcoding, genotyping, and disease diagnostics from fungal and oomycete samples. Mol Ecol Resour. 13 (1), 66-74 (2013).
- Truett, G. E., et al. Preparation of PCR-quality mouse genomic DNA with hot sodium hydroxide and Tris (HotSHOT). BioTechniques. 29 (1), 52-54 (2000).
- Klintschar, M., Neuhuber, F. Evaluation of an alkaline lysis method for the extraction of DNA from whole blood and forensic stains for STR analysis. J Forensic Sci. 45 (3), 669-673 (2000).
- Galanis, A., et al. Bee foraging preferences, microbiota and pathogens revealed by direct shotgun metagenomics of honey. Mol Ecol Resour. 22 (7), 2506-2523 (2022).
- Xiang, Z., et al. A simple alkali lysis method for Plasmodium falciparum DNA extraction from filter paper blood samples. Mol Biochem Parasitol. , 254(2023).
- Shwani, A., Zuo, B., Alrubaye, A., Zhao, J., Rhoads, D. D. A simple, inexpensive alkaline method for bacterial DNA extraction from environmental samples for PCR surveillance and microbiome analyses. Appl Sci. 14 (1), 141(2024).
- Fowler, E. V., et al. Development of a cost-effective, morphology-preserving method for DNA isolation from bulk invertebrate trap catches: tephritid fruit flies as an exemplar. PLoS One. 18 (2), e0281759(2023).
- Yuan, J., et al. CRISPR-Cas12a-mediated hue-recognition lateral flow assay for point-of-need detection of Salmonella. Anal Chem. 96 (1), 220-228 (2024).
- Xiao, Y., et al. Ultra-sensitive and rapid detection of pathogenic Yersinia enterocolitica based on the CRISPR/Cas12a nucleic acid identification platform. Foods. 11 (14), 2160(2022).
- Dong, J., et al. Comparative evaluation of PCR-based, LAMP and RPA-CRISPR/Cas12a assays for the rapid detection of Diaporthe aspalathi. Int J Mol Sci. 25 (11), 5773(2024).
- Zhang, X., et al. CRISPR/Cas12a combined with recombinase polymerase amplification for rapid and sensitive detection of Vibrio vulnificus in one tube. Acta Biochim Biophys Sin. 55 (2), 322-326 (2023).
- Li, P. R., et al. An RPA-assisted CRISPR/Cas12a assay combining fluorescence and lateral flow strips for the rapid detection of enterotoxigenic Bacillus cereus. J Agric Food Chem. 72 (24), 14000-14010 (2024).
- Sun, Y., et al. One-tube SARS-CoV-2 detection platform based on RT-RPA and CRISPR/Cas12a. J Transl Med. 19 (1), 74(2021).
- Aman, R., et al. iSCAN-V2: a one-pot RT-RPA-CRISPR/Cas12b assay for point-of-care SARS-CoV-2 detection. Front Bioeng Biotechnol. 9, 800104(2022).
- Peng, R., Lu, Z., Liu, M., Hu, F. RT-RPA-assisted CRISPR/Cas12a for rapid and multiplex detection of respiratory infectious viruses based on centrifugal microfluidics. Sens Actuators B Chem. 399, 134838(2024).
- Liu, Y., et al. One-tube RPA-CRISPR Cas12a/Cas13a rapid detection of methicillin-resistant Staphylococcus aureus. Anal Chim Acta. 1278, 341757(2023).
- Nguyen, L. T., Smith, B. M., Jain, P. K. Enhancement of trans-cleavage activity of Cas12a with engineered crRNA enables amplified nucleic acid detection. Biochemistry. 59 (17), 1474-1481 (2020).
- Hao, J., et al. Application of a lyophilized CRISPR/Cas12a and RPA assay for rapid detection of Actinobacillus pleuropneumoniae. Microchem J. 206, 111443(2024).
- Lin, C., et al. A universal all-in-one RPA-Cas12a strategy with de novo autodesigner and its application in on-site ultrasensitive detection of DNA and RNA viruses. Biosens Bioelectron. 239, 115609(2023).
재인쇄 및 허가
정오
Formal Correction: Erratum: On-site DNA Detection of Trypanosomatid Parasites and Nosema ceranae Through Alkaline Lysis Coupled to RPA/CRISPR/Cas12a System
Posted by JoVE Editors on 8/14/2025. Citeable Link.
This corrects the article 10.3791/68874
더 많은 논문 탐색
