이 논문은 곤충병원성(EPN: 곤충기생) 선충이자 신흥 유전 모델인 Steinernema hermaphroditum 에서 CRISPR-Cas9 매개 게놈 공학을 시연합니다. 기술이 설명한 기술은 돌연변이를 생성하는 데 유용하며, 상리공생 및 기생 공생과 관련된 선충 생물학의 유전자 기능을 밝히는 데 도움을 줍니다.
방법 논문
곤충병원성 선충 Steinernema hermaphroditum 의 CRISPR-Cas9 기반 돌연변이 유발과 돌연변이 계통의 유지
이 논문에서
요약
초록
Steinernema와 Heterorhabditis 속의 곤충병원성 선충(EPN)은 각각 Xenorhabdus와 Photorhabdus 공생 박테리아와 상호공생 관계를 유지합니다. 이 선충-박테리아 쌍은 주로 나비목과 딱정벌레목의 유충인 곤충 숙주를 감염시키고 죽여, 상공공생과 기생의 분자 기초를 해부하는 삼분법 체계를 형성합니다. 이 모델을 완전히 활용하기 위한 핵심 단계는 EPN에서 안정적이고 세대 간 유전 도구의 개발입니다. 여기서는 신생 모델 Steinernema hermaphroditum에서 신뢰할 수 있는 CRISPR–Cas9 유전체 편집 플랫폼을 시연하며, 이 종은 생체 내외에서 쉽게 유지되고 생식샘 미세 주입에 매우 적합하다. 특히, 이 자웅동체의 번식은 동형접합 돌연변이 계통의 생성과 유지를 크게 간소화합니다. 우리는 Cas9 리보핵단백질 복합체의 미세주입 기반 전달을 이용한 효율적이고 표적 유전자 교란을 위한 상세 프로토콜을 제공합니다. 개념 증명으로, 보존된 근육 관련 유전자 unc-22를 변형하여 이 시스템에서 표적 돌연변이 유발을 입증하는 특징적인 경련 표현형을 생성했습니다. 이 CRISPR–Cas9 플랫폼은 S. hermaphroditum에서 형질전환유전자 발현과 같은 안정적인 유전적 조작의 문을 열어주며, 농업 및 생태학적으로 중요한 추가 EPN 종으로 확장할 수 있는 틀을 제공합니다.
서론
곤충병원성 선충(EPN)은 박테리아 공생체와 종 특이적 상리공생 관계를 형성하는 곤충 살해 기생충입니다. EPN은 Steinermatidae와 Heterorhabditidae 두 과로 구성되며, 각각 Photorhabdus와 Xenorhabdus spp의 그람 음성 박테리아와 결합합니다 2,3. Steinernema 선충의 자유 생활 감염 유생기(IJ) 동안, Xenorhabdus 박테리아는 선충의 장 주머니인 수용체에 서식하며, 곤충 숙주가 혈구에 침투하면 박테리아가 방출되어 증식하여 패혈증으로 곤충을 죽인다 3,4. 이 상리관계에서 박테리아는 항균 및 살충 화합물을 생성하여 숙주의 면역 반응을 보호하고 선충에 영양 지원을제공합니다. 그 대가로 박테리아는 선충 숙주가 환경 미생물로부터 제공하는 보호를 받으며, 새로운 곤충 먹이로 확산하는 데 도움이 됩니다 6,7.
지난 수십 년간 Steinernema-Xenorhabdus 파트너십은 곤충 숙주 탐색 행동3, 선충 숙주 내 박테리아 정착, 선충과 곤충 숙주 동물 간 전이를 촉진하는 공생 박테리아의 적응 행동 등 기생 및 상호공생 상호작용의 다양한 측면을 연구하는 강력한 실험 시스템으로 확립되었습니다 9. EPN은 토양 지속 가능성에 중요한 종으로, 농업 생산성 증진을 위한 유기농 해충 방제로 사용됩니다10,11.
공생 박테리아인 제노르합두스와 포토랍두스12에서 유전 도구가 빠르게 개발되었음에도 불구하고, EPNs에서 일관된 유전적 도구는 드물었습니다. 생식샘 미세주입은 Heterorhabditis와 Steinernema 선충 모두에서 성공적으로 확립되었습니다13,14. 이전에는 Heterorhabditis bacteriophora에서 생식선 미세주입을 통해 1세대 자손13,15에서 유전자 노크다운을 위해 이중 가닥 RNA를 일관되게 전달하는 데 사용되었습니다. 최근에는 Steinernema에서 CRISPR-Cas9 유전체 편집이 개발되어 생식샘 미세주입을 통해 전달되었으며, 정밀하고 안정적이며 유전 가능한 돌연변이를 초래했습니다14.
Steinernema 속의 한 종인 S. hermaphroditum은 매우 다루기 쉬우며, 신흥 유전적 모델 생물로서 큰 잠재력을 지니고 있음이 입증되었습니다 4,14. 원래 인도네시아16에서 토양에서 분리되어 인도17에서 재격리된 S. hermaphroditum은 일관되게 자웅동체로, 각 세대마다 소수의 수컷이 존재하는데, 이는 고전 모델 선충 C. elegans의 유전적 도구의 적응을 용이하게 하는 두 가지 특징이다. 또한 S. hermaphroditum의 게놈이 염색체로 시퀀싱되어 조립되어 잠재적 Cas9 표적 부위 식별과 프라이머 설계 작업이 간소화되었습니다18.
EPN의 미세주입 시, dsRNA, Cas9 단백질, 가이드 RNA와 같은 적절한 시약이 포함된 주입 혼합물이 석영 모세관에서 뽑힌 바늘을 통해 선충 생식샘에 전달됩니다. 적절한 부피와 압력 주입은 생식샘 팔 전체에 액체의 '흐름'을 가시적으로 만듭니다. 이 선충들은 동일한 세포질을 공유하는 생식세포 핵으로 구성된 두 개의 합생식샘을 가지고 있기 때문에, 이 미세주입 방식은 세포질이 일어나기 전에 여러 생식세포를 편집할 수 있게 하여 생식세포 핵을 발달 중인 난자세포로 분리할 수 있게합니다. 생식샘 미세주입은 여러 비모델 선충 14,21,22,23,24,25에서 유전적 조절을 위한 일관된 기법이지만, 각 선충 종의 적절한 생식샘 구조, 생애 단계, 생리학적 상태에 맞게 주입 기술을 조정하여 성공과 높은 전달 효율성을 보장하는 것이 매우 중요합니다. 돌연변이 라인의 주사 후 회수 기술과 유지 관리는 비용 효율성을 보장하기 위해 모두 중요합니다.
이 연구는 Steinernema hermaphroditum에서 CRISPR-Cas9 게놈 편집 프로토콜을 입증합니다. 생식샘 미세주입은 고압 미세주입에 강하고 유전자 편집에 수용적인 젊은 성인기에서 기술된다. 또한, 유전적이고 안정적인 돌연변이 계통의 유지에 관한 상세한 방법도 제공되며, 이는 냉동 보존과 곤충을 통한 전파를 통해 이루어집니다.
프로토콜
시약과 사용된 장비는 재료표에 나열되어 있습니다.
1. 미세 주입 전 선충 준비
- Xenorhabdus griffiniae와 Comamonas aquaticus가 박테리아를 시딩한 선충 성장 배지(NGM) 배지를 준비합니다.
참고: 미세주입 전에 S. hermaphroditum 선충을 자생 박테리아 Xenorhabdus griffiniae 에서 키워 선충 성장을 극대화하고, 주입된 동물은 Comamonas aquaticus 박테리아에 주입된 동물을 회수하여 주입 후 생존율을 높입니다14.- 줄무늬박테리아 X. griffiniae 를 LB-피루브산 한천 플레이트(효모 추출물 2.5g, 트립톤 5g, 염화나트륨 2.5g, 피루베이트 나트륨 0.5g, 한천 7.5g 500mL 물)에 30°C에서 하룻밤 배양합니다.
- LB 한천 판에 C . aquaticus 를 스트릭 박테리아를 찍고 37°C에서 하룻밤 배양합니다.
- 다크 LB 액체 배지(효모 추출물 5g, 트립톤 10g, 염화나트륨 5g, 물 1L에 5g)를 접종할 박테리아 단일 군락을 선택하세요. 박테리아 배양을 하룻밤(최대 16시간) 동안 통기와 함께 배양합니다 (X. griffiniae 는 30°C, C . aquaticus 는 37°C).
- NGM 한천을 준비하세요: (3 g NaCl, 2.5g 펩토니, 20 g 한천을 975 mL 물에 첨가하고, 콜레스테롤 1 mL, 1 mL 1 M CaCl2, 1 mL 1 M MgSO4, 25 mL 1 M KPO4 (오토클레이빙 후 추가) 10 mL 10 mL x 60 mm x 15 mm 페트리 접시.
- 씨앗 박테리아: 하룻밤 동안 배양한 박테리아 배양액 몇 방울을 각 NGM 한천 플레이트에 넣고, 부드럽게 흔들어 박테리아 방울을 한 덩어리에 퍼뜨립니다.
- 박테리아 씨앗이 담긴 NGM 플레이트를 실온에서 배양하여 한천이 건조되고 박테리아가 성장하도록 합니다.
참고: X. griffiniae의 씨앗 판은 가능한 한 빨리 사용해야 합니다; C. aquaticus 플레이트는 실온에서 1-2주간 보관할 수 있습니다.
- 선충 단계
참고: 주사 전날 밤에는 양성체의 J3 단계를 선택하고, 주사 당일에는 젊은 성체를 선택하세요.- S . hermaphroditum 선충을 X . griffiniae로 씨앗 채운 준비된 NGM 판에 직접 또는 조각으로 옮기세요. 최적의 성장을 위해 25-28 °C 온도에서 배양하세요.
- 미세주입 전날 밤, 자웅동체의 J3 단계를 X . 그리피니아가 씨앗한 NGM 한천에 채취하세요. 그림 1A에서 볼 수 있듯이, J3 단계는 선충의 크기와 생식선 및 외음부의 형태로 추정됩니다.
- 미세 주사 당일에는 젊은 성체 양성체를 선택하세요(그림 1B).
2. 미세 주입을 위한 CRISPR-Cas9 준비
- CRISPR crRNA와 시약 저장 상태 선택
- BlastP, PRJNA982879를 사용하여 참고 문헌인 Steinernema hermaphroditum 게놈에서 표적 유전자 서열을 추출합니다.
- 가능하다면 초기 코딩 엑손 서열, 가능하다면 첫 번째 엑손을 선택하고, 기본 설정26 을 사용해 CRISPRScan에 해당 서열을 입력하여 가능한 CRISPR RNA(crRNA) 목록을 생성합니다.
- 상위 crRNA를 S. hermaphroditum 게놈과 대조하여 고유한 crRNA만 선택되도록 합니다.
참고: 선택 사항: crRNA 설계 전에 PCR 증폭과 생거 시퀀싱을 통해 게놈의 표적 영역 서열을 확인하여 crRNA의 효율적인 결합을 보장할 수 있습니다. - CRISPR RNA(crRNA)와 범용 트랜스-활성화 CRISPR RNA(tracrRNA)는 각각 100 μM 용량의 -80 °C 듀플렉스 버퍼에 보관합니다.
- Cas9 단백질은 10 mg/mL, -20 °C 또는 -80 °C에서 저장하세요. 4°C에서 1M KCl을 저장하세요.
- 주사용 2% 아가로스 패드 제작 (Berkowitz 외 27번 참고)
- 전자레인지로 2% 아가로스를 물에 녹여 녹입니다.
- 50 μL 녹인 아가로스를 커버 유리(48 x 60 mm no.1)에 옮깁니다. 즉시 아가로스 방울을 다른 뚜껑 유리잔으로 덮으세요.
- 아가로스를 실온에서 20분간 건조시킵니다. 상단 덮개 유리를 제거하세요. 아가로스 패드 앞면에 라벨을 붙이세요.
참고: 선택 사항: 아가로스 패드를 37°C에서 하룻밤 구워 더 건조하세요. - 2% 아가로스 생리를 실온에서 몇 달에서 몇 년간 보관하세요.
- 바늘 준비
- 레이저 필라멘트 풀러에서 다음 매개변수를 사용하여 석영 바늘을 제조합니다. 이 연구에서 사용한 바늘 풀러의 권장 프로그램은 다음과 같습니다: 열: 700, 필라멘트: 4, 속도: 60, 지연: 145, 당김: 175.
- 주입 직전이나 미리 석영 바늘(외경 1.0 mm, 내경 0.7 mm)을 빼서 피펫 보관함에 보관하세요.
참고: 또는 붕규산 바늘(외경: 1.2mm, 내경: 0.68mm)을 주사하는 방법도 있습니다. 바늘 크기가 다르면 바늘 홀더 크기가 다르다는 점을 유의하세요.
3. CRISPR-Cas9 미세주입 및 미세주입 후 선충 회복
- CRISPR-Cas9 미세 주입 혼합물을 준비합니다(Wang 등.28에서 개조)
- 선택한 crRNA와 범용 tracrRNA를 1:1 비율로 혼합하여 신선한 가이드 RNA 이중성을 PCR 튜브 내에서 준비합니다:
crRNA #1 (100 μM) - 1.5 μL
crRNA #2 (100 μM) - 1.5 μL
tracrRNA (100 μM) - 3.0 μL
참고: co-CRISPR를 사용할 경우 crRNA #1은 unc-22 마커 유전자를 표적으로 하며, crRNA #2는 두 번째 관심 유전자를 표적으로 하는 다른 서열로 대체할 수 있습니다. - PCR 튜브를 94°C에서 열사이클러에 2분간 배양한 후 실온으로 식힙니다.
- 주입 혼합물을 다음 재료로 조립한 후 실온에서 5분간 배양하세요:
Cas9 (10 mg/mL) - 2 μL
1M KCl - 0.58 μL
gRNA 이중성 (단계 3.1.1) - 2.7 μL - PCR 튜브를 세 번 튕기며 혼합한 후, 미니 원심분리기에서 10-15초 정도 짧게 돌려 튜브 내용물을 수집합니다. 최종 믹스 후에는 최대 1분까지 더 오래 돌립니다.
- 선택한 crRNA와 범용 tracrRNA를 1:1 비율로 혼합하여 신선한 가이드 RNA 이중성을 PCR 튜브 내에서 준비합니다:
- 바늘을 장전하고 부러뜨려
- 마이크로로더 팁을 사용해 1-2 μL의 주입 혼합물을 바늘에 주입합니다.
- 바늘을 피펫(바늘) 홀더에 조립한 후, 할로카본 오일로 덮인 양면 테이프 위를 바늘로 끌면서 팁을 부수세요. 마이크로인젝터의 CLEAN 기능을 사용해 바늘의 개방을 테스트하세요.
- 젊은 성충 선충의 융합 생식샘에 미세주입
- 2% 아가로스 패드에 작은 할로카본 오일 방울을 옮깁니다.
- 해부 입체경 아래에서 얇은(부드럽은) 백금 와이어로 젊은 성체 자웅동체 선충을 집어 M9 버퍼(리터당 3g KH2PO4, 11.3g Na2HPO4, 5 g NaCl, 오토클레이핑 후 1 ml 1 M MgSO4 첨가)에서 세척하여 박테리아를 제거합니다( 그림 1의 젊은 성충 선충 참조).
- 세척된 선충을 아가로스 패드에 옮기고 할로카본 오일 방울에 넣습니다. 부드러운 백금 와이어로 선충을 부드럽게 빗질해 동물이 움직이지 못할 때까지 만드세요.
- 아가로스 패드를 조심스럽게 마이크로인젝션 단계에 올려놓으세요. 생식선 융합체의 방향은 바늘을 향해 약 45° 각도로 향해야 합니다. 처음에는 5배 배율로 시작해서, 주사할 때 20배와 40배로 바꿔가세요.
- 바늘이 융합체를 관통하도록 한 후, 마이크로인젝터의 CLEAN 기능을 사용해 약 99psi에서 주입 혼합물을 주입하여 주입된 생식샘 액체가 명확하게 흐르도록 하여 시약이 생식세포에 도달하도록 합니다.
- 두 번째 생식샘 팔이 닿을 수 있다면, 두 번째 팔에 주사할 바늘을 위치시키기 위해 스테이지를 이동시키세요.
- 주사 후 선충 회복
- 주입 직후, 주입된 동물을 1-2 μL M9 완충액에 아가로스 패드에 재현탁합니다.
- 가느다란 백금 와이어를 사용해 주입된 선충을 아가로스 패드에서 떼어내고 M9 버퍼로 오일을 씻어내세요.
- NGM 플레이트에서 C . aquatica 박테리아 잔디를 사용해 선충을 회수하라(NGM 플레이트 준비: 1.1단계 참조). 이는 주입 후 선충의 생존율을 높인다14. 하룻밤 25°C에서 배양하세요.
- 다음 날, 각 주입된 선충(P0)을 X. griffiniae가 시종된 개별 NGM 플레이트에 분리합니다. P0 동물이 하룻밤 사이에 F1 자손을 낳게 하여 표현형 및 유전자형 분석(4단계 참조)을 위해 알을 낳거나 봉지 보관을 하도록 합니다.
4. CRISPR-Cas9 매개 녹아웃 확인을 위한 스크리닝
- unc-22를 공동 CRISPR 표지자로 사용할 때 F1의 경련 표현형 검사를 니코틴 기반(CAUTION) 선별검사
- 주사된 P0 동물의 F1 자손을 2% 니코틴 용액 한 곳에 옮깁니다.
- 니코틴 부위에서 경련하는 개체를 골라내어 즉시 X. 그리피니아에를 시종한 NGM 한천 위에 재현하세요. 각 경련하는 F1을 개별 플레이트에 분리하여 F2 동물을 생산하여 유전자형 분석(4.2 단계 참조)을 수행하세요.
- 유전자형 분석
- 각 F1 트위칭 계통에서 F2 또는 F3 자손 8마리를 골라 유전자형 분석하세요. 이 동물들은 +/mut 이형접합과 mut/mut 동형접합 동물을 모두 포함하는 것으로 보입니다.
- 20 μL 단백질효소 K(10 mg/mL)를 180 μL 벌레 용해 완충제(50 mM KCl, 10 mM Tris pH 8.0, 2.5 mM MgCl2, 0.45% NP-40, 0.45% 트윈 20, 0.01% 젤라틴)에 첨가하여 신선한 DNA 추출 완충액을 준비합니다.
- PCR 튜브 내 DNA 추출 완충액 10 μL에 선충을 첨가합니다. 65°C에서 10분간 배양한 뒤, 95°C에서 15분간 배양하여 유전체 DNA를 추출합니다.
- 제조사의 지침에 따라 4.2.2단계의 1-2 μL 용해액을 사용해 Cas9 표적 영역을 PCR 증폭하여 선충의 유전자형을 측정합니다. 큰 결실이 발생할 경우를 대비해 Cas9 절단 부위와 프라이머 결합 부위 사이에 가능하다면 최소 300 bp 이상의 충분한 공간을 확보하는 것이 중요합니다.
참고: 아가로스 겔 전기영동은 시퀀싱 전에 증폭 성공을 확인하는 데 사용할 수 있습니다. - 제조사의 지침에 따라 PCR 제품을 정화하여 정확한 생거 시퀀싱 미량 분석을 보장합니다.
- 4.2.4단계에서 생성된 PCR 증폭자를 Sanger 시퀀싱으로 시퀀싱하고, ICE 프로그램29를 사용해 크로마토그램을 분석합니다.
- 4.2.6단계에서 돌연변이 대립유전자가 확인되면, 원래의 F1 트위칭 플레이트로 돌아가 최소 8개의 양성체를 개별 플레이트에 분리합니다. 각 선충이 자손을 낳도록 한 후, 자손을 대량 유전자형으로 분석해 동형접합을 확인하세요. 동형접합 계통은 5단계에서 설명한 대로 실험실에서 유지할 수 있습니다.
5. CRISPR 라인 유지보수
참고: 라인 유지보수에는 세 가지 주요 방법이 있습니다. 여기에는 트레할로스-DMSO 기반 냉동 보존(단계 5.1), 생체 내 밀랍벌레 통과(단계 5.2), NGM 플레이트에서의 시험관 유지 관리(단계 5.3)가 포함됩니다.
- 트레할로스-DMSO 야생형 및 돌연변이 계통의 냉동 보존
참고: 트레할로스-DMSO 냉동 보존법4를 사용하면 S. hermaphroditum 은 -80 °C에서 장기간 안정적으로 보관할 수 있으며 NGM 배지에서 회수할 수 있습니다. 선충은 2mL 냉동 바이알에 냉동 보관됩니다. 최적의 냉동은 폴리스티렌 폼 용기를 이용한 점진적인 냉각을 통해 달성됩니다.- X. 그리피니에와 씨앗을 뿌린 NGM 위에 S. hermaphroditum을 키우세요(1.1단계 참조). 개체군의 대다수가 J1이 되거나 자웅동체를 봉합할 때까지 키웁니다.
참고: 감염성 유년기(IJ)는 이 방법으로 냉동이 잘 되지 않으니 피해야 합니다. - NGM 한천 플레이트에서 선충을 M9 완충액에 씻어내고, 5mL 지점까지 15mL 원뿔형 튜브에 채취합니다. 원심분리로 농축하세요(1372 x g , 1-2:30분이면 충분).
- 상원액을 제거하고 5.1.2단계에서 제공된 매개변수에 따라 원심분리하여 5mL 실온 Trehalose-DMSO 냉동 완충액에 한 번 세척합니다.
- 벌레를 5mL 실온 Trehalose-DMSO 냉동 완충제에 재현탁합니다. 관을 옆으로 눕힌 채 실온에서 30분간 부화하세요. 이로 인해 생존율이 높아집니다.
- 튜브당 1mL를 4개의 극저온 바이알에 투여하세요.
- 바이알을 폴리스티렌 폼 상자에 담아 -80°C 냉동고에 넣으세요.
- 일주일 후, 바이알 중 하나를 해동해 테스트합니다.
- 나머지 바이알은 -80°C 냉동실에 옮겨 영구 보관하세요.
- 냉동 개체군에서 S . hermaphroditum 의 시험 해동 또는 회복
- 냉동실에서 바이알 하나를 꺼내 실온에서 완전히 녹이세요.
- 액체 내용을 새 NGM 접시에 부으세요. 냉동 육수에는 보통 충분한 공생 박테리아가 포함되어 있으므로 공생 박테리아의 첨가는 필수는 아닙니다. 벌레는 몇 분에서 몇 시간 내에 회복을 시작할 것입니다.
- 선충의 움직임과 번식을 관찰하세요. 하루 이틀 후에는 여러 선충을 X. griffiniae가 씨앗 채운 새로운 NGM 판으로 옮깁니다.
- X. 그리피니에와 씨앗을 뿌린 NGM 위에 S. hermaphroditum을 키우세요(1.1단계 참조). 개체군의 대다수가 J1이 되거나 자웅동체를 봉합할 때까지 키웁니다.
- Galleria mellonella를 통한 생체 내 유지
참고: 생체 내 성장을 위해서는 S. hermaphroditum 돌연변이 계통을 Galleria mellonella (왁스웜) 5령 유충을 통해 전파시키십시오. 이 방법은 특히 냉동 보존 후 생존이 불가능한 계통에 유용합니다. 곤충 및 기타 배지를 통한 충충병원성 선충의 자연 증식 프로토콜은 (McMullen et al.30)에서 찾을 수 있습니다. 간단히 말하면:- 선충이 굶어 NGM 플레이트 위의 IJ가 되도록 내버려 두세요.
- M9 버퍼를 사용해 NGM 플레이트에서 IJ를 제거하세요.
- 화이트 트랩을 이용해 IJ를 Galleria 곤충에 감염시키기 위해 옮깁니다.
- NGM 플레이트의 시험관 유지 관리를 위해 다음 단계를 따르세요:
- 약 100 μL 신선한 액체 배양물을 담은 S. hermaphroditum 공생종 X. griffiniae 씨앗 NGM 플레이트.
- 선충을 배지판에 옮기기 전에 박테리아 반점이 완전히 마를 때까지 기다려 주세요.
- 플레이트를 25°C에 보관하고, 선충을 신선충 플레이트에 한 달에 한 번 정도 옮깁니다.
결과
두 개의 CRISPR RNA가 설계되었으며(Pam 부위 번호 - Pam 3 및 Pam 5로 식별됨), 이전에 발표된 Pam부위 14에서 unc-22의 S. hermaphroditum 상동체를 표적으로 삼았습니다(그림 2A). 각 crRNA는 tracrRNA와 복합하여 단일 가이드 RNA(sgRNA)를 형성하고, 3.1단계에서 설명한 대로 Cas9에 통합되어 리보핵단백질을 형성했습니다. 이 프로토콜에서는 두 개의 crRNA가 동일한 유전자를 표적으로 하도록 설계되었으며; 그러나 C. elegans31에서 개발된 co-CRISPR 방법을 사용하면 crRNA #2를 관심 유전자인 crRNA로 대체할 수 있습니다. 또는 unc-22 crRNA를 관심 유전자를 표적으로 하는 두 개에 추가하여 총 crRNA와 tracrRNA 간의 1:1 비율을 유지할 수 있습니다.
미세 주입 전날, 잘 먹인 초기 J3 선충(생식샘 팔이 보이는 선충)을 공생 박테리아 Xenorhabdus griffiniae 가 씨앗을 뿌린 신선한 판에 채집하여 상온에서 하룻밤 동안 젊은 성충으로 성장하도록 했습니다(그림 1B). 주사 당일, 수정된 배아가 거의 없거나 전혀 없는 젊은 성인(그림 1B)이 새로운 페트리 접시에 분리되어 주사를 받았다. 관찰에 따르면, 어린 선충들은 상대적으로 더 잘 침투할 수 있는 큐티클을 가지고 있었다. 하지만 주사 후 회복 가능성은 낮았습니다. 바늘은 만들어졌고(2.3단계 참조), 주입 혼합물을 넣은 후 3.2단계에서 설명한 대로 부숴 열었습니다. 선충은 M9 버퍼로 세척한 후 아가로스 패드 위의 할로카본유 방울에 고정시켰습니다(단계 2.2). 주입 부위(그림 1C)에서는 마이크로인젝터의 외부 압력을 이용해 생식선 융합체에 눈에 띄는 액체 흐름을 만들어 생식세포 핵이 주입 혼합물에 잠기도록 했습니다(단계 3.3). 가능한 경우, 두 생식샘 모두 주입하여 편집된 F1 자손을 얻을 확률을 높였다.
주입된 선충(P0)은 M9 버퍼로 세척하여 빠르게 회수한 후 Comamonas aquaticus 박테리아가 시딩된 NGM 플레이트에서 하룻밤 배양하여 하룻밤 동안 회복했습니다(단계 3.4). 주입된 P0 동물의 약 40%-90%가 주사 직후 회복되었고, 주입된 P0 선충의 20%-90%가 C. aquatica에서 하룻밤 동안 생존했습니다. (표 1) 생존한 개별 P0 동물들은 X. 그리피니아에를 씨앗으로 채운 NGM 페트리 접시에 분리되었으며, 전송률은 20%-90%였습니다. unc-22 결실형 표현형에 대한 니코틴 선별은 F1, F2, F3 동물에서 유전성을 확인하기 위해 실시되었습니다(단계 4.1). 2% 니코틴에 노출되면 unc-22 유전자 결실이 있는 S. hermaphroditum 선충은 경련을 일으키며, 야생형 선충은 마비되어 결실이 추정되는 동물에 대한 선별 및 선별이 가능하다28. 이 실험에서 주입된 P0에서 분리된 F1 선충의 최대 64%가 일관되게 경련하는 F2 자손을 생산합니다(표 1). 공동 CRISPR 주사 스크리닝을 용이하게 하기 위해, 개별 경련 선충을 영상 및 추적 시스템을 통해 모니터링 및 정량화할 수 있으며, 그림 2B에 한 예시가 나와 있습니다.
경련 자손의 유전자형을 확인하기 위해 F3 선충에서 유전체 DNA를 추출하여 UNC-22 유전자좌의 유전자형을 분석하였습니다(단계 4.2). 표적 부위 주변의 유전체 영역을 PCR 증폭하여 여러 희미한 띠가 관찰되었으며, 이는 작은 및 큰 삽입 및 결실(인델)을 나타내며(그림 2C,D), 일부는 시퀀싱 분석으로 확인되었습니다(그림 2E). 이 데이터는 CRISPR-Cas9가 유전체 표적 부위에 이중 가닥 절단을 생성했으며, 이를 비상동 말단 결합(NHEJ)으로 복구했음을 시사합니다. 뉴클레오타이드 수준에서 게놈의 특정 변형을 확인하기 위해, 표적 부위의 PCR 증폭 산물을 생거 시퀀싱으로 분석하였다: 경련 및 야생형 선충의 크로마토그램 정렬을 통해 표적 부위의 삽입 또는 결실을 식별할 수 있었다(그림 2E). 표현형 및 유전자형 분석으로 확인된 CRISPR 돌연변이 계통은 곤충 Galleria mellonella(왁스웜)를 통과시켜 실험실에서 유지하거나 냉동 보존(5단계)으로 보존할 수 있습니다. unc-22를 공동 CRISPR 마커로 사용할 경우, 표적 유전자에서 돌연변이를 가진 F2와 F3 자손을 분리하는 전략의 제안된 그림을 그림 3에서 확인할 수 있습니다.
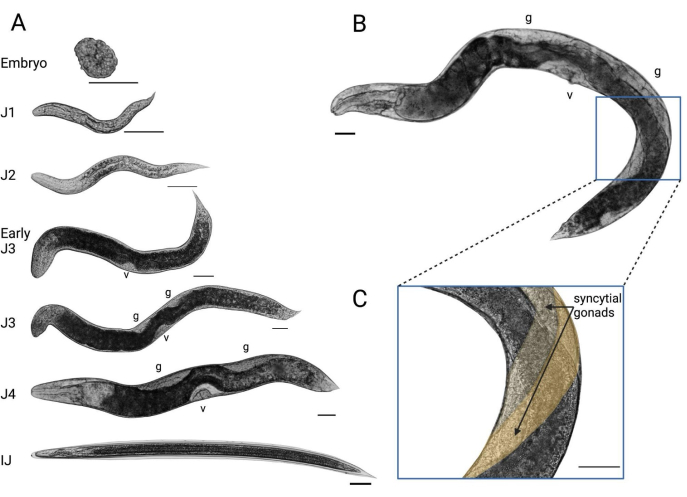
그림 1: 실험실 환경에서의 S. hermaphroditum 의 발달. (A) NGM 한천에서 자란 자웅동체의 추정 발달 단계, 공생 박테리아 X. griffiniae를 먹고 있음. 스케일 바 = 50 μM. v = 외음부; g = 생식선. (B) 생식선 미세주사를 위한 적절한 발달 단계에 있는 젊은 성체 자웅동체. 파란 상자: 생식선 주사 위치. (C) 미세 주입을 목표로 삼은 양성체의 융합 생식샘. 두 생식선은 시각화를 돕기 위해 서로 다른 노란색 음영으로 칠해져 있습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
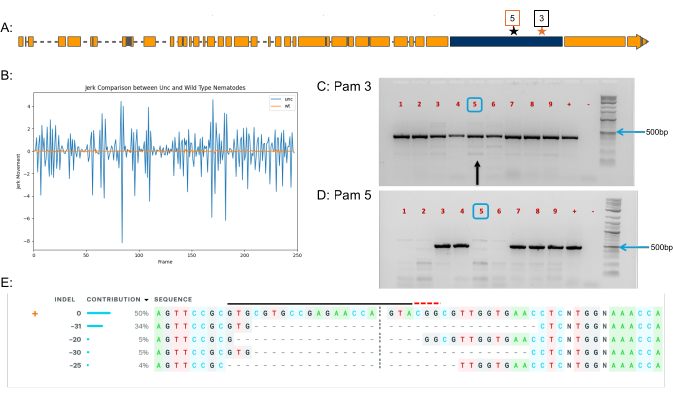
그림 2: S. hermaphroditum에서 CRISPR-Cas9 게놈 편집의 대표 결과. (A) S. hermaphroditum unc-22 상동체의 유전자 구조. 파란 박스: 표적 엑손. 블랙 스타: 팸 3 목표 지점. 붉은 별: 팸 5 목표 지점. (B) 2% 니코틴 투여 시 경련 동작을 기반으로 한 대표성 경련 자손의 표현형 분석. 블루: unc-22 돌연변이 계통의 경련하는 성체. 오렌지: 2% 니코틴에 마비된 야생형 성체. (C, D) 두 마리의 주입된 P0 동물에서 독립적으로 F3 경련 계통 9개(1-9)의 유전자형 분석. 각 샘플에는 동일한 F1 계통에서 나온 네 개의 F3 자손이 포함되어 있습니다. 프라이머는 Pam 3(C)와 Pam 5(D) 주변의 유전체 영역을 증폭하는 데 사용되었습니다. '+': 야생형 제어; "-": DNA 로딩이 없는 음성 대조군. 파란색 상자: 아가로스 겔 위에 확인된 이형접합 샘플 암플리콘의 예시. 검은 화살표는 (C)에, 앰플리콘은 (E)에 분석됨. (E) Pam 3에서 UNC-22 돌연변이체에 대한 ICE 분석. (C)(검은 화살표)에서 추출한 PCR 샘플 5를 시퀀싱 및 ICE로 분석한 결과, 대립유전자의 50%가 야생형이었고, 유전체 DNA에서는 20 bp에서 31 bp 사이의 다양한 결실 돌연변이가 검출되었습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
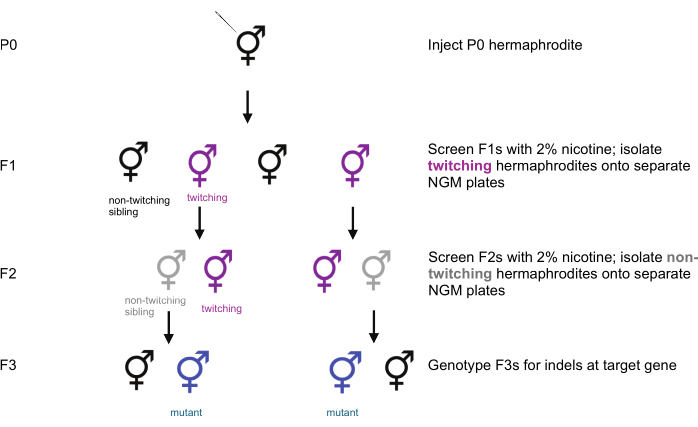
그림 3: 표적 유전자에서 돌연변이를 분리하는 공동 CRISPR 스크리닝 워크플로우. unc-22 를 공동 CRISPR 마커로 사용할 때, F1 선충은 2% 니코틴으로 선별하고, 경련하는 F1은 공생 박테리아 X. griffiniae가 씨앗된 별도의 NGM 플레이트에 분리됩니다. 그 후 경련하는 F1의 F2 자손을 선별하고, 경련하지 않는 F2는 개별 판에 분리됩니다. F2가 자손을 생산하도록 허용한 후, F3는 표적 유전자가 제거되었는지 여부를 판단하기 위해 유전자형 분석이 이루어집니다. 경련을 일으키는 선충의 비경련 형제도 관심 유전자에 인델을 가질 수 있으므로 유전자형 분석에 포함되어야 합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
| 복제 | 아니요. 주입된 P0 | 아니요. 주사를 견뎌낸 P0* | 아니요. 밤새 살아남은 P0 | 아니요. P0는 X. griffiniae 패치로 전이되었다 | 아니요. P0와 F2 경련 | P0를 주입하여 경련 F2를 유발했습니다 |
| 1 | 8 | 4 | 4 | 3 | 0 | 0 |
| 2 | 9 | 4 | 4 | 4 | 3 | 33.33 |
| 3 | 11 | 10 | 10 | 10 | 7 | 63.64 |
| 4 | 9 | 4 | 2 | 2 | 2 | 22.22 |
표 1: 미세 주입을 통한 S. hermaphroditum unc-22 상동체 변형의 대표 결과 및 후손 경련에 따른 성공률. *생존율은 미세주사 약 30분 후 인두펌프의 움직임으로 결정되었습니다.
토론
비전통적 유전 모델 동물 시스템은 기생 숙주나 생물의 고유 미생물군 존재 하에서 진핵생물 유전자 기능이 자연스럽게 발생하는 생태적·생리학적 맥락에서 연구할 수 있는 귀중한 기회를 제공합니다. 곤충병원성 선충(EPN)에서는 유전적 조작이 RNAi 기반 접근법의 일부 사례에 의존해 왔습니다13,32. RNAi는 일부 종에서 기능적 유전학 연구를 가능하게 하지만, dsRNA의 일시적 특성에 의해 제한되며, 유전자 침묵이 신뢰성 있게 유전되지 않을 수 있습니다. 이러한 제약은 안정적이고 세대를 초월한 유전적 도구의 필요성을 강조한다 33,34. 본 연구는 Rhabditida 목 내 두 EPN 가족 중 하나인 Steinernematids에서 최초로 정밀한 게놈 편집 프로토콜을 설명하며, 이는 Cao(2023)14에서 입증되었습니다.
이 프로토콜을 이용한 CRISPR–Cas9 돌연변이 유발의 성공은 선충을 신중하게 다루는 데 달려 있습니다. 영양이 부족한 사람들은 주사 바늘로 삽입하기 어려운 축복된 생식샘을 보이기도 합니다. 주입 부피는 바늘 개구부를 약간 확대하거나 주입 압력을 미세 조정하여 생식선이 주사 혼합액과 적절히 플러시되도록 해야 합니다. 주입된 동물을 아가로스 패드에서 C. aquatica 회수판으로 빠르게 옮기는 것은 주사 후 생존에 필수적이며, 경험이 쌓일수록 실행 속도가 크게 향상됩니다. 주사 후에는 상처 입은 선 충이 공 생 박테리아에 노출되지 않도록 하는 것이 중요한데, X. griffiniae 의 회복률은14 낮기 때문입니다.
바늘 막힘은 마이크로인젝션 중에 흔히 발생하는 기술적 문제입니다. 막힘은 때때로 바늘을 할로카본 오일에 잠긴 양면 테이프 위를 부드럽게 끌면 제거할 수 있습니다. 미세한 주입 전에 M9에서 선충을 충분히 헹구면 공생 박테리아가 침투하여 바늘을 막는 것도 방지할 수 있습니다. 막힘이 계속되면 바늘 끝 입구를 조심스럽게 확장하면 흐름을 회복할 수 있지만, 과도하게 확대하면 주사 혼합물이 통제 불능으로 배출될 수 있습니다. 붕규산14에서 석영 모세관으로 바늘 제작을 위해 전환하면서 주입 성능이 현저히 향상되었습니다. 석영 바늘은 더 날카로운 끝을 만들어 약간 더 두꺼운 큐티클을 가진 성인에게 성공적으로 주사할 수 있게 하여 생존율을 높입니다.
이 프로토콜의 현재 한계는 CRISPR 기반 형질전환 삽입이 여전히 어렵고 추가 최적화가 필요하다는 점입니다. Cas9에 의해 유도된 이중 가닥 절단의 상동 지향 수리(HDR)는 짧은 ssDNA 공여자를 사용하여 S. hermaphroditum에서 달성하기 어려웠습니다14,35. 정밀한 유전자 전변형 삽입은 모든 유전 모델에서 핵심 능력으로, 단일 아미노산 치환이나 전사 리포터와 같은 고충실도 변형을 가능하게 합니다36. 따라서 신뢰할 수 있는 CRISPR-Cas9 매개 노크인 프로토콜 개발은 EPNs의 유전학 도구 키트를 크게 발전시키고, 기생충학, 미생물 공생 등 광범위한 연구 공동체에 혜택을 줄 것입니다.
공개 사항
저자들은 이해 상충이 없다고 선언한다.
감사의 글
공초점 현미경을 사용해 준 마가렛 맥폴-응아이와 에드워드 루비에게 감사드립니다. 공초점 현미경 교육을 받은 알렉시스(코디) 하가돈과 그리샤 첸, 그리고 경련 영상 촬영과 분석을 도와준 칼리 R. 마이어스에게 감사드립니다. 또한 마이크로인젝션 시스템 구매를 위한 자금 배정에 대해 스테파니 햄튼에게 감사드립니다. 카네기 과학 연구소가 이 연구를 지원했습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 아가르 (80-100 메쉬) | 피셔 사이언티브 | BP26411 | LB 피루베이트 플레이트에도 사용됨 |
| 아가로스 | 피셔 사이언티브 | 16500500 | 유전자형 분석에도 사용됩니다 |
| Alt-R CRISPR-Cas9 tracrRNA | IDT | 1072532 | |
| Alt-R S.p. Cas9 뉴클레이즈 V3 | IDT | 1081058 | |
| 붕규산 바늘 | 월드 프리시전 인스트루먼트 | 1B120F-4 | |
| 염화칼슘(CaCl2) | 시그마 올드리치 | C4901 | |
| 콜레스테롤 | VWR | 433 | 에탄올에 5 mg/mL |
| Comamonas aquatica (DA1877) | |||
| 아가로스 패드용 커버 유리 | 뇌 연구소 | #4860-1D | 48 x 60 mm No1 두께 |
| CRISPRScan | https://www.crisprscan.org/ | ||
| 디메틸 설폭사이드 (DMSO) | 시그마-올드리치 | 472301 | 0.5 M |
| DNA 클린 및 농합기-5 | 자이모 리서치 | D4014 | |
| 펨토젯 4x 마이크로인젝터, 그립 헤드셋 4사이즈 0 바늘홀더 | 에펜도르프/칼리브르 | 5253000017 | |
| Galleria melonella 5령 유충 | 그럽코 | https://www.grubco.com/index.cfm | |
| 젤 이미징 시스템 | Azure400 | AZI400-01 | |
| 젤 로딩 염료 | 써모피셔 사이언티브 | B72 | |
| 젤라틴 (2%) | 시그마 올드리치 | G1393 | |
| 젤레드 | 바이오티움 | #41003 | |
| 유전형 분석 프라이머: DNA 올리고, 25 nmol | IDT | 해당 없음 | |
| 깁코 박토 펩톤 | 피셔 사이언티브 | DF0118-17-0 | |
| 깁코 박토 트립톤 | 피셔 사이언티브 | DF0123-17-3 | 또한 다크 LB, LB 피루베이트 플레이트 등에도 사용됩니다; |
| 깁코 박토 효모 추출물 | 피셔 사이언티브 | DF0127-17-9 | 또한 다크 LB, LB 피루베이트 플레이트 등에도 사용됩니다; |
| 그립 헤드 세트 4 사이즈 1 바늘홀더 | 구경 | EPE-5196083008 | (붕규산염 바늘 1B120F-4와 함께 사용) |
| 할로카본 오일 700 | 시그마 올드리치 | H8898 | |
| 일상 관리용 하드 플래티넘 와이어웜 픽 | 트라이테크 리서치 | PT-9901 | |
| CRISPR 편집 추론 (ICE) | 신테고 | 해당 없음 | 인델을 식별하기 위해 생거 서열을 분석하는 데 사용되는 소프트웨어 |
| KCl | 시그마 올드리치 | P9541 | |
| 레이저 니들 풀러 P-2000 | 서터 | P-2000G | |
| 염화마그네슘 (MgCl2) | 시그마 올드리치 | M8266 | |
| 황산마그네슘 (MgSO4) | 시그마 올드리치 | M7506 | M9 버퍼용으로, NGM에서도 사용됩니다 |
| 마이크로로더 팁 2x96ST | 구경 | 930001007 | |
| 자이스 액시오 옵저버와 액시오버트 200용 마이크로매니퓰레이터 장착 어댑터 | 트라이테크 리서치 | 뉴질랜드-19-2 | |
| 현미경 | 트라이텍 | SMT1 | |
| 니코틴 | 시그마 올드리치 | N3876 | |
| NP-40 | 써모피셔 사이언티브 | 85124 | |
| 뉴클레아제 자유 듀플렉스 버퍼 | IDT | 11-01-03-01 | |
| 원택 마스터믹스 | NEB | M0486 | |
| 피펫 보관함 | 서터 악기 | BX10 | |
| 염화칼륨(KCl) | 시그마 올드리치 | 793590 | |
| 인산칼륨, 이염성 (K2HPO4) | 시그마 올드리치 | P3786 | KOH는 NGM을 의미합니다 |
| 인산칼륨, 단염성 (KH2PO4) | 시그마 올드리치 | P5655 | M9 버퍼용으로, NGM에서도 사용됩니다 |
| 프로테인나제 K | 시그마 올드리치 | P6556 | |
| 석영 바늘 | 서터 악기 | QF100-70-10 | |
| <>S. hermaphroditium 게놈 | NCBI | https://www.ncbi.nlm.nih.gov/datasets/genome/GCA_030435675.1/ | |
| sh-unc-22 Alt-R CRISPR-Cas9 crRNA | IDT | 해당 없음 | |
| 염화나트륨(NaCl) | VWR | SS0430 | M9, 다크 LB, LB 피루베이트 플레이트에도 사용됩니다 |
| 인산나트륨, 이염성 (Na2HPO4.7H20) | 시그마 올드리치 | S9390 | M9 버퍼에 대해 |
| 피루베이트나트륨 | 시그마 올드리치 | P2256 | 또한 LB 피루베이트 플레이트에도 사용되며; |
| 마이크로 주입용 부드러운 백금 와이어웜 픽 | 슈어퓨어 케메탈 | 6824 | 백금 90%, 이리듐 10% 합금 와이어, 직경 0.002인치 x 길이 5피트 |
| 표준 바늘 홀더 | 트라이테크 리서치 | HI-7 | |
| <엠>스테인네마 헤르마프로디툼 | |||
| 입체 현미경 | 라이카 | 인베타 3 | |
| 트레할로스 | 콜-파머 | EW-88195-99 | 0.08 M |
| 트리스 | 피셔 사이언티브 | AM9855G | pH 8.0 |
| 트윈 20세 | 시그마 올드리치 | P1379 | |
| 수직 마이크로매니퓰레이터 장착 어댑터 | 트라이테크 리서치 | NR2 | |
| Xenorhabdus griffiniae (HGB2511) |
참고문헌
- Stock, S., Blair, H. G. Entomopathogenic nematodes and their bacterial symbionts: The inside out of a mutualistic association. Symbiosis. 46, 65-75 (2008).
- Murfin, K. E., et al. Nematode-bacterium symbioses--cooperation and conflict revealed in the "omics" age. Biological Bull. 223 (1), 85-102 (2012).
- Dillman, A. R., et al. An entomopathogenic nematode by any other name. PLoS Pathog. 8 (3), e1002527(2012).
- Cao, M., Schwartz, H. T., Tan, C. -H., Sternberg, P. W. The entomopathogenic nematode Steinernema hermaphroditum is a self-fertilizing hermaphrodite and a genetically tractable system for the study of parasitic and mutualistic symbiosis. Genetics. 220 (1), iyab170(2022).
- Sergeant, M., et al. Identification, typing, and insecticidal activity of Xenorhabdus isolates from entomopathogenic nematodes in United Kingdom soil and characterization of the xpt toxin loci. Appl Environ Microbiol. 72 (9), 5895-5907 (2006).
- Walsh, K. T., Webster, J. M. Interaction of microbial populations in Steinernema (Steinernematidae, Nematoda) infected Galleria mellonella larvae. J Invertebr Pathol. 83 (2), 118-126 (2003).
- Herbert, E. E., Goodrich-Blair, H. Friend and foe: The two faces of Xenorhabdus nematophila. Nat Rev Microbiol. 5 (8), 634-646 (2007).
- Flores-Lara, Y., Renneckar, D., Forst, S., Goodrich-Blair, H., Stock, P. Influence of nematode age and culture conditions on morphological and physiological parameters in the bacterial vesicle of Steinernema carpocapsae (Nematoda: Steinernematidae). J Invertebr Pathol. 95 (2), 110-118 (2007).
- Cao, M., Goodrich-Blair, H. Ready or Not: Microbial adaptive responses in dynamic symbiosis environments. J Bacteriol. 199 (15), e00883-e00916 (2017).
- Lacey, L. A., et al. Insect pathogens as biological control agents: Back to the future. J Invertebr Pathol. 132 (C), 1-41 (2015).
- Campos-Herrera, R., et al. Intraspecific virulence of entomopathogenic nematodes against the pests Frankliniella occidentalis (Thysanoptera: Thripidae) and Tuta absoluta (Lepidoptera: Gelechiidae). J Nematol. 53 (1), 1-14 (2021).
- Rill, A., Zhao, L., Bode, H. B. Genetic toolbox for Photorhabdus and Xenorhabdus: pSEVA based heterologous expression systems and CRISPR/Cpf1 based genome editing for rapid natural product profiling. Microb Cell Fact. 23 (1), 98(2024).
- Ratnappan, R., et al. RNAi-mediated gene knockdown by microinjection in the model entomopathogenic nematode Heterorhabditis bacteriophora. Parasit Vectors. 9 (1), 160(2016).
- Cao, M. CRISPR-Cas9 genome editing in Steinernema entomopathogenic nematodes. bioRxiv. , (2023).
- Heryanto, C., Ratnappan, R., O'Halloran, D. M., Hawdon, J. M., Eleftherianos, I. Culturing and genetically manipulating entomopathogenic nematodes. J Vis Exp. (181), e63885(2022).
- Stock, S. P., Griffin, C. T., Chaerani, R. Morphological and molecular characterisation of Steinernema hermaphroditum n. sp. (Nematoda: Steinernematidae), an entomopathogenic nematode from Indonesia, and its phylogenetic relationships with other members of the genus. Nematology. 6 (3), 401-412 (2004).
- Bhat, A. H., Chaubey, A. K., Shokoohi, E., William Mashela, P. Study of Steinernema hermaphroditum (Nematoda, Rhabditida), from West Uttar Pradesh, India. Acta Parasitol. 64 (4), 720-737 (2019).
- Schwarz, E. M., et al. Genomes of the entomopathogenic nematode Steinernema hermaphroditum and its associated bacteria. bioRxiv. , (2025).
- Haglund, K., Nezis, I. P., Stenmark, H. Structure and functions of stable intercellular bridges formed by incomplete cytokinesis during development. Commun Integr Biol. 4 (1), 1-9 (2011).
- Ghanta, K. S., Ishidate, T., Mello, C. C. Microinjection for precision genome editing in Caenorhabditis elegans. STAR Protoc. 2 (3), 100748(2021).
- Gang, S. S., et al. Targeted mutagenesis in a human-parasitic nematode. PLoS Pathog. 13 (10), e1006675(2017).
- Adams, S., Pathak, P., Shao, H., Lok, J. B., Pires-daSilva, A. Liposome-based transfection enhances RNAi and CRISPR-mediated mutagenesis in non-model nematode systems. Sci Rep. 9 (1), 483(2019).
- Culp, E., et al. Genome editing in the nematode Caenorhabditis briggsae using the CRISPR/Cas9 system. Biol Methods Protoc. 5 (1), bpaa003(2020).
- Hellekes, V., et al. CRISPR/Cas9 mediated gene editing in non-model nematode Panagrolaimus sp. PS1159. Front Genome Ed. 5, 1078359(2023).
- Patel, R., et al. The generation of stable transgenic lines in the human-infective nematode Strongyloides stercoralis. G3 (Bethesda). 14 (8), jkae122(2024).
- Moreno-Mateos, M. A., et al. CRISPRscan: Designing highly efficient sgRNAs for CRISPR-Cas9 targeting in vivo. Nat Methods. 12 (10), 982-988 (2015).
- Berkowitz, L. A., Knight, A. L., Caldwell, G. A., Caldwell, K. A. Generation of stable transgenic C. elegans using microinjection. J Vis Exp. (18), e833(2008).
- Wang, H., Park, H., Liu, J., Sternberg, P. W. An efficient genome editing strategy to generate putative null mutants in Caenorhabditis elegans using CRISPR/Cas9. G3 (Bethesda). 8 (11), 3607-3616 (2018).
- Conant, D., et al. Inference of CRISPR Edits from Sanger Trace Data. CRISPR J. 5 (1), 123-130 (2022).
- McMullen, J. G. 2nd, Stock, S. P. In vivo and in vitro rearing of entomopathogenic nematodes (Steinernematidae and Heterorhabditidae). J Vis Exp. (91), e52096(2014).
- Kim, H., et al. A co-CRISPR strategy for efficient genome editing in Caenorhabditis elegans. Genetics. 197 (4), 1069-1080 (2014).
- Ciche, T. A., Sternberg, P. W. Postembryonic RNAi in Heterorhabditis bacteriophora: A nematode insect parasite and host for insect pathogenic symbionts. BMC Dev Biol. 7 (1), 101(2007).
- Du, X., McManus, D. P., French, J. D., Jones, M. K., You, H. CRISPR/Cas9: A new tool for the study and control of helminth parasites. Bioessays. 43 (1), e2000185(2021).
- Quinzo, M. J., Perteguer, M. J., Brindley, P. J., Loukas, A., Sotillo, J. Transgenesis in parasitic helminths: A brief history and prospects for the future. Parasit Vectors. 15 (1), 110(2022).
- Schwartz, H. T., Tan, C. -H., Peraza, J., Raymundo, K. L. T., Sternberg, P. W. Molecular identification of a peroxidase gene controlling body size in the entomopathogenic nematode Steinernema hermaphroditum. Genetics. 226 (2), (2024).
- Dokshin, G. A., Ghanta, K. S., Piscopo, K. M., Mello, C. C. Robust genome editing with short single-stranded and long, partially single-stranded DNA donors in Caenorhabditis elegans. Genetics. 210 (3), 781-787 (2018).
재인쇄 및 허가
