본 연구에서는 Mycobacterium을 위한 Hot Phenol 기반의 RNA 추출 방법을 최적화하여, 전사체 분석에 적합한 고품질의 RNA를 얻었습니다. 동일한 조건에서 TRIzol 및 RNeasy와 벤치마킹하여 비교한 결과, 본 방법은 더 높은 수율과 대등한 무결성, 그리고 향상된 비용 효율성을 보여주어 대규모 유전자 발현 연구를 위한 실용적인 대안을 제공합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
방법 논문
마이코박테리아로부터의 최적화된 핫 페놀 기반 RNA 추출: 신뢰할 수 있는 유전자 발현 분석을 위한 강력한 방법론
이 논문에서
요약
초록
Mycobacterium tuberculosis (Mtb)는 여전히 전 세계적인 주요 보건 위협으로 남아 있으며, 이는 Mtb의 생물학 및 약제 내성 기전을 이해하기 위한 신뢰할 수 있는 전사체 연구의 필요성을 강조합니다. 이러한 분석은 고품질, 고수율의 RNA를 확보하는 것에 달려 있습니다. 여러 RNA 추출 방법이 존재하지만, 많은 방법이 고가의 시약, 대량의 배양액 또는 특수 장비를 필요로 하여, 특히 자원이 제한된 환경에서 대규모 연구에 적용하기에는 한계가 있습니다. 본 논문에서는 마이코박테리아에 특화되어 최적화된 Hot Phenol 기반 RNA 추출 방법을 제시합니다. 이 방법은 최소한의 배양액과 흔히 사용 가능한 시약을 사용하여 고처리량 전사체 분석 응용에 적합한 고품질 RNA를 일관되게 추출합니다. RNA의 양과 무결성은 젤 전기영동 및 RNA 무결성 분석 (RIN)을 통해 평가하였으며, 후속 응용 분석에 대한 적합성은 qPCR 및 Qubit 4로 확인하였습니다. 최적화된 방법의 성능을 벤치마킹하기 위해, 동일한 Mycobacterium 종, 배양액 부피, 성장 단계(대수 증식기 및 정지기) 및 용해 조건을 포함한 동일한 실험 조건 하에서 TRIzol 및 RNeasy를 이용한 병행 RNA 추출을 수행하였습니다. 이를 통해 수율, 품질, 실행 가능성 및 비용을 직접적으로 비교할 수 있었습니다. 최적화된 Hot Phenol 방법은 시약 비용과 특수 장비 의존도를 크게 낮추면서도, 이에 상응하거나 더 향상된 RNA 수율과 품질을 보여주었습니다. 효율성, 재현성 및 경제성 덕분에, 이 프로토콜은 Mtb 및 기타 마이코박테리아 종의 대규모 유전자 발현 및 전사체 연구를 위한 실용적인 대안을 제공합니다.
서론
M. tuberculosis (Mtb)는 결핵(TB)의 원인균으로, HIV/AIDS를 넘어 단일 감염성 병원체로 인한 사망 원인 1위를 차지하고 있습니다. 2024년 기준, 전 세계적으로 결핵으로 인해 약 130만 명이 사망했습니다1. 이러한 부담은 다제내성(MDR) 및 광범위 약제내성(XDR) 균주의 유병률 증가로 인해 더욱 심화되고 있습니다. 따라서 결핵 병인 기전의 분자적 기초를 이해하고 새로운 치료 표적을 발굴하는 것이 시급합니다2.
Mtb의 전사 프로파일링은 숙주-병원체 상호작용3, 환경적 스트레스에 대한 적응4, 그리고 약제 내성의 기저 기전5에 관여하는 기능적 요소들을 규명하는 중요한 도구가 되었습니다. 실시간 PCR, 마이크로어레이 및 RNA 시퀀싱(RNA-seq)과 같은 고급 방법론들은 마이코박테리아 전사체를 분석하는 능력을 크게 향상시켰습니다6. 하지만 이러한 방법들의 성공 여부는 고품질 RNA의 확보 가능성에 크게 좌우되며, 이는 다시 추출 과정 중의 효율적인 세포 용해에 달려 있습니다. Mtb의 복잡한 mycolyl–arabinogalactan–peptidoglycan 세포벽은 RNA 추출을 특히 어렵게 만듭니다7. 효소 가수분해8, 초음파 처리9, 비드 비팅10을 포함한 기존의 용해 기술들은 종종 고가의 장비와 많은 배양 부피를 필요로 하며, 이는 많은 BSL-3 실험실에서의 실용성을 제한합니다. 또한, Mtb의 느린 성장 속도로 인해 충분한 바이오매스를 얻기 위해서는 장기간의 배양 시간이 필요합니다11.
이러한 한계를 극복하기 위해, 신속하고 경제적인 최적화된 Hot Phenol 기반 RNA 추출법이 개발되었습니다. 로그 증식기(mid-log phase) 배양액 3 mL만을 사용하여, 하위 전사체 분석에 적합한 고품질의 RNA를 45–60 µg 얻을 수 있습니다. 세포 용해는 소형 휴대용 조직 분쇄기와 쉽게 구할 수 있는 시약을 사용하여 수행하므로 고가의 장비가 필요하지 않습니다. Hot Phenol 방법은 이전에 보고된 바 있으나11,12, 최적화된 Hot Phenol 방법은 편의성, 비용 효율성 및 RNA 수율을 개선하였습니다. 최적화는 M. smegmatis mc2155 (Msmeg)를 사용하여 수행되었으며, Mtb H37Rv를 통해 성공적으로 검증되었습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
사용된 시약 및 장비는 재료 표에 나열되어 있습니다.
1. Mycobacterium 배양
- Msmeg 또는 Mtb의 글리세롤 스톡에서 1mL를 취해 0.2% glycerol, 0.05% Tween 80, 10% ADC가 첨가된 10 mL의 Middlebrook 7H9 배지에 접종하고, 37 °C에서 150 rpm으로 진탕 배양하여 OD가 1–1.5에 도달할 때까지 배양한다.
- 1차 배양액의 1%를 10 mL의 7H9 배지에 추가하여 mid-log 단계인 OD600nm = 0.6–0.7까지 2차 배양을 진행한다.
- 배양액을 3 mL씩 분취하고, 실온(23–25 °C)에서 2000 x g 로 5분간 원심분리한다.
- RNA 추출 전까지 펠렛을 -80 °C에 보관한다.
주의: Mtb 배양액의 경우, 적절한 BSL3 지침을 준수하고 펠렛을 95 ˚C에서 20–25분 동안 가열 불활성화한다.
참고: 그림 1은 Hot Phenol법을 이용한 RNA 추출의 기본 단계 순서도를 보여준다.
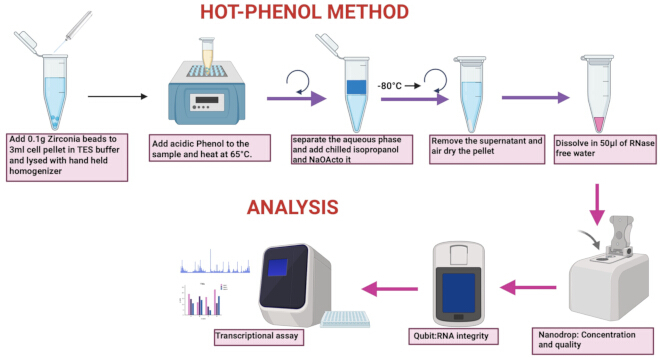
그림 1: Hot-Phenol 방법 및 분석의 모식도. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
2. RNA 추출
- 열페놀법 (HP법)
- 추가하십시오 200 µL TES 완충액(100 mM Tris-HCl, pH 8.0; 5 mM EDTA, pH 8.0; 0.1 M NaCl; % SDS; 1% β-mercaptoethanol)을 세포 펠렛에 가하고, 볼텍싱하여 펠렛을 재현탁한다.
- 시료에 0.1 mm 실리카 비드 약 0.1 g을 첨가한다. 펠렛이 얼음 위에서 완전히 해동될 때까지 핸드헬드 조직 분쇄기로 10~15초 동안 분쇄한다. 이 단계를 2회 더 반복하며, 매 반복 후에는 액체 질소로 급속 냉동시킨다.
- 또는 실온에서 고속 테이블탑 비드 럽터(bead ruptor)를 사용하여 속도 설정 5(5.0 m/s)로 1분간 처리하십시오. 이 단계를 3회 반복하며, 각 사이클 후에는 가열을 방지하기 위해 샘플을 얼음 위에 두어 배양하십시오.
참고: 핸드헬드 조직 분쇄기(hand-held tissue grinder) 또는 비드 럽터(bead ruptor)를 사용하여 Mtb 세포 용해를 6~8회 반복(회당 1분)하며, 각 사이클 후에는 간헐적으로 얼음 위에서 냉각하십시오. RNA 추출에 필요한 모든 완충액 및 시약 조제 시에는 DEPC(Diethylpyrocarbonate) 처리수를 사용하십시오. - 추가로 추가하십시오. 200 µL TES 완충액(미리 가온하여) 65 °C)를 각 샘플에 첨가하여 최종 부피를 다음까지 맞춥니다. 400 µL각 샘플에 다음을 추가하십시오. 200 µL 산성 페놀(100mM 시트르산 완충액, pH 4.5로 평형을 맞춘 페놀) 및 200 µL 클로로포름(샘플에 첨가하기 전, 산성 페놀과 클로로포름을 동일한 비율로 혼합하십시오).
- 시료를 다음 조건에서 배양하십시오. 65 °C 900 rpm으로 쉐이킹 기능이 있는 히팅 블록에서 30분 동안 반응시킨 후, 12,000 x g에서 원심분리합니다. g 실온에서 15분 동안 둡니다. 원심분리 후 적절한 상 분리가 이루어졌는지 확인합니다(RNA가 포함된 투명한 상층 수용액층, 뚜렷한 DNA 중간층, 그리고 단백질과 지질이 포함된 하층 유기용매층이 관찰됩니다).
- 상층의 수성층을 제거하여 새로운 1.5 mL 마이크로원심분리관으로 옮깁니다. 동일한 부피의 산성 페놀:클로로포름을 다시 첨가합니다. 12,000 x g 실온에서 15분 동안 유지합니다. 상분리가 적절히 이루어졌는지 확인하십시오.
- 상층액을 새로운 1.5 mL 마이크로원심분리 튜브로 옮긴 후, 다음을 추가하십시오. 30 µL pH 5.3의 3 M 아세트산 나트륨 완충액 및 240 µL 냉각된 이소프로판올의. −에서 배양하십시오.80 °C 30분에서 1시간 동안.
참고: 마이크로원심분리 튜브는 - 온도에서 하룻밤 동안 보관할 수 있습니다.80 °C 이 단계에서, 마이크로원심분리 튜브가 열리는 것을 방지하기 위해 파라필름을 여러 겹으로 감싸 밀봉하십시오. 65 °C 배양 중에.
주의: 페놀과 클로로포름은 위험 화학 물질이므로 적절한 개인 보호구(PPE) 착용, 흄 후드와 같은 공학적 제어 조치 및 특정 폐기물 처리 절차를 준수해야 합니다. - 12,000 x g에서 원심분리하십시오. g 실온에서 1시간 동안 방치하십시오. 펠릿이 형성되었는지 확인하고, 펠릿이 흐트러지지 않도록 주의하며 상층액을 조심스럽게 제거하십시오.
- 펠릿을 1mL의 75% 에탄올에 다시 현탁하고 12,000 x g에서 원심분리하십시오. g 실온에서 1분 동안 수행합니다. 이 단계를 두 번 반복하고 펠렛을 공기 중에서 건조시킵니다.
- 펠릿을 다음 용액으로 재부유합니다. 50 µL 핵산분해효소 제거수의.
참고: RNA를 용해하려면 RNase-free water에 넣고 실온에서 10~30분 동안 배양하십시오.
- TRIzol 방법
- 추가하십시오 200 µL 세포 펠릿에 TRIzol 시약을 추가합니다.
주의: TRIzol은 유해 화학물질이므로, 적절한 개인 보호 장비(PPE)와 흄 후드와 같은 공학적 제어 장치를 사용해야 하며, 특정 폐기물 처리 절차를 준수해야 합니다. - 단계 2.1.2 - 2.1.3에 기술된 세포 용해 방법을 따르십시오.
- 추가하십시오 200 µL TRIzol 시약을 넣은 후, 이어서 200 µL 클로로포름을 넣고 1분간 볼텍싱합니다. 13,400 x g 15분 동안 다음 온도에서 4 °C원심분리 후 층 분리가 적절하게 이루어졌는지 확인하십시오.
- 수층을 새로운 1.5 mL 마이크로원심분리 튜브에 조심스럽게 옮깁니다.
- 다음을 첨가하여 RNA를 침전시킨다. 500 µL 이소프로판올을 수성 층에 첨가하고 −에서 배양하며80 °C 30분에서 1시간 동안.
- 15,000 x g에서 원심분리하여 RNA를 침전시킵니다. g 20분 동안 다음 온도에서 4 °C펠렛을 주의 깊게 관찰하고, 펠렛이 흐트러지지 않도록 상층액을 제거하십시오.
- 펠렛을 1 mL의 75% 에탄올로 재부유시킨 후 13,400 x g에서 원심분리하십시오. g 1분 동안 (온도/조건)에서 4 °C이 단계를 두 번 반복하고, 실온에서 30분 동안 펠렛을 공기 건조시킨 후, 다음의 용액에 다시 현탁하십시오. 50 µL nuclease-free water의.
- 추가하십시오 200 µL 세포 펠릿에 TRIzol 시약을 추가합니다.
- 시판 RNA 추출 키트 방법
- 세포 펠릿을 ~에 재부유합니다. 200 µL 재현탁 완충액(kit에 제공됨)의.
- 단계 2.1.2 - 2.1.3에 명시된 세포 용해 방법을 따르십시오.
- 제조업체의 지침에 따라 후속 실험을 수행하십시오.
3. DNase 처리, 정량 및 시각화
- 게놈 DNA 오염을 제거하기 위해, 각 RNA 샘플에 DNase I (10units) 1 µL와 RDD buffer (1x) 5 µL를 첨가하고 상온에서 30분 동안 배양한다.
- Nanodrop을 사용하여 RNA 샘플의 양을 분광광도법으로 정량하고, Qubit4를 사용하여 RNA 무결성을 측정한다. RIN의 허용 값은 7.5-10 사이여야 하며, A260/A280 및 A260/A230의 허용 값은 각각 1.8–2.0 및 2.0–2.2 범위 내여야 한다.
- 1X RNA loading dye를 사용하여 1% 아가로스 겔에서 RNA를 시각화한다.
4. cDNA 합성 및 정량적 실시간 PCR
- cDNA 역전사 키트와 1 µg RNA를 사용하여 제조사의 지침에 따라 서멀 사이클러에서 cDNA 준비를 위한 20 µL 반응액을 설정합니다.
- 제조사의 지침에 따라 50 ng의 cDNA, 각 0.4 µM의 프라이머 및 SYBR을 사용하여 10 µL 실시간 PCR 반응액을 설정합니다. 실시간 PCR 서멀 사이클러에서 샘플을 구동합니다.
참고: qPCR 분석에 다음 프라이머가 사용되었습니다:
Mtb sigA Fw 5' cctcaaacagatcggcaagg 3', Mtb sigA Rv 5' cagatccacatcatgtcgcg 3'
Mtb hsp70 Fw 5’ gctggtggacaagttcaagg 3', Mtb hsp70 Rv 5' ggtcagctgctcgtctaaga 3'
Mtb16srRNA Fw 5' gcgatacgggcagactagag 3', Mtb16srRNA Rv 5' aaggaaggaaacccacacct 3'
Ms. sigA Fw 5' gaagacaccgacctggaact 3', Ms.sigA ms Rv. 5' gactcttcctcgtcccacac 3'
Ms. sigH Fw 5' gaagggttcccgtacaagg 3', Ms sigH Rv. 5' tcatgacgtcacctcctcg 3'
Ms. sigE Fw 5' caccaccaaccttttcctcg 3', Ms. sigE Rv. 5' accctcgatgtcacacagg 3'
5. 통계 분석
- Graph Pad Prism을 사용하여 모든 생물학적 반복 실험군에 대해 Student's t-test를 수행하였으며, P ≤ 0.05일 때 통계적으로 유의미한 것으로 간주하였습니다. 오차 막대는 최소 3회 이상의 생물학적 반복 실험에서 얻은 표준 오차를 나타냅니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
RNA 품질 및 수율
아가로스 겔 전기영동을 통해 RNA의 품질과 양을 평가하였다(그림 2). 모든 추출 방법에서 23S 및 16S rRNA에 해당하는 뚜렷하고 선명한 밴드가 관찰되어, 총 RNA가 성공적으로 분리되었음을 확인하였다. Hot Phenol 및 TRIzol 방법에서는 23S (~2900 bp), 16S (~1500 bp), 5S rRNA (~120 bp)를 나타내는 세 개의 명확한 밴드가 나타나 RNA가 손상되지 않은 고품질임을 보여주었다. 반면, 컬럼 기반 키트 방법에서는 23S와 16S 밴드만 관찰되었으며 5S rRNA 밴드는 없거나 검출 한계 미만이었는데, 이는 컬럼 정제 과정에서 작은 RNA들이 우선적으로 손실되었기 때문인 것으로 보인다. 정량적으로 Hot Phenol 방법은 TRIzol 및 RNeasy보다 각각 1.5~2배 더 많은 RNA를 수득...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
Mycobacterium을 위한 간단하고 견고한 RNA 추출 방법을 개발하기 위해 Hot Phenol 방법이 최적화되었습니다. 이어서, 추출된 RNA를 널리 사용되는 두 가지 방식인 TRIzol 및 컬럼 기반 키트 방법12,13과 비교하였습니다. 하위 분자 생물학적 응용 분야에서의 실용성을 평가하기 위해 RNA 수율, 순도, 무결성, 비용 및 처리 시간을 기준으로 이러한 기술들을 비교했습니다. Hot Phenol과 TRIzol 방법은 키트 기반 방법에 비해 상대적으로 시간이 많이 소요되었으나, 손상되지 않은 고품질의 RNA를 생성했습니다. 세 가지 방법 모두 유사한 순도와 무결성을 가진 RNA를 얻었으나, Hot Phenol 방법이 일관되게 더 높은 RNA 수율을 제공했습니다. 또한, Hot Phenol과 TRIzol을 사용하여 추출한 RNA는 유사한 Ct 값을 나타냈습니다. 그러나 Hot Phenol 방법과...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자들 간의 이해상충은 없었습니다. 모든 저자가 제출을 승인하였습니다.
감사의 글
인도 생명공학부(DBT), 인도 의학연구위원회(ICMR) 및 과학공학연구위원회(SERB)의 지원에 감사드립니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.1 mm 실리카 비드 | MP Biomedicals | MP116911050 | |
| 2-propanol | Sigma | 278475 | |
| Bead Ruptor 4 | revvity | ||
| 클로로포름 | Sigma | 288306 | |
| 저온 원심분리기 | ThermoScientific | 42541217 | |
| DNase I | qiagen | 79254 | |
| EDTA | sigma | E02SS | |
| HCl | SRL | 62889 | |
| 히팅 블록 | MIULAB | MU-E02-1049 | |
| High-Capacity cDNA Reverse Transcription kit | Thermo Fischer Scientific | 4368814 | |
| 모터 구동식 조직 분쇄기 G10 | Coron | G22616008 | |
| NaCl | sigma | S5886 | |
| Nanophotometer N50 | IMPLEM | T51601 | |
| 0.1 M 시트르산 완충액(pH 4.5)으로 평형화된 페놀 | Sigma | P4682 | |
| PowerUP SYBR | Applied Biosystems | A25742 | |
| Qubit 4 형광 광도계 | Invitrogen | 2.32262E+12 | |
| Real-Time PCR 열 순환기 | Analytik Jena AG | 844-00503-2 | |
| RNA easy Kit | Qiagen | 74104 | |
| SDS | Sigma | S9888 | |
| 아세트산 나트륨 | Sigma | S2889 | |
| 열 순환기 | Biorad | 621BR29739 | |
| TRI Reagent | Sigma | T9424 | |
| Tris base | Himedia | MB029 | |
| β-mercaptoethanol | Sigma | 516732 |
참고문헌
- Global tuberculosis report, 2024. , Available from: https://www.who.int/publications/b/74877 (2024).
- Lange, C., et al. Drug-resistant tuberculosis: An update on disease burden, diagnosis and treatment. Respirology. 23 (7), 656-673 (2018).
- Tailleux, L., et al. Probing host-pathogen cross-talk by transcriptional profiling of both Mycobacterium tuberculosis and infected human dendritic cells and macrophages. PLoS One. 3 (1), e1403(2008).
- Voskuil, M. I., et al. Inhibition of respiration by nitric oxide induces a Mycobacterium tuberculosis dormancy program. J Exp Med. 198 (5), 705-713 (2003).
- Zhang, Y., Yew, W. W. Mechanisms of drug resistance in Mycobacterium tuberculosis. Int J Tuberc Lung Dis. 13 (11), 1320-1330 (2009).
- Arnvig, K. B., Young, D. B. Identification of small RNAs in Mycobacterium tuberculosis. Mol Microbiol. 73 (3), 397-408 (2009).
- Brennan, P. J., Nikaido, H. The envelope of mycobacteria. Annu Rev Biochem. 64, 29-63 (1995).
- Belisle, J. T., Sonnenberg, M. G. Isolation of genomic DNA from mycobacteria. Methods Mol Biol. 101, 31-44 (1998).
- Manganelli, R., et al. Role of the extracytoplasmic-function sigma factor σH in Mycobacterium tuberculosis global gene expression. Mol Microbiol. 45 (2), 365-374 (2002).
- Rustad, T. R., et al. Global analysis of mRNA stability in Mycobacterium tuberculosis. Nucleic Acids Res. 41 (1), 509-517 (2013).
- Mangan, J. A., Sole, K. M., Mitchson, D. A., Butcher, P. D. An effective method of RNA extraction from bacteria refractory to disruption, including mycobacteria. Nucleic Acids Res. 25 (3), 675-676 (1997).
- Venkataraman, B., Gupta, N., Gupta, A. A robust and efficient method for the isolation of DNA-free, pure and intact RNA from Mycobacterium tuberculosis. J Microbiol Meth. 93 (3), 198-202 (2013).
- Hiebert, R. M., et al. RNA extraction and RNA-sequencing method for transcriptomic analysis of Mycobacterium tuberculosis. Biotechniques. 77 (1), 23-34 (2025).
- Kumar, K., Tharad, M., Ganapathy, S., et al. Phenylalanine-rich peptides potently bind ESAT6, a virulence determinant of Mycobacterium tuberculosis, and concurrently affect the pathogen's growth. PLoS One. 4, e7615(2009).
- Alli, A. O., et al. Optimization of RNA extraction in Mycobacterium tuberculosis for studying intracellular gene expression. Afr J Clin Exp Microbiol. 10 (2), 64-79 (2009).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
