이 연구는 Wnt/β-카테닌 경로 및 miR-22 발현의 조절을 통해 망막모세포종 세포 거동에 대한 커큐민의 효과를 평가하기 위한 프로토콜을 제시합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
연구 논문
망막모세포종에서 커큐민에 의한 Wnt/β-카테닌 신호의 miR-22 매개 조절
* These authors contributed equally
이 논문에서
요약
초록
망막모세포종(RB)은 영유아에게 영향을 미치는 흔한 안내 악성 종양이지만 정확한 병인과 병인은 아직 불완전하게 이해되고 있습니다. 생리 활성 폴리페놀인 커큐민은 Wnt/β-카테닌 신호 전달 캐스케이드의 마이크로RNA 매개 조절 을 통해 종양 진행을 억제합니다. 본 연구는 커큐민이 miRNA-22(miR-22) 발현 조절을 조사하고 근본적인 분자 기전을 탐색함으로써 RB에서 항종양 효과를 어떻게 매개하는지 밝히는 것을 목표로 했습니다. 두 개의 검증된 망막모세포종 모델(SO-RB50/WERI-Rb-1)을 다양한 농도의 커큐민으로 치료했습니다. Wnt/β-카테닌 신호 전달에 대한 miR-22의 조절을 설명하기 위해 표적 세포를 miR-22 모방 렌티바이러스 또는 비기능성 대조군 렌티바이러스로 형질도입했습니다. 종양 크기, miR-22 발현 및 Wnt/β-카테닌 단백질 수준에 대한 커큐민의 생체 내 효과를 관찰하기 위해 인간 RB 세포를 사용하여 마우스에서 이종이식 종양 모델을 확립했습니다. 세포 증식, 침윤 및 세포사멸은 각각 CCK-8, Transwell 및 Annexin V-APC-PI 이중 염색 분석을 사용하여 평가되었습니다. miR-22 수치는 RT-PCR로 정량화되었고, Wnt1 및 β-카테닌 발현 프로파일은 웨스턴 블롯 분석으로 결정되었습니다. 커큐민 치료는 RB 세포의 증식 및 침습성을 감소시키는 동시에 세포사멸을 강화하고 miR-22 발현을 증가시켰습니다. miR-22의 억제는 Wnt/β-카테닌 신호 전달 경로에 대한 커큐민의 효과를 감소시켰습니다. 이종이식 연구에서 커큐민은 종양 크기를 크게 줄이고 종양 내 miR-22 발현을 향상시켜 Wnt/β-카테닌 신호 전달을 효과적으로 억제했습니다. 이러한 발견은 커큐민이 주로 miR-22 상향 조절 및 Wnt/β-카테닌 경로의 후속 억제를 통해 매개되는 세포사멸을 촉진하면서 RB 세포 증식 및 침습성을 억제한다는 것을 보여줍니다.
서론
망막모세포종(RB)은 망막 조직에서 발생하는 공격성이 높은 소아 악성 종양으로, 특히 5세 미만의 어린이에게 상당한 건강 위협을 가합니다. 유전적 돌연변이, 특히 RB1 유전자에 영향을 미치는 돌연변이는 이 질병의 발병과 밀접한 관련이 있습니다1. 영유아에서 망막모세포종(RB)의 상당한 유병률과 주로 저소득 및 개발도상국에서 매년 약 9000건의 새로운 사례가 보고된다는 사실을 고려할 때 효과적인 치료 전략을 개발하고 환자 결과를 개선하려면 질병 메커니즘에 대한 포괄적인 이해가 필수적입니다2. 수년에 걸쳐 RB에 대한 연구는 주로 게놈 변경, 특히 miRNA 발현에 중점을 두었습니다3. 확실히 miR-34a와 miR-22는 RB 4,5의 종양 형성에 중요한 역할을 하는 역할을 했습니다. 이러한 miRNA 중에서 miR-22는 증식, 침윤 및 이동에 영향을 미치는 다양한 암 6,7,8에 걸쳐 종양 형성에 관여하는 것으로 입증되었습니다 6,9. 또한, 이전 연구에서는 마우스와 인간 RB 세포주 모두에서 miR-22 발현이 감소한 것으로 나타났으며, 이는 이 질병에서 miR-22의 잠재적 역할을 더욱 강조합니다10.
Curcuma longa 뿌리줄기의 주요 생리 활성 커큐미노이드인 커큐민은 전통 의학과 아시아 요리의 기본 성분이었습니다11. 항종양, 항균, 항염증, 항산화 및 신경 보호 효과를 포괄하는 풍부한 약리학적 프로필은 생물 의학 연구에서 상당한 주목을 받았습니다 12,13,14. 수많은 연구에서 RB에서 항종양 역할을 탐구했으며 NF-κB15, JAK/STAT16 및 MRP117을 포함한 다양한 신호 전달 경로에 미치는 영향을 강조했습니다. 이전에 연구된 이러한 경로와 비교하여 커큐민-miR-22/Wnt/β-카테닌 축은 보다 표적화되고 구체적인 접근 방식을 제공하여 잠재적으로 치료 효능을 개선하고 표적 이탈 효과를 줄일 수 있습니다.
이전 연구에서는 커큐민이 간세포 암종18 및 결장암 세포19에서 TET1/Wnt/β-카테닌 신호 전달 경로 축을 조절하여 항종양 효과를 달성한다고 제안했습니다. 그러나 커큐민이 Wnt/β-카테닌 신호 전달 경로에 영향을 미쳐 RB 세포에서 종양 진행을 억제할 수 있는지 여부는 아직 알려지지 않았습니다. 최근 연구에서는 Wnt/β-카테닌 신호 전달 경로 활성의 변화와 관련된 망막모세포종 세포 및 구강 편평 세포 암종에서 miR-22 발현 감소를 보고했습니다20,21. 실질적인 적용 가능성을 고려할 때, 커큐민은 정의된 농도 범위(시험관 내 10-40μM)15,22 내에서 효과적인 항종양 활성을 나타내며, 관리 가능한 약동학적 특성으로 생체 내에서 투여될 수 있어 중개 연구를 용이하게 합니다. 따라서 본 연구는 커큐민이 miR-22 수치를 증가시킨 후 Wnt/β-카테닌 신호 전달 활성을 감소시키는지 여부를 조사하기 위한 RB 모델을 확립하여 기존의 NF-κB, JAK/STAT 또는 MRP1 조절 접근법에 비해 잠재적으로 더 효율적이고 임상적으로 관련된 치료 전략을 제공하는 것을 목표로 합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
동물과 관련된 모든 절차는 톈진 안과 병원의 동물 윤리 및 복지 위원회(AEWC)의 검토 및 승인을 받았습니다(승인 번호. NKYY-DWLL-2023-054)에 의해 추가됩니다. 사용된 시약과 장비는 재료표에 나와 있습니다.
1. 세포 배양
인간 망막모세포종 계통 WERI-Rb-1 및 SO-RB50의 세포를 10% 태아 소 혈청 및 1% 페니실린-스트렙토마이신이 보충된 고포도당 Dulbecco의 변형 Eagle 배지에서 배양했습니다. 세포를 배양 플라스크에 적절한 밀도로 파종하고 %CO2를 포함하는 가습 분위기에서 37°C로 유지했습니다. 배지는 2-3일마다 교체되었고 세포는 표준 트립신화를 사용하여 70%-80% 합류에서 계대되었습니다.
2. 동물 실험
총 48마리의 특정 병원균이 없는 Balb/c 누드 마우스(4주령, 16-18g)를 사용하였다. 동물은 26-28°C 및 40%-60% 상대 습도의 통제된 환경 조건으로 층류 기류 하에서 멸균되고 개별적으로 환기되는 케이지에 수용되었습니다. 사료, 물, 침구는 사용하기 전에 멸균되었습니다. 쥐는 음식과 물에 자유롭게 접근할 수 있었고 실험 전 일주일 동안 적응했습니다.
3. 동물 그룹화 및 치료
miR-22 모방체 또는 음성 대조군 서열로 안정적으로 형질감염된 WERI-Rb-1 및 SO-RB50 세포를 종양 접종에 사용했습니다. 로그 성장 단계의 세포를 수확하여 멸균 인산염 완충 식염수에 재현탁하고 5 × 10⁷ cells/mL의 밀도로 조정했습니다. 각 마우스에게 0.1mL의 현탁액을 오른쪽 앞다리에 피하 주입하였다. 마우스를 무작위로 모델 그룹, 커큐민 그룹, miR-22 모방군, miR-22 모방 + 커큐민 그룹, miR-22 음성 대조군 및 miR-22 음성 대조군 + 커큐민 그룹의 6개 그룹(그룹당 n = 6)으로 나누었습니다. 커큐민을 투여받은 그룹에서, 마우스는 종양 세포 접종 직후부터 1일 1회 15mg/kg 커큐민을 복강내 주사하였다. 나머지 그룹은 차량 제어로 동일한 양의 DMSO를 받았습니다.
4. 종양 중량 및 부피 측정
종양 채취율은 이종이식된 누드 마우스에서 약 80%-90%였습니다. 종양 크기는 디지털 캘리퍼스를 사용하여 매주 측정되었으며, 가장 긴 직경은 길이(L)로 기록되고 가장 짧은 직경은 너비(W)로 기록되었습니다. 종양 부피는 공식 V = (L × W2)/2를 사용하여 계산되었습니다. 마우스의 종양 성장과 건강 상태를 정기적으로 모니터링하였고, 종양이 1,500mm3를 초과하거나 동물이 고통이나 체중 감소의 징후를 보이는 경우 인도적 종점을 적용하였다. 4주차 말에 마우스는 CO2 흡입에 이어 자궁경부 탈구로 안락사시켰고 사망을 보장했습니다. 종양은 제거 직후 해부되고 무게를 측정했습니다.
5. microRNA 형질감염
miR-22 모방체, 음성 대조군, 항-miR-22(20-메톡시 변형), 항-miR 음성 대조군, Wnt1 특이적 siRNA 및 대조군 siRNA를 포함한 합성 올리고뉴클레오티드를 형질감염에 사용했습니다. 70%-80% 합류의 세포를 형질감염 하루 전에 6웰 플레이트에 파종했습니다. 형질감염은 제조업체의 지침에 따라 지질 기반 시약을 사용하여 수행되었습니다. 각 웰에 대해, 핵산을 무혈청 배지에서 희석하고, 권장 비율로 형질감염 시약과 결합하여 복합체를 형성하고, 이를 실온에서 15-20분 동안 배양한 후 완전 배지의 세포에 적가하였다. 웰당 최종 부피는 2mL였습니다. 5% CO2와 함께 37°C에서 6시간 동안 배양한 후, 배지를 신선한 완전 배지로 교체했습니다. 세포는 후속 분석 전에 48시간 동안 유지되었습니다. 형질감염 효율은 정량적 실시간 PCR로 평가되었습니다. Wnt1을 표적으로 하는 3개의 상이한 siRNA(si-Wnt1-1: 5'-CCAAGAGTCTGCAACTGGTACTCGA-3'; si-Wnt1-2: 5'-CGAGAAACGGCGTTTATCTTCGCTA-3'; si-Wnt1-3: 5'-GCTTCCTCATGAACCTTCAACAA-3')를 개별적으로 또는 등몰 혼합물로 사용하여 표적 이탈 효과를 최소화했습니다.
6. 세포 계수 키트-8(CCK-8) 분석
세포를 100μL의 완전 배지에 웰당 5 × 10³ 세포의 밀도로 96웰 플레이트에 시딩하고 밤새 부착하도록 했습니다. 지정된 기간 동안 표시된 농도의 커큐민으로 처리한 후, 10μL의 CCK-8 작업 용액을 각 웰에 직접 첨가했습니다. 배지 단독을 포함하는 웰은 빈 대조군 역할을 했습니다. 플레이트를 37°C에서 5% CO2 와 함께 4시간 동안 배양한 후 마이크로플레이트 리더를 사용하여 490nm에서 흡광도를 측정했습니다. 세포 생존력은 다음과 같이 계산되었습니다.
생존율(%) = 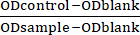 x 100
용량-반응 곡선을 생성하고 그에 따라 커큐민의 절반 최대 억제 농도(IC50)를 결정했습니다.
7. 트랜스웰 분석
이동 분석을 위해 세포를 무혈청 배지에 현탁시키고 인서트당 200μL에 3 × 10⁵ 개 세포에서 Transwell 인서트(기공 크기 8μm)의 상부 챔버에 파종했습니다. 하부 챔버는 화학 유인제로서 10% 소 태아 혈청을 포함하는 600μL의 완전 배지로 채워졌습니다. 플레이트를 37°C에서 5% CO2 와 함께 24시간 동안 배양했습니다. 배양 후, 막의 윗면에 있는 비이동성 세포를 멸균 면봉으로 부드럽게 제거했습니다. 인서트를 인산염 완충 식염수로 두 번 헹구고, 5% 글루타르알데히드에 4°C에서 30분 동안 고정하고, 다시 헹구고, 실온에서 30분 동안 0.1% 크리스탈 바이올렛으로 염색하였다. 과도한 염료는 PBS에서 세척하여 제거되었습니다. 멤브레인을 자연 건조시키고 이동한 세포를 400× 배율의 도립 현미경으로 시각화했습니다. 정량화를 위해 삽입물당 3개의 무작위 필드를 이미지화하고 평균 세포 수를 계산했습니다.
8. 아넥신 V-APC-PI 분석
각 그룹의 세포를 수확하고, 예식된 인산염 완충 식염수(PBS)로 2회 세척하고, 4°C에서 5분 동안 300× g 에서 원심분리하였다. 펠릿을 약 1 × 10⁶ cells/mL의 밀도로 300μL의 1× 결합 완충액에 재현탁했습니다. Annexin V-APC(5μL)를 첨가하고 샘플을 어두운 곳에서 실온에서 15분 동안 배양했습니다. 유세포 분석 직전에 5μL의 요오드화프로피듐을 세포 현탁액 200μL에 첨가하고 실온에서 5분 동안 배양했습니다. 샘플은 적절한 채널(APC 및 PI)을 사용하여 유세포 분석기에서 분석되었고, 데이터는 살아있는 세포, 초기 세포사멸, 후기 세포사멸 및 괴사 세포를 구별하기 위한 표준 게이팅 전략으로 처리되었습니다.
9. qRT-PCR 프로파일링
총 RNA는 페놀-클로로포름법을 사용하여 추출하고 농도와 순도는 자외선 분광 광도법으로 측정했습니다. 역전사를 위해 제조업체의 프로토콜에 따라 역전사 마스터 믹스와 함께 20μL 반응에 총 RNA 1μg을 사용했습니다. 정량적 PCR은 2μL의 cDNA, 10μL의 SYBR Green 마스터 믹스 및 0.4μM의 각 프라이머를 포함하는 20μL 반응에서 수행되었습니다. 반응은 다음 사이클링 프로그램으로 실시간 PCR 시스템에서 실행되었습니다: 95°C에서 1분 동안 15초, 63°C에서 25초 동안 40회 사이클, 각 사이클이 끝날 때 형광 획득. 제품 특이성을 검증하기 위해 55°C에서 95°C까지 용융 곡선 분석을 수행했습니다. 각 샘플을 3부로 분석하고 상대 발현을 2-ΔΔCt 방법을 사용하여 정량화했습니다. U6는 microRNA 정량화를 위한 참조 유전자 역할을 했으며 β-액틴은 mRNA 정규화를 위해 사용되었습니다.
프라이머 서열은 다음과 같았다: U6: 순방향 5'-CTCGCTTCGGCAGCACA-3', 역방향 5'-AACGCTTCACGAATTTGCGT-3'; miR-22: 정방향 5'-GCCTGAAGCTGCCAGTTGA-3', 역방향 5'-GTGCAGGGTCGAGGT-3'; Wnt1: 정방향 5'-CGATGGTGGGGTATTGTGAAC-3', 역방향 5'-CCGGATTTTGGCGTATCAGAC-3'; β-액틴: 순방향 5'-AGTGTGACGTGGACATCCGCAAAG-3', 역방향 5'-ATCCACATCTGCTGGAAGGTGGAC-3'. 증폭 데이터는 시스템 소프트웨어를 사용하여 처리되었습니다. 모든 프라이머는 상업 공급자로부터 얻었습니다.
10. 웨스턴 블롯
프로테아제 억제제를 함유한 용해 완충액을 사용하여 배양된 세포 또는 조직에서 단백질을 추출하고, 단백질 농도를 비신코닌산 방법으로 측정하였다. 동일한 양의 단백질(레인당 40μg)을 정전압(스태킹 겔의 경우 80V, 분리 겔의 경우 120V)에서 10% SDS-PAGE로 분리하고 100V에서 습식 전사 시스템을 사용하여 90분 동안 폴리비닐리덴 디플루오라이드 멤브레인으로 전사했습니다. 막은 0.1% Tween-20(TBST)과 함께 Tris-완충 식염수에서 제조된 5% 탈지유에서 실온에서 1시간 동안 차단되었습니다. Wnt1, β-카테닌 및 β-액틴에 대한 1차 항체를 1% 탈지유를 함유한 TBST에서 1:1000으로 희석하고 멤브레인과 함께 4°C에서 밤새 배양했습니다. TBST로 3회(각각 10분) 세척한 후, 멤브레인을 양 고추냉이 과산화효소 접합 2차 항체(1:5000 희석)와 함께 실온에서 1시간 동안 배양했습니다. TBST로 또 다른 세 번의 세척 후, 향상된 화학발광 검출 시약을 사용하여 단백질 밴드를 시각화하고 디지털 이미징 시스템으로 신호를 캡처했습니다. 밴드 강도는 ImageJ 소프트웨어를 사용하여 정량화되었습니다.
11. 루시페라제 분석
예측된 miR-22 결합 부위를 갖는 Wnt1의 3'UTR을 포함하는 야생형 리포터 플라스미드(Wnt1-WT)와 결합 부위가 파괴된 돌연변이 리포터(Wnt1-MUT)를 구성했습니다. 인간 망막모세포종 세포를 웰당 1 × 10⁵ 세포의 밀도로 24웰 플레이트에 파종하고 지질 기반 형질감염 시약을 사용하여 miR-22 모방체 또는 음성 대조군과 함께 Wnt1-WT 또는 Wnt1-MUT 리포터 플라스미드를 공동 형질감염시켰습니다. 각 웰에 대해 500ng의 리포터 플라스미드와 50nM의 miRNA 모방 또는 대조군을 사용했습니다. 5% CO2와 함께 37°C에서 48시간 배양한 후, 세포를 100μL의 수동 용해 완충액에서 용해했습니다. Firefly 및 Renilla 루시페라제 활성은 제조업체의 프로토콜에 따라 이중 루시페라제 리포터 분석 시스템을 사용하여 순차적으로 측정되었습니다. 반딧불이 루시페라제 활성은 형질감염 효율을 제어하기 위해 레닐라 루시페라제 활성으로 정규화되었습니다. 각 조건은 세 번 우물에서 테스트되었고 3개의 독립적인 생물학적 복제에서 반복되었습니다.
12. 통계 분석
모든 데이터는 최소 3개의 독립적인 생물학적 반복± 표준편차(SD)의 평균으로 표시됩니다. 통계 분석은 통계 소프트웨어를 사용하여 수행되었습니다. 여러 그룹 간의 비교는 일원 분산 분석(ANOVA)에 이어 Tukey의 사후 테스트로 수행되었습니다. <0.05의 p-값은 통계적으로 유의한 것으로 간주되었습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
Wnt/β-카테닌 경로 비활성화를 동반한 인간 망막모세포종 세포에 대한 커큐민의 용량 의존적 항증식 및 항침습적 효과
인간 RB 세포는 24시간 동안 다양한 커큐민 용량으로 처리되었습니다. 연구 결과는 세포사멸의 증가와 함께 세포 생존력 및 침습의 용량 의존적 감소를 보여주었습니다. 구체적으로, 커큐민의 농도가 10μM에서 50μM로 증가함에 따라 처리되지 않은 세포와 비교할 때 SO-Rb50 및 WERI-Rb-1 세포주 모두에서 세포 증식이 점진적으로 감소했습니다(그림 1A). 커큐민의 IC50은 SO-Rb50 세포의 경우 35μM, WERI-Rb-1 세포의 경우 38μM인 것으로 나타났다. 또한, 두 세포주 모두에서 커큐민은 용량 의존적 방식으로 침입을 현저하게 감소시키고(그림 1B) 세포사멸률을 증가시켰습니다(그림 1C). 중요한...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
Curcuma longa 뿌리줄기에서 추출한 폴리페놀인 커큐민은 항염증, 항혈관신생, 항증식 및 항산화 특성으로 유명합니다23,24. 또한 항종양 특성, 특히 악성 세포에서 세포사멸을 유도하는 능력이 있습니다25. 이전 연구에서는 RB 세포에 대한 커큐민의 성장 억제 효과를 강조했지만22,26,27, RB 치료에서 커큐민의 항종양 활성의 기초가 되는 정확한 메커니즘에 대한 이해는 여전히 제한적입니다. 이 연구는 인간 RB 세포에서 커큐민의 세포독성을 확인하여 촉진된 세포사멸과 함께 증식/침습의 용량 의존적 억제를 밝혔습니다. 또한, 커큐민은 RB 세포와 조직...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자는 선언할 이해 상충이 없습니다.
감사의 글
중국 국가자연과학재단(82271218); 톈진 안과 병원 과학 기금(일반 프로젝트 ykyb1908).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Annexin V-APC/PI 이중 염색 키트 | 솔라바이오 | CA1020 시리즈 | 유세포 분석을 통해 RB 세포의 세포사멸을 정량적으로 평가합니다. |
| CCK-8 분석 키트 | 비요타임 | C0038 | 세포 증식 능력을 평가하기 위해 490nm에서 흡광도를 측정합니다. |
| CO2 인큐베이터 | 에펜도르프 | 최적의 배양 조건(37° RB 세포 증식을 위한 C, 5% CO2 및 포화 습도) | |
| 커큐민 | 시그마 | C1386 | 망막모세포종에 대한 커큐민의 항종양 효과 조사 (RB) |
| ECL 화학발광 기판 | 바이오스 | C05-07004 | 웨스턴 블롯 분석에서 단백질 밴드 시각화 |
| 태아 소 혈청(FBS) | 비바셀 | C04001-500 C04002-500 | 세포 배양 |
| 유세포 분석 | 베크만 쿨터 | 갈리오스 | 세포의 세포사멸률을 정량적으로 분석 |
| ImageJ 소프트웨어 | 국립 보건원 | 버전 6 | 웨스턴 블롯 밴드 분석, 단백질 발현 수준 평가 |
| 도립 현미경 | 올림푸스 | CKX53 | 침습성 세포를 400&배로 관찰하고 계산합니다. Transwell 분석의 배율 |
| 리포펙타민 3000 | 인비트로젠 | L3000015 | 세포 형질감염 |
| 마이크로플레이트 리더 | 열 | 케이3 | 효소 결합 면역흡착 분석법(ELISA) 정량 |
| miR-22 모방 렌티바이러스 | 한헝 생명공학 | has-miR-22 | 동물 실험을 위해 안정적으로 형질감염된 세포주 구축 |
| 멀티플렉스 실시간 PCR 시스템 | 바이오 래드 | CFX384 시리즈 | 정밀한 유전자 발현 분석을 위해 정량적 RT-PCR(qRT-PCR) 수행 |
| 페니실린-스트렙토마이신(PS) | 아브킨 | BMC1030 | 박테리아 오염을 방지하기 위해 세포 배양 배지에 첨가 |
| 단백질 추출 키트 | 솔라바이오 | BC3640-50T | 세포 및 조직 샘플에서 단백질 분리 |
| psiCHECK-2 벡터 | 프로메가 | JR20110328 | miR-22와 Wnt1 3'UTR 사이의 상호 작용을 조사하기 위한 Wnt1-WT(야생형) 및 Wnt1-MUT(돌연변이) 리포터 플라스미드를 구축합니다. |
| PVDF 멤브레인 | 머 크 | ISEQ00010 | 단백질 블로팅 |
| 토끼 IgG 2차 항체 | 세포 신호 전달 기술 | 14708 | 1차 항체에 결합하여 웨스턴 블롯 검출 |
| SPSS 통계 소프트웨어 | IBM | SPSS 20.0 | 실험 데이터에 대한 통계 분석 수행 |
| SuperScript III First-Strand 합성 SuperMix 키트 | 인비트로젠 | 11752-050 | 후속 RT-PCR 분석을 위한 RNA를 cDNA로 역전사 |
| SYBR 프리믹스 Ex Taq II 키트 | 타카라 바이오 | RR820A | RT-PCR이 Wnt1, β-actin 및 기타 표적 유전자의 발현을 정량적으로 검출하기 위해 |
| 트리졸 시약 | 인비트로젠 | 12183-555 | 세포 및 조직 샘플 모두에서 RNA 추출 |
| UV 분광 광도계 | 베크먼 | DU800 | RNA 샘플의 농도 및 순도 결정 |
| Wnt1 항체 | 아브캠 | AB15251 | Wnt1 단백질 발현을 검출하기 위한 웨스턴 블롯 분석 |
| &베타;-액틴 항체 | 아브캠 | AB8227 | 웨스턴 블롯 분석에서 단백질 로딩을 정규화하기 위한 내부 참조로 사용 |
| β-카테닌 항체 | 세포 신호 전달 기술 | 37447 | β-카테닌 단백질 발현을 검출하기 위한 웨스턴 블롯 분석 |
참고문헌
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.