이 논문은 장기 생존과 분화를 가능하게 하는 나방 후각 수용체 뉴런 배양 프로토콜을 제시합니다. 이 접근법은 효소 및 기계적 해리를 이용한 행잉 컬럼 배양 기법을 사용하여 매우 어려운 현장 기록에 대한 대안을 제공하여 패치 클램프 기록과 같은 기능적 연구를 가능하게 합니다.
이 논문에서
요약
초록
곤충은 교미, 먹이, 사회적 상호작용과 관련된 많은 행동에서 후각에 매우 의존합니다. 이들은 매우 민감한 후각 수용 신경세포(ORN)를 진화시켰습니다. 이 세포들의 반응 프로필, 코딩 특성 및 생리학을 분석하는 데 흔히 사용되지만, 신호 전달 경로를 상세히 분석하려면 패치클램프 기록이 필요합니다. 이 전기생리학적 기법의 사용을 용이하게 하고 세포 내 및 세포외 ORN 용액의 조성을 잘 조절하기 위해, 본 논문에서는 곤충 ORN 배양 프로토콜을 설명합니다. 곤충 ORN은 부속 세포에 밀착되어 성체 ORN의 급성 해리와 막 직접적 접근을 방지하므로, 이 프로토콜은 분화 전에 나방 번데기에서 더듬이 세포를 해부하는 과정을 설명합니다. 발달 중인 더듬이는 효소적·기계적으로 해리된 후, '행잉 컬럼 기법'으로 거꾸로 배양되어 ORNs의 분화와 생존을 몇 주간 지원하는 조건 매질에 사용됩니다. 이 방법으로 배양된 ORN은 패치 클램프 기록과 같은 기능적 분석에 적합합니다.
서론
곤충은 환경을 탐색하고, 먹이원을 찾으며, 짝을 식별하고, 포식자를 피하기 위해 후각에 크게 의존합니다 1,2. 이들의 후각 시스템은 놀라울 정도로 효율적이고 정밀하게 조율되어 다양한 휘발성 화학적 신호를 높은 감도와 특이도로 감지할 수 있습니다. 냄새는 주로 더듬이(주요 후각 기관)에 위치한 감각세포와 모기, 초파리4와 같은 이목목에서 2차 후각 구조 역할을 하는 상악 촉각에 위치한 후각 수용 뉴런(ORN)에 의해 감지됩니다.
후각 신호 전달의 분자 메커니즘을 조사하기 위해서는 개별 ORN에 대한 직접적인 전기생리학적 접근이 필수적입니다. 패치 클램프 기록은 신경생리학에서 표준적인 기법으로, 이온 채널, 수용체, 신호 전달 경로를 상세히 기능적으로 특성화할 수 있게 해줍니다. 곤충 ORN에서 현장 패치클램프 기록이 가능하지만, 크기가 작고 부속 세포 내에 밀집되어 있으며, 이 뉴런들이 큐티클 캡슐화되어 기술적으로 어렵습니다. 이러한 어려움은 거대 사토르니드나방 Antheraea polyphemus5에서 돌출된 외부 수상돌기를 패치하거나, 초파리 6,7에서 반온전하거나 더듬이 절단 처리된 ORN 패치로 극복되었습니다. 현장 기록은 정상적으로 분화된 뉴런을 기록할 수 있게 하지만, 이러한 접근법은 상당한 기술적 어려움을 초래하며, 더 접근성 높은 실험 조건을 제공하는 대안적 접근법의 필요성을 강조합니다.
이 글에서는 나방 더듬이에서 ORN을 배양하는 견고한 프로토콜을 설명합니다. 이 프로토콜은 다양한 나비목에 적용 가능한 것으로 보이나, 아직 다른 곤충 그룹에서는 검증되지 않았습니다. 이 방법은 시험관 내에서 ORNs의 유지 및 성장을 가능하게 하여, 패치클램프 연구 8,9,10뿐만 아니라 약리학 및 영상 연구에도 이 세포에 직접 접근할 수 있게 합니다. 이 배양 시스템은 현장 기록과 관련된 많은 한계를 우회하여 후각 전달 경로와 관련 분자 성분의 기능적 분석에 귀중한 플랫폼을 제공합니다.
프로토콜
곤충 관련 연구에서는 윤리 승인 및 준수 성명서가 필요하지 않습니다. 곤충 ORN의 1차 배양은 담배매나방 Manduca sexta (나비목, Sphingidae)11, 꿀벌 Apis mellifera12, 양배추나방 Mamestra brassicae (나비목, 야생나방과)13에서 기술되었습니다. 설명된 프로토콜은 번데기 단계에서의 해부와 차이점(배양지, 성장면)을 보여준다. 여기서 설명한 프로토콜은 여러 나방 종인 M. brassicae, Spodoptera littoralis, Bombyx mori, Agrotis ipsilon 등 여러 나방 종의 ORN 배양에 변형 없이 성공적으로 사용되었습니다. 층류 후드 아래에서 수행하는 모든 단계(2구간부터 8구간까지는 무균 처리)를 수행합니다.
1. 곤충
- 인공 식단을 먹인 S. littoralis (나비목: Noctuidae)의 후방 유충을 22-24°C, 60-70% 상대습도,앞서 설명한 16:8시간의 밝고 어둠 주기로 유지합니다.
- 번데기 단계에서 수컷과 암컷이 분리되어 있습니다. 출현 후에는 성체 수컷과 암컷을 플라스틱 상자에 분리해 두고, 20% 자당 용액을 무료로 제공하세요.
- 매일 새 번데기를 채취하여 22°C에서 유지하세요. 이러한 조건에서 번데기가 되는 기간은 14-16일입니다. 수컷이나 암컷을 대상으로 실험을 해보세요.
2. 조건 첨가 그레이스 배양 배지 제조
참고: 나방 ORN을 배양하는 데 사용되는 그레이스 배지는 Manduca sexta 세포주(MRRL-CH115; 이 세포주는 요청 시 이용 가능)에 조건화되어 있습니다. MRRL-CH1 세포를 3주마다(약 80% 합류 비율), 정상 공기 20°C에서 서브배양합니다. 세포 합류율이 90%를 넘지 않도록 해야 하며, 이는 세포 분리와 세포 사사 증가를 초래합니다. 각 지문마다 다음 단계를 수행하세요.
- 10 mL 피펫을 사용해 플라스크 바닥 표면에서 부드럽게 부착된 세포를 분리합니다.
- 세포 현탁액 1.5mL를 4개의 플라스크에 발라하고, 각 플라스크에는 10% 태아 소 혈청(FBS)을 보충한 그레이스 배지 6.2mL를 추가하세요.
- 세포 통과 후 이틀 후, 마지막으로 준비된 플라스크에 오염이 없으면 이전 통과의 남은 3개 플라스크에서 배양 배지를 수집합니다. 필터(0.2 μm)를 사용해 5°C에서 조절된 그레이스 매질을 저장합니다. 최대 6개월까지 사용하세요.
3. 파팽 준비
참고: 파팽은 효소 활성 손실을 최소화하기 위해 농축 알리코트(100 mL, 10 mg/mL)와 -80 °C에 보관해야 합니다. 따라서 파팽 용매의 알리코트는 별도로 준비해야 합니다. 에틸렌디아미네테트라아세트산(EDTA)과 L-시스테인이 활성 파파인16에 첨가됩니다. 파팽과 혼합하면 최종 농도는 0.5 mM EDTA, 1 mM 시스테인, 1 mg/mL 파팽(~10 U/mL)입니다.
- 파팽 알리코트: 멸균된 행크스 밸런스 소금 용액(HBSS) 2.5mL에 20% 글리세롤을 희석하여 파팽(25mg)을 희석합니다. 100μL 알리코트에 -80°C에서 보관하세요.
- 파팽 용매 알리코트: 만니톨 27mL를 피펫에 넣고 만니톨을 넣은 침투압을 380 mOsmol/L로 조절합니다. EDTA 5.6mg과 L-시스테인 5.3mg을 추가하세요. pH를 6.7로 조절하세요. 0.2 μm 저결합 필터를 사용해 멸균하세요. -20 °C에서 900μL 알리코트 단위로 보관하세요.
4. 배양 배지 준비
참고: 모든 매체는 멸균 상태입니다. 멸균은 0.2 μm 멸균 필터를 사용하여 수행됩니다.
- 3+2 미디엄:
- 30mL 튜브에 Leibovitz 배지 3부(16.4 mL), Grace 배지 2부(11 mL), 페니실린-스트렙토마이신 2%(0.6 mL)를 넣습니다. 삼투압을 370 mOsmol/L(약 150mg 만니톨)로, pH를 6.7(NaOH 1 M)로 조절합니다.
- 3+2 배지를 28 mL로 얻어 5 mL를 여과하여 7 mL 튜브로 옮깁니다. 3+2 배지의 나머지 23mL에 약 1-2 mg의 페닐티우레아 결정 몇 개를 추가한 후, 1.5mL를 멸균하여 7mL 튜브(튜브 #1)와 이후 번데기 해부에 사용되는 6개의 페트리 접시에 옮깁니다. 이 배시들은 아래에서 '해부 접시'라고 부릅니다.
참고: 페닐티오레아는 더듬이 조직의 검은색을 유발할 수 있는 산화효소활성 17, 18, 19를 억제합니다.
- 조건 3+2 매체:
- 30mL 튜브에 만니톨 67mg을, Leibovitz's 배지와 필터(0.2 μm)를 9mL 넣습니다. 그 다음 컨디셔널드 그레이스 미디엄 2부를 추가하세요.
- 만니톨 양을 Leibovitz와 Grace 배지의 삼투압에 따라 조절하여 조정된 3+2 배지의 삼투압을 370 ± 15 mOsmol/L로 만니톨 양을 조절합니다(튜브 #2).
- HBSS 배지: HBSS 12mL와 페니실린-스트렙토마이신 0.25mL를 첨가합니다. 삼투압을 370 mOsmol/L(약 216 mg 만니톨), pH를 6.7(HCl 1 M)로 조절한 후 멸균하세요(튜브 #3).
- HBSS-EGTA 배양지: 7mL 튜브에 에틸렌글리콜-비스(β-아미노에틸 에테르)-N,N,N′,N′-테트라아세트산(EGTA)과 미리 준비한 HBSS 용액 2 mL를 첨가합니다. pH를 6.7(NaOH 1 M)로 조절하고 멸균하세요(튜브 #4).
5. 번데기 해양 (그림 1)
참고: 70% 에탄올과 흡수성 종이로 겸자를 주기적으로 세척한 후 빠르게 불꽃으로 불태우세요. 검은 배경에 해부하면 안테나의 시각화가 용이합니다.
- 번데기는 2.5일에서 3일 된 것을 수돗물에 씻고, 그 다음 증류수로 헹구세요.
- 층류 후드 아래 페트리 접시에 20-25개의 번데기를 넣으세요.
- 보닛 아래에는 불꽃 2개의 비커가 있습니다. 한쪽은 70% 에탄올로, 다른 쪽은 멸균(오토클레이팅된) 증류수로 채우세요.
- 핀셋으로 번데기 4개를 70% 에탄올에 약 10초간 담갔다가 멸균 증류수에 담근 후 해부 페트리 접시 뚜껑에 옮기세요.
- 각 더듬이 주변의 큐티클을 불꽃 핀셋으로 잘라내고, 더듬이 쌍을 3+2 매체가 채워진 해부 접시로 옮기세요(그림 1A,B).
- 3+2 배지에서는 더듬이가 발달하는 관을 덮고 있는 모든 조직을 제거하여 더듬이와 번데기 큐티클만 남기고(그림 1C), 그 후 더듬이를 3+2 배지로 채운 새로운 접시로 옮깁니다(그림 1D).
참고: 그림 1E-J는 해부 과정의 이미지를 보여줍니다. - 더듬이가 자라는 관을 가세한 겸자로 열고 부드럽게 빼내세요. 안테나를 한 조각으로 분리하면 다음 세척(7.1-7.9단계)이 더 쉬워지는데, 안테나는 튜브 바닥으로 가라앉기 쉽습니다.
- 멸균 파스퇴르 피펫을 사용해 접시에서 일부 매질을 흡입한 후 다시 접시로 배출하여 피펫 내부 표면을 적시게 합니다. 이로 인해 피펫 안에서 안테나가 유리에 달라붙는 경향을 줄이는 데 도움이 됩니다. 그 후 피펫으로 해부된 더듬이를 3+2 1.5mL가 채워진 7mL 튜브(튜브 #1)로 옮깁니다.
- 20개의 번데기를 5.4 - 5.8단계로 반복하고, 튜브 #1에 20쌍의 더듬이를 모으세요.
6. 페트리 접시 준비
참고: 더듬이 세포는 행잉 컬럼 기법20을 사용하여 배양합니다. 이것은 페트리 접시를 준비해야 합니다. 미리 할 수 있습니다.
- 슬라이드에서 유리 조각(6-7mm × 6-7mm)을 잘라냈습니다. 에탄올에 보관하세요.
- 보닛 아래에서 유리 조각을 불태우고, 즉시 멸균(오토클레이드) 바셀린(예: 바셀린)에 담근 후 그림 2A에 표시된 페트리 접시에 배치합니다.
7. 세포의 해리 및 판금
참고: 아래에 설명하는 배지 교체의 경우, 더듬이 조직을 버리지 않고 멸균된 파스퇴르 피펫을 사용해 가능한 한 많은 배지를 제거하는 것이 중요합니다. 차가운 광원의 팔은 매질 내에 떠 있는 안테나를 더 선명하게 시각화하는 데 도움을 줍니다. 효소 해리와 기계적 분쇄는 더듬이 세포를 원심분리하여 파팽을 제거하는 것을 피하기 위해 동시에 시행하지 않고 순차적으로 수행됩니다.
- 파팽 알리코트와 파팽 용매 알리코트를 실온에 두세요.
- 튜브 #1의 3+2 배지를 해부된 안테나로 교체하고, 튜브 #3에서 나온 1mL의 HBSS를 넣고 10분간 기다리세요.
- HBSS 배지를 튜브 #4에서 1mL HBSS-EGTA로 교체하고 5분간 기다리세요.
- HBSS-EGTA 배지를 1mL HBSS로 교체하고 5분간 기다리세요.
- HBSS 배지를 1mL HBSS로 교체하고 5분간 기다리세요.
- 파팽 용매(900 μL)를 파팽 알리코트(100 μL)로 옮깁니다. 결과된 파팽 희석액의 pH(0.2-0.5 μL HCl 1M)의 색이 3+2 용액의 노란색과 다르면 조정하세요. pH를 측정하지 마세요. 측정하면 용액이 오염될 수 있습니다.
- HBSS 배지를 신선하게 희석한 파팽 용액 1mL로 교체하고 10-15분간 배양합니다. 효소 소화는 상온에서 수행하세요.
- 파팽 용액을 1mL HBSS + 50 μL FBS로 대체하고 5분간 기다려 파팽 활성을 비활성화합니다.
- HBSS 1mL로 5분간 두 번 헹구세요.
- HBSS 배지를 3+2 배양지 1mL로 교체하세요.
- 파스퇴르 피펫 끝을 분젠 버너로 불 광택 내어 개구 직경을 50-100 μm로 줄이세요(충분한 연습을 통해 육안으로 확인할 수 있습니다).
- 불로 연마한 파스퇴르 피펫으로 배지를 부드럽게 앞뒤로 피펫팅하여 더듬이 세포 다발이 보이지 않을 때까지 기계적으로 해리시킵니다. 매체는 흐릿하게 보여야 합니다.
- 3+2 배양액 2mL를 추가한 후 파스퇴르 피펫으로 세포를 배양지에 다시 현탁하여 균질한 세포 밀도를 유지합니다.
- 세포 현탁액을 20개의 페트리 접시(접시당 약 150 μL)로 나누어 나누어 사용합니다(그림 2B).
- 세포가 45분간 가라앉도록 두세요.
- 각 접시의 3+2 배지를 5% FBS를 보조한 150μL 처리된 3+2 배지로 교체하세요.
- 커버 슬립(그림 2C)을 추가하고 접시를 파라필름으로 밀봉하세요.
- 접시를 뒤집어 넣고(그림 2D), 인큐베이터 내 20°C에서 두 겹의 가습 흡수 조직 사이에 보관하세요.
8. 문화 매체의 변화
참고: 배양지의 절반은 4-7일마다 교체하세요.
- 접시를 점검하여 잠재적인 오염 여부를 확인하세요. 이로 인해 보통 색상이 바뀌는데(노란색에서 붉은색으로).
- 접시를 열고 커버슬립을 조심스럽게 떼어내세요. P100 마이크로피펫을 사용해 75 μL 배지를 제거하고, 5% FBS를 보충한 신선 변성 3+2 배지 85 μL로 교체합니다.
- 커버 슬립을 다시 끼우고, 파라필름으로 접시를 밀봉한 뒤, 이전처럼 20°C에서 흡수성 조직을 가습한 층 사이에 인큐베이터에 보관하세요.
결과
이 프로토콜은 곤충 ORN을 3-5주 동안 배양 상태로 유지할 수 있게 합니다. ORN은 형태학적으로 쉽게 식별할 수 있으며, 작고 둥근 또는 아몬드 모양의 세포체와 얇은 돌기(뉴라이트)가 특징이며, 배양 후 하루 만에 뚜렷하게 관찰되고 며칠에 걸쳐 계속 확장됩니다(그림 3B-D). 신경세포의 크기에 따라 두 개의 집단을 구분할 수 있는데, 대다수 뉴런은 5-7 μm, 소수는 10-12 μm이다(그림 3D). 아마도 작은 뉴런은 ORN이고, 큰 뉴런은 기계감각 뉴런일 가능성이 큽니다. 뉴런은 단극성 또는 양극성이며, 단독, 작은 군집, 또는 해리되지 않은 더듬이 외부 식물 내에 존재합니다. 이 세포들의 신경 정체성은 항HRP 항체를 이용한 면역세포화학을 통해 확인되었으며(그림 4), 곤충 신경생물학에서 뉴런 표지에 있어 표준적인 도구입니다21. 2주 후, 비신경세포, 아마도 교세포가 접시 표면에 연속적인 층을 형성하여 ORN이 성장하고 신경돌을 확장합니다(그림 5A,B).
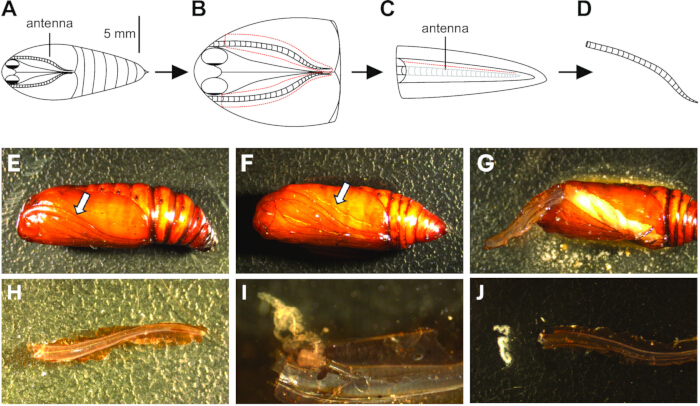
그림 1: 번데기 해부. (A) 번데기의 배쪽. (B) 큐티클은 더듬이 양쪽(빨간색 점선)을 둘러싸며, 번데기 깊숙이 침투하지 않고 성체 조직을 관통하지 않도록 주의합니다. 각 안테나는 부드럽게 제거되어 3+2 매질로 채워진 접시로 옮겨집니다. (C) 번데기 큐티클에 붙어 있던 모든 비더듬이 조직을 제거하고, 더듬이는 깨끗한 3+2 배지의 새로운 접시로 옮겨집니다. 발달 중인 안테나를 덮는 투명 막은 조심스럽게 잘라집니다(빨간 점선). (D) 안테나를 부드럽게 제거한다. (E) A에 해당하는 이미지를 보여줍니다. 흰 화살표는 안테나를 가리킵니다. (F) B에 해당하는 이미지를 보여줍니다. 흰 화살표는 큐티클에 난 절개 부위를 가리킵니다. (G) 안테나를 부드럽게 들어 올린 후 (H) 제거합니다. (I) 안테나가 발달하는 막을 갈라낸 후, 안테나는 원위 끝에서 기저부(J) 쪽으로 밀려나고 제거된다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
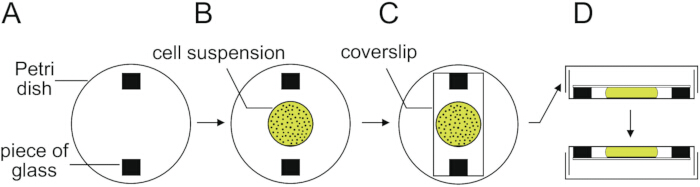
그림 2: 더듬이 세포 배양에 사용되는 행잉 컬럼 기법. (A) 35mm 접시 바닥에 멸균 바셀린으로 유리 두 조각을 붙인다. (B) 세포 현탁액을 접시 중앙에 부드럽게 도금하고 45분간 접시에 부착합니다. (C) 배양 배지를 교체한 후, 멸균 커버슬립을 유리 조각 위에 조심스럽게 부착하여 세포 현탁액을 덮고 제자리에 유지합니다. (D) 페트리 접시를 마침내 뚜껑으로 닫고 파라필름 스트립으로 밀봉합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
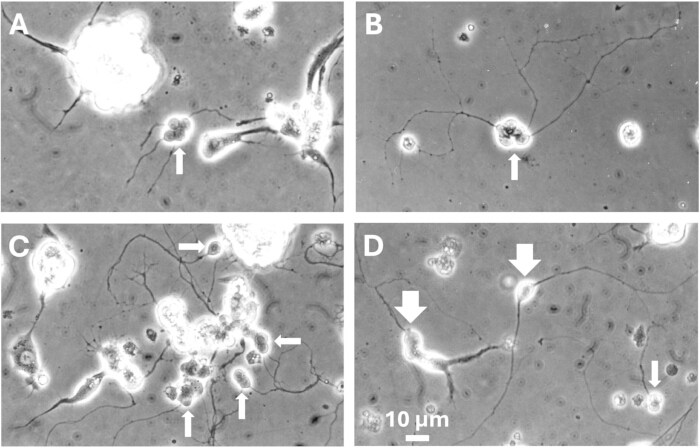
그림 3: M. brassicae 더듬이에서 본 젊은 배양 모습. (A) 1일 후, 신경근이 길어지기 시작합니다. (B) 2일 후, 신경근이 더 확장되어 보입니다. (C, D) 5일 후에는 신경 신경망이 더 조밀해집니다. ORN(흰색 화살표)은 형태학적으로 쉽게 구별할 수 있습니다. 이들은 단독으로 발견되거나 작은 무리를 이루어 발견됩니다. (C)에서 볼 수 있는 큰 세포 군집은 아마도 해리되지 않은 더듬이 제거된 식물일 가능성이 큽니다. 신경세포에서 나오는 신경세포가 이를 증명하듯, 뉴런을 포함할 수 있습니다. 작은 뉴런은 작은 화살표(A-D)로, 두 개의 큰 뉴런은 큰 화살표(D)로 표시됩니다. 스케일(10 μm)은 A에서 D까지 동일합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
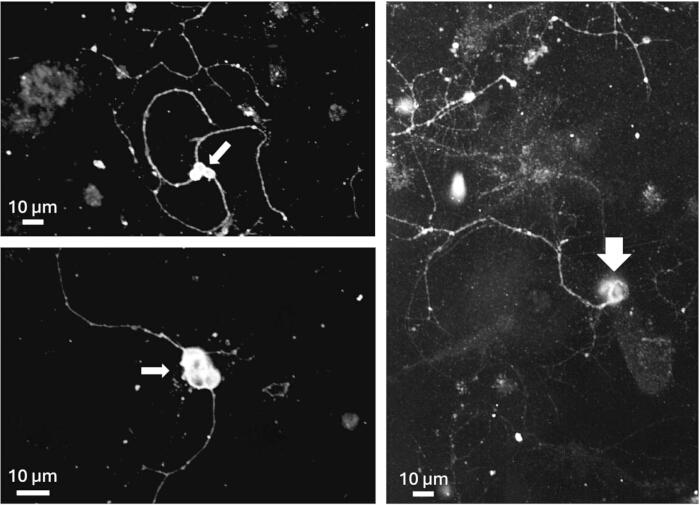
그림 4: 작은 화살표와 큰 화살표 신경세포에서 발생하는 항HRP 염색. 이 실험은 5일 된 배양균을 대상으로 수행되었습니다. 스케일 바: 10 μm. 자세한 프로토콜은13을 참조하세요. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
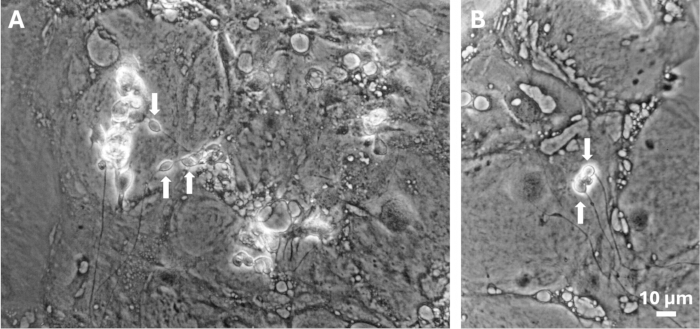
그림 5: M. brassicae 더듬이에서 나온 오래된 배양물 모습. (A,B) 2주간의 배양 후, 접시 표면은 비신경세포의 밀도 높은 층으로 덮입니다. 흰색 화살표는 ORN을 나타냅니다. 스케일(10 μm)은 A와 B에서 동일합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
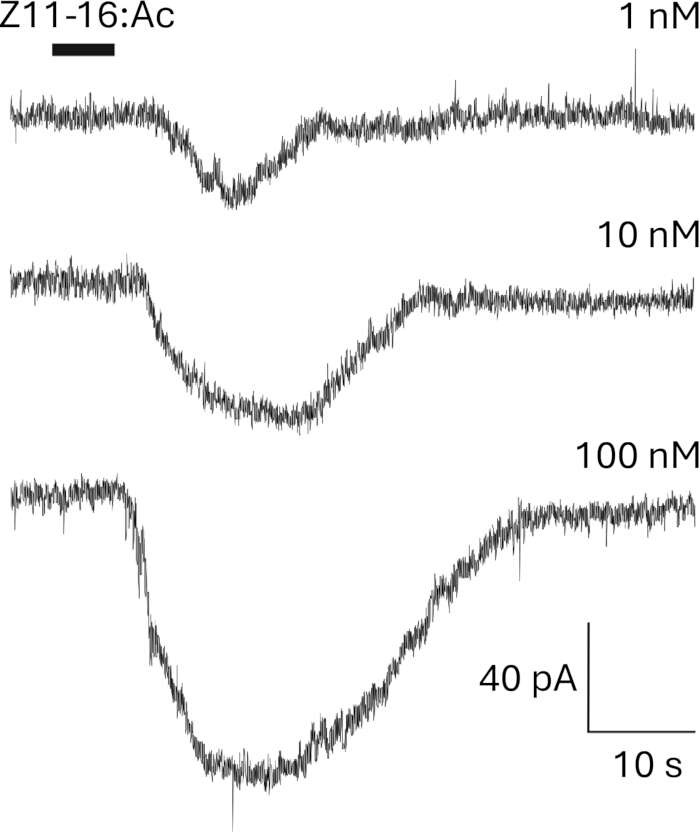
그림 6: 배양 내 뉴런은 최소 2주 이상 후각 자극에 반응한다. M. brassicae의 주요 페로몬 화합물인 Z11-16:Ac에 대한 반응은 패치-클램프 기법의 전체 세포 구성에서 기록할 수 있습니다. Z11-16:Ac는 디메틸설폭화물(DMSO)에 용해되었으며, 최종 농도는 0.1%를 넘지 않았습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
토론
프로토콜의 주요 단계는 다음과 같습니다: (i) 적절한 발달 단계에서 번데기 해부. 번데기가 너무 어릴 때는 더듬이 조직이 매우 적어 모으기가 매우 어렵고, 더듬이가 느슨하고 빠르게 퍼져 있기 때문입니다. 번데기가 너무 나이가 들면 더듬이 해리가 훨씬 쉬워지지만, ORN은 시험관 내에서 생존하지 못합니다. ORNs의 1차 배양을 준비한 3종에서 번데기 해부의 최적 단계는 반나절에 불과하며, 번데기를 20°C에서 유지할 경우 2.5-3일 사이임을 실험적으로 확인했습니다. (ii) 그레이스 배지와 Leibovitz의 L-15 배지를 혼합함. 그레이스 배지는 곤충 세포 성장을 지원하는 데 일반적으로 사용되며, 라이보비츠의 L-15 배지는 신경세포 성장을 지원합니다. (iii) 세포 도금 시 FBS 제거. 배지에 FBS 보조가 필요할 경우, 세포 현탁액이 포함된 페트리 접시 시딩에 사용되는 배지는 FBS가 없어야 하며, FBS는 세포 부착과 생존을 방해합니다. (iv) 고밀도 더듬이 세포 배양. 이는 ORN의 생존에 매우 중요합니다. (v) 행잉 컬럼 기법을 사용한다. 세포 성장을 촉진하고 배양 수명을 크게 연장합니다.
프로토콜의 잠재적 문제 중 하나는 파팽과의 잠복 시간(10-15분)을 파팽 배치와 100 μL 파파인 알리코트 준비 이후 경과 시간에 따라 조정해야 한다는 점입니다. 파팽은 -80 °C에 보관해도 점차 활성이 감소하기 때문입니다. 파팽 부화 기간 동안 더듬이의 외관이 눈에 띄게 변하지 않기 때문에, 육안으로 부화 시간을 평가할 수 없습니다.
근본적인 질문은 시험관 내 ORN의 구분에 관한 것입니다. 설명된 프로토콜에 따라 ORN은 3-5주 생존할 수 있습니다. 더듬이는 성체 출현 약 10일 전에 수집되며, ORN은 출현 1-2일 전에 완전히 기능을 갖추기 시작한다는 점을 고려할 때(EAG 및 단일 센서 기록(개인 관찰) 기준), 이 생존 기간은 이론적으로 시험관 내 분화에 충분한 시간을 제공합니다. ORN은 8,9,10,14,22,23,24,25,26의 이온 채널 다양성을 크게 나타내는 것으로 나타났습니다. 이들은 후각 자극에 용량 의존적으로 반응하는데(그림 6), 이는 적어도 부분적으로 시험관 내 정상적인 분화 과정을 따른다는 것을 나타냅니다.
곤충 ORN은 세 개의부속 세포로 둘러싸여 있으며, 이 세포는 센실라 구획을 경계하고 ORN 수상돌기가 목욕되는 센실라 림프의 이온 및 단백질 구성을 조절합니다. 이 부속 세포들은 특히 후각 결합 단백질(OBP)을 합성합니다. 이전 연구에서는 3-4주 된 배양에서 OBP의 높은 발현을 관찰했으며, 이는 부속 세포도 시험관 내에서 분화할 수 있음을 시사합니다. 배양의 한계는 배양된 ORN의 수상돌기가 센실라 림프에 있지 않다는 점인데, 이 림프는 혈림프보다 K+ 농도가 더 높고 Na+ 농도가 낮은 매질이기 때문에 이 두 구획 사이에 경상피 전위가 생깁니다30. 반대로, 세포 배양은 전기생리학적 특성 분석을 위한 보조 세포에 접근할 수 있게 해주는데, 이는 우리가 아는 한 이전에 시도된 적이 없는 접근법입니다.
흥미롭게도, S. littoralis 에 대한 예비 실험 결과, 이 프로토콜은 나방 세포 배양에도 적합함을 시사합니다. 비슷한 모양의 뉴런들, 아마도 미각 수용체 뉴런일 가능성이 적은 수로 관찰되었다.
1차 배양 양식은 패치 클램프 기록을 위한 곤충 ORN 접근이 용이합니다. 주요 단점은 두 배로, 세포를 높은 밀도로 배양해야 하므로 많은 더듬이를 해부해야 합니다; 이들은 1차 배양 배양으로, 새로운 배양을 정기적으로 준비해야 합니다. 하지만 크기가 작음에도 불구하고, 배양 품질이 좋다면 이러한 뉴런을 패치하는 것은 비교적 쉽기 때문에 그만한 가치가 있습니다.
공개 사항
저자들은 공개할 것이 없습니다.
감사의 글
저자들은 MRRL-CH1 세포주를 기증해 준 모니카 스텡글에게 감사의 뜻을 전합니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 10mL 주사기 | 아반토르 | 해당 없음 | |
| 2.5 mL 주사기 | 아반토르 | 해당 없음 | |
| 21mm x 26mm 표지 슬립 | 아반토르 | WVR - 631-1335 | |
| 76mm x 26mm 유리 슬라이드 | 아반토르 | WVR - 631-9460 | 두께: 1 mm 이상; 0.05 mm |
| 그리고 nbsp; 아크로디스크 수포르 PF, 0.8/0.2 & 뮤; m, 25mm | 아반토르 | WVR - 514-4102 | 저결합 주사기 필터 |
| 오토클레이브 | 특정 브랜드는 없습니다 | 해당 없음 | |
| 분젠 버너 | 특정 브랜드는 없습니다 | 해당 없음 | 페달로 조작할 수 있어야 합니다 |
| 코닝 팔콘 이지-그립 조직 배양 접시 35mm x 10mm. 코닝 353001 | 아반토르 | WVR - 734-0005 | 세포 배양용 멸균 페트리 접시 |
| D-만니톨 | 시그마-올드리치 | M9546 | 상온에서 보관 |
| 듀몽 #5 겸자 | 해당 없음 | ||
| EGTA | 시그마-올드리치 | E4378 | 상온에서 보관 |
| 팔콘: 50 mL, 25 cm & sup2, 플러그 씰, 조직 & nbsp; culture-treated | 아반토르 | WVR - 734-0009 | 세포 배양 플라스크 |
| 태아 소 혈청 | 서모피셔 사이언티픽 | A3160801 | -20도에서 저장하세요; C |
| 그레이스 곤충 배지에 락트알부민 가수분해액과 효모화 (1x)-Gibco가 보완됩니다 | 서모피셔 사이언티픽 | 11605045 | 그레이스의 곤충 미디엄이 보조되었습니다. 5 & deg; C |
| 칼슘 및 마그네슘 없는 HBSS 깁코 | 서모피셔 사이언티픽 | 14170138 | 행크스 밸런스 소금 솔루션(HBSS). 5 & deg; C |
| 개별 포장된 혈청학적 피펫, 매 | 아반토르 | WVR - 734-0352 | 멸균 일회용 10 mL 피펫 |
| 개별 포장된 혈청학적 피펫, 매 | 아반토르 | WVR - 734-0343 | 멸균 일회용 25mL 피펫 |
| L15 중형 - 깁코 & nbsp; | 서모피셔 사이언티픽 | 11415056 | 라이보비츠의 L-15 중형 엔진. 5 & deg; C |
| 층류 조직 배양 후드 | 특정 브랜드는 없습니다 | 해당 없음 | |
| N-페닐티오우레아 | 시그마-올드리치 | P7629 | 상온에서 보관 |
| 파팽 | 시그마-올드리치 | P5306 | 무균 채우기로 된 용하건조 분말. -80 & deg에서 저장; C |
| 파라필름 | 시그마-올드리치 | P7793 | |
| 파스퇴르 피펫 플러그 면솜 사용 - 150 mm | 특정 브랜드는 없습니다 | 오토클레이브는 그대로 (면 플러그 사용) 후드 아래에 멸균 상자에 보관하세요 | |
| 페니실린-스트렙토마이신 | 시그마-올드리치 | P4333 | 페니실린-스트렙토마이신: 5000 UI/ml + 5000 & 마이크로; g/ml. 스토어 -20° 1mL 멸균 알리코트에 C를 넣어 |
| pH 측정기 | 특정 브랜드는 없습니다 | ||
| 피펫 제어기 | 아반토르 | WVR - 612-7179 | 저렴한 대안으로는 수동 피펫 & nbsp 사용이 있습니다; 컨트롤러(예: 피펫 펌프 또는 벨-아트 피펫 펌프) |
| 냉장 인큐베이터 | PHC 유럽 | 모델 MIR-154-PE | CO2 농도 조절 시스템은 곤충 배양 배지의 pH 조절에는 불필요합니다 |
| 입체 현미경 | 특정 브랜드는 없습니다 | 10배에서 64배 배율까지 탑재 및 nbsp; 냉광원과 유연한 광원 가이드 | |
| 번데기 해부용 멸균 페트리 접시 | 아반토르 | WVR - 391-0868 | 멸균 접시는 어떤 것도 사용할 수 있습니다 |
| 스크류 캡이 달린 스테릴린 용기, 30 mL | 아반토르 | WVR - 215-0321 | 30 mL 멸균관 |
| 스테릴린 용기와 스크류 캡, 7 mL | 아반토르 | WVR - 215-0328 | 7mL 멸균관 |
| 바셀린 | 시그마-올드리치 | 무방비 보관 시 실온에 보관; 바셀린 |
참고문헌
- Gadenne, C., Barrozo, R., Anton, S. Plasticity in insect olfaction: To smell or not to smell. Annu Rev Entomol. 61, 317-333 (2016).
- Hansson, B. S. Olfaction in lepidoptera. Experientia. 51, 1003-1027 (1995).
- De Bruyne, M., Baker, T. C. Odor detection in insects: Volatile codes. J Chem Ecol. 34 (7), 882-897 (2008).
- Ayer, R. K., Carlson, J. Olfactory physiology in the Drosophila antenna and maxillary palp: Acj6 distinguishes two classes of odorant pathways. J Neurobiol. 23 (8), 965-982 (1992).
- Zufall, F., Hatt, H. Dual activation of a sex pheromone-dependent ion channel from insect olfactory dendrites by protein kinase C activators and cyclic GMP. Proc Natl Acad Sci U S A. 88, 8520-8524 (1991).
- Dubin, A. E., Harris, G. L. Voltage-activated and odor-modulated conductances in olfactory neurons of Drosophila melanogaster. J Neurobiol. 32, 123-137 (1997).
- Cao, L. H., et al. Distinct signaling of Drosophila chemoreceptors in olfactory sensory neurons. Proc Natl Acad Sci U S A. 113 (7), E902-E911 (2016).
- Kadala, A., Charreton, M., Jakob, I., Le Conte, Y., Collet, C. A use-dependent sodium current modification induced by type I pyrethroid insecticides in honeybee antennal olfactory receptor neurons. Neurotoxicology. 32 (3), 320-330 (2011).
- Lucas, P., Shimahara, T. Voltage- and calcium-activated currents in cultured olfactory receptor neurons of male Mamestra brassicae (lepidoptera). Chem Senses. 27 (7), 599-610 (2002).
- Stengl, M. Intracellular-messenger-mediated cation channels in cultured olfactory receptor neurons. J Exp Biol. 178, 125-147 (1993).
- Stengl, M., Hildebrand, J. G. Insect olfactory neurons in vitro: Morphological and immunocytochemical characterization of male-specific antennal receptor cells from developing antennae of male Manduca sexta. J Neurosci. 10 (3), 837-847 (1990).
- Gascuel, J., Masson, C., Bermudez, I., Beadle, D. J. Morphological analysis of honeybee antennal cells growing in primary cell cultures. Tissue Cell. 26 (4), 551-558 (1994).
- Lucas, P., Nagnan-Le Meillour, P. Primary culture of antennal cells of Mamestra brassicae: Morphology of cell types and evidence for biosynthesis of pheromone-binding proteins in vitro. Cell Tissue Res. 289 (2), 375-382 (1997).
- Pézier, A., et al. Calcium activates a chloride conductance likely involved in olfactory receptor neuron repolarisation in the moth Spodoptera littoralis. J Neurosci. 30 (18), 6323-6333 (2010).
- Eide, P. E., Caldwell, J. M., Marks, E. P. Establishment of two cell lines from embryonic tissue of the tobacco hornworm, Manduca sexta (L). In Vitro. 11 (6), 395-399 (1975).
- Huettner, J. E., Baughman, R. W. Primary culture of identified neurons from the visual cortex of postnatal rats. J Neurosci. 6 (10), 3044-3060 (1986).
- Ryazanova, A. D., Alekseev, A. A., Slepneva, I. A. The phenylthiourea is a competitive inhibitor of the enzymatic oxidation of dopa by phenoloxidase. J Enzyme Inhib Med Chem. 27 (1), 78-83 (2012).
- Hunt, A. J., Sherman, K. D., Weintraub, S. T. Characterization of phenoloxidases from larval cuticle of Sarcophaga bullata and a comparison with cuticular enzymes from other species. Can J Zool. 65 (11), 2501-2508 (1987).
- Zufelato, M. S., Lourenco, A. P., Simoes, Z. L., Jorge, J. A., Bitondi, M. M. Phenoloxidase activity in Apis mellifera honey bee pupae, and ecdysteroid-dependent expression of the prophenoloxidase mRNA. Insect Biochem Mol Biol. 34 (12), 1257-1268 (2004).
- Lees, G., Beadle, D. J. Cell Culture Approaches to Invertebrate Neuroscience. Beadle, D. J., Lees, G., Kater, S. B. , Academic Press. London. 109-147 (1988).
- Jan, L. Y., Jan, Y. N. Antibodies to horseradish peroxidase as specific neuronal markers in Drosophila and in grasshopper embryos. Proc Natl Acad Sci U S A. 79 (8), 2700-2704 (1982).
- Pézier, A., Acquistapace, A., Renou, M., Rospars, J. P., Lucas, P. Ca2+ stabilizes the membrane potential of moth olfactory receptor neurons at rest and is essential for their fast repolarization. Chem Senses. 32 (4), 305-317 (2007).
- Dolzer, J., Krannich, S., Stengl, M. Pharmacological investigation of protein kinase C- and cGMP-dependent ion channels in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. Chem Senses. 33 (9), 803-813 (2008).
- Krannich, S., Stengl, M. Cyclic nucleotide-activated currents in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. J Neurophysiol. 100 (5), 2866-2877 (2008).
- Stengl, M. Inositol-triphosphate-dependent calcium currents precede cation currents in insect olfactory receptor neurons in vitro. J Comp Physiol A. 174 (2), 187-194 (1994).
- Laurent, S., Masson, C., Jakob, I. Whole-cell recording from honeybee olfactory receptor neurons: Ionic currents, membrane excitability and odourant response in developing worker bee and drone. Eur J Neurosci. 15 (7), 1139-1152 (2002).
- Steinbrecht, R. A. Pheromone Biochemistry. Prestwich, G. D., Blomquist, G. J. , Academic Press. Orlando. 353-384 (1987).
- Kaissling, K. E. R. H. Wright Lectures on Insect Olfaction. , Simon Fraser University, Burnaby. B.C., Canada. (1987).
- Kaissling, K. E., Thorson, J. Receptors for Neurotransmitters, Hormones and Pheromones in Insects. Sattelle, D. B., Hall, L. M., Hildebrand, J. G. , Elsevier, North Holland Biomedical Press. Amsterdam. 261-282 (1980).
- Gu, Y., Lucas, P., Rospars, J. P. Computational model of the insect pheromone transduction cascade. PLoS Comput Biol. 5 (3), e1000321(2009).