본 프로토콜은 안정적인 단일 채널 기록을 수행하기 위해 증폭 장치가 통합된 소형화된 Montal–Mueller 평면 지질 이중층 시스템의 사용법을 설명합니다. 이 방법은 정제된 합성 K2P 채널을 재구성하여 시스템 성능을 검증함으로써 입증됩니다.
방법 논문
합성 K2P 채널 기록을 위한 소형화된 Montal–Mueller 평면 지질 이중층 시스템을 이용한 단일 채널 전기생리학
이 논문에서
요약
초록
평면 지질 이중층으로 이온 채널을 기능적으로 재구성하는 것은 단일 분자 수준에서 채널 활성을 조사하는 전략을 제공합니다. 그러나 기존의 Montal–Mueller 이중층 시스템은 일반적으로 부피가 큰 실험 설정, 수동 챔버 조립 및 상대적으로 큰 기록 부피가 필요하며, 이는 시약 소모를 증가시키고 연장된 배선 및 외부 헤드스테이지로 인해 추가적인 전기적 노이즈원을 유발할 수 있습니다. 본 연구에서는 시약 소모를 줄이고 조작을 단순화하여 안정적인 단일 채널 기록이 가능한 소형 앰플리파이어 통합형 소형 즉시 사용 가능 이중층 플랫폼(BLMchipMM)을 제시합니다. 본 프로토콜은 단일 채널 전기생리학적 측정을 수행하기 위한 이 시스템의 사용법을 설명합니다. 본 시스템을 사용하여 합성 K2P 채널(ancTREK1)을 재구성하였으며, 이를 원리 증명 테스트 단백질로 사용하여 재구성과 단일 채널 기록을 검증하였습니다. 단일 채널 기록 결과, Mg2+가 없는 대칭 K+ 용액에서 전류-전압 관계가 나타났으며, 전도도 값은 TREK1 채널에 대해 보고된 값과 일치했습니다. 이러한 K2P 유사 채널의 성공적인 재구성은 인공 막 내 단일 채널 분석을 위한 이 시스템의 유용성을 입증합니다.
서론
블랙 지질 막(black lipid membranes, BLMs)으로도 알려진 인공 지질 이중층 막으로의 이온 채널 재구성은 단일 분자 수준에서 이온 채널의 전기생리학적 특성을 분석하기 위한 확립된 기술 중 하나입니다1. BLMs의 장점은 그 구조에서 비롯됩니다. 실제로 평면 지질 이중층(planar lipid bilayer, PLB)은 비극성 표면의 구멍 내에 생성되어 두 액체 용액을 분리합니다. 따라서 생체막을 모방함으로써 막 지질 조성과 전해질 또는 화학 화합물 농도를 포함한 매우 제어된 조건 하에서 이온 채널 활성을 기록할 수 있으며, 동시에 양측 모두에서 접근이 가능합니다. 이러한 접근성 덕분에 예를 들어 미셀 용액으로부터 또는 리포좀 유도 융합을 통해 이온 채널을 직접 삽입할 수 있습니다2,3.
최초로 기술된 인공 막 시스템은 페인팅 기법4을 사용하여 제작되었으며, 이 방법은 비휘발성 유기 용매에 용해된 지질 방울을 붓으로 작은 구멍(aperture)에 도포하는 방식입니다. 이후 구멍의 양측에 수용액을 첨가하면 지질 이중층이 자발적으로 형성됩니다. 하지만 이 방법의 큰 단점은 용매의 흔적이 남아 막의 특성에 영향을 줄 수 있다는 점입니다. 지질 이중층 내 잔류 유기 용매의 양을 줄이기 위해 폴딩 방법5이 개발되었으며, 이를 통해 "용매가 없는(solvent-free)" BLM을 형성할 수 있게 되었습니다. 이 접근법에서는 휘발성 용매에 포함된 지질 용액을 수면에 퍼뜨려 두 개의 단분자층을 형성하고, 구멍 위의 수성 상의 높이를 점진적으로 높임으로써 지질 단분자층이 구멍 위로 접혀 이중층을 형성하게 합니다. 그러나 이렇게 생성된 BLM은 용매가 없는 것으로 정의되지만, 성공적인 이중층 형성을 위해서는 구멍을 비휘발성 용매의 얇은 층으로 전처리해야 합니다. 이러한 실험에 필요한 핵심 요소는 작은 구멍(지름 50–250 µm)이 있는 친지질성 격벽으로 분리된 두 개의 수성 구획(일반적으로 cis 및 trans라고 함)을 갖춘 기록 챔버로 구성됩니다(그림 1). 각 구획에는 은/염화은(Ag/AgCl) 전극이 삽입됩니다. 전해질 용액에 담긴 이 전극들은 지질 이중층과 기록 장치 사이의 전기화학적 연결을 구축합니다. 기록 장치는 전압 클램프 증폭기로 구성되며, 이를 통해 막 전위를 정밀하게 제어하고 내장된 공공 형성 단백질을 통과하는 이온 전류를 동시에 측정할 수 있습니다.
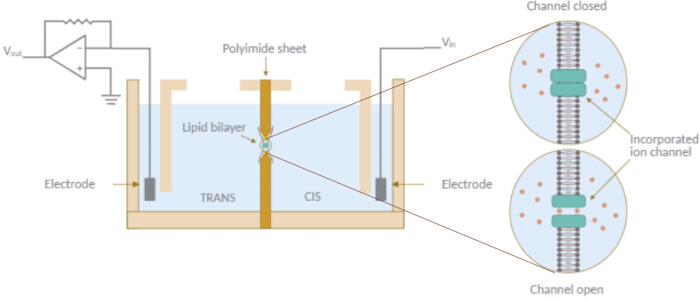
그림 1: 평면 지질 이중층(PLB) 전기생리학적 설정의 모식도. PLB 실험에 필요한 핵심 구성 요소의 모식도이다. 기록 챔버는 지질 이중층이 형성되는 구멍(aperture)이 있는 친지성 격막(septum)으로 분리된 두 개의 수성 구획(cis 및 trans)으로 구성된다. 각 구획의 전해질 용액에는 은/염화은(Ag/AgCl) 전극이 담겨 있다. 한쪽 전극은 전압 자극(예: 사인파, 사각파 또는 삼각파 형태)을 가하며, 접지된 다른 쪽 전극은 이온 전류를 비례하는 전압 신호로 변환하는 전류-전압 변환기에 연결된다. 이 신호는 증폭되고, 선택적으로 필터링 및 디지털화되어 실시간 모니터링과 분석을 위해 기록된다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
BLM을 형성하기 위한 다른 방법들도 확립되어 왔습니다. 이 중 일반적인 접근 방식은 패치 클램프 피펫 끝단에 현탁된 지질 이중층을 생성하는 것입니다. 이에 따라, 팁-딥(tip-dip)법6은 공기-물 계면의 지질 단일층에 피펫 팁을 반복적으로 담가 각 통과 시마다 단일 리플렛(leaflet)을 포착함으로써, 직경 ~4 µm의 유리 마이크로피펫 구멍 위에 용매가 없는 현탁 지질 이중층을 형성할 수 있게 합니다. 패치 클램프 기술은 지질 이중층의 단일 채널 측정을 위해서도 사용되었습니다. 예를 들어, 펀치-아웃(punch-out)법7에서는 직경 10에서 80 µm 사이의 유리 피펫을 사용하여 기록 챔버의 구멍 위에 처음 도포된 커다란 막의 일부를 패치합니다. 또는, 리포좀-패치(liposome-patch)법은 미리 형성된 나노에서 마이크로 크기의 소포를 용매가 없는 BLM으로 사용하는 방식을 포함합니다8,9. 특히, 거대 단일층 소포(giant unilamellar vesicles)는 세포 부착(cell-attached) 및 절제 패치(excised patch) 모드를 포함한 다양한 패치 클램프 구성의 단일 채널 기록에 널리 사용되어 왔습니다10,11.
여러 개의 이중층을 병렬적이고 자동화된 방식으로 형성하기 위한 여러 플랫폼 또한 등장했습니다. 그중 하나는 수성 액적을 지질-용매 혼합물에 배치하는 액적 인터페이스 이중층(droplet interface bilayer, DIB) 기술12입니다. 이 방법에서는 지질 단일층이 액적 주변으로 자발적으로 조립되며, 두 액적이 접촉할 때 이중층 형성이 일어납니다. 일부 설정에서는 막 안정성을 향상시키기 위해 하이드로젤 상에 DIB를 형성할 수 있습니다13. 유리 피펫 끝단에서의 DIB 형성을 기반으로 한 대안적인 접근 방식은 접촉 기포 이중층(contact bubble bilayer, CBB) 방법14으로, 여기서는 두 개의 마이크로피펫을 사용하여 오일 상에 수성 기포를 도입합니다. DIB 방식과 마찬가지로, 지질로 코팅된 두 기포가 접촉하면 지질 이중층이 자발적으로 형성됩니다. 또 다른 플랫폼은 격자 패턴으로 배열된 잘 정의된 마이크로-나노 규모 기공 배열로 구성된 어레이형 BLM 시스템입니다. 이러한 시스템에서 부유 지질 이중층은 페인팅 또는 폴딩 기술을 이용해 수동으로 형성하거나 리포좀 소포 파열15,16,17을 통해 형성할 수 있으며, 마이크로플루이딕 채널 구조와 결합할 경우 지질 및 완충액의 순차적 주입을 통해 자동으로 형성할 수 있습니다18,19.
용매-무첨가 BLM을 형성하기 위해 많은 방법이 개발되었지만, 본 연구에서는 인공 지질 이중층에 내장된 막 단백질의 단일 채널 거동을 조사하기 위해 소형화 및 통합된 플랫폼 내에서 구현된 폴딩 방법(folding method)에 집중합니다. 실험은 Elements 설정으로 수행되었으며, 이는 Elements 나노포어 리더(eNPR 증폭기)와 BLMchipMM(그림 2A 및 그림 2B)의 두 가지 구성 요소로 이루어져 있습니다. 전자는 소형 저잡음 전압-클램프 증폭기로서, 완전하고 독립적인 단일 유닛을 형성하여 작업 공간을 단순화하고 추가적인 외부 장치의 필요성을 제거합니다. BLMchipMM은 Montal–Mueller 기술을 위해 설계된 사전 조립된 소형 시스템으로, 실험 인터페이스 역할을 합니다. 이는 인쇄 회로 기판(PCB)과 통합된 투명 폴리메틸메타크릴레이트(PMMA) 기록 챔버로 구성되며, PCB에는 증폭기와 직접 연결되는 전극 역할을 하는 Ag/AgCl 와이어를 수용하도록 설계된 두 개의 소켓이 포함되어 있습니다. 챔버의 핵심 구조는 두 개의 투명 PMMA 구성 요소 사이에 밀봉된 폴리이미드 격막(septum)으로 이루어져 있습니다. 격막의 두께는 50 µm이며, 이중층 형성을 용이하게 하기 위해 작은 중앙 영역(3.78 mm2)만 25 µm로 얇게 제작되었습니다. 이 얇은 영역의 중심에는 레이저 드릴링으로 테이퍼형 구멍(tapered aperture)이 만들어져 있으며, 이는 지질 이중층의 기계적 안정성을 향상시킵니다20,21. 네 가지 구멍 직경(50, 75, 100, 140 µm)을 사용할 수 있어 막 커패시턴스(membrane capacitance)를 조절할 수 있습니다(표 1). 각 PMMA 구성 요소에는 110 µL 부피의 C자형 공동(cavity)이 있어, 폴리이미드 격막 양쪽에 전해질 용액을 담기 위한 두 개의 유체 구획을 형성합니다. 각 PMMA 블록의 반대편에는 두 개의 기울어진 유체 채널이 뚫려 있습니다. 한쪽 채널은 Ag/AgCl 전극을 삽입하는 데 사용되며, 다른 쪽 채널은 피펫팅을 통해 저장소 내의 버퍼 수준을 수동으로 조절하는 데 사용됩니다.
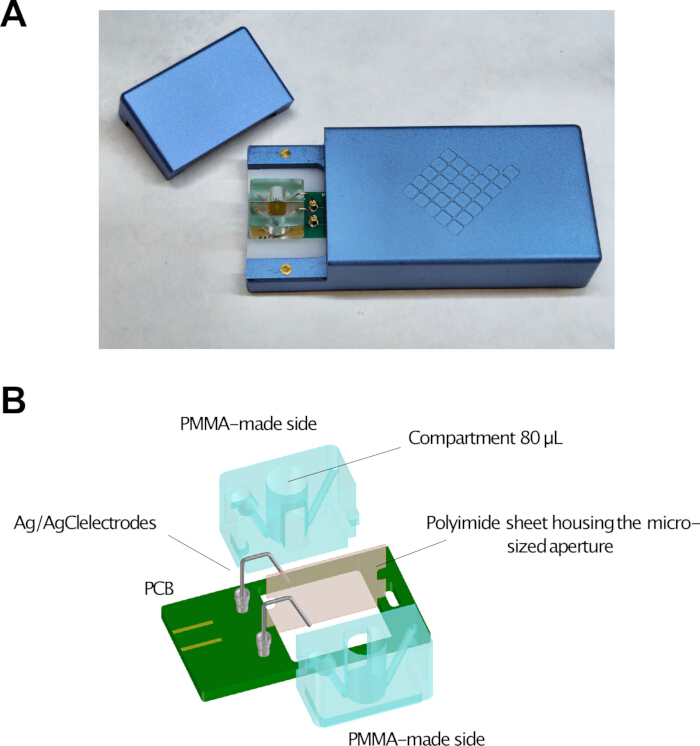
그림 2: 통합 Elements Nanopore Reader 및 BLMchipMM 시스템. (A) BLMchipMM이 Elements Nanopore Reader (eNPR) 증폭기의 전용 슬롯에 삽입된 모습을 보여주는 사진. (B) 폴리메틸 메타크릴레이트 (PMMA) 기록 챔버, 마이크로 크기의 구멍이 포함된 폴리이미드 격막, 그리고 Ag/AgCl 전극용 소켓과 챔버 정렬용 슬롯이 있는 인쇄 회로 기판 (PCB)을 포함한 BLMchipMM 구성 요소의 도식적 표현. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
| 구멍 직경 (µm) | 50 | 75 | 100 | 140 |
| 구멍 두께 (µm) | 25 | 25 | 25 | 25 |
| 전형적인 막 전위 용량(pF) | 20–40 | 40–60 | 60–90 | 90–140 |
표 1: 사용 가능한 BLMchipMM 어퍼처 형식의 특성. 50, 75, 100 및 140 µm 어퍼처를 가진 BLMchipMM 장치의 구멍 직경, 어퍼처 영역의 격막 두께 및 전형적인 막 커패시턴스 값. 막 커패시턴스 값은 1,2-diphytanoyl-sn-glycero-3-phosphocholine 지질로 형성된 이중층에 대해 표시됨.
일반적으로 연구실에서 사용되는 기록 챔버는 자체 제작한 장치이거나 상용 제품입니다. 전자의 경우, 시스템 구축을 위해 다양한 구성 요소를 조립하고 격막에 구멍을 뚫기 위한 신뢰할 수 있는 방법을 개발해야 하므로, 많은 연구실에서 접근성이 제한될 수 있습니다. 상용 장치를 사용하는 경우에도 실험 전 매번 여러 구성 요소를 수동으로 통합해야 하는 경우가 많습니다. 이에 반해, BLMchipMM은 사전 조립된 형태로 제공되어 일상적인 세척 절차를 위해 실험 사이에 장치를 분해할 필요가 없습니다. 사용된 용매가 장치 재질과 호환된다면, 동일한 유닛을 세척하여 막 형성 품질의 저하 없이 여러 실험에 재사용할 수 있습니다. 이는 사용자 간의 변동성을 줄이고 수동 밀봉 요소와 관련된 누출 위험을 최소화합니다. 또한, 외부에서 교체 및 재생이 가능한 은선 전극을 사용하여, 특히 전극 소모가 가속화되는 실험 조건에서 시스템의 가동 수명을 더욱 연장할 수 있습니다.
또한, 수제 장치는 종종 챔버 부피가 커서 실험에 필요한 생물학적 및 화학적 성분의 양이 증가하는 경우가 많습니다. 반면, BLMchipMM의 소형화는 실험 부피를 최소화할 수 있게 하여 시약, 단백질 및 기타 화합물의 소모량을 크게 줄여줍니다. 이는 발현이 어렵거나 수율이 낮은 막 단백질을 다룰 때, 또는 테스트 화합물의 합성 비용이 높아 전체 실험 비용이 증가하는 경우에 특히 유리합니다. 중요한 점은, BLMchipMM이 용매가 최소화된 이중층 형성을 가능하게 하고, 각 층(leaflet)이 서로 다른 지질 종으로 구성될 수 있는 비대칭 막 구성을 지원하여5,22 제어된 조건에서 막 단백질의 기능을 연구하는 것을 용이하게 한다는 것입니다.
전통적으로 전류 측정은 패치 클램프 실험용으로 설계된 증폭기를 사용하여 수행되며, 이는 데이터 수집 및 그래픽 인터페이스를 통한 제어를 위해 별도의 디지타이저 연결이 필요한 경우가 많습니다. 이러한 시스템은 부피가 크고 고가일 뿐만 아니라, 비전문가 사용자에게는 설정 절차가 직관적이지 않은 경우가 빈번합니다. 또한, 기록 챔버의 크기와 표준 증폭기의 설계 특성상—일반적으로 헤드스테이지 입력단을 정전기 간섭으로부터 보호하는 내장 차폐 장치가 부족함—외부 패러데이 케이지(Faraday cage)의 사용이 필수적인 경우가 많습니다. 이러한 케이지의 품질과 접지 상태는 시스템의 노이즈 성능에 상당한 영향을 미칠 수 있습니다. BLMchipMM을 소형 통합 증폭기와 함께 사용하면 외부 구성 요소의 필요성을 줄여 이러한 구성을 단순화할 수 있습니다. 신호 디지타이징이 장치 내부에서 이루어지며, 시스템 하우징이 주변 전자기 간섭에 대한 민감도를 낮추는 차폐 기능을 제공합니다.
이 플랫폼의 적용 가능성을 입증하기 위해, TREK 하위 가족의 계산적으로 도출된 조상 구성원인 K2P-유사 채널 ancTREK1(부록 그림 1)을 테스트 단백질로 사용하여 성공적인 재구성과 단일 채널 기록을 검증하였습니다. K2P 채널은 휴지 막 전위와 세포 흥분성을 조절하는 이량체 칼륨 누출 채널을 형성하며, TREK 채널은 잘 알려진 하위 가족에 해당합니다.
프로토콜
본 연구는 인간 참여자, 인간 유래 물질 또는 동물 피험자를 포함하지 않았습니다. 따라서 기관 및 국가 지침에 따라 윤리적 승인이 필요하지 않았습니다.
1. 전기생리학 장치 준비
- 기기 교정
시스템이 공장 설정되어 있어 정식 교정은 필요하지 않으나, 막 형성 전에 시스템 기능이 적절한지 확인하십시오.- 개방 회로 조건(즉, BLMchipMM을 삽입하지 않은 상태)에서 입력 저항을 측정하십시오. 측정된 저항이 ≥1 TΩ이어야 하며, 이는 증폭기 입력 무결성이 적절함을 확인하는 것입니다.
- 1 GΩ 저항기가 포함된 모델 셀을 사용하여 시스템 응답을 확인하십시오. 측정된 저항은 통합 저항기의 허용 오차와 일치하는 ±30% 범위 내의 1 GΩ이어야 합니다.
- 일정 전압(0 mV)의 개방 회로 조건에서 기선 노이즈를 측정하십시오. 10 kHz 샘플링 속도와 5 kHz 대역폭에서 RMS 노이즈가 ≤300 fA여야 하며, 이는 저노이즈 시스템 성능을 확인하는 것입니다.
- Ag/AgCl 전극 준비
- 처음 사용할 때는 은선을 에탄올과 2회 증류수로 헹굽니다.
- 이전에 사용한 전선의 경우, 초미세 연마지를 사용하여 전선 표면의 오래된 Ag/AgCl 층을 제거하십시오. 표면이 잔여물 없이 깨끗한 금속 광택을 띠며 균일하게 밝은 은색으로 보일 때까지 제거합니다. 그 후 에탄올과 2회 증류수로 헹굽니다.
- 은선이 연한 회색이 될 때까지 1%–5% 차아염소산나트륨(NaOCl) 용액에 담가 단말 부분을 염소화하십시오(그림 3A). 통상적으로 15–30분 정도 소요됩니다. 사용 중 색상 변화, 기선 전류의 드리프트 또는 두 가지 모두가 나타나는 전선의 퇴화 여부를 지속적으로 모니터링하십시오.
참고: 염소화는 일반 가정용 표백제(1%–5% NaOCl)를 사용하여 수행할 수 있습니다.
주의: 전선의 전체 길이를 염소화하지 마십시오. 적절한 전기적 연결을 위해 PCB 소켓에 들어가는 단말 부분은 염소화하지 않은 상태로 두십시오.
주의: PCB의 소켓은 직경 0.5 mm의 은선에 맞게 설계되었습니다. 다른 직경의 전선은 제대로 맞지 않거나 연결이 불안정할 수 있습니다.
- BLMchipMM 조립
- 두 은선의 염소화되지 않은 단말 부분을 PCB 소켓에 삽입하십시오. 필요한 경우 핀셋을 사용하여 정확하게 배치하십시오(그림 3B).
- 전선의 염소화된 끝부분을 PMMA 구성 요소에 뚫린 유체 채널에 배치하십시오(그림 3C).
- BLMchipMM을 천천히 회전시켜 PMMA 기록 챔버의 하단 돌기를 전용 슬롯에 맞추어 PCB에 장착하십시오(그림 3D).
- 전선의 위치를 확인하고 유체 채널 끝까지 도달했는지 확인하십시오. 필요한 경우 전선의 끝이 구획 바닥에 보일 때까지 전선을 살짝 밀어 넣으십시오(그림 3E).
주의: 전선을 PMMA 구성 요소에 최대한 가깝게 배치하십시오. 곡률이 너무 심하면 증폭기 덮개와 접촉하여 단락 및 신호 포화가 발생할 수 있습니다.
- 지질 및 기록 용액 준비
- 셉텀 개구부를 전처리하기 위해 100% n-hexane에 1% (v/v) 헥사데칸 용액 100 µL를 준비하십시오. 이 용액은 −20°C에서 최대 일주일 동안 보관하십시오.
- 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) 지질을 100% n-pentane에 최종 농도가 15 mg/mL가 되도록 재현탁하십시오. 이 용액은 −20°C에서 최대 24시간 동안 보관하십시오.
- 1 M KCl 스톡 용액 3 mL와 1 M 4-(2-hydroxyethyl)-1-piperazineethanesulfonic acid 스톡 용액(pH 미터를 사용하여 KOH로 pH 7.4로 조정한 것) 150 µL를 혼합하여 상온(RT; 20°C–25°C)에서 전해질 기록 용액을 준비하십시오. 2회 증류수를 추가하여 최종 부피를 15 mL로 맞춥니다. 용액은 4°C에서 최대 일주일 동안 보관하십시오(표 2).
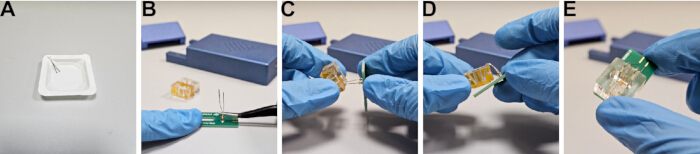
그림 3: BLMchipMM 장치의 조립. (A) 표백제 침지를 통한 Ag 와이어의 염소화. (B) PCB 소켓에 Ag 와이어 삽입. (C) 마이크로플루이딕 채널 내 Ag 와이어 배치. (D) PCB 위에 기록 챔버 배치. (E) 유체 채널 내 전극의 적절한 배치 확인. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
| 시약 | 최종 농도 | 부피 |
| 2회 증류수 | — | 15 mL까지 추가하십시오. |
| 염화칼륨 (KCl) (1 M) | 200 mM | 3 mL |
| HEPES pH 7.4 (KOH) (1 M) | 10 mM | 150 µL |
표 2: 전해질 기록 용액. 시약 농도 및 조제 부피를 포함한 PLB 기록용 전해질 용액의 조성입니다. 최종 부피는 이중 증류수로 15 mL까지 맞춥니다. 기록 용액은 사용 전 0.2 µm 시린지 필터를 사용하여 여과해야 합니다.
참고: 기록 용액은 사용 전 0.2 µm 시린지 필터로 여과하십시오. DPhPC 지질은 건조 분말 형태 또는 클로로포름에 용해된 형태로 제공될 수 있습니다. 산화를 방지하기 위해 두 형태 모두 불활성 가스 하에 밀봉된 유리 바이알에 담아 −20°C에서 보관하십시오. 건조 분말은 개봉 전 RT에서 평형을 이루도록 하십시오. 건조 분말로부터 신선한 용액을 조제하여 24 h 이내에 사용하십시오. 클로로포름 스톡을 사용하는 경우, 잔류 클로로포름이 막을 불안정하게 만들 수 있으므로 재현탁 전 질소 하에서 용매를 완전히 증발시키십시오.
2. Montal–Mueller법을 이용한 PLB 형성
다음 단계에서는 Montal–Mueller 기법5이라고도 불리는 폴딩 방법(folding method)을 이용한 인공 막 형성 과정을 설명합니다(그림 4). 이 접근 방식은 n-hexane에 1% (v/v) hexadecane를 섞은 얇은 층으로 격막 개구부를 전처리하고, 지질 용액을 도포하여 기–액 계면에 단분자층을 형성한 다음, 챔버 구획 내의 전해질 용액 수위를 순차적으로 높여 개구부 위로 단분자층을 접어 내리는 과정을 포함합니다.
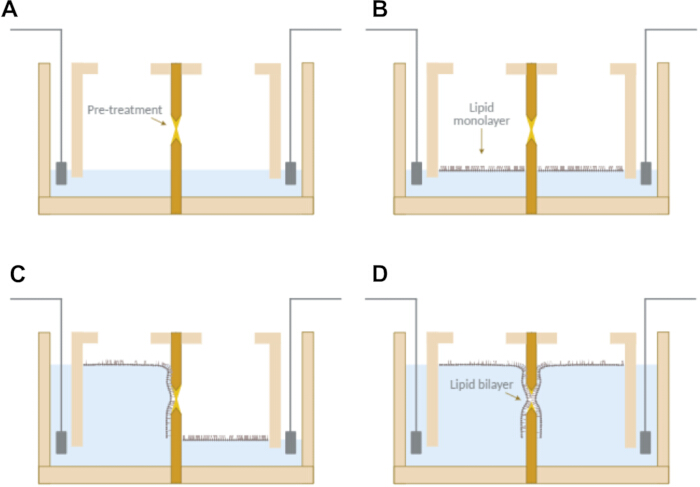
그림 4: Montal–Mueller법을 이용한 PLB 형성. (A>) n-hexane 내 1% hexadecane으로 구멍(aperture)을 전처리하고 구멍 높이까지 각 구획을 채우는 과정. (B>) 공기-물 계면에서 지질 단분자층 형성. (C> 및 D>) 각 구획의 버퍼 높이를 순차적으로 높여 단분자층을 접히게 함으로써 구멍 전체에 용매가 없는 지질 이중층을 형성하는 과정. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
- 막 형성
- 피펫 팁을 사용하여 n-hexane 내 1% (v/v) hexadecane 용액으로 격막 개구부를 전처리합니다. 각 측면에 약 2 µL를 도포합니다(그림 4A).
- 23°C–25°C 온도와 45%–50% 상대 습도에서 5분 동안 용매를 증발시킵니다.
- 조립된 BLMchipMM을 증폭기에 삽입합니다.
- USB 케이블을 통해 증폭기를 컴퓨터에 연결하고 데이터 수집 소프트웨어를 엽니다.
- 전류 범위를 2 nA로 설정하고 RC 추정 도구를 활성화하여 막 정전용량과 저항을 모니터링합니다.
참고: RC 추정 설정은 기본값으로 구성되어 있으나, 필요에 따라 조정할 수 있습니다. - 개구부의 하단 가장자리까지 각 구획에 30 ± 2 µL의 기록 용액을 채웁니다(그림 4A).
주의: 기록 용액이 개구부 주변 영역을 적시지 않도록 하십시오. - 각 구획의 수성 상 표면에 2.5 ± 0.1 µL의 지질 용액을 방울 형태로 떨어뜨려 퍼뜨립니다(그림 4B).
- 2분 동안 용매를 증발시킵니다.
- 한쪽 구획의 바닥에 피펫 팁을 약 90° 각도로 놓고 80 ± 2 µL의 기록 용액을 추가합니다. 다른 쪽 구획에 대해서도 동일하게 반복합니다(그림 4C 및 그림 4D).
참고: 용매 증발 시간은 23°C–25°C, 정지 공기, 45%–50% 상대 습도 조건을 기준으로 합니다. - 패러데이 케이지 덮개를 닫고 전류 신호를 모니터링합니다. 막 저항 값이 200 GΩ 이상이면 지질 이중층이 성공적으로 형성되었으며 막의 무결성이 양호함을 나타냅니다.
참고: 성공적인 막 형성은 막 정전용량에 비례하는 진폭을 가지며 0을 중심으로 변동하는 사각파 전류 신호로 확인됩니다(그림 5A).
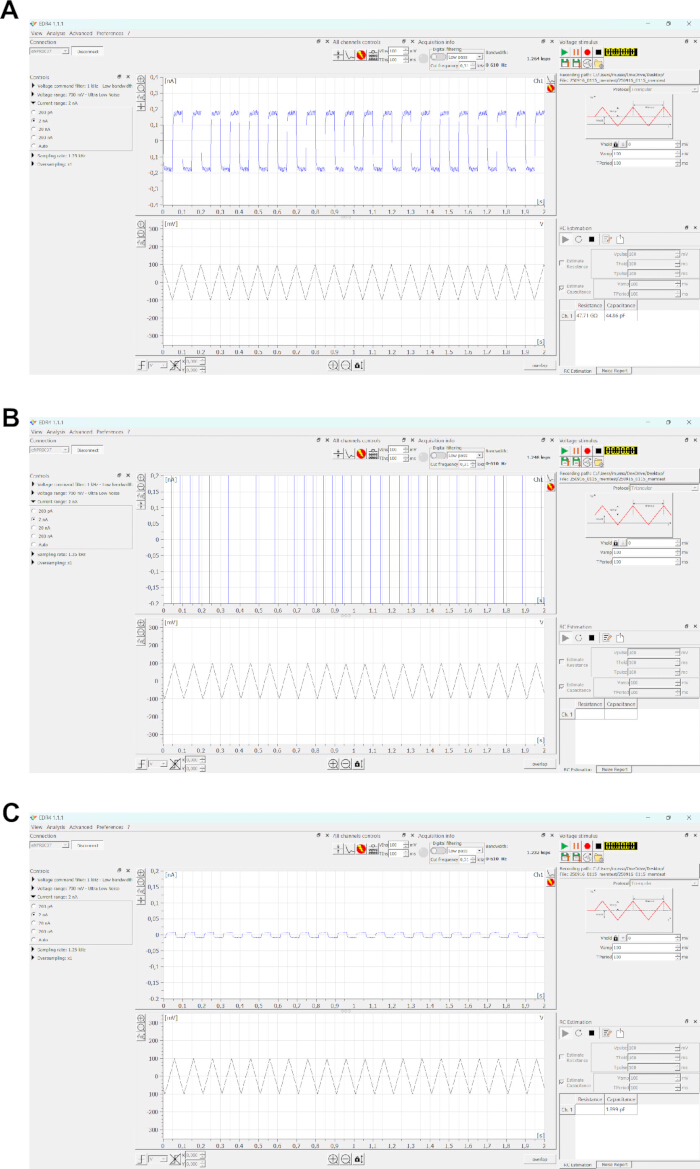
그림 5획득 소프트웨어 인터페이스를 이용한 막 형성 모니터링. (A) 성공적인 막 형성을 보여주는 대표적인 트레이스. 삼각형 전압 파형(피크-투-피크 100 mV, 10 Hz)은 막 커패시턴스(~45 pF)에 비례하는 구형파 커패시티브 전류를 생성한다. (B) 전류 신호의 포화가 특징인, 막 형성이 없음을 나타내는 대표적인 트레이스. (C) 어퍼처가 노출되었을 때와 같이 이층 구조가 형성되지 않았을 때의 기생 커패시턴스에 해당하는 정전 용량 신호. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
참고: 신호가 전류 범위 제한 사이에서 전환되는 것은 멤브레인 손상을 나타냅니다(그림 5B).
참고: RMS 노이즈는 막 정전 용량에 따라 증가하며, 따라서 구경 크기에 따라 증가합니다. 일정 전압 조건(0 mV), 5 kHz 샘플링 속도 및 2.5 kHz 대역폭에서 측정된 전형적인 노이즈 범위는 다음과 같습니다: 0.48–2.00 pA (50 µm); 0.74–2.62 pA (75 µm); 1.00–3.52 pA (100 µm); 그리고 1.59–5.27 pA (140 µm).
참고: 초기 시도에서 실패한 경우, 한쪽 구획의 완충액 수위를 낮추거나 높이면 막 형성이 촉진될 수 있습니다.
참고: 필요한 경우, 피펫 팁을 사용하여 구멍 위에 약 5 s 동안 기포를 가해 이중층 형성을 촉진하십시오.
참고: 버퍼 레벨을 구멍(aperture)보다 낮게 설정하거나 공기 방울이 유입되면 부유 정전용량(stray capacitance)에 해당하는 신호가 발생할 수 있습니다(그림 5C). 출력값이 그림 5B와 유사하다면 전처리가 효과적이지 않았을 수 있습니다. 전처리 용액과 지질을 다시 도포하거나, 장치를 세척한 후 절차를 반복하십시오.
주의: 전압 오프셋 보정은 반드시 막이 없는 상태에서만 수행하십시오. 막이 있는 경우, 보정 전에 ZAP 기능을 사용하여 막을 파열시키십시오.
참고: 실험은 일반 실험대에서 수행할 수 있으나, 필요한 경우 제진대(anti-vibration table)를 사용할 수 있습니다.
3. BLMchipMM 세척
- PCB에서 기록 챔버를 제거합니다.
- 두 구획과 유체 채널을 100% isopropyl alcohol (IPA)로 세척합니다.
주의: IPA 노출 시간이 1분을 초과하지 않도록 하십시오.
주의: 아세톤이나 100% ethanol은 챔버의 밀봉 재료를 손상시킬 수 있으므로 사용하지 마십시오.
참고: 추가 용매를 사용하는 경우, 사용 전 PMMA와의 호환성을 확인하십시오. - 이중 증류수로 충분히 헹굽니다.
- 눈에 보이는 물방울이 남지 않을 때까지 압축 공기를 부드럽게 분사하여 기록 챔버를 완전히 건조합니다.
참고: 조명 확대경으로 챔버를 검사하여 잔류 기름막이 없는지 확인하십시오. 필요한 경우 세척 및 건조 절차를 반복하십시오.
참고: 새로운 실험을 시작하기 전에 챔버가 완전히 깨끗하고 건조한지 확인하십시오.
4. 합성 이온 채널(ancTREK1)의 발현 및 정제
- 발현 작제물 준비
다음 단계에서는 클로닝 전략, Freestyle-293F 세포에서의 이종 발현 및 ancTREK1 단백질의 정제 과정을 설명합니다.
PCR 증폭, 제한 효소 절단, 라이게이션 및 화학적 컴피턴트 Escherichia coli 세포로의 형질전환을 이용하여 발현 벡터를 구축하십시오.23,24ancTREK1 서열을 발현하십시오 (부록 그림 1C-말단 GFP 태그와 His₈ 태그를 포함하는 포유류 벡터를 사용하여 형광 기반 검출이 가능하게 함25,26 그리고 니켈-니트릴로트라이아세트산(Ni-NTA)을 이용한 2단계 친화성 정제2⁺-NTA 레진)27,28,29 이후 anti-GFP 나노바디 수지로 이어지는30,31,32. - PCR을 통한 ancTREK1 DNA 증폭
- PCR 프라이머와 DNA 템플릿을 최종 농도로 희석하십시오. 10 µM 및 약 20 ng/µL 멸균된 2중 증류수를 사용하여.
- 모든 시약을 얼음 위에서 해동하십시오.
- 준비하십시오 50 µL 다음을 포함하는 PCR 반응 10 µL 5× 완충액의, 2.5 µL 각각의 10 µM 프라이머, 2 µL DNA 템플릿의, 1 µL 10 mM dNTP의, 0.5 µL 고충실도 DNA 중합효소, 그리고 최종 부피를 맞추기 위한 멸균 2중 증류수(표 3살살 섞어준 후 짧게 원심분리합니다.
- 다음 조건으로 PCR을 수행하십시오: 초기 변성 단계에서 98°C 3분 동안; 30회 반복 98°C 30초 동안, 68°C 30초 동안 처리하고, 72°C 30초 동안; 최종 신장 단계 온도는 72°C 3분 동안 (표 4).
- 1× TAE 완충액이 포함된 1%(w/v) 아가로스 겔에서 PCR 산물을 60V로 90분 동안 전기영동한 후, 해당 밴드를 절제하십시오.
참고: 젤 추출법을 사용하여 PCR 산물을 정제하고, 260 nm에서 DNA 농도를 측정한 후, 정제된 PCR 산물을 − 온도에서 보관하십시오.20°C 필요한 경우.
- 제한효소 절단 수행
- 다음을 포함하는 소화 반응액을 준비하십시오. 2 µg PCR 산물의 및 2 µg 별도의 튜브에 플라스미드 DNA를 넣습니다. 추가하십시오. 5 µL 10× 완충액의, 0.5 µL EcoRI 및 0.5 µL NotI 제한 효소, 그리고 ~로 조정하십시오. 50 µL 2회 증류수로 (표 5).
- 살살 섞은 후 다음 온도에서 배양하십시오. 37°C 3시간 동안.
- 다음 온도에서 효소를 열불활성화하십시오. 65°C 20분 동안.
- 추가하십시오 1 µL 벡터 소화 단계에 알칼리성 포스파타아제를 첨가하고 다음 온도에서 배양한다. 37°C 1시간 동안.
- 제한효소 처리된 산물을 1% 아가로스 겔에서 전기영동한 후, 원하는 밴드를 추출하십시오.
참고: 적절한 정제 방법을 사용하여 DNA 단편을 정제하고, 정제된 DNA는 −에서 보관하십시오.20°C 필요한 경우.
- 라이게이션 및 형질전환 수행
- 준비하십시오 20 µL 벡터와 삽입물(몰비 3:1)을 포함하는 결찰 반응, 2 µL 10× 라이게이스 완충액 및 1 µL 리가아제 효소 (표 6).
- 실온에서 1시간 동안 배양하십시오.
- 화학적 컴피턴트 E. coli 세포를 얼음 위에서 해동하십시오.
- 추가하십시오 5 µL 의 라이게이션 믹스를 다음의 양으로 추가하여 50 µL 세포를 처리하고 얼음 위에서 20분 동안 배양한다.
- 다음 온도에서 열충격 처리: 42°C 1분 동안 유지한 후, 다시 얼음에 2분 동안 둡니다.
- 추가하십시오 450 µL LB 배지에서 배양하고 다음 온도에서 배양합니다. 37°C 1시간 동안 흔들어 섞어줍니다.
- 3,000 × g에서 1분 동안 원심분리하고, 펠렛을 다음 용액에 다시 현탁한다. 50 µL.
- 선택 배지에 도말한 후 하룻밤 동안 배양합니다. 37°C.
참고: 시퀀싱을 통해 클로닝 성공 여부를 확인하십시오.
- HEK293F 세포 형질전환
- 293F 세포 250 mL를 0.5 × 10^6 cells/mL 농도로 분주합니다.6 무혈청 현탁 배지 내의 cells/mL 농도로 맞춘 후, 다음 온도에서 배양하십시오. 37°C 6% CO₂ 조건에서.
- 준비물 250 µg 최종 부피 3 mL의 저혈청 배지 내 DNA의
- 준비하십시오 750 µg 1 mg/mL 농도의 폴리에틸렌이민(PEI) 수용액을 준비하고, NaOH를 사용하여 pH를 6.9~7.1로 조절한 후, 용액을 멸균 여과하고 저혈청 배지를 사용하여 최종 부피를 3 mL로 맞춥니다.
- DNA와 PEI 용액을 혼합하고 가볍게 섞은 후, 상온(RT)에서 10분 동안 배양하십시오.
- 혼합물을 세포에 한 방울씩 첨가하십시오.
- 4시간 후에 sodium butyrate를 최종 농도 10 mM이 되도록 첨가하십시오.
- 48시간 후, 500 × g에서 15분 동안 원심분리하여 세포를 수확한다.
- 세포 펠렛을 −에서 보관하십시오.80°C.
- 막 단백질 가용화
- 100 mL의 HEK293 배양액에서 얻은 세포 펠릿을 얼음 위에서 해동하십시오.
- 세포 펠릿을 lysis buffer에 1:10(w/v) 비율로 재현탁합니다.표 7).
최종 농도가 1% n-dodecyl-β-D-maltoside (DDM) 및 0.1% cholesteryl hemisuccinate (CHS)가 되도록 계면활성제를 첨가하십시오. - 다음 조건에서 회전시키며 배양하십시오. 4°C 2시간 동안.
- 100,000 × g에서 1시간 동안 원심분리한다. 4°C.
- 상층액을 수집하십시오.
주의: 모든 단계는 다음 온도에서 수행하십시오. 4°C 미리 냉각시킨 완충액을 사용하여.
- IMAC 정제 수행
- 팩 500 µL Ni의2⁺-NTA 레진을 중력식 컬럼에 충전합니다.
- 평형화 완충액 2컬럼 볼륨(CV)으로 레진을 평형화합니다.표 8).
- 시료를 로딩하고 10rpm의 완만한 혼합 상태에서 배양하며 4°C 3시간 동안.
- 컬럼을 수직으로 세우고 중력 흐름을 통해 통과액을 수집하십시오.
- 30mM 이미다졸이 포함된 세척 완충액으로 레진을 10 CV만큼 세척하십시오.
- 300 mM imidazole가 포함된 용출 버퍼를 사용하여 10 CV만큼 단백질을 용출하십시오.
참고: SDS-PAGE를 통해 분획물을 분석함 (그림 6). 분석을 위해 통과액(flowthrough) 및 세척 분획(wash fractions)을 보관하십시오. 단백질을 다음 조건에서 보관하십시오. 4°C 필요 시 하룻밤 동안
- anti-GFP 정제 수행
- 1 mL의 anti-GFP 레진을 중력 컬럼에 충진하십시오.
- Buffer 1을 2 CV만큼 흘려 레진을 평형화합니다 (표 9IMAC 용출액을 로딩하고 10 rpm의 완만한 혼합 조건에서 배양하며 4°C 3시간 동안.
- 컬럼을 수직으로 세우고 중력 흐름을 통해 통과액을 수집하십시오.
- 레진을 Buffer 1 10 CV, Buffer 2 10 CV, 그리고 Buffer 1 10 CV 순으로 차례대로 세척하십시오.
- HRV-3C 프로테아제를 프로테아제:단백질 비율 1:50으로 Buffer 1 2 mL에 희석하십시오.
- HRV-3C 프로테아제가 첨가된 Buffer 1을 레진에 넣고 부드럽게 혼합한 다음, 다음 온도에서 하룻밤 동안 배양하십시오. 4°C 수직 정지 상태로.
- 용출 분획에서 절단된 단백질을 수집하십시오.
- 50 kDa cutoff 원심분리 농축기를 사용하여 3,000 × g에서 샘플을 농축하고 4°C 최종 부피가 약 다음이 될 때까지 500 µL 도달하였습니다.
참고: SDS-PAGE를 통해 분획물을 분석하십시오.그림 7). 응집을 방지하기 위해 농축 과정 중에 주기적으로 단백질을 재현탁하십시오. 정제된 단백질은 −로 보관하십시오.80°C 급속 냉동 후. 약 60 µg 100 mL 배양액에서 이 정도 양의 단백질을 얻을 수 있습니다.
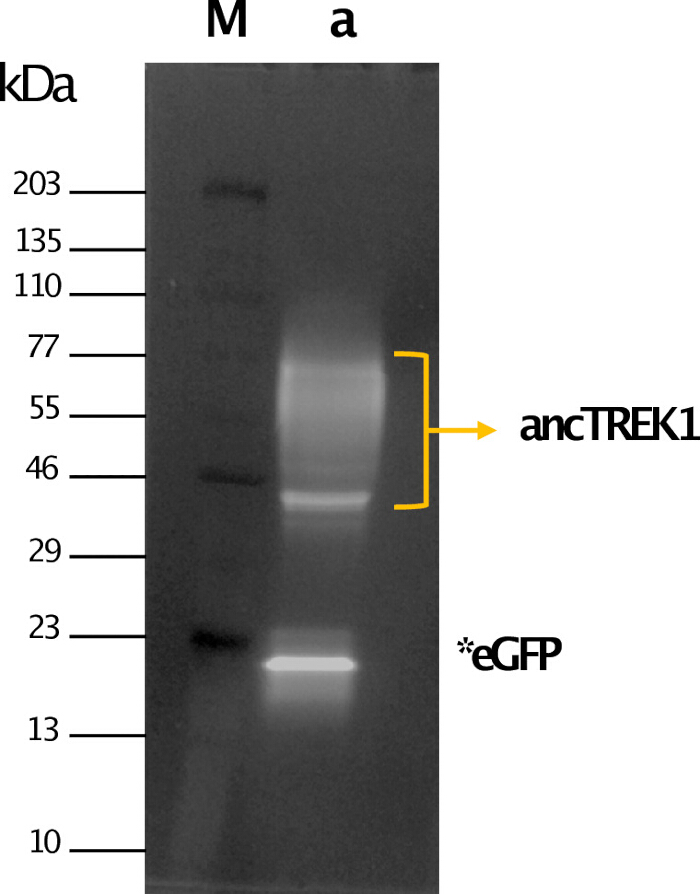
그림 6: 고정화 금속 이온 친화성 크로마토그래피(IMAC)를 이용한 ancTREK1 정제. 형광 검출을 이용한 IMAC 용출 분획의 Sodium dodecyl sulfate-polyacrylamide gel electrophoresis (SDS-PAGE) 분석. 레인 M: 분자량 마커. 레인 a: 녹색 형광 단백질(GFP)이 태그된 ancTREK1(노란색 화살표)을 보여주는 IMAC 용출 분획. 자가 절단으로 인해 생성된 유리 GFP는 *eGFP로 표시됨. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
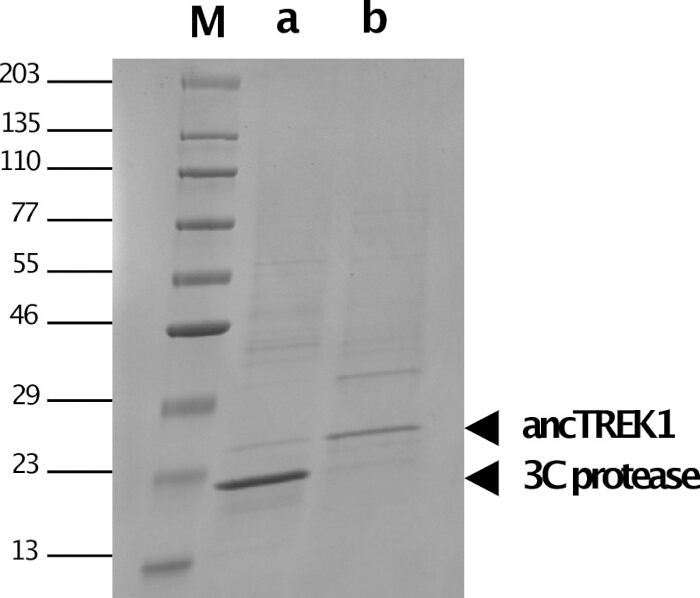
그림 7anti-GFP 나노바디 친화성 크로마토그래피를 이용한 ancTREK1 정제. Coomassie Blue로 염색한 용출 분획의 SDS-PAGE 분석. 레인 M: 분자량 마커. 레인 a: 3C protease의 존재를 보여주는 anti-GFP 용출 분획. 레인 b: 농축 후 정제된 ancTREK1. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
| 시약 | ~의 부피 50 µL 반응 | 최종 농도 |
| 2회 증류수 | 추가하십시오 50 µL | — |
| 5× PhusionTM GC 완충액 | 10 µL | 1× |
| dNTPs (각 10 mM) | 1 µL | 200 µM 각각의 |
| 정방향 프라이머 (10 µM) | 2.5 µL | 0.5 µM |
| 역방향 프라이머 (10 µM) | 2.5 µL | 0.5 µM |
| 템플릿 DNA (20 ng/µL) | 2 µL | 0.8 ng/µL |
| PhusionTM 고충실도 DNA 중합효소 | 0.5 µL | 0.02 U/µL |
표 3: ancTREK1 증폭을 위한 중합효소 연쇄 반응(PCR) 반응 설정. 고충실도 DNA 중합효소 시스템을 사용하여 ancTREK1 DNA 서열을 PCR 증폭하는 데 사용된 시약 조성, 부피 및 최종 농도.
| 단계 | 온도 | 시간 | 사이클 |
| 초기 변성 | 98°C | 3분 | 1 |
| 변성 | 98°C | 30초 | 30 |
| 어닐링 | 68°C | 30초 | 30 |
| 연장 | 72°C | 30초 | 30 |
| 최종 연장 | 72°C | 3분 | 1 |
| 유지 | 12°C | 유지 | — |
표 4: ancTREK1 증폭을 위한 PCR 사이클 조건. 변성, 어닐링, 신장 및 최종 신장 단계를 포함하여 ancTREK1 DNA 서열 증폭에 사용된 열 사이클 파라미터.
| 구성 요소 | 삽입물 소화 (50 µL) | 벡터 절단 및 탈인산화 (50 µL) |
| ddH₂O | ~로 / ~하기 위해 50 µL | ~에/에게 50 µL |
| 10× ANZA Red 완충액 | 5 µL | 5 µL |
| DNA | ancTREK1 PCR 생성물 (2 µg) | pEG BacMam C-term 3C eGFP His8 벡터 DNA (2 µg) |
| Anza™ EcoRI | 0.5 µL | 0.5 µL |
| Anza™ NotI | 0.5 µL | 0.5 µL |
| Anza™ 알칼라인 포스파타아제 | — | 1 µL |
표 5: ancTREK1 클로닝을 위한 삽입물 및 벡터의 제한 효소 절단. EcoRI 및 NotI 효소를 사용하여 ancTREK1 PCR 생성물과 발현 벡터를 제한 효소로 절단할 때의 반응 조건. 벡터 절단 과정에는 자체 결합(self-ligation)을 방지하기 위해 알칼리성 인산분해효소(alkaline phosphatase)를 사용한 추가적인 탈인산화 단계가 포함되어 있다.
| 구성 요소 | 양 (20 µL 반응) |
| 초순수(ddH₂O) | ~로 / ~에게 / ~하기 위하여 20 µL |
| 10× T4 DNA Ligase 완충액 | 2 µL |
| ancTREK1 삽입 DNA (843 bp) | 10 ng |
| pEG BacMam C-term 3C eGFP His8 벡터 DNA (7673 bp) | 30 ng |
| T4 DNA 리가아제 | 1 µL |
표 6: ancTREK1 클로닝을 위한 벡터-삽입물 결합 조건.T4 DNA ligase를 사용하여 1:3 몰 비율로 pEG BacMam 발현 벡터에 ancTREK1 삽입물을 결합시키기 위한 반응 혼합물.
| 성분 | 최종 농도 | 양 (5 mL 기준) |
| ddH₂O | — | 5 mL까지 채움 |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| PMSF 프로테아제 억제제 (100 mM) | 1 mM | 50 µL |
| Leupeptin 프로테아제 억제제 (1 mg/mL) | 1 µg/mL | 5 µL |
| Aprotinin 프로테아제 억제제 (1 mg/mL) | 1 µg/mL | 5 µL |
| Pepstatin A 프로테아제 억제제 (1 mg/mL) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2.5 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 1% | 500 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.10% | 250 µL |
표 7: 막 단백질 추출을 위한 용해 버퍼의 조성.염, 완충제, 프로테아제 억제제, 뉴클레아제 및 계면활성제를 포함하여 막 단백질의 가용화를 위해 사용된 용해 버퍼 제형입니다. 참고: 버퍼는 사용 직전에 새로 조제해야 합니다.
| 평형화 완충액 (총 부피 10 mL) | ||
| 구성 요소 | 최종 농도 | 양 |
| ddH₂O | — | 10 mL까지 |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-도데실-β-D-말토사이드 (DDM, 10%) | 0.05% | 50 µL |
| 콜레스테릴 헤미석시네이트 (CHS, 2%) | 0.01% | 50 µL |
| 세척 완충액 (총 부피 10 mL) | ||
| 구성 요소 | 최종 농도 | 양 |
| ddH₂O | — | 10 mL까지 |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-도데실-β-D-말토사이드 (DDM, 10%) | 0.05% | 50 µL |
| 콜레스테릴 헤미석시네이트 (CHS, 2%) | 0.01% | 50 µL |
| 이미다졸 pH 8 (5 M) | 30 mM | 60 µL |
| 용출 버퍼 (총 부피 10 mL) | ||
| 구성 요소 | 최종 농도 | 양 |
| ddH₂O | — | 10 mL로 |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-도데실-β-D-말토사이드(DDM, 10%) | 0.05% | 50 µL |
| 콜레스테릴 헤미숙시네이트 (CHS, 2%) | 0.01% | 50 µL |
| 이미다졸 pH 8 (5 M) | 300 mM | 600 µL |
표 8: ancTREK1 정제를 위한 IMAC 버퍼 조성. ancTREK1의 금속 이온 친화성 크로마토그래피 정제에 사용된 평형화, 세척 및 용출 버퍼의 조성입니다. 참고: 용액은 4°C에서 최대 6개월 동안 보관할 수 있습니다.
| 버퍼 1 (총 부피 10 mL) | ||
| 구성 요소 | 최종 농도 | 양 |
| ddH₂O | — | 10 mL까지 |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-도데실-β-D-말토사이드 (DDM, 10%) | 0.05% | 50 µL |
| 콜레스테릴 헤미숙시네이트 (CHS, 2%) | 0.01% | 50 µL |
| 완충액 2 (총 부피 10 mL) | ||
| 구성 요소 | 최종 농도 | 양 |
| ddH₂O | — | 10 mL까지 |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-도데실-β-D-말토사이드 (DDM, 10%) | 0.05% | 50 µL |
| 콜레스테릴 헤미숙시네이트 (CHS, 2%) | 0.01% | 50 µL |
표 9: anti-GFP 나노바디 친화성 크로마토그래피를 위한 완충액 조성. anti-GFP 나노바디 친화성 크로마토그래피를 이용하여 ancTREK1을 정제하는 데 사용된 완충액의 처방. 참고: 용액은 4°C에서 최대 6개월 동안 보관할 수 있다.
5. 이온 통로 활성 기록
- 막 품질 평가
- 패러데이 케이지 덮개를 닫습니다.
- 삼각 전압 파형(100 mV, 10 Hz)을 가하여 막 커패시턴스를 평가합니다.
- 전압 스텝(±200 mV까지 ±20 mV 증분)을 가하여 막 저항을 평가합니다.
- 전류 및 노이즈 값을 모니터링합니다.
참고: 별도의 요구 사항이 없는 한 5 kHz 샘플링 속도와 2.5 kHz 저역 통과 필터링을 사용하십시오.
- ancTREK1 활성 기록
- ancTREK1 단백질을 기록 용액에 ~2 µg/mL가 되도록 희석합니다.
참고: 희석 과정 중, 기록 용액으로 최종 희석하기 전에 계면활성제 농도가 임계 미셀 농도(CMC) 이상으로 유지되도록 필요에 따라 Buffer 1에서 중간 희석을 수행하십시오. - 희석된 단백질 용액 1 µL를 격막 구멍 근처의 cis 챔버에 첨가합니다.
참고: 막 전위는 Vcis − Vtrans로 정의됩니다. 본 연구에서는 채널 방향을 직접적으로 결정하지 않았으므로, 기록은 지정된 막 측면이 아닌 가해진 전압 극성에 따라 설명됩니다. - ±120 mV까지 ±20 mV 증분으로 전압 스텝을 가합니다.
- 채널 삽입 이벤트를 모니터링합니다.
참고: 채널 삽입은 닫힘 상태와 열림 상태 사이의 불연속적인 전류 전이로 나타납니다. 삽입이 일어나지 않으면 단백질을 더 추가하거나 막을 다시 형성하십시오. 여러 개의 채널이 삽입되면 막을 파열시키고 단백질 농도를 낮추십시오.
- ancTREK1 단백질을 기록 용액에 ~2 µg/mL가 되도록 희석합니다.
결과
PLB 막의 전류-전압(I–V) 특성
이중층 막의 고유한 소수성 성질로 인해 전하를 띤 종들은 막을 통과할 수 없습니다. 하지만 외부 전기장을 인가하면 나노미터 크기의 일시적인 기공 형성을 유도할 수 있으며, 이를 통해 막 투과성과 전도도에 영향을 줄 수 있습니다33. 1,2-diphytanoyl-sn-glycero-3-phosphocholine 지질로 형성된 인공 이중층의 품질을 평가하기 위해, 단백질을 삽입하지 않은 상태에서 막 커패시턴스, 저항 및 I–V 특성을 측정하였습니다. ±20에서 ±200 mV 범위(±20 mV 간격)의 일련의 전압 단계를 인가하고, 이에 따른 막 관통 전류를 기록하였습니다. 데이터는 5 kHz로 샘플링되었으며 2.5 kHz에서 저역 통과 필터링을 거쳤습니다.
막 커패시턴스(Cm)와 막 저항(Rm)은 이중층의 품질을 평가하는 핵심 매개변수입니다. PLB는 등가 저항-커패시터(RC) 회로로 설명할 수 있으며, 여기서 막은 저항과 병렬로 연결된 커패시터로 작동합니다34. 커패시티브 성분은 전하를 저장하는 막의 능력을 나타내며, 저항성 성분은 이온 투과성을 나타냅니다. 삼각형 전압 파형을 인가하면 사각형 모양의 커패시티브 전류 응답이 생성되며, 이는 다음과 같이 막 커패시턴스에 비례합니다:
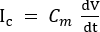 (1)
여기서 Cm은 막 커패시턴스, V는 인가 전압, t는 시간입니다. 막 형성 후, 이중층이 점진적으로 얇아짐에 따라 커패시턴스 값이 시간이 지남에 따라 증가할 수 있습니다35. 막을 평행판 커패시터로 간주할 때, 커패시턴스는 다음 식에 따라 막의 면적 및 두께와 연관됩니다:
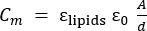 (2)
여기서 εlipids는 지질 코어의 유전 상수(~2)이며, ε0은 진공의 유전율, A는 막 면적, d는 막 두께를 나타냅니다36,37.
막 저항은 옴의 법칙(Ohm’s law)33을 사용하여 측정하였습니다:
 (3)
여기서 V는 인가 전압이며, Rm은 막 저항을 나타냅니다. 이온 채널이 없는 경우, 막 전류는 0 pA 근처로 유지되며 이는 giga-ohm (GΩ) 범위의 저항 값에 해당합니다33.
75 및 100 µm 구경의 BLMchipMM 장치에서 I–V 관계는 0에서 ±200 mV 사이에서 선형(옴성) 거동을 나타냈다. 데이터의 선형 피팅을 통해 얻은 막 저항 값은 75 µm 구경의 경우 847 ± 16 GΩ (n = 6)(Figure 8A, 원)이었으며, 100 µm 구경의 경우 980 ± 32 GΩ (n = 7)(Figure 8A, 사각형)이었다. 전류 트레이스의 3 s 구간에서 측정된 RMS 노이즈 값은 100 µm 구경의 경우 3.1 ± 2 pA (n = 7), 75 µm 구경의 경우 2.6 ± 0.1 pA (n = 6)였다. 막 안정성은 총 1 h 동안 약 2 min 간격으로 저항을 측정하여 평가하였다(Figure 8B). 잘 형성된 막은 1 h 이상 일관되게 안정 상태를 유지했으며, 이는 대부분의 전기생리학적 실험을 수행하기에 충분한 시간이다. 막은 일반적으로 ±200 mV까지의 인가 전압에서도 불안정성의 징후 없이 견뎌냈으나, 개별 이중층에 따라 ±220에서 ±300 mV 사이에서 파열이 발생하였다. 100 mV에서 전류 값이 ≤0.5 pA이고, 정전용량 값이 75 µm 구경의 경우 40에서 60 pF, 100 µm 구경의 경우 60에서 90 pF 범위일 때 단백질 삽입에 적합한 막으로 판단하였다.
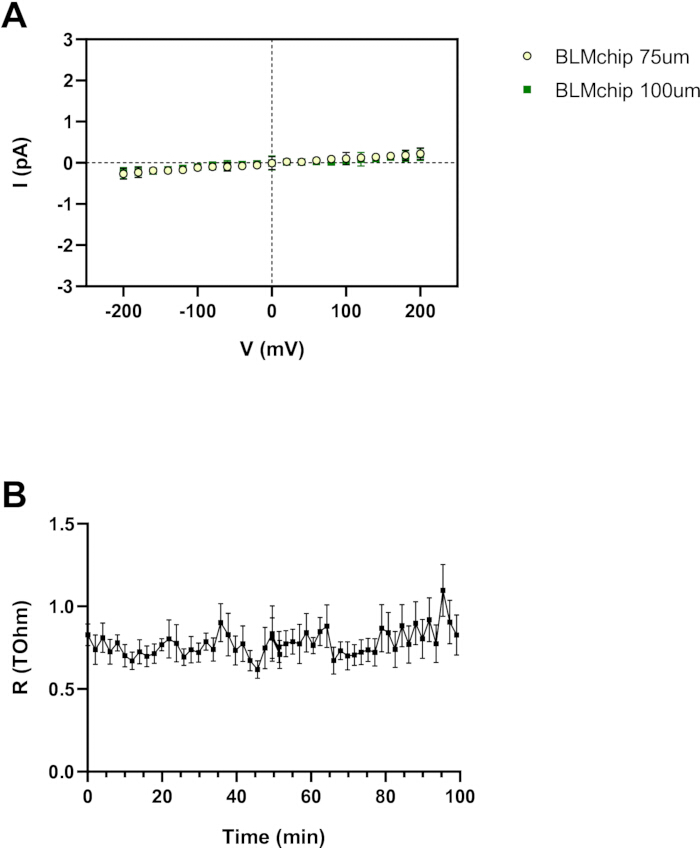
그림 8: PLB의 전기적 특성 분석. (A) 75 µm 및 100 µm 구멍에서 형성된 이중층의 전류-전압(I–V) 관계이며, ±200 mV 사이에서 선형(옴성) 거동을 보여준다. 선형 회귀 분석 결과, 막 저항 값은 각각 847 ± 16 GΩ (n = 6) 및 980 ± 32 GΩ (n = 7)로 나타났다. (B) 2분 간격으로 1시간 동안 저항을 모니터링하여 막 안정성을 평가하였다. 막은 ±200 mV까지 안정적으로 유지되었으며, ±220에서 ±300 mV 사이의 전압에서 파열되었다. 데이터는 평균 ± 표준 오차(SEM)로 표시되었다. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
ancTREK1 단일 채널 거동의 초기 특성 분석
합성 ancTREK1을 정제하여 PLB에 재구성하였으며, −120에서 120 mV까지 20 mV 간격의 전압 단계 프로토콜을 사용하여 단일 채널 활성을 모니터링했습니다. 단일 채널 기록(그림 9A 및 그림 9B)에서 K2P 채널 특유의 플리커링(flickering) 거동이 나타났습니다38. 80 mV에서 평균 전류 진폭은 13.02 ± 0.78 pA(n = 5)였으며, −80 mV에서는 전류 진폭이 −18.72 ± 0.25 pA(n = 5)로 증가했습니다(그림 9C). 그 결과 도출된 I–V 관계는 Mg2+가 없는 대칭 200 mM potassium 조건에서 양의 전위와 음의 전위 모두에서 측정 가능한 단일 채널 전류를 보여주었습니다(그림 9D). 전류 진폭은 5 kHz로 획득하고 2.5 kHz로 저역 통과 필터링한 기록의 전지점 히스토그램(all-point histogram)으로부터 추정되었으므로, 이 I–V 관계는 상세한 생물물리학적 특성 분석보다는 기술적인 원리 증명으로 제시되었습니다.
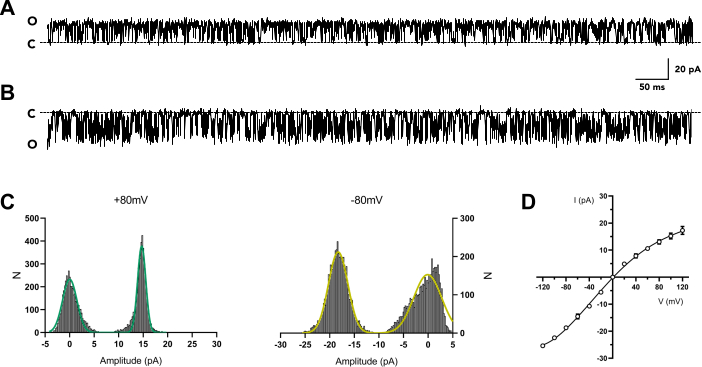
그림 9: 합성 ancTREK1의 단일 통로 활성. (A 및 B) 각각 80 mV 및 −80 mV에서 기록된 대표적인 단일 통로 전류 추적. 점선은 폐쇄 통로 수준을 나타냄. (C) 양의 전위(왼쪽) 및 음의 전위(오른쪽)에 대한 전지점 진폭 히스토그램. (D) 2가 양이온이 없는 대칭 200 mM potassium (K+) 조건에서 ancTREK1의 I–V 관계. 곡선은 4차 다항식을 사용하여 피팅되었으며, 전도도 값은 ±80 mV에서의 기울기로부터 도출됨. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
ancTREK1은 포유류 TREK1 채널에 비해 확장된 N-말단 및 C-말단 영역이 결여되어 있음에도 불구하고, 재구성 후 기능적으로 활성 상태를 유지했습니다. 고전도 및 저전도 모드(양의 전위에서 각각 132 ± 5 pS 및 41 ± 5 pS)를 나타내는 포유류 TREK1과 달리39, ancTREK1은 대전도 모드만을 나타냈습니다. 양의 전위에서의 단일 채널 전도도는 112.8 ± 10.8 pS(80 mV, n = 5)였으며, 이는 보고된 TREK 채널 값(대칭 칼륨 조건에서 85–130 pS)과 일치합니다38,39,40,41. 음의 전위에서는 전도도가 205.6 ± 2.05 pS(−80 mV, n = 5)로 증가했으며, 이는 이전에 보고된 TREK1의 거동과 일치합니다39. 특히, ancTREK1은 절단 패치 구성(excised patch configurations)을 사용하여 얻은 TREK1 측정값보다 더 높은 정규화된 개방 확률(NPo)을 나타냈습니다42. NPo-전압 관계는 양의 전위에서 채널 활성이 증가함을 보여주었으며, 80 mV에서 0.78 ± 0.02(n = 5)에 도달했습니다. 반대로, NPo는 음의 전위에서 감소하여 −80 mV에서 0.53 ± 0.04, −120 mV에서 0.28 ± 0.03의 값을 나타냈습니다(그림 10).
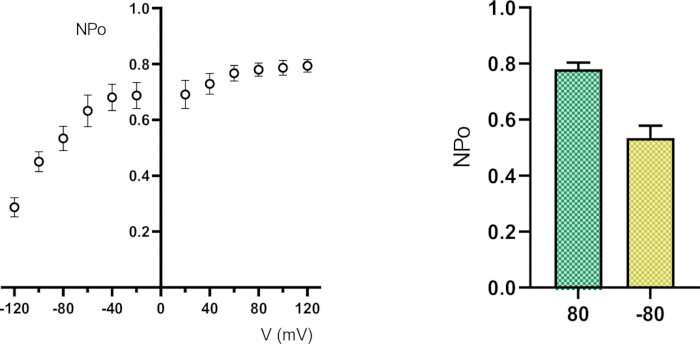
그림 10: ancTREK1 단일 채널 활성의 전압 의존성 분석. 막 전위의 함수로 나타낸 정규화된 개방 확률(NPo)(왼쪽) 및 80 mV와 −80 mV에서의 NPo 비교(오른쪽)로, 양의 전위에서 채널 개방이 증가함을 보여준다. 여기를 클릭하여 이 그림의 더 큰 버전을 확인하십시오.
보충 그림 1. 합성 조상 2-포어 도메인 칼륨 (K2P) 채널 (ancTREK1)의 아미노산 서열. 전기생리학적 기록에 사용된 ancTREK1의 전체 길이 아미노산 서열. 이 서열은 UniProt 및 NCBI 데이터베이스에서 수집된 오솔로그 서열을 포함하여 큐레이션된 TREK/TRAAK 패밀리 구성원 데이터셋으로부터 조상 서열 추론을 통해 재구성되었으며, 보존된 포어 모티프로 필터링하고 정렬한 후 최대 가능도 계통발생학 분석을 통해 도출되었다.이 파일을 다운로드하려면 여기를 클릭하십시오.
토론
본 연구에서는 PLB 기술을 사용하여 단일 분자 수준에서 합성 K2P 채널의 전기생리학적 특성을 평가하였습니다. 과학 문헌에 기술된 다양한 평면 지질 모델 중에서, 우리는 두 개의 수성 구획을 분리하는 수직 비극성 표면에 뚫린 직경 50에서 140 µm 사이의 구멍 위에 도포된 BLM 형성에 집중하였습니다. 이러한 구성은 지질 막 준비 및 전해질 조성(예: 이온 강도 및 pH)3을 포함한 실험 매개변수에 대한 제어력을 유지하면서 세포막 환경을 시뮬레이션할 수 있게 합니다. 우리는 Montal–Mueller(접힘) 방법5을 사용하여 BLM을 재현하였으며, 이 방법에서는 두 수용액의 공기-물 계면에 미리 퍼뜨려 놓은 두 개의 지질 단분자층이 수위를 높임에 따라 구멍 위에서 결합하여 막이 자발적으로 조립됩니다.
여기에서 제시하는 막 형성 프로토콜은 매우 직관적이지만, 몇 가지 중요한 단계가 실험의 성공에 강력한 영향을 미칩니다. BLMchipMM과 앰플리파이어 간의 적절한 전기적 연결을 보장하려면, PCB 소켓에 삽입되는 Ag/AgCl 와이어 끝단이 염화되는 것을 반드시 방지해야 합니다. BLMchipMM 조립 중 와이어의 위치가 부적절할 경우 앰플리파이어 케이스와 접촉하여 단락 및 신호 포화가 발생할 수 있습니다. 구멍 전처리 과정 또한 중요한 요소입니다. 전처리 용액을 도포할 때 과도한 힘을 가하면 폴리이미드 격막이 손상될 수 있으며, 전해질 용액을 부적절하게 취급하여 특히 구멍 부위가 잠기게 되면 막 형성에 지장을 줄 수 있습니다. 또한, 재현성을 위해 BLMchipMM 기록 챔버를 세심하게 세척하는 것이 필수적입니다. 100% 이소프로필 알코올을 사용한 후 철저히 헹구고 완전히 건조시켜 잔류물이 후속 실험을 방해하지 않도록 해야 합니다.
프로토콜에 대해 몇 가지 수정이 가능합니다. 표백제 침지를 통한 염소화는 실용적이며 널리 사용되는 접근 방식이지만, 전기 도금과 같은 대안적인 방법 또한 채택될 수 있습니다43. 마찬가지로, 전처리 및 지질 준비 과정에서도 변형이 가능합니다. 표준 전처리 용액은 일반적으로 휘발성 탄화수소 용매에 용해된 긴 사슬 알칸으로 구성됩니다36. 흔히 n-hexane에 1% hexadecane 용액이 사용되지만, 다른 용매가 적합할 수도 있습니다. 지질 조성 또한 실험 요구 사항에 따라 조정할 수 있습니다. DPhPC 지질이 최적의 막 안정성을 제공하지만, 천연 또는 합성 조성을 포함한 대안적인 지질 혼합물을 사용할 수 있습니다36. 폴딩법을 통해 형성된 수직 지질 이중층의 주요 장점은 각 층이 서로 다른 지질 종으로 구성된 비대칭 막을 생성할 수 있다는 점이며5,22, 이러한 특징은 막 단백질 기능에 영향을 주는 것으로 알려져 있습니다.
막 형성의 문제 해결은 일반적으로 수성 상의 높이를 조절하는 작업을 포함합니다. 처음에 막 형성이 일어나지 않는 경우, 한쪽 구획의 버퍼 높이를 반복적으로 낮추고 높이면 이중층 조립을 촉진할 수 있습니다. 이 방법으로 성공하지 못했다면, 개구부 위에 공기 방울을 적용하여 지질의 재분배와 막 형성을 유도할 수 있습니다. 지속적으로 실패하는 경우는 일반적으로 전처리 또는 오염과 관련된 문제임을 나타내며, 이 경우 기록 챔버를 세척하고 실험을 다시 시작하는 것이 권장됩니다.
이 설정의 핵심 구성 요소는 eNPR 100 kHz 소형 증폭기와 BLMchipMM입니다. 이 증폭기는 소형 저소음 전압-클램프 시스템으로, 증폭기 케이스 자체가 효과적인 전자기 차폐를 제공하므로 외부 패러데이 케이지를 포함한 추가적인 외부 장치가 필요하지 않습니다. BLMchipMM은 증폭기에 직접 연결할 수 있도록 PCB가 통합된 사전 조립된 소형 기록 챔버입니다. 이는 인공 막이 형성되는 테이퍼진 레이저 드릴 구멍이 있는 폴리이미드 격막으로 분리된 두 개의 C자형 구획으로 구성됩니다. 구획 부피가 약 110 µL인 이 시스템의 축소된 크기는 시약 소모량을 크게 줄이고 고유 커패시턴스를 감소시켜 신호 품질을 향상시킵니다. 또한, 적절한 세척 절차를 따르면 분해 없이 장치를 여러 번 재사용할 수 있어 변동성을 줄이고 실험의 재현성을 높일 수 있습니다.
이러한 장점에도 불구하고 몇 가지 제한 사항을 고려해야 합니다. 현재의 설정에는 온도, 압력 또는 관류 제어를 위한 통합 모듈이 포함되어 있지 않습니다. 내재적 막 장력(intrinsic membrane tension)이 TREK144,45,46과 같은 기계적 민감성 채널에 영향을 미치는 것으로 보고된 바 있으나, 본 설정에는 막 장력의 제어된 조작이 포함되지 않았으며, 여기에서 기전적 결론을 도출하지는 않았습니다. 전반적으로, 이 플랫폼은 인공 막에서 이온 채널 활성을 기록하기 위한 견고하고 접근 가능한 시스템을 제공합니다. 본 연구에서 우리는 TREK 하위 가족의 계산 기반 유도 조상 채널인 합성 K2P 채널 ancTREK1을 조사했습니다. 기록된 데이터는 PLB로 재구성된 정제된 ancTREK1이 보고된 TREK1 유사 전도 특성과 일치하는 단일 채널 동작을 보임을 입증합니다. Mg2+가 없는 대칭 200 mM potassium 조건에서, 이 채널은 80 mV에서 약 13 pA, −80 mV에서 −19 pA의 진폭 값을 갖는 측정 가능한 I–V 관계를 나타냅니다. 또한, ancTREK1은 TREK1 채널에서 관찰되는 특성인 대전도 모드를 보이며, 양전위(~112.8 pS)보다 음전위(~205.6 pS)에서 더 높은 전도도를 나타냅니다. 특히, ancTREK1은 양전위에서 증가된 NPo(80 mV에서 0.78)를 보이고 음전위에서 감소된 NPo(−80 mV에서 0.53, −120 mV에서 0.28)를 보이는데, 이는 절제된 패치 구성(excised patch configurations)42에서의 관찰 결과와는 다릅니다. 이러한 결과는 재구성된 막 단백질의 원리 증명(proof-of-principle) 단일 채널 기록을 위해 이 시스템을 사용할 수 있음을 뒷받침합니다.
공개 사항
F.T.와 A.P.는 각각 Elements S.r.l.의 CEO와 직원입니다. 그 외 모든 저자는 이해관계의 충돌이 없음을 밝힙니다.
감사의 글
세포 형질전환 절차를 도와준 Sofia Diletta Guzzeloni에게 감사를 표합니다. Elements의 직원인 Dr. Leon Juarez와 Dr. Michelangelo Paci에게 감사드립니다. 본 연구는 이탈리아 파비아 대학교 분자 의학과의 Dipartimenti di Eccellenza (2023–2027) 이니셔티브, Cariplo Foundation (#2019-1809), 그리고 M.L.에게 지원된 PNRR 연구 프로그램 CN00000013 “National Centre for HPC, Big Data and Quantum Computing”의 지원을 받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) | Avanti Polar Lipids | 850356P | 인공 지질 이중층의 형성 |
| 2-프로판올 (≥99.5%) | Honeywell | 24137-5L | BLMchipMM 장치의 세척 |
| 아가로스 | Fisher BioReagents | BP160-500 | 아가로스 겔의 제조 |
| 아가로스 겔 수평 전기영동 시스템 | BTLabSystems | BT102 | DNA 단편의 분리 |
| 암피실린 | Fisher BioReagents | BP1760-25 | 형질전환된 박테리아의 선택 |
| Anti-GFP 나노바디 Sepharose 레진 (자체 제작) | — | — | GFP 태그 단백질의 친화성 정제 |
| Anza 알칼리성 인산분해효소 | Invitrogen | IVGN2208 | 벡터 탈인산화 |
| Anza EcoRI | Invitrogen | IVGN0116 | 제한효소 절단 |
| Anza NotI | Invitrogen | IVGN0014 | 제한효소 절단 |
| Anza Red 완충액 (10×) | Invitrogen | IVGN2008 | 제한효소 처리 완충액 |
| 아프로티닌 단백질 분해 효소 억제제 | Fisher Scientific | 15996008 | 단백질 분해 방지 |
| 벤치탑 원심분리기 | Eppendorf | EP5420000164 | 세포 펠렛팅 및 시료 준비 |
| BLMchipMM | Elements s.r.l. | — | 평면 지질 이중층의 형성 |
| 콜레스테릴 헤미석시네이트 (CHS) | Anatrace | CH210 | 막 단백질의 안정화 |
| 쿠마시 브릴리언트 블루 | Sigma-Aldrich | 1125530025 | 단백질 염색 |
| 일반 가정용 표백제 | — | — | 은(Ag) 와이어의 염소화 |
| DNase I | Sigma-Aldrich | 11284932001 | 용해물 점도 감소 |
| 2회 증류수 | — | — | 완충액 및 용액의 조제 |
| 에탄올 (순수, 99.9%) | Girelli Alcool s.r.l. | — | Ag/AgCl 전선의 세척 |
| 에티듐 브로마이드 | Sigma-Aldrich | 1116080030 | DNA 염색 |
| 초미세 연마지 | — | — | 와이어의 Ag/AgCl 코팅 제거 |
| eNPR 100 kHz 증폭기 | Elements s.r.l. | — | 전기생리학적 기록 |
| 아가로스 내 DNA 추출을 위한 Gel-Out 키트 | A&생명공학 | 023-250 | DNA 정제 |
| GeneRuler 1 kb DNA ladder | Thermo Fisher Scientific | SM0311 | DNA 크기 기준물질 |
| 자유 형식™ 293-F | Thermo Fisher Scientific | R79007 | ancTREK1 단백질의 발현 |
| HEPES (≥99.5%) | Sigma-Aldrich | H3375-500G | 완충제 |
| 헥사데칸(≥99%) | Sigma-Aldrich | H6703-100ML | 개구부 전처리 |
| 헥산 (≥99%) | Sigma-Aldrich | 139386-100ML | 지질 용매 |
| 수제 5× DNA 로딩 염료 | — | — | DNA 시료 준비 |
| 수제 6× Laemmli SDS 완충액 (환원성) | — | — | 단백질 시료 준비 |
| 자체 제작 탈색 용액 | — | — | SDS-PAGE 겔의 탈색 |
| 자체 제작 HRV-3C 프로테아제 | — | — | 융합 단백질의 절단 |
| 자체 제작 SDS-PAGE 전개 완충액 (10×) | — | — | SDS-PAGE 전기영동 완충액 |
| 이미다졸 | Alfa Aesar | A10221 | His-태그 단백질의 용출 |
| 배치 내 정제 컬럼 | — | — | 단백질 정제 워크플로우 |
| Innova44 진탕 배양기 | New Brunswick Innova | M1282 | 세포 배양 성장 |
| 염화칼륨 | Honeywell | 31248-1KG | 전해질 및 완충액 조제 |
| LB 배지 (Lennox) | Condalab | 1231 | 박테리아 배양 |
| Leupeptin 프로테아제 억제제 | Thermo Scientific | 78435 | 단백질 분해 방지 |
| 염화마그네슘 육수화물 | Acros Organics | 447700010 | 완충액 성분 |
| Nanodrop 분광광도계 | DeNovix | DS-11 | DNA 및 단백질 정량 분석 |
| n-도데실-β-D-말토사이드 (DDM) | NeoBiotech | NB-19-0056-25G | 막 단백질 가용화 |
| Ni Sepharose High Performance 레진 | Cytiva | 17526801 | IMAC 정제 |
| 노트북 (컴퓨터) | — | — | 기기 제어 및 데이터 수집 |
| Optima LE-80K 초원심분리기 | Beckman | 365668 | 막 분획 분리 |
| 펜탄 (≥99%) | Sigma-Aldrich | 236705-100ML | 지질 용매 |
| 펩스타틴 A(Pepstatin A) 프로테아제 억제제 | Thermo Scientific | 78436 | 단백질 분해 방지 |
| Phusion GC 버퍼 (5×) | Thermo Fisher Scientific | F519 | PCR 완충액 |
| Phusion 고충실도 DNA 중합효소 | Thermo Fisher Scientific | F530S | PCR 증폭 |
| PMSF 단백질 분해효소 억제제 | Thermo Scientific | 36978 | 세포 용해 과정 중의 단백질 보호 |
| 폴리에틸렌이민 (PEI) | 임상과학 | 24765-100 | 트랜스펙션 시약 |
| ProteinEle 프리캐스트 Tris-Glycine 겔 (4%–20%) | TransGen Biotech | DG101-01-V2 | 단백질 분리 |
| SDS-PAGE 겔 전기영동 시스템 | Bio-Rad | 1658002FC | 단백질 전기영동 |
| 낙산나트륨 | Fisher Scientific | A11079 | 단백질 발현 증강제 |
| T4 DNA 연결효소 | Thermo Fisher Scientific | EL0011 | DNA 결합 (DNA ligation) |
| T4 DNA ligase 버퍼 (10×) | Thermo Fisher Scientific | B69 | 라이게이션 버퍼 |
| 열 순환기 (Mastercycler Nexus) | Eppendorf | 6331000025 | PCR 증폭 |
| Tris 염기 | Sigma-Aldrich | T1503-1KG | 완충액 조제 |
| 레시틴과 폴리소르베이트 80이 함유된 트립톤 소이-카제인 소이 겔(Tryptone SOYA agar) | HiMedia | M449-5KG | 세균 도말 |
| 두 개의 Ag 와이어 | Elements s.r.l. | — | 전기생리학용 전극 |
| 초원심 농축기 (분자량 컷오프 50 kDa) | Merck Amicon | UFC8050 | 단백질 농도 |
| pEG BacMam 발현 벡터 | Addgene | 160687 | 단백질 발현 |
| USB 케이블 | — | — | 증폭기와 컴퓨터 간의 연결 |
참고문헌
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
재인쇄 및 허가
