타임랩스 영상을 이용해 히드라 구형의 완전한 재생 과정을 추적할 수 있습니다. 이 프로토콜은 히드라 구형 생성을 설명하고, 다양한 장착 전략을 논의하며, 회전 디스크 공초점 현미경과 광판 형광 현미경을 이용한 장기 실시간 영상 수행 방법을 상세히 설명합니다.
이 콘텐츠를 보려면 JoVE 구독이 필요합니다. 로그인하거나 오늘 무료 평가판을 시작하세요.
이 논문에서
요약
초록
하이드라는 뛰어난 재생 능력으로 유명하다. 놀랍게도, 히드라 조직의 작은 재생 조각인 히드라 구체는 새로운 조직체를 형성할 수 있습니다. 이 조직체가 자리 잡으면, 주변 조직이 적절한 구강 구조로 분화하도록 지시합니다. 며칠 내에 구형체는 작지만 완전히 무늬가 있는 폴립으로 발달할 수 있습니다. 이 과정의 비교적 짧은 시간 척도는 전체 과정을 연속적으로 타임랩스 촬영할 수 있게 하여 재생의 시공간 역학을 연구할 수 있는 독특한 기회를 제공합니다. 여기서는 히 드라 재생 구형의 타임랩스 데이터셋을 생성하는 데 대한 상세한 워크플로우와 대표적인 결과를 제시합니다. 프로토콜에는 구형 생성에 대한 상세한 절차와 영상 촬영을 위한 최적의 샘플 선정 지침이 포함되어 있습니다. 우리는 생체 샘플의 장기 이미징에 적합한 마운팅 전략을 논의하고, 회전 디스크 공초점 현미경과 라이트시트 현미경을 모두 사용한 이미징 방식을 시연합니다. 여기서 설명한 원리는 장기 영상을 통해 동적 형태발생 과정을 연구할 수 있는 다른 모델 시스템에 널리 적용할 수 있습니다.
서론
히드라는 뛰어난 재생 능력으로 잘 알려진 작고 담수 폴립입니다. 몸 중앙에서 절단된 조직 조각들은 하이드라의 두 상피층인 외배엽과 내배엽으로 이루어진 속이 빈 구형 형태로 접힙니다. 재생 과정에서 이 히드라 구형체들은 새로운 조직체 1을 형성합니다. 약 3일 이내에 신체 축이 길어지고, 머리와 발 끝의 세포들이 분화합니다. 이 비교적 짧은 시간 덕분에 전체 재생 과정을 실시간 영상으로 포착할 수 있습니다. 타임랩스 데이터셋은 히드라 구형이 재생2 과정에서 겪는 특징적인 팽창과 축소 주기를 밝히는 데 중요한 역할을 했습니다. 이러한 삼투압 중심의 기계적 진동에 의해 발생하는 조직 신장은 조직체3의 국소화에 기여한다.
성공적인 장기 라이브 영상 촬영은 움직임 아티팩트를 피하기 위해 빠른 이미지 획득과 빛 노출을 최소화하여 시료 손상을 방지해야 합니다. 고전적인 단점 주사 공초점 현미경은 이러한 요구사항을 충족하지 못합니다. 하지만 고급 기술들이 개발되었습니다. 이 프로토콜에서는 두 가지 널리 사용되는 모달리스, 회전 원반 공초점 현미경(SDCM)과 광판 형광 현미경(LSFM)에 초점을 맞출 것입니다. SDCM은 핀홀 배열이 있는 빠르게 회전하는 디스크를사용합니다. 이 설계는 시료 내 여러 지점을 동시에 여기시키고 검출하면서도 공초점성을 유지할 수 있게 합니다. 이 병렬 획득은 영상 촬영을 크게 가속화하여 움직이는 샘플을 움직임 없이 캡처할 수 있게 합니다. 추가적인 이점으로, 노출 시간이 짧아지면 광독성이 크게 감소합니다. 하지만 영상 깊이가 제한적이기 때문에 대형 구조물의 라이브 영상 촬영은 도전적입니다.
LSFM이라는 이름은 이 평면 5 내에서만 형광체를 여기시키는 데 사용되는 얇은 빛의 시트에서 유래했습니다. 핀홀이 방출되는 빛을 제한하여 축 해상도를 만드는 것과 달리, 라이트 시트 현미경은 여기된 부피를 제한하여 축 해상도를 달성합니다. 검출 대물렌즈는 직교 방향으로 배치되어 빛 시트에 대해 90° 각도로 형광을 수집합니다. 이로 인해 카메라는 한 번의 노출로 전체 조명 평면의 형광 신호를 수집할 수 있어 획득 속도를 높이고 광독성을 최소화할 수 있습니다. 한두 개의 수평 검출 대물렌즈를 중심으로 구성된 일반적인 LSFM 기하학은 동일한 샘플을 여러 각도에서 촬영할 수 있다는 추가적인 장점이 있습니다. 현미경에 두 개의 검출 대물렌즈가 장착되어 있다면, 시료를 양쪽에서 동시에 촬영할 수 있습니다. 또는 샘플을 돌려 여러 각도에서 촬영할 수도 있습니다.
살아있는 히드라 연구에 사용되는 영상 기술은 최근 몇 년간 크게 발전하여 재생 관련 형태학적 변화를 신경 활동역학 7,8,9,10까지 관찰할 수 있게 되었습니다. 여기서는 이전에 발표된 프로토콜 6,11을 확장하여 재생하는 히드라 구형의 실시간 영상 촬영 다양한 접근법을 시연하는 데 중점을 둡니다. 작은 조직 조각에서 히드라 구체를 생성하는 방법을 설명하고, 적절히 접힌 샘플을 식별하는 지침을 제공합니다. 라이브 이미징에 일반적으로 사용되는 세 가지 장착 전략에 대한 단계별 설명이 제시되어 있습니다. 역현미경에서의 영상 촬영은 SDCM의 일반적인 형상으로, 구체는 일반적으로 아가로스 웰에 장착됩니다. 이로 인해 시야 안에 머무르면서도 자유롭게 움직이고 회전할 수 있습니다. 플루오로에틸렌 프로필렌(FEP)은 굴절률(1.34)이 물(1.33)에 가까워 일반적으로 장착에 사용됩니다. FEP 호일은 특정 실험 요구에 맞춘 맞춤형 영상 챔버로 열성형할 수 있습니다. 마찬가지로, 유리 모세관 내 아가로스 내 구체체 내에 구체체를 삽입하는 것은 LSFM의 표준 접근법입니다. 이 기술은 모세혈관당 샘플 수를 제한하지만, 다중 뷰 검출에 필요한 회전을 용이하게 합니다. 마지막으로, SDCM과 LSFM을 모두 사용하여 라이브 이미징을 수행하는 방법을 시연하고, 실험 목표에 따라 적절한 기법을 선택할 때 고려해야 할 주요 사항들을 논의합니다. 이 프로토콜은 Hydra에 최적화되어 있지만, 그 기본 원리는 동적 형태발생 과정을 연구하기 위해 장기 영상에 의존하는 다른 모델 시스템에도 널리 적용 가능합니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
프로토콜
설명된 모든 절차는 스위스 국가 동물 연구 규정의 윤리 지침을 준수하여 수행되었습니다. 실험을 시작하기 전에, 하이드라는 정상적으로 주 3회, 최소 2주 동안 먹여야 합니다. 실험에 사용되는 히드라는 건강해야 하며, 성기 없고 발아가 없어야 합니다. 최근에 새겨진 히드라도 피해야 하며, 이 히드라는 집단 내 다른 히드라 들에 비해 길이가 짧아 식별할 수 있습니다.
1. 히드라 구형 준비 (그림 1)
- 먼저 해리 배지(DM; 레시피는 표 1 참조)를 넣은 접시를 준비하세요. 실험 중에는 DM을 실온에 두어야 합니다.
- 나머지 작업 공간을 준비하세요: 10cm 세포 배양 접시의 뚜껑을 입체경 아래에 올리고 Hydra 배지(HM; 레시피는 표 1 참조)를 한 겹 채웁니다. 세포 배양 접시 자체는 남은 히드라 조직을 수집하는 데 사용될 수 있습니다. 마지막으로, 하이드라 를 모아 입체경 가까이에 접시에 넣으세요.
- 유리 파스퇴르 피펫을 사용해 히드라 를 입체경 아래 뚜껑 쪽으로 옮기세요. 파스퇴르 피펫은 무딘 것이 권장됩니다. 이를 위해 빠르게 끝을 불꽃에 담가세요.
- 종종 히드라는 매체 표면에 떠 있습니다; 히드라 가 뚜껑 바닥까지 가라앉을 때까지 다시 피펫팅하세요.
- 히드라를 신체 B2와 B3 부위 사이에 하나의 직선 절단선을 만들어 반으로 나누세요(그림 1A, B). 구체가 절단된 신체 부위를 일관되게 해야 하며, 이는 구체의 행동에 큰 영향을 미칩니다.
참고: 특정 신체 부위를 절단할 필요가 없다면, 신체 축 중앙에서 구상체를 사용하세요. 표현형이 강한 동물(예: 자궁외 머리가 많은 동물)의 경우, 신체 축의 중앙과 가장 닮은 부위를 찾아보세요. - 히 드라 가 완전히 이완될 때까지 기다려. 필요하다면 떠 있는 신체 부위를 다시 피펫으로 눌러 다시 가라앉게 하세요.
- 반으로 나뉜 조직이 이완되면, 절단된 조직 끝은 여전히 부어오른 상태로 남아 있습니다. 부기가 끝나는 부분에 두 번째 절개를 하여 조직 고리를 만듭니다(그림 1C). 히드라 반쪽 각각에서 조직 고리를 잘라낼 수 있습니다.
- 뚜껑에서 남은 머리와 발끝을 떼어내세요. 이 남은 신체 부위들은 재생되도록 내버려 둘 수 있습니다. 히드라 가 제대로 재생되고 최소 2주 이상 먹이를 받으면, 다른 실험에 재사용할 수 있습니다.
- 조직 고리를 잘라. 열린 고리를 여러 개의 조직 조각으로 잘라내세요(그림 1D). ~100-150 μm x ~300-500 μm 크기의 직사각형 조직 조각을 목표로 합니다.
참고: 링당 잘라낼 수 있는 조각 수는 가변적입니다. 예를 들어, 105 균주의 히드라 들은 AEP 계통의 히드라 보다 보통 훨씬 얇습니다. 조직 고리가 너무 작아 두 개의 적절한 조직 조각을 만들 수 없으면, 열린 고리를 다듬어 적절한 크기의 조직 조각 하나를 만들고 나머지 작은 조각은 버립니다. - 조직 조각을 상온 DM으로 옮기고, 조직 조각과 함께 이동하는 HM의 양을 최소화하세요.
- 구형 카드는 DM에서 3-4시간 접히도록 두세요. 구형들이 제대로 접혔는지 평가하세요. 성공적으로 접힌 구형은 둥근 형태를 가지며 외배엽으로 완전히 덮여 있어야 합니다(그림 2A-D).
참고: 아직 절반 이상의 구체가 성공적으로 접히지 않았다면, DM에 30분 더 남겨두세요. - 직경 250-350 μm의 일부 접힌 구상체(그림 2E-H). 플라스틱 섬유와 같은 외부 물질에 오염된 구체는 피하세요. 장착 전에 선택한 구형을 HM으로 이동시키세요.
참고: 실험이 보충된 배지(예: 약물 치료)에서 수행될 경우, 구체를 즉시 이 배지로 옮기십시오. 스펠로이드가 HM으로 이동하면 진동이 시작된다는 점을 기억하세요.
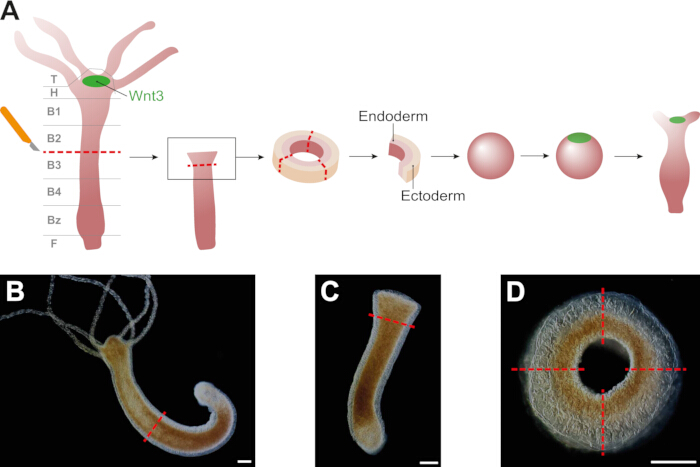
그림 1: 히드라 구형 준비. (A) 히드라 구형 생성 과정을 보여주는 도면. 구체는 축 형성, 신장 및 분화를 촉진하는 Wnt3+ 조직자를 재형성함으로써 대칭을 깨뜨립니다. (B) 첫 번째 절단은 (A)에 표시된 대로 B2와 B3 영역의 경계인 중간 부분에서 이루어집니다. (C) 각 절반은 부풀어 오른 부위 바로 아래를 다시 절단합니다. (D) 생성된 조직 고리를 잘라내어 고리 크기에 따라 2-4개의 조직 조각으로 나눕니다. 스케일 바: 250 μm. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
| 매체 | 구성 | 저장 온도 | ||
| 해리 매체(DM) | 3.6 mM KCl, 6 mM CaCl2, 1.2 mM MgSO4, 6 mM 시트레이트 나트륨, 6 mM 피루브산 나트륨, 4 mM 포도당, 12.5 mM TES (pH 6.9) | 4 °C | ||
| 하이드라 미디엄 (HM) | 1 mM CaCl2, 0.2 mM NaHCO3, 0.02 mM KCl, 0.02 mM MgCl2, 0.2 mM 트리스-HCl (pH 7.4) | 상온 | ||
표 1: 미디어 구성 및 저장
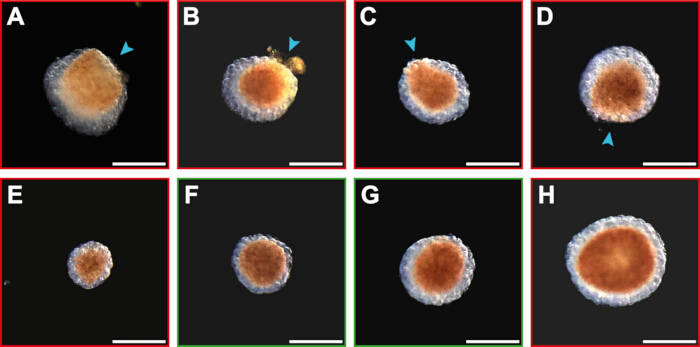
그림 2: 펼쳐진 구형과 접힌 구형의 개요. (A-D) 접히지 않은 구형은 가장 적게 접힌 것부터 거의 완전히 접힌 것까지 배열되어 있습니다. 접힘 없는 구형은 외배엽이 내배엽을 덮지 않는 영역(파란색 화살촉으로 표시)으로 인식됩니다. (E) 너무 작은 구형 예시. (F-G) 최적 크기(250-350 μm)의 접힌 구상체. (H) 너무 큰 구형 예시. 이미지는 Echo의 Revolve 하이브리드 현미경(RVL2-K)을 사용해 4웰 유리 하단 이미징 플레이트에서 4.0x 대물렌즈와 투과광 카메라(컬러)를 사용한 역전 모드로 촬영되었습니다. 스케일 바: 250 μm. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
2. 마운팅 전략
참고: 현미경 배치와 실험 설계의 조합이 실험에 가장 적합한 장착 전략을 결정합니다. 여기서는 다양한 용도에 적용할 수 있는 다양한 장착 기법을 설명합니다.
- 아가로스 웰에서의 마운팅 (그림 3A)
- 1% 아가로스를 혼합물에 끓여 완전히 녹일 때까지 준비하세요.
참고: 1% 아가로스 재고는 미리 준비하여 꽉 닫힌 유리병에 1개월간 보관할 수 있습니다. 아가로스를 5번 이상 다시 가열하지 않는 것을 권장합니다. 하지만 아가로스 웰은 실험 당일에 준비해야 합니다. - 아가로스가 아직 액체일 때, 4웰 유리 바닥 이미징 플레이트 바닥에 두께 2mm 두께의 층을 완전히 덮어주세요.
참고: 영상 장비와 검사할 조건 수에 따라 다른 영상판도 적합할 수 있습니다. 처리를 사용하는 실험에서는 아가로스 분량을 반드시 보상하세요. 열안정성 화학물질을 아가로스에 직접 혼합할 수 있습니다. 2% 아가로스 용액을 만들고 끓인 후 원하는 화학물질의 2배 용액과 섞습니다. 평소처럼 아가로스를 1x 용액으로 덮으세요. 화학물질이 열에 적합하지 않다면, 영상 플레이트 내 아가로스 부피를 고려해 농도를 조절하고, 이 용액을 사용해 아가로스를 덮습니다. - 아가로스는 완전히 굳을 때까지 두세요. 그 다음, 아가로스에 웰을 만듭니다. 각 우물 사이에 최소 10mm 두께의 아가로스를 남겨 구조적 완전성을 확보하세요.
- 플런저를 누르고 있는 상태에서 P1000 피펫 끝을 아가로스 쪽에 밀어 넣어 영상판 바닥에 닿게 합니다.
참고: 아가로스 웰의 크기는 예를 들어 다른 크기의 팁을 사용하거나 스탬프를 사용해 조절할 수 있습니다. 샘플이 움직일 충분한 공간이 있어야 합니다. - 피펫을 곧게 들어 이미징 플레이트 바닥과 수평 맞춰 보세요. 그 다음 피펫 끝을 흔들고 회전시켜 아가로스를 자르세요.
- 피펫의 플런저를 해제한 뒤, 피펫을 위로 천천히 위로 움직여 천천히 아가로스에서 분리하세요.
- 플런저를 누르고 있는 상태에서 P1000 피펫 끝을 아가로스 쪽에 밀어 넣어 영상판 바닥에 닿게 합니다.
- 충분한 우물이 만들어질 때까지 우물 조개 과정을 반복하세요. 피펫이 너무 빨리 제거되거나 아가로스가 완전히 절단되지 않은 상태에서 웰 바닥에 일부 아가로스가 남아 있습니다. 이 웰들은 영상 품질에 영향을 미치므로 사용을 피하세요.
- 아가로스를 얇게 해머니 토르 코팅해 주세요. 매질의 증발을 막기 위해 뚜껑이 달린 이미징 플레이트를 사용하세요.
- 진탕 웰에 생긴 기포를 P20 피펫 팁으로 만지면 방출하세요.
- 하이드라 구형을 하나씩 영상판으로 옮겨. 구체가 즉시 우물에 떨어지지 않는다면, 피펫으로 부드럽게 밀어 구형 방향으로 유도합니다.
참고: 두 개의 구형이 같은 우물에 들어갈 수 있습니다. 두 개의 구형을 흡입으로 제거하고 다시 장착해 보세요. 구형 재흡입은 구형 및/또는 아가로스 우물에 손상을 줄 수 있다는 점을 유의하세요. 그럴 경우에는 다른 우물과 새 구형 원체를 계속 사용하세요. - 시료를 역현미경으로 촬영하세요(그림 4A).
- 1% 아가로스를 혼합물에 끓여 완전히 녹일 때까지 준비하세요.
- FEP 웰에서의 마운팅 (그림 3B)
- FEP 웰에서 기포를 제거하는 데 사용할 맞춤형 유리 피펫을 준비하세요(보충 그림 1).
- 유리 파스퇴르 피펫을 끝이 잡힐 수 있는 위치에서 불에 데우세요. 피펫을 계속 돌려서 고르게 가열하세요.
- 유리가 부드러워지기 시작하면, 피펫 끝을 빠르게 늘이면서 피펫을 불꽃에서 빼세요.
- 얇아진 부분을 깨뜨려 약 0.4-0.5mm 크기의 새로운 피펫 팁을 만듭니다. 피펫 끝을 재빨리 불꽃에 닿아 무딘가를 만지세요; 이게 피펫을 닫지 않도록 하세요.
- 유리 파스퇴르 피펫을 피펫이 넓어지는 부위에서 가열하세요. 피펫을 돌리지 말고, 피펫 끝이 처지기 시작하면 불꽃에서 빼세요. 피펫이 L자형으로 굳을 때까지 수평으로 잡으세요.
- 맞춤형 알루미늄 몰드 위에 FEP 호일을 진공 열성형하여 FEP 챔버를만듭니다. 6. 몰드의 크기는 다양한 시료 크기나 현미경 챔버에 맞게 조정할 수 있습니다. 히드라 구형의 경우, 직경 0.5mm의 우물이 가장 적합합니다.
- FEP 호일을 15 x 15cm 크기로 잘라내세요. FEP 호일을 열성형기 안에 고정하고 8분간 가열하세요.
- 알루미늄 몰드를 호일 아래에 놓으세요. 진공 상태에서 금형 주위에 호일을 30초 동안 형성합니다.
- 열성형된 FEP 호일에서 직접 챔버를 잘라내세요.
- FEP 챔버를 캔 공기로 먼지 없이 만들어 주세요. FEP 챔버를 HM으로 채우세요.
참고: 일반적으로 FEP 챔버에는 뚜껑이 없습니다. 즉, 이미징 중에 일부 매질이 증발하게 됩니다. 매질의 증발이 문제를 일으킨다면, 닫을 수 있는 챔버를 설계하세요 - 미리 준비된 유리 피펫을 사용해 웰에서 공기 방울을 배출합니다. 피펫 끝으로 공기 방울을 우물 밖으로 밀어내는 동작을 사용하세요.
- 모든 웰에서 기포가 없으면 히드라 구체를 하나씩 FEP 챔버로 옮기세요. 구체가 우물에 떨어지지 않으면 피펫으로 밀어 넣으세요.
참고: 두 개의 구형이 같은 웰에 떨어지면 피펫 흡입으로 두 개를 제거하고 다시 장착하세요. FEP 웰의 설계는 어떤 종류의 현미경을 사용할지 결정합니다. 일반적으로, 하나 또는 여러 개의 수평 검출 대상 물체가 있는 현미경이 적합합니다(그림 4B).
- FEP 웰에서 기포를 제거하는 데 사용할 맞춤형 유리 피펫을 준비하세요(보충 그림 1).
- 유리 모세관에 아가로스 내장된 마운팅(그림 3C)
- 1% 저녹점아가로스를 HM에 끓여 저녹점 아가로스가 완전히 녹을 때까지 끓입니다. 액체 아가로스 1mL를 미세원심분리관에 옮깁니다.
참고: 1% 저융점 아가로스 재고는 미리 준비하여 밀집된 유리병에 1개월간 보관할 수 있습니다. 필요하다면 아가로스를 37°C에서 유지하여 액체 상태로 유지할 수 있습니다. 하지만 샘플을 넣자마자 아가로스를 적극적으로 가열하지는 마세요. 이 단계에서 아가로스에 치료제(프로토콜 단계 2.1.2 참조) 또는 형광 구슬을 보충하는 것을 고려해 보세요. 이 비드는 멀티뷰 재구성에 사용할 수 있습니다. - 2-4개의 구형 진열을 아가로스에 옮기세요. 피스톤 로드를 유리 모세관에 완전히 삽입합니다; 피스톤 로드가 딱 맞게 맞아야 합니다.
- 모세관 끝을 진혈관에 삽입한 후 피스톤 로드를 천천히 당겨 모세관 안으로 끌어올립니다. 구형 없이 아가로스를 흡입하기 시작하고, 멈추지 않고 아가로스가 포함된 구상체를 모세혈관에 주입하세요.
참고: 최상의 영상 결과를 위해 개별 구체들은 잘 분리되어 아가로스 컬럼의 하단에 위치해야 합니다(그림 3C).
- 1% 저녹점아가로스를 HM에 끓여 저녹점 아가로스가 완전히 녹을 때까지 끓입니다. 액체 아가로스 1mL를 미세원심분리관에 옮깁니다.
- 아가로스에서 모세혈관을 제거하고 겉면은 휴지로 닦으세요. 모세혈관을 수평으로 잡고 아가로스가 굳을 때까지 회전시키세요; 이렇게 하면 구체들이 아가로스 기둥 중앙에 머무르도록 도와줍니다.
- 아가로스가 채워진 모세혈관을 HM에 넣어 샘플을 수분 상태로 유지하세요. 유리 모세관에 장착된 시료는 하나 또는 여러 개의 수평 검출 대물렌즈가 있는 현미경으로 영상을 촬영해야 합니다(그림 4C).
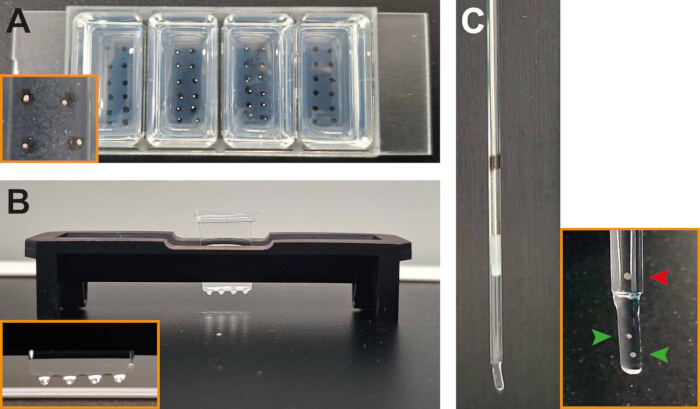
그림 3: 라이브 이미징을 위한 히드라 구형 장착. (A) (중간 두 방) 구체가 있는 아가로스 우물과 외부 방이 없는 구상체. (B) FEP 웰에 장착된 구형. (C) 방탕당에 내장되어 유리 모세관에 장착된 구상체. 영상 촬영을 위해 진혈 기둥은 유리 모세혈관에서 약간 밀려나갑니다. 따라서 구체는 아가로스 기둥(녹색 화살촉) 하단 근처에 위치시키되, 충분히 분리되어 있어야 합니다. 바닥에서 너무 멀리 떨어진 구상체(빨간 화살촉)는 효과적으로 촬영할 수 없습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
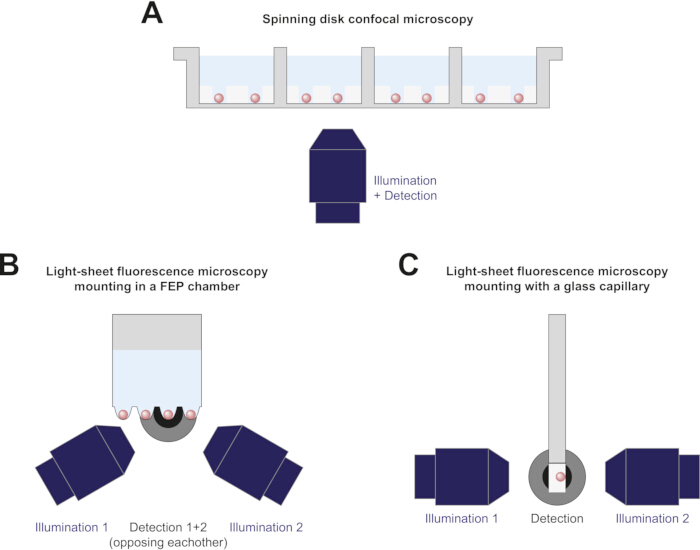
그림 4: 설명된 마운팅 전략에 적합한 영상 설정의 개략도. (A) 아가로스 웰에 장착하고 역회전 원반 공초점 현미경으로 촬영한 구체. (B) FEP 챔버에 장착되어 다중 웰 이미징에 적합한 라이트시트 형광 현미경으로 영상화된 구체체6. 명확성을 위해, 탐지 목표 1과 반대편에 위치한 두 번째 탐지 목표는 표시되지 않습니다. (C) 아가로스에 내장되어 유리 모세관에 장착된 구상체로, (B)와 다른 구성의 현미경을 사용하여 광판 형광 현미경을 사용할 수 있습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
3. 회전 디스크 공초점 현미경
- 회전 디스크 장치가 장착된 역현미경으로 샘플을 영상화하세요. 현미경 챔버 온도를 18-21 °C로 설정하세요. 현미경을 냉각할 수 없다면, 대신 방을 식히세요.
- 전체 샘플을 포함하는 시야가 있는 대물렌즈를 선택하세요. 아가로스 웰에 장착된 시료의 경우, 시야는 이상적으로 전체 웰을 포함해야 합니다.
참고: 특히 여러 샘플이 포함된 타임랩스 데이터셋의 경우, 건조 대물렌즈 사용이 권장됩니다. - 샘플 홀더를 현미경 스테이지에 넣으세요. 투과광을 켜고 노출 시간을 설정하세요.
- 샘플 내 존재하는 형광체에 대해 레이저 파장, 레이저 출력 및 노출 시간을 선택합니다. 광독성 위험을 줄이면서도 신호 대 잡음비를 유지할 수 있을 만큼 충분한 레이저 출력과 노출 시간을 조합하세요.
참고: 생체 샘플은 영상 촬영 중 크게 움직일 수 있습니다. 가능하다면 두 대의 카메라를 사용하여 형광과 투과광, 즉 이중 레이저 형광을 동시에 획득하는 것을 수행하세요. 두 개 이상의 채널이 이미징된다면, 정확한 중첩이 가장 중요한 채널을 동시에 획득하는 것을 우선시하세요. - 모든 샘플을 찾아 여러 이미지 위치로 설정하세요. 각 샘플에 대해 목표물에 가장 가까운 평면에서 시작해 첫 번째 초점이 맞지 않는 평면에서 끝나는 z-스택을 만든다. 히드라 구형의 경우 2 μm 단계가 권장됩니다.
참고: z-스택 생성이 항상 필요한 것은 아닙니다. 예를 들어, 히 드라 구체의 진동 거동을 연구할 때, 샘플의 적도면에 초점을 맞춘 단일 평면만으로도 충분하다. 하이드라 샘플이 아가로스 우물 바닥에 적절히 가라앉고 적절한 대물렌즈가 선택되면, 이 평면은 대물렌즈의 작업 거리 내에 있어야 합니다. - 타임랩스 매개변수를 설정하세요. 10분마다 촬영한 60-70시간 시간은 히드라 구형의 완전한 재생을 촬영하기에 적합합니다. 영상 촬영을 시작하세요.
4. 광판 형광 현미경
- 샘플을 수평 검출 대물렌즈가 있는 라이트시트 현미경으로 영상화합니다.
- 시작하기 전에, 조명 대물렌즈로 생성된 라이트 시트를 정렬하세요. 현미경 챔버 온도를 18-21 °C로 설정하세요. 현미경을 냉각할 수 없다면, 대신 방을 식히세요.
- 전체 샘플을 시야에 맞게 할 수 있는 검출 대물렌즈를 선택하세요. 샘플이 움직일 공간이 생기면 이를 수용하는 검출 대물렌즈를 선택하세요.
- 샘플 홀더를 현미경에 넣으세요. 시료가 유리 모세관에 장착된 경우, 피스톤을 아래로 눌러 시료가 유리에서 나오도록 하여 아가로스를 통해서만 영상화할 수 있습니다(그림 3C).
- 3절(회전 원반 공초점 현미경)에서 설명한 투과광, 형광, 다중 위치 및 타임랩스 설정을 설정하세요.
- 현미경에 다중 검출 대상이 장착되어 있지 않다면, 다중 시점 검출을 설정하여 여러 각도에서 샘플을 탐지합니다. 샘플의 절반 이상이 하나의 z-스택 내에서 검출될 수 있을 때, 180° 각도로 분리된 두 뷰만으로도 충분합니다. 또는 세 개에서 다섯 개의 뷰를 사용하세요.
- 적절한 스텝 크기로 z-스택을 설정하세요. 하이드라 구형의 경우 2 μm 스텝 크기를 권장합니다. z-스택은 샘플을 완전히 커버해야 합니다. FEP 웰에서 샘플이 자유롭게 움직이는 것을 촬영할 때는 전체 웰을 포함하는 z-스택을 만듭니다. 영상 촬영을 시작하세요.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
결과
우리는 회전 원반 공초점 현미경(SDCM)과 광판 형광 현미경(LSFM)을 모두 사용하여 히드라 구형 재생을 위한 장기 타임랩스 데이터셋을 성공적으로 생성했습니다. 재생은 두 영상 설정 모두에서 정상적으로 일어났으며, 구형은 대칭을 깨고 길어지며 촉수와 발이 발달했다(그림 5A, 그림 6A, 보조 영상 1, 보조 영상 2). 장시간 영상 촬영 후 재생된 동물들은 너무 운동성이 높아져 초점이 맞지 않거나 시야에서 완전히 벗어나기 시작했습니다(그림 5A).
형광 마커를 사용해 히드라 재생에 필수적인 동적 세포 과정을 시각화했습니다. 예를 들어, 히드라 구체는 액틴 섬유를 빠르게 재조직합니...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
토론
SDCM과 LSFM 모두 재생된 히드라 구형의 장기 타임랩스 데이터셋을 생성하는 데 적합합니다. 각 기법이 기반하는 광학 원리는 서로 다르기 때문에 고유한 장점과 한계를 제공합니다(표 2). 샘플의 완전하고 고해상도 뷰가 필요하지 않을 때는 SDCM이 선호됩니다. 한 번의 실험에서 여러 샘플을 이미징할 수 있어 약물 치료와 같은 다양한 조건을 테스트하는 데 특히 유용합니다. 또한 SDCM 데이터셋은 처리와 분석이 간편하여 두 방법 중 더 빠르고 접근하기 쉬운 방법입니다. 하지만 포괄적인 공간 개요가 필요할 때는 LSFM이 선호되는 접근법입니다. LSFM은 또한 고광감도 샘플 촬영에도 유리합니다. SDCM은 단일 점 주사 공초점 현미경에 비해 광독성을 크게 줄이지만, 여전히 전체 샘플을 반복적으로 조명에 노출시킵니다. LSFM은 얇은 광평면만 여기하여 빛 노출과 광손상을 최소화합니다13,14<...
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
공개 사항
저자들은 이해 상충이 없다고 선언한다.
감사의 글
FMI 첨단 영상 및 현미경 시설의 Laure Plantard에게 귀중한 조언을 주셔서 감사드립니다. 이 연구는 노바티스 연구 재단의 지원을 받았습니다.
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재료
```html
```
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 20×/0.8 Plan-Apochromat objective | Zeiss | 440640-9903-000 | 회전 디스크 공초점 현미경용 |
| 20x/1.0 W Plan-Apochromat water dipping objective | Zeiss | 421452-9700-000 | Zeiss Lightsheet 7에서 검출 렌즈로 사용 |
| 3D-printed holder for FEP chamber mounting | 맞춤형 | ||
| 4-well glass bottom imaging plate (#1.5H) | Ibidi | 80427 | |
| Agarose | Carl Roth | 3810.4 | |
| Aluminium mold for FEP chamber | 맞춤형 | ||
| Calcium chloride | Sigma-Aldrich | C4901 | |
| Canned air | Durable | POWERCLEAN STANDARD 400 | |
| Cell culture plate (6 cm) | Thermo Fisher Scientific | 150288 | |
| D-(+)-glucose | Sigma-Aldrich | G8769 | |
| FEP foil (127 μm thickness) | Adtech Polymer Engineering | ||
| FluoSpheres carboxylate-modified (0.2 μm, dark red) | Thermo Fisher Scientific | F8807 | |
| Glass capillary | Brand | 701904 | |
| Glass pasteur pipette (150 mm) | VWR | 612-1701 | |
| Hydra vulgaris | |||
| Imaging software | Visitron | VisiView | 회전 디스크 공초점 현미경용 |
| Inverted light microscope | Zeiss | Axio observer 7 | 회전 디스크 공초점 현미경용 |
| Light sheet microscope | Leica | Viventis Deep LS2 | |
| Light sheet microscope | Zeiss | Lightsheet 7 | |
| Low melting point Agarose | Thermo Fisher Scientific | R0801 | |
| Magnesium chloride | Sigma-Aldrich | M8266 | |
| Magnesium sulfate | Sigma-Aldrich | M2643 | |
| Microscalpel | pfm medical | 200300745 | |
| Pipette bulb | |||
| Piston rod transferpettor | Brand | 701932 | |
| Potassium chloride | Sigma-Aldrich | P9333 | |
| Safety Bunsen burner | INTEGRA Biosciences | FIREBOY plus | |
| sCMOS cameras | Photometrics | Prime 95B | 회전 디스크 공초점 현미경용 |
| Sodium bicarbonate | Fluka Analytical, Sigma-Aldrich | 71630 | |
| Sodium citrate dihydrate | Sigma-Aldrich | W302600 | |
| Sodium pyruvate | Sigma-Aldrich | P2256 | |
| Spinning disk confocal scanning unit (50 μm pinholes) | Yokogawa | CSU-W1 | 회전 디스크 공초점 현미경용 |
| Stereoscope | Leica | M80 | |
| TES | Sigma-Aldrich | T1375 | |
| Thermoformer | Yuyao Jintai Machine Factory | Jintai JT-18 | |
| Tissue culture dish (10 cm) | VWR | 734-2321 | |
| Tris-HCl buffer | Roche Diagnostics | 10812846001 |
참고문헌
- Bode, P. M., Bode, H. R. Formation of pattern in regenerating tissue pieces of hydra attenuata: I. Head-body proportion regulation. Dev Biol. 78 (2), 484-496 (1980).
- Fütterer, C., Colombo, C., Jülicher, F., Ott, A. Morphogenetic oscillations during symmetry breaking of regenerating hydra vulgaris cells. Europhys Lett. 64 (1), 137(2003).
- Weevers, S. L., et al. Mechanochemical patterning localizes the organizer of a luminal epithelium. Sci Adv. 11 (26), eadu2286(2025).
- Oreopoulos, J., Berman, R., Browne, M. Chapter 9 - Spinning-disk confocal microscopy: present technology and future trends. Meth Cell Biol. 123, 153-175 (2014).
- Stelzer, E. H. K., et al. Light sheet fluorescence microscopy. Nat Rev Meth Primers. 1 (1), 73(2021).
- Moos, F., et al. Open-top multisample dual-view light-sheet microscope for live imaging of large multicellular systems. Nat Meth. 21 (5), 798-803 (2024).
- Soriano, J., Colombo, C., Ott, A. Hydra molecular network reaches criticality at the symmetry-breaking axis-defining moment. Phys Rev Lett. 97 (25), 258102(2006).
- Livshits, A., Shani-Zerbib, L., Maroudas-Sacks, Y., Braun, E., Keren, K. Structural inheritance of the actin cytoskeletal organization determines the body axis in regenerating hydra. Cell Rep. 18 (6), 1410-1421 (2017).
- Hanson, A., et al. Automatic monitoring of neural activity with single-cell resolution in behaving hydra. Sc Rep. 14 (1), 5083(2024).
- Escobar, A., et al. Terminal differentiation precedes functional circuit integration in the peduncle neurons in regenerating hydra vulgaris. Neural Dev. 19 (1), 18(2024).
- Ferenc, J., Tsiairis, C. D. Studying Mechanical Oscillations During Whole-Body Regeneration in Hydra. Whole-Body Regenerat. 2450, 619-633 (2022).
- Bossert, P., Galliot, B. How to use hydra as a model system to teach biology in the classroom. Int J Dev Biol. 56 (6-8), 637-652 (2012).
- Jemielita, M., Taormina, M. J., Delaurier, A., Kimmel, C. B., Parthasarathy, R. Comparing phototoxicity during the development of a zebrafish craniofacial bone using confocal and light sheet fluorescence microscopy techniques. J Biophotonics. 6 (11-12), 920-928 (2013).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 1700003(2017).
- Ravichandran, Y., Vogg, M., Kruse, K., Pearce, D. J. G., Roux, A. Topology changes of hydra define actin orientation defects as organizers of morphogenesis. Sci Adv. 11 (3), eadr9855(2025).
- Maroudas-Sacks, Y., Garion, L., Suganthan, S., Popović, M., Keren, K. Confinement modulates axial patterning in regenerating hydra. PRX Life. 2 (4), 043007(2024).
- Bailles, A., et al. Anisotropic stretch biases the self-organization of actin fibers in multicellular hydra aggregates. Proc Natl Acad Sci. 122 (32), e2423437122(2025).
- Luu, P., Fraser, S. E., Schneider, F. More than double the fun with two-photon excitation microscopy. Comm Biol. 7 (1), 364(2024).
액세스가 제한되었습니다. 이 콘텐츠를 보려면 로그인하거나 체험판을 시작하세요.
재인쇄 및 허가
