이 프로토콜은 양이온성 펩타이드 Mel4와 펩타이드 모방 RK758의 항균 활성과 세포독성을 생성하고 평가하는 방법을 설명합니다. 화학 합성, 재조합 발현, 표준화된 기능 분석법을 통합함으로써, 펩타이드 및 소분자 모방체의 생산 및 시험을 위한 효율적인 워크플로우를 제공합니다.
이 논문에서
요약
초록
항균 펩타이드(AMP)와 그 합성 모방제는 특히 항생제 내성 위협이 커지는 상황에서 기존 항생제의 유망한 대안으로 부상하고 있습니다. 자연적으로 발생하는 AMP는 선천 면역계의 필수 구성 요소이며 다양한 미생물 병원체에 대해 광범위 활성을 보이고, 펩티도미틱스와 폴리머 기반 유사체를 포함한 합성 모방제는 안정성을 높이고 독성을 줄이며 약동학을 개선하도록 설계되었습니다. 본 연구는 AMPs와 소분자 펩타이드 모방체의 생성, 특성 분석 및 생물학적 평가를 입증하는 것을 목표로 합니다. AMP는 재조합 발현 시스템이나 고상 펩타이드 합성을 통해 생성되어 아미노산 서열과 구조 특성을 정밀하게 제어할 수 있습니다. 소분자 펩타이드 모방체는 구조적 안정성과 약리학적 성능을 향상시키기 위해 안트라닐산(2-아미노벤조산) 스캐폴드 등 화학적 전략을 사용하여 합성됩니다. 합성 후에는 화합물을 정제하고 생물학적 시험에 들어가기 전에 화학적으로 특성 분석됩니다. 항균 활성은 시험관 내 최소 억제 농도(MIC) 검사법을 사용하여 평가되며, 포유류 세포주에 대한 세포독성을 평가하여 선택성을 결정합니다. 대표적인 결과는 두 암포 및 그 모방 모두 Klebsiella pneumoniae 와 Escherichia coli에 대해 강력한 활성을 보이며, 이들의 광범위 항균 잠재력을 강조합니다. 전반적으로 이 프로토콜은 차세대 항감염제로서 항균 펩타이드 및 그 모방체의 개발 및 체계적 평가를 위한 포괄적이고 재현 가능한 틀을 제공합니다.
서론
항생제 내성(AMR)은 주요 전 세계 보건 위협으로 부상했습니다. 세계보건기구(WHO)에 따르면, AMR은 2019년에 약 127만 명의 사망에 직접적인 원인이 되었으며, 전 세계적으로 약 495만 명의 사망에 기여했습니다. 기존 항생제의 과사용과 오용은 다제내성 병원체의 출현을 부각시켰으며, 박테리아, 곰팡이, 바이러스, 원생동물과 같은 미생물에 대한 치료 옵션이 제한적으로 남겨졌습니다. 이번 AMR 위기는 효과적이고 안정적이며 내성 발생 가능성이 적은 대체 항생제 전략 모색을 촉진시켰습니다. 가장 유망한 후보 중 하나는 AMPs와 그 합성 모방체입니다.
AMP는 인간, 동물, 식물의 선천 면역 체계에서 중요한 역할을 하는 자연적으로 존재하는 분자입니다. 이들은 일반적으로 막 파괴, 미생물 대사 간섭, 면역 반응 조절과 같은 메커니즘을 통해 광범위 항균 활성을 보입니다. 예를 들어, 인간 카텔리시딘 펩타이드 LL-37은 박테리아, 곰팡이, 바이러스에 대해 강력한 활성을 보여주었습니다7. 그러나 유망한 잠재력에도 불구하고, 자연 AMP의 대규모 치료적 사용은 낮은 자연 풍부도로 인해 종종 제한됩니다. 또한, 많은 펩타이드가 기능적으로 활성화되기 위해 특정 번역 후 변형이 필요하기 때문에 자연 출처에서 활성 형태를 얻는 것은 어려울 수 있습니다.
천연 AMPs의 한계를 해결하기 위해 연구자들은 합성 유사체와 펩타이드 모방제를 개발했습니다. 모방체는 자연 암페르의 항균 효능을 보존하면서도 안정성, 선택성, 약동학적 성능을 향상시키는 작고 합리적으로 설계된 분자일 수 있습니다.
최근 펩타이드 화학과 분자생물학의 발전으로 고체 펩타이드 합성(SPPS), 액상 펩타이드 합성(LPPS), 재조합 발현 시스템과 같은 방법으로 AMPs의 효율적 생산이 가능해졌으며, 서열 조성, 전하 분포, 양형파성 등 주요 구조 매개변수를 정밀하게 제어할 수 있게 되었습니다10. 재조합 발현 시스템은 대규모 생산과 더 긴 또는 더 복잡한 폴리펩타이드에 적합합니다. 최적화가 완료되면 재조합 방법—일반적으로 발효 또는 바이오리액터 시스템을 사용—은 치료 펩타이드의 산업 생산에 비용 효율적이고 확장 가능한 접근법을 제공합니다11.
이 글은 AMPs와 그 모방체의 생산 및 평가를 위한 보완적 접근법을 제시합니다. 고체 화학 합성은 펩타이드 생성에 널리 사용되지만, 응집, 낮은 수율, 정제 문제로 인해 긴 서열이나 고양이온성 펩타이드에서는 비효율적이고 비용이 많이 들 수 있습니다. 반면, 화학 합성은 정밀한 구조 변형과 비자연 잔기의 짧은 펩타이드 모방체를 생성하는 데 매우 유리하다13. 반면 재조합 발현 시스템은 미생물 숙주에서 더 길거나 구조적으로 복잡한 펩타이드의 비용 효율적이고 확장 가능한 생합성 생산을 가능하게 하며, 순수 합성 접근법에서 발생하는 길이와 수율의 한계를 극복합니다. 화학적 및 생물학적 생산 전략을 통합함으로써 이 결합된 프레임워크는 단독 방법보다 더 큰 유연성, 확장성, 번역 가능성을 제공하여 기전적 연구와 치료 개발에 특히 적합합니다.
생산 후에는 두 가지 주요 분석을 통해 이들 화합물의 생물학적 평가가 수행됩니다. 항균 활성 분석법은 각 펩타이드 또는 모방체의 대표 미생물에 대한 억제 잠재력을 측정하여 그 스펙트럼과 효능에 대한 통찰을 제공합니다. 독성 검사는 포유류 세포주를 이용해 세포 적합성을 평가하여 안전성과 선택성을 보장합니다. 이러한 실험적 단계 설계, 합성, 기능 테스트를 통합함으로써, 이 프로토콜은 AMP와 그 합성 유사체의 효능과 안전성을 평가하는 포괄적인 틀을 제공합니다. 이 방법론들은 AMR이라는 전 세계적 도전에 대응하기 위한 새로운 항균제를 개발하고 검증하는 체계적인 접근법을 확립합니다.
프로토콜
1. 안트라닐아마이드 펩타이드 모방 RK758의 합성
- RK758은 N-벤질카바메이트 보호의 L-트립토판과 5-브로모 이사토산 무수물이라는 주요 유기 구성 요소에서 자체 합성됩니다. 여러 합성 접근법이 보고되었으며; 그러나 아래에 보고된 접근법은 우수한 확장성과 전반적인 수율을 보여주었으며, 이는 이전에 발표된 합성 프로토콜보다 개선된 것입니다14,15.
- 방법 1: 벤질(S)-(1-(((2-((삼부톡시카보닐)아미노)-3-(1H-인돌-3-일)-1-옥소프로판-2-일) 카바메이트 (2) 합성:
- 250mL 싱글넥 플라스크에 자기 교반봉이 장착된 상태에서 Cbz-L-트립토판(10.0g, 29.6 mmol)을 계량하여 30mL의 DMF와 80mL의 DCM에 녹인다.
주의: DMF는 선천적 결함을 유발하는 것으로 의심됩니다; 임신 중이라면 만지지 말고, 반드시 연기구 안에 넣어 다루세요. - HOBt(4.08 g, 29.6 mmol), N-Boc-에틸렌디아민(4.66 mL, 29.6 mmol), 디이소프로필에틸아민(8.31 mL, 59.0 mmol)을 추가하고 15분간 저어줍니다.
- EDC 염산염(11.3g, 59 mmol)을 추가하세요. 실온에서 20시간 저어주세요.
주의: EDC와 같은 카보디이마이드는 반복 노출 시 아나필락시스 반응에 민감해지는 것으로 알려져 있습니다; 적절한 장갑을 착용하세요. - 1:1(v/v) DCM/에틸 아세테이트를 사용해 TLC를 확인해 모든 Cbz-L-Trp가 소모되었는지 확인하세요.
- 반응이 끝난 후에는 회전 증발기를 사용해 반응을 농축하여 혼합물에서 디클로로메탄을 제거합니다.
- 슬러리는 약 300-400mL의 에틸 아세테이트에 용해합니다
참고: 1.1.1.6 단계에서는 디메틸포름아마이드 슬러리를 생성합니다. 현탁액을 녹일 만큼 충분한 에틸 아세테이트를 사용하세요. - 용액을 500mL 분리 깔때기에 50mL 물과 함께 부으세요. 분리 깔때기를 흔들어.
주의: 여기서 대량의 휘발성 용매가 사용되므로 분리 깔때기를 간헐적으로 배출하는 것이 필수적입니다. - 수층을 배수하고 유기 에틸 아세테이트 층은 유지하세요.
- 50mL의 물, 50mL의 포화 수용성 중탄산나트륨, 50mL의 포화 수용성 염화나트륨을 사용하여 1.1.1.7-1.1.8단계를 반복합니다.
- 남아 있는 유기층을 1리터 원뿔형 플라스크로 옮깁니다. 유기물을 건조시키면 무수 황산나트륨을 넣고 플라스크를 휘저어 자유롭게 흐르는 가루가 형성되도록 합니다.
- 혼합물을 1L 둥근 바닥 플라스크에 걸러낸 후, 회전식 증발기(40 °C 수욕, 180 mbar 진공)에서 건조할 때까지 농축합니다.
- 디에틸 에테르 50mL와 자기 교반봉을 넣고 슬러리를 45-60분간 저어줍니다.
참고: 금속 주걱으로 플라스크 벽에 붙은 고형물을 긁어내는 것이 효과적일 수 있습니다. - 슬러리를 여과하여 침전된 고형물을 수집하세요. 필터 케이크를 50mL 용량의 디에틸 에테르로 두 번 더 세척하세요. 흡입 상태에서 고형물을 건조시켜 87% 수율의 베이지색 분말 화합물 2를 얻습니다.
- 250mL 싱글넥 플라스크에 자기 교반봉이 장착된 상태에서 Cbz-L-트립토판(10.0g, 29.6 mmol)을 계량하여 30mL의 DMF와 80mL의 DCM에 녹인다.
- 방법 2: 삼부틸(S)-(2-(2-아미노-3-(1H-인돌-3-일) 프로파나미도) 에틸) 카르바메이트(3) 합성
- 고무 중격과 유리 마개가 장착된 250mL 두 목 둥근 바닥 플라스크에서, 자기 교반을 이용해 100mL 메탄올에 제품 2(10.8g, 22.3 mmol)를 녹입니다
참고: 유리 마개에 그리스를 바르지 마세요. 오염을 초래할 수 있습니다. - 저을 때는 유리 마개가 있는 구멍을 통해 탄소 위에 10% 팔라듐(1.07g)을 넣으세요. 슐렌크 매니폴드를 사용해 질소 가스를 혼합물에 최소 30분간 기포로 넣으세요.
참고: 아르곤과 같은 불활성 가스를 사용할 수 있습니다; 하지만 이 경우에는 N2 하우스가 충분하다. - 유리 마개를 2방향 연마 유리 조인트 어댑터로 교체하세요. 한 줄은 수소 풍선에, 다른 한 줄은 진공에 연결됩니다. 이음새에 PTFE 테이프를 붙여 밀폐 효과를 만듭니다.
- 플라스크를 열어 메탄올이 끓기 시작할 때까지 진공청소기를 돌린 다음, 빠르게 플라스크를 열어 수소 풍선을 발견하세요. 두 번 더 반복하세요.
- 반응을 관찰하는 얇은 층 크로마토그래피(1:1 에틸 아세테이트/디클로로메탄 용액)를 사용하며, 주사기로 고무 중격을 통해 반응 혼합물의 작은 알리코트를 추출하고 40 μm PTFE 막 필터로 필터링합니다.
- 슐렌크 매니폴드에서는 진공을 질소로 전환합니다. 플라스크에서 고무 중격을 제거하고 질소가 남은 수소를 약 5분간 제거하도록 하세요.
주의: 탄소 위에 팔라듐이 수소가 흡착되면 공기 중 자연 발화가 발생할 수 있습니다. 반응은 불활성 가스 담요 아래에서 처리하는 것이 중요합니다. - 규조토 층을 에틸 아세테이트에 슬러리로 형성하고, 슬러리를 중간 다공성 유리 프릿 필터 깔때기로 옮기고, 500mL 둥근 바닥 플라스크에 부착한 뒤, 용매가 규조토 수준 바로 위가 될 때까지 가볍게 진공을 진행합니다
참고: 규조토 기둥은 깔때기에 적재할 때 최소 2–4cm 높이여야 합니다.
주의: 규조토/결정성 규소는 발암성이 매우 강하며 호흡기 노출을 통해 중피종을 유발하는 것으로 알려져 있습니다. 항상 연기구 처리나 적절한 호흡기 착용을 해야 합니다. - 피펫 등으로 반응 슬러리를 셀라이트 컬럼 상단에 옮기되, 셀라이트 표면층을 손상시키지 않도록 주의하세요. 플라스크에 소량의 반응 슬러리(<2 mL)만 남을 때까지 반복합니다
참고: 베드 위에 충분한 용매 헤드가 쌓인 후에는 플라스크의 내용물을 필터 깔때기에 부을 수 있습니다. - 깔때기/플라스크에 가볍게 진공을 가볍게 당겨 용매 헤드가 침대 바로 위에 닿게 한 후, 플라스크 안의 내용을 소량의 에틸 아세테이트로 세척한 후 3–4번 반복합니다
참고: 셀라이트 위에 있는 팔라듐/탄소층은 절대 공기에 노출되어서는 안 됩니다. - 모든 제품이 걸러질 때까지 패드를 계속 세척하세요; 이는 필터링된 용매를 작은 TLC 플레이트에 떨어뜨리고 자외선을 이용해 확인할 수 있습니다.
- 회전식 증발기에서 모든 용제를 제거하세요. 잔류물에 소량의 디클로로메탄(5mL)을 첨가하고 디에틸 에테르(50 mL)를 첨가하여 침전시킵니다.
- 혼합물을 여과하여 중간체 3의 정량 수율을 제공하는 침전물을 유지합니다.
- 고무 중격과 유리 마개가 장착된 250mL 두 목 둥근 바닥 플라스크에서, 자기 교반을 이용해 100mL 메탄올에 제품 2(10.8g, 22.3 mmol)를 녹입니다
- 방법 3: 테르트-부틸(S)-(2-(2-(2-(2-아미노-5-브로모벤자미도)-3-(1H-인돌-3-일)프로파나미도)에틸) 카르바메이트 (4) 합성
- 250mL 오븐 건조 단일 목 둥근 바닥 플라스크에 제품 3(5.00g, 14.5 mmol)과 5-브로모이사토익 무수물(5)(3.50 g, 14.5 mmol)을 계량합니다. 무수 아세토니트릴 50mL를 추가합니다.
참고: 무수 아세토니트릴은 용매를 활성화된 알루미나 컬럼을 통해 용매를 침투시켜 정제 시스템에서 얻었습니다. - 플라스크에 수냉식 역류 응축기와 무수칼슘 염화칼슘이 채워진 건조관을 장착하고 PTFE 테이프로 접합부를 밀봉하세요.
- 혼합물을 역류할 때까지 가열하세요(b.p. 아세토니트릴 = 82 °C), 오일 욕조 온도 = 100 °C. 역류 시 18시간 또는 TLC에서 3회 섭취를 확인할 때까지 저어주세요. 완성 후에는 반응 혼합물을 진공 상태에서 건조할 때까지 농축합니다.
- 고형물에 아세토니트릴 30mL와 디에틸 에테르 50mL를 첨가하고 혼합물을 여과하여 고형 생성물을 유지합니다. 고체 제품을 모아 타이틀 화합물이 4, 78% 수율을 부여합니다.
- 250mL 오븐 건조 단일 목 둥근 바닥 플라스크에 제품 3(5.00g, 14.5 mmol)과 5-브로모이사토익 무수물(5)(3.50 g, 14.5 mmol)을 계량합니다. 무수 아세토니트릴 50mL를 추가합니다.
- 방법 4: tert-butyl (S)-(2-(2-(2-(2-(2-(2-naphthamido)-5-브로모벤자미도)-3-(1H-인돌-3-yl)프로파나미도)에틸) 카르바메이트 합성
- 50mL 오븐 건조 단일 목 둥근 바닥 플라스크에 2-나프토일 클로라이드(572 mg, 3.0 mmol)를 10 mL의 디클로로메탄에 녹입니다. 플라스크에 고무 비중격을 장착하세요. 이 플라스크는 이후 "플라스크 A"라고 부릅니다.
참고: 상업 공급업체의 나프토일 클로라이드는 연구에서 사용되었으나,옥살릴 클로라이드를 이용해 2-나프토산에서 생성한 결과도 유사했습니다. - 별도의 오븐 건조 100 mL 싱글 넥 둥근 바닥 플라스크에 4 제품 (544 mg, 1.0 mmol)을 계량합니다. 이 플라스크는 이후 "플라스크 B"라고 부릅니다.
- Flask B에 고무 비중격을 장착하고, 주사기 바늘과 루어 어댑터를 사용해 Schlenk 매니폴드에 연결하세요. 진공 상태에서 플라스크 B를 퍼지하고 질소로 다시 채우는 과정을 두 번 반복하세요.
- 플라스크 B에 주사기로 무수 디클로로메탄 20mL를 추가하고, 주사기로 트리에틸아민(455 μL, 3.24 mmol)을 플라스크 B에 추가하며, 얼음 목욕 위에서 10분간 식힙니다.
- 플라스크 A의 내용을 적절한 크기의 주사기에 담아내세요. 주사기에서 나온 용액을 플라스크 B에 떨어뜨리며 저어줍니다.
참고: 트리에틸아민 염산 생성은 용매 위에서 흰색 연기로 볼 수 있습니다. 산 염화 용액을 넣은 후 얼음 욕조에서 꺼내세요. - TLC 분석을 기준으로 화합물 4가 모두 소모될 때까지 혼합물을 저어줍니다. 혼합물을 회전식 증발기(600 mbar, 40 °C)에서 거의 건조 상태에 가까울 때까지 농축합니다.
- 혼합물을 물(30 mL)과 에틸 아세테이트(70 mL)로 나누어 나누세요. 분리된 깔때기를 흔들어 층을 섞고 수층을 버려 넣으세요.
- 유기 혼합물을 NaHCO3 (30 mL)과 NaCl의 포화 수용액으로 세척하세요. 무수성 Na2SO4 를 첨가하여 혼합 시 자유롭게 흐르는 가루가 관찰될 때까지 유기층을 건조시킵니다.
- 회전 증발기(170 mbar, 40 °C)에서 건조할 때까지 농축합니다. 조유 고형물을 아세토니트릴(15 mL)과 디에틸 에테르(15 mL)로 분쇄하여 70% 수율의 오프화이트 고체 화합물을 얻습니다.
- 50mL 오븐 건조 단일 목 둥근 바닥 플라스크에 2-나프토일 클로라이드(572 mg, 3.0 mmol)를 10 mL의 디클로로메탄에 녹입니다. 플라스크에 고무 비중격을 장착하세요. 이 플라스크는 이후 "플라스크 A"라고 부릅니다.
- 방법 5: (S)-N-(2-((1-((2-아미노에틸)-3-(1H-인돌-3-일)-1-옥소프로판-2-일)카르바모일 합성) -4-브로모페닐)-2-나프타마이드 (7)
- 중간 6 현탁액(1.5g, 2.15 mmol)을 디클로로메탄(최종 농도 0.2 M)에 1,2-에탄에디티올(DCM 부피 대비 20%)으로 처리합니다.
주의: 1,2-에탄에디티올은 저농도에서도 메스꺼움을 유발할 수 있는 불쾌한 냄새가 있습니다. 훈풍 후드에 보관하세요. - 혼합물을 얼음 목욕에 식힌 후 트리플루오로아세트산(DCM과 같은 부피)으로 처리하세요. 혼합물을 0°C에서 2시간 동안 저어줍니다.
- 완료 후에는 질소 가스로 퍼레이싱하여 반응 혼합물을 농축합니다
참고: 배기가스는 냄새 배출을 제한하기 위해 표백제 트랩을 통해 기포로 배출될 수 있습니다. - 조잡한 고형물을 디에틸 에테르(10mL)로 분쇄하고 여과하여 고형을 수집하세요. 필터 케이크를 디에틸 에테르(각각 10mL)로 두 번 세척한 후, 흡입 상태에서 고형물을 건조시키세요.
- 중간 6 현탁액(1.5g, 2.15 mmol)을 디클로로메탄(최종 농도 0.2 M)에 1,2-에탄에디티올(DCM 부피 대비 20%)으로 처리합니다.
- 방법 6: tert-butyl (S,Z)-(3-((1H-인돌-3-일)메틸)-1-(2-(2-(2-나프타미도)-5-브로모페닐)-1,4-디옥소-9-(페닐리미노)-2,5,8,10-테트라아자도데칸-12-일) 카르바메이트 합성 (9)
- 중간 7(1.0g, 1.4 mmol), 티우레아 유도체 8(415 mg, 1.4 mmol), 트리에틸아민(1.01 mL, 4.2 mmol)을 N, N-디메틸포름아마이드(5 mL)에 넣어 단일 목 둥근 바닥 플라스크를 충전합니다.
- 반응을 -5°C까지 염수-빙수 목욕에서 식히고, 염화수은(760mg, 2.8mmol)을 넣고 16시간 동안 저어줍니다.
주의: 염화수은(II) 염화는 구강, 피부, 호흡기 노출 로 치명적입니다. 또한 수생 생물에 매우 독성이 강합니다. 화학물질 저항 장갑, 안구 보호구, 신체 보호구를 착용하세요. 또한, 염화수은(II) 용액을 에어로졸화하는 것을 피하고 훈풍 후드에서 처리하세요. 이 과정에서 발생하는 폐기물이 다른 유기물 배출과 분리되도록 하고, 수은 폐기물이 배수구로 유입되지 않도록 해야 합니다. - 완성 후 혼합물을 2-프로판올로 희석하고 셀라이트층을 통과시켜 여과물을 수집합니다.
- 여과물을 회전 증발기에서 건조할 때까지 농축한 후, 3:97 메탄올/디클로로메탄을 용출액으로 사용하여 실리카 위에 플래시 컬럼 크로마토그래피를 적용합니다.
- TLC를 사용해 수집한 분획을 분석한 후 순수 분획을 채취하여 타이틀 화합물을 구입하세요.
- 방법 7: RK758의 합성
- Boc이 중간 8을 제거하여 RK758 을 만드는 방법은 Step 1.1.5와 동일합니다.
- 결과 생성물을 1:1(v/v) 아세토니트릴/초순수수 5mL에 재용해한 후, 나사 캡인 붕규산 유리 바이알로 옮깁니다. 용액을 액체 질소 욕조에 얼린 후 동결 건조하여 제품을 만듭니다.
참고: 냉동 시 균열을 방지하기 위해 사용되는 바이알이 붕규산염인지 확인하는 것이 중요합니다.
주의: 액체 질소 노출은 동상이나 피부 손상을 일으킬 수 있습니다. 적절한 장갑과 안구 보호구를 착용하세요.
- 방법 1: 벤질(S)-(1-(((2-((삼부톡시카보닐)아미노)-3-(1H-인돌-3-일)-1-옥소프로판-2-일) 카바메이트 (2) 합성:
2. 고양이온성 항미생물 펩타이드 Mel4(KNKRKRRRRRRGRGRGRR)의 재조합 생산 및 정제
- 프로덕션을 위한 최적화된 프로토콜
- 유전자 합성
- 다음 구성 요소로 유전자 카세트를 설계 및 합성합니다: HIS(재조합 펩타이드 분리용 6x/7x 히스티딘 태그, 포함체(IB) 형성을 위한 케토스테로이드 이소메레이즈(KSI) 태그, 그리고 단백질 모티프에서 KSI와 His 태그를 지속 가능하게 화학물질 없이 절단하기 위한 담배 에칭 바이러스(TEV) 절단 부위(ENLYFQ↓G, S, A, M, C, H).
- 절단 직후 아미노산(G, S, A, M, C, H)을 선택하여 AMP의 활성에 영향을 주지 않도록 하세요.
참고: 글리신은 TEV 절단의 가장 높은 효율을 제공합니다. N 말단 또는 C 말단에 위치한 단일 아미노산은 AMPs의 물리화학적 특성에 영향을 미칠 수 있으며, 따라서 AMPs의 활성에 영향을 미칠 수 있습니다. - 5' XbaI 및 3' XhoI 제한 부위와 함께 측면 영역을 포함한 합성 유전자 서열을 합성합니다. 아미노산 서열은 표 1 에 제시되어 있으며, 도식적으로는 그림 1에 나와 있습니다.
- 복제
- 호환 가능한 제한효소를 사용하여 pET 벡터를 소화합니다.
참고: 이 경우 p15TVL 플라스미드(pET15b 유도체, Ampr, T7 프로모터)는 XbaI, XhoI, ScaI 와 함께 소화하여 원치 않는 조각을 절단했습니다. - 소화 조각의 재결합을 방지하기 위해 송아지 장내 알칼리성 인산효소를 37°C에서 10분간 처리하십시오. 합성 His-KSI-Mel4 유전자를 XbaI 와 XhoI 와 함께 20 μL 반응으로 소화합니다.
- QIAquick PCR 정제 키트를 사용하여 모든 제한효소 조각을 정제하세요. 또는 겔 전기영동을 실시하여 원하는 벡터 조각과 관련된 밴드를 절단한 후, 겔 추출 키트를 사용해 젤에서 조각을 추출합니다.
참고: 정제된 조각은 분광광도측정법(NanoDrop)을 사용하여 정량하여 연결을 최적화해야 합니다.
- 호환 가능한 제한효소를 사용하여 pET 벡터를 소화합니다.
- 연결과 변형
- pET 벡터에 삽입한 소화된 합성 유전자를 연결합니다. 삽입물과 벡터의 비율이 등몰인지 확인하세요.
- 혼합물을 T4 리가세와 함께 16°C에서 하룻밤 배양하세요. 각각 열충격 또는 전기천공 방법으로 화학적으로 또는 전기적으로 적합한 DH5α로 변환됩니다.
- 화학적으로 적합한 DH5α 세포를 플라스미드 DNA와 부드럽게 혼합하여 얼음 위에 배양하여 DNA 부착을 가능하게 합니다. 그 후 42°C에서 30초간 열충격을 가해 DNA 흡수를 촉진한 뒤, 얼음 위에서 빠르게 냉각합니다.
- 항생제 없는 450 μL LB 육수 배지에서 37°C에서 1시간 동안 회복한 후, 적절한 항생제가 포함된 선택적 한천에 세포를 배지합니다.
참고: 변형된 군체는 보통 하룻밤 부화 후에 나타납니다. 전기적격 DH5α 세포의 경우, 정제된 소량의 소량의 정제되고 염이 없는 플라스미드 DNA(일반적으로 10–100 ng의 1–2 μL 용량을 ~50 μL 세포에 담음)를 냉각된 전기천공 쿠벳에 넣은 세포와 혼합합니다. - 짧은 냉각 후에는 단일 펄스를 투여합니다(일반적인 설정: 0.2cm 간격의 쿠벳은 1.8 kV, 시간은 ~5ms 정도 지속되며, 기기/큐벳에 따라 조절), 탈염 DNA와 얼음 냉각 시약을 사용해 아크 발생을 방지합니다.
- 즉시 ~450 μL 미리 가열된 LB를 추가하고, 37°C에서 1시간 정도 흔들어 회수한 후 선택적 한천을 접시합니다.
- 플라스미드 정제 키트를 사용해 LB 육수에 배양 변형체를 하룻밤 동안 넣어 플라스미드 분리합니다. 표 1 의 프라이머를 이용해 PCR로 최종 플라스미드 구성체를 검증하고, Sanger 시퀀싱으로 서열을 확인한다.
- 검증된 플라스미드를 발현 숙주(화학적 또는 전기적 적합성)인 E. coli BL21(DE3)으로 변환합니다.
- 유전자 합성
- 최적화된 발현체 및 포함체(IB) 생성
- 10 mL LB 육수(암피실린 100 μg/mL)를 접종하고 37 °C에서 하룻밤 동안 배양합니다. 이 샘플을 사용해 100mL를 접종하고, 이후 1L 생산 배양을 진행합니다.
- 시간 0 = 0.1에서 LB에서 배양 광 밀도(OD600)로 희석합니다. LB 배지를 1% 포도당과 100 μg/mL 암피실린을 보충하여 사용하세요.
- 37 °C에서 배양하고 OD를 측정하여 로그 단계(OD600 0.5–0.6)에 도달합니다. 일반적으로 0.1 mM 농도의 낮은 농도의 이소프로필 β-D-1-티오갈락토피라노사이드 IPTG를 유도합니다.
포함체 형성을 촉진하기 위해 37°C에서 16–24시간 동안 유지하세요. - 16시간에서 24시간 동안 계속 부화하세요. 세포를 원심분리(5,000 x g, 4 °C)로 10분간 채취하고, 펠릿은 -80 °C에서 보관합니다.
- 세포 용해와 단백질 분획
- 얼음 위에 있는 세포 펠릿을 해동한 후 버그버스터 시약에 재현탁하여 화학적 용해를 시작한다. 용해액을 4,000 x g 에서 4 °C에서 20분간 원심분리합니다. 상청액을 용해성 단백질 분획으로 수집하세요.
- 남은 펠릿을 세척한 후 10% (v/v) Bugbuster를 MilliQ 물에 다시 담가세요. 현탁액을 초음파 처리하여 불용성 단백질 분획(포함체)을 완전히 회수합니다.
- 샘플을 5% β-머캅토에탄올 함유 100 μL SDS-PAGE 샘플 버퍼로 처리합니다. 혼합물을 95°C에서 5분간 배양하여 단백질의 완전한 변성을 보장합니다.
- SDS-PAGE 전기영동
- 변성된 용해물을 15% SDS-PAGE 겔 복제에 적재하여 표준 전기영동 분리를 수행합니다.
- 젤 하나를 물에 1시간 정도 씻어주세요. GelCode Blue 스테인 리시약을 사용해 하룻밤 동안 스테인을 발라주세요. 다음 날 물로 염색을 제거하여 밴드가 명확히 보일 때까지 진행합니다.
- Biorad Gel Doc 기기와 Image Lab을 사용하여 염색된 젤을 시각화하고 문서화하여 총 단백질 프로필(TCP)과 분획 분포를 평가합니다(그림 2A).
- 웨스턴 블롯팅(면역검출)
- 염색되지 않은 젤, 니트로셀룰로오스 막, 필터 페이퍼, 스펀지를 전이 버퍼(20 mM Tris-HCl pH 7.4, 150 mM NaCl, 0.1% Tween 20)에서 평형으로 만듭니다. 전송 샌드위치를 조립하고 100V 전압에서 1시간 동안 상온에서 전송을 수행합니다.
- 막을 차단 버퍼(TBST에 탈지분유 5% 사용)에서 1시간 동안 실온에서 배양하여 비특이적 결합을 방지하세요.
- 막을 4°C에서 4°C에서 부드럽게 교반하며 밤새 생쥐 항-HisTag 1차 항체(1:1,000 희석)와 함께 배양합니다.
- 멤브레인을 TBST로 각각 5분씩 세 번 세척하세요. 막을 HRP 결합 항마우스 IgG(차단 완충액 1:5,000 비율로 희석)와 함께 실온에서 1시간 배양합니다.
- 세 번의 TBST 세척을 마지막으로 수행하세요. 강화 화학발광(ECL) 기질을 막에 1분간 적용한 후 화학발광 이미저나 X선 필름 노출을 통해 시각화합니다. 이미지를 문서화하세요( 그림 2B에서 볼 수 있습니다).
- IB 분리 및 친화성 정제
- 세포 펠릿을 용해 완충제(100 mM Tris· Cl, pH 7.0, 5 mM EDTA, 5 mM DTT (770 mg/litt), 5 mM 벤자아미딘· HCl(780 mg/리터)을 사용하며, 기계적 용해(예: 프렌치 프레스/초음파 기법)를 수행합니다. 불용성 KSI-Mel4 IB 펠릿을 분리하기 위해 원심분리기(20,000 x g, 4 °C, 20분간 분리).
- 펠릿을 세척 버퍼(100 mM Tris· Cl, pH 7, 5 mM EDTA, 5 mM DTT, 2 M 요소, 2% (w/v) Triton X-100). 펠릿을 2M 이상의 요소에 용해시키지 마세요.
참고: IB를 용해시키는 데 사용되는 요소의 농도는 TEV 프로테아제의 작동 범위 내에 있어야 합니다. - 제조사의 지침에 따라 BCA 키트를 사용해 분리된 IB를 정량화하세요.
- 피어스 시약 B와 시약 A를 부피 대 부피 비율 1:50으로 혼합합니다. 3배로 채취할 표준과 샘플 수를 기준으로 필요한 총 부피를 계산하세요.
- 소 혈청 알부민(BSA)을 기준으로 삼아 일련의 희석액을 만들어 3,000 μg/mL에서 200 μg/mL 사이의 표준 곡선을 만듭니다.
- 96웰 플레이트를 사용해 각 BSA 표준과 샘플(정제된 상정액과 재현탁 침전물 포함)을 25 μL의 피펫으로 웰에 주입합니다.
- 표준 또는 샘플이 포함된 각 웰에 준비된 BCA 작업 시약 200 μL을 추가합니다. 플레이트를 짧게 섞고 37°C에서 1시간에서 2시간 동안 배양하여 색이 현상되도록 하세요.
- 배양 후에는 분광광도계를 사용해 562nm 거리에서 플레이트의 흡광도를 측정합니다. BSA 표준의 흡수율을 알려진 농도와 비교하여 선형 또는 이차 표준 곡선을 생성합니다.
- His-KSI-Mel4 또는 재조합 Mel4 샘플의 단백질 농도를 생성된 표준 곡선과 비교하여 이를 결정합니다. TEV 절단 전후의 농도는 그림 3에 나타난다.
- 효소 절단 및 태그 제거
- 절단 반응: His-tag TEV 프로테아제(권장 몰 비율 1:50 대 1:100 프로테아제: 융합 단백질). 최대 효율을 위해 4°C에서 16시간 배양하세요.
- 태그 제거 및 고정 금속 친화성 크로마토그래피(IMAC) 정제:
- 절단 반응 혼합물을 신선한 니켈-니트릴로트리아세트산(Ni-NTA) 컬럼 위에 통과시킵니다. 결합 버퍼(용해 버퍼)와 함께 평형화된 Ni-NTA 수지.
- 절단 반응 혼합물을 장전하세요. 히스 태그가 부착된 성분들(KSI 조각과 TEV 프로테아제)은 수지에 결합합니다.
- TEV 절단 부위에서 잔류 G, S, A, M, C, H 아미노산이 포함된 비태그 재조합 Mel4 펩타이드를 포함하는 플로우 스루를 수집합니다.
- 이 추가 아미노산이 AMP의 활성에 영향을 미치지 않도록 MIC 분석(대조군으로 Mel4)을 사용하여 수행해야 합니다.
- 결합된 KSI 조각과 TEV 프로테아제를 용출 완충 구배(500 mM 이미다졸, 500 mM NaCl, 20 mM 인산나트륨 완충제, pH 8)를 사용해 용출합니다.
- Step 2.6.3에 명시된 BCA 분석을 수행합니다.
3. 항균 활성
- 미디어 준비
- 제조사 지침에 따라 [Mueller Hinton 육수, 양이온 조절(CAMHB), 트립티카제 대두 육수(TSB), D/E 중화 육수, 트립티카제 대두 한천(TSA)] 제조합니다. 또한, 10× 농축 PBS를 × 인산염 완충 생리식염수(PBS) 1개를 준비하세요. 그 후 121°C에서 15파운드/인치 2인치에서 오토클레이브합니다.
- 펩타이드 스톡 준비
- AMP와 모방물을 고농도(예: 20 mM 또는 최소 2 mg/mL)로 녹입니다. 펩타이드가 불용성인 경우, 최종 농도가 0.01% 아세트산16의 멸균수를 사용하세요. 플라스틱 표면에 흡착이 예상된다면, 차단제 역할을 하므로 0.2% (v/v) BSA를 기본 용액에 보충합니다.
참고: 디메틸설폭증(DMSO)은 물에 녹지 않는 펩타이드나 모방품을 용해하는 데에도 권장됩니다. 20 mM 또는 2 mg/mL와 같은 농축된 스톡 용액을 준비합니다. - 0.22 μm 주사기 필터를 무균 조건에서 펩타이드 재고를 필터 멸균합니다.
- AMP 스톡의 알리코트를 준비하여 -20 °C(또는 AMP의 안정성에 따라 )에서 보관합니다. 동일한 용매 조절기를 준비하세요.
- AMP와 모방물을 고농도(예: 20 mM 또는 최소 2 mg/mL)로 녹입니다. 펩타이드가 불용성인 경우, 최종 농도가 0.01% 아세트산16의 멸균수를 사용하세요. 플라스틱 표면에 흡착이 예상된다면, 차단제 역할을 하므로 0.2% (v/v) BSA를 기본 용액에 보충합니다.
- 박테리아 접종 제제
- 검사할 박테리아 분리균을 TSA와 같은 영양분이 풍부한 배지에 스트릭하여 순수하고 잘 분리된 군락을 얻습니다.
- 플레이트를 36± 1 °C에서 유산소 배양하여 18-24시간 동안 보관하세요.
- 멸균 접종 루프를 사용해 배양판에서 형태학적으로 유사하고 잘 분리된 3개에서 5개의 집락을 선택합니다. 5–10mL TSB 또는 CAMHB가 들어있는 멸균관에 옮깁니다. 균일한 현탁을 얻으려면, 기울어진 튜브의 내벽에 박테리아 집락을 부드럽게 문지르면 균질한 현탁액을 얻습니다.
- 육수를 36± 1 °C에서 180rpm으로 흔들며 18시간에서 24시간 동안 배양하세요.
- 배양액을 3,000 x g 에서 25°C에서 10분간 하룻밤 원심분리하고, 박테리아 펠릿을 멸균 1× PBS로 세 번 세척합니다.
- 멸균 용기에 1× PBS 2mL를 분사한 후 세척된 박테리아 현탁액 50–100 μL를 추가한 뒤, 균일하게 만들기 위해 5–10초 동안 소용돌이를 돌립니다.
- 분광광도계를 사용해 600 nm(외경600)에서 광학 밀도를 측정합니다. 간단히 말해, 박테리아 현탁액 200 μL를 96웰 플레이트에 추가하고, 블랭크 플레이트와 같은 부피인 1× PBS를 더한 후 OD600 을 측정하여 0.1에 해당하는 값(약 1–2 ×10 8 CFU/mL에 해당합니다 (TSA의 유효한 플레이트 카운트로 검증).
- 조정된 현탁액을 CAMHB에 1:100으로 희석하여 최종 접종량 106 CFU/mL를 얻습니다.
- 플레이트 세팅
- 멸균되고 평평한 바닥의 96웰 플레이트에 박테리아 균주, AMP 이름, 날짜, 과학자의 이니셜을 적으세요. 플레이트에는 시험관, 블랭크, 대조 웰 위치를 뚜껑에 표시하세요.
- 플레이트의 첫 번째 컬럼에 200 μL AMP 용액(최고 농도)을 투여합니다. 나머지 우물들에 2번에서 12번까지 100μL의 CAMHB를 추가합니다.
- 멀티채널 피펫을 사용하여 1번 열부터 10번 열까지 AMP를 두 번 연속 희석하고, 10번째 열에서 100 μL을 버립니다.
- 각 웰에 각각 100 μL 박테리아 접종제(10 6 CFU/mL)를 첨가하고, 멸균 대조군(블랭크)은 제외됩니다. 이로 인해 시험 웰 내 최종 박테리아 농도는 약 5 ×10 5 CFU/mL입니다. 빈 웰에 CAMHB 100 μL을 추가하여 최종 부피를 200 μL로 만듭니다. 각 농도별로 3중정을 준비합니다.
참고: CAMHB에서 희석했을 때 침전되는 AMP의 경우, 0.1–0.2% BSA가 포함된 아세트산을 첨가하면 문제가 해결될 수 있습니다; 최적화는 경험적 검증이 필요할 수 있습니다.16. 이런 경우에는 CAMHB와 아세트산 및/또는 BSA를 포함한 용매 제어 우물을 포함합니다. - 마찬가지로, AMP 모방(RK758)과 비교 항생제(예: 콜리스틴)에 대해 MIC를 수행하세요.
- 플레이트를 뚜껑으로 덮고, 증발을 막기 위해 랩으로 밀봉한 후 36± 1°C에서 18–24시간 배양합니다.
- 대 장균 의 기준 균주(예: mcr-1-보유 대장균 NCTC 13846)를 병행하여 포함시키고, 펩타이드 또는 펩타이드 모방과 유사하게 가공합니다.
- 인큐베이션 후에는 MIC를 녹음하세요.
- MIC 판정
- 마이크로플레이트 리더기를 사용해 각 웰의 OD600을 측정합니다. 처리되지 않은 성장 대조군에 비해 성장 감소 비율을 계산하세요. MIC는성장 대조군에 비해 OD600이 최소 90% 감소하는 AMP 농도가 가장 낮은 것으로 정의됩니다.
- 최소 세 개의 독립적인 실험에서 3배로 수행된 MIC 값을 산출합니다. 결과를 재현성을 보장하기 위해 평균± 표준편차로 보고하세요.
참고: 대조균인 대장균 NCTC 13846의 MIC는 콜리스틴의 예상 MIC보다 1배 이내에 있어야 합니다. DMSO, 아세트산, BSA를 포함한 용매 대조군이 단독으로 억제 활성이 없음을 확인하라.
- 최소 살균 농도(MBC) 측정
- MIC와 그 위의 웰과 아래 농도에서 100 μL의 박테리아 현탁액을 900 μL D/E 육수로 옮겨 연속 희석액을 준비합니다.
- 희석된 현탁액 20 μL을 3회로 TSA에 플레이트하여 생존 가능한 박테리아 수를 측정합니다.
- 36± 1 °C에서 24시간 동안 하룻밤 배큐한 후, 군락 수를 세고 해당 희석 계수를 곱한 후, 동일한 방식으로 처리한 성장 대조 우물의 개체군과 생존 가능한 개체수를 비교합니다.
- MBC는표준 조건 하에서 24시간 배양(성장 조절) 후 초기 접종에 비해 생존 가능한 박테리아 수가 99.9%(≥ 3 log10) 감소하는 가장 낮은 항균제 농도로 정의됩니다.
- 보고
- MIC와 MBC를 μg/mL 및 μM 단위로 보고하세요.
- μg/mL를 μM으로 변환하려면 μM = μg/mL × 1,000/분자량(g/mol)을 사용합니다
- 감염성 폐기물 처리
- 96웰 마이크로타이터 플레이트, 피펫 팁, 팔콘 튜브 등 살아있는 박테리아 배양과 접촉한 모든 물질을 지정된 생물학적 위험 폐기물 봉투에 버려야 합니다.
- 기관 생물안전 지침에 따라 121°C에서 15–20분 동안 15psi의 압력에서 수집된 생물학적 위험 폐기물을 완전 멸균하여 폐기 전에 완전히 멸균합니다.
4. 세포독성
- 독성 분석을 위한 세포 계수 및 시딩
- 75cm 2 플라스크에 쥐 섬유아세포 L929 세포를 10% 태아 소 혈청(FBS)과 1% 항생제(스트렙토마이신 황산염, 페니실린 G)가 포함된 75cm2 플라스크에 넣어 37°C, 5%CO2에서 유지합니다.
- 세포를 1x PBS로 세척하고 0.25% 트립신-EDTA로 트립신제이즈합니다. 세포 현탁액 50 μL과 0.4% 트리판 블루 50 μL를 혼합하여 세포 수를 세고, 10 μL을 혈구계에 투여합니다.
- 네 모서리 칸에 생존 가능한 (염색되지 않은 것) 세포와 죽은 (파란색) 세포를 세고 총 세포 수를 계산합니다: 총 세포 = (평균 살아있는 세포 수 × 104 × 2 [희석 계수]).
- 생존율(%) = (생전 / [생전 + 사망]) × 100을 계산합니다.
- 최종 세포 농도를 5 ×10 4 cells/mL로 조절합니다(DMEM 배지를 사용해 100 μL 내 5,000 세포/우물에 해당).
- 멸균된 96웰 플레이트의 각 웰에 100 μL의 세포 현탁액을 시딩합니다. 37°C에서 5%CO2 를 사용하여 24시간 배양하여 침착을 허용합니다.
- Mel4 및 RK758 테스트 용액 준비
- Mel4/RK758의 작업 용액을 FBS와 항생제 없이 일반 DMEM에서 최종 목표 농도(1,000, 500, 250, 125, 62.5, 31.25, 15.6, 7.8, 3.9 μM)에 적용하여 3.2단계에서 설명한 기본 용액을 준비합니다.
- 각 웰에서 배양지를 제거하세요. 해당 1× Mel4/RK758 작동 용액 100 μL를 우물에 직접 첨가합니다.
- 지정된 음의 통제(NC) 웰에 100 μL의 DMEM을 추가합니다.
- 양성 대조군(PC) 지정 웰에 100 μL DMSO를 첨가합니다(DMSO 외에도 Triton X-100과 같은 세포독성 물질을 긍정적 대조군으로 권장합니다).
- 빈 대조군으로 100 μL 1x PBS를 추가합니다.
참고: 모든 치료와 대조군은 3회로 시행하세요. DMSO는 장갑과 안경 보호구를 착용해 다루세요; 피부 접촉을 피하고 기관 절차에 따라 용매 폐기물을 처리하세요.
- 3-(4,5-디메틸티아졸-2-일)-2,5-디페닐테트라졸륨 브로마이드 (MTT) 분석법
- Mel4/RK758 노출 후 세포를 교란하지 않고 조심스럽게 흡입하세요.
참고: 항균 화합물 치료 기간은 구체적인 실험 설계에 따라 다를 수 있습니다. - 5 mg/mL 정액을 일반 DMEM(최종 농도 0.5 mg/mL)과 1:9로 희석하여 MTT 작업 용액을 준비합니다.
- 각 웰에 MTT 작업 용액 100 μL을 추가합니다. 플레이트를 알루미늄 호일로 덮어 빛을 차단하고, 37°C에서 2시간 동안 배양하여 보라색 포마잔 결정이 형성될 때까지 보관하세요.
참고: MTT는 빛에 민감하고 독성이 있습니다. 장갑을 다루고 폐기물을 처리하는 것은 기관의 생물안전 절차에 따라 이루어집니다. MTT 시약으로 현상할 때는 항상 불을 끄세요.
- Mel4/RK758 노출 후 세포를 교란하지 않고 조심스럽게 흡입하세요.
- 포마잔 용해와 흡수도 측정
- 각 우물에서 MTT 용액을 조심스럽게 제거하세요. 각 웰에 100 μL DMSO를 첨가하여 포마잔 결정체를 용해시킵니다.
- 접시를 셰이커에 5분간 올려 완전히 녹게 하세요. 마이크로플레이트 리더기를 사용해 570 nm에서 흡광도를 측정하세요.
- 데이터 분석 및 50% 세포독성 농도(IC50 또는 CC50) 측정
- 모든 측정값에서 빈 흡광도(PBS)를 빼고 보정된 빈칸을 사용해 계산합니다.
- 세포 생존력(%)을 다음과 같은 식으로 계산합니다: 생존력(%) = (처리된 A /A NC(세포)) × 100.
- GraphPad Prism 소프트웨어를 사용해 IC50 또는 CC50 을 계산하세요.
참고: 실험을 3배로 반복하고 데이터를 평균 ± 표준편차로 보고하세요.
결과
RK758의 합성
중간 분석 데이터(중간 7명까지)는 이전에14명이 발표되었습니다. RK758 및 중간 8–9의 분석 데이터는 다음과 같습니다:
테르트-부틸(2-(3-페닐티오레이도)에틸)카바메이트 (8):
제품 8은 오프화이트 고체(1.89g, 87%)로 얻어졌으며; 기온은 167.4–168.3 °C; 1H NMR (300 MHz, DMSO-d 6) δ 9.58 (s, 1H), 7.71 (s, 1H), 7.44–7.29 (m, 4H), 7.11 (t, J = 12.0 Hz, 1H), 6.88 (br s, 1H), 3.55-3.53 (m, 2H), 3.13 (q, J = 4.0 Hz, 2H), 1.59 (s, 9H); 13C NMR (75 MHz, DMSO-d6) δ 180.9, 156.3, 139.5, 129.1, 124.7, 123.7, 78.2, 44.3, 28.7; HRMS (ESI+): m/z에서 C14H21N3O2 SNa+ [M + Na]+: 318.1247, 발견: 318.1252.
테르트-부틸(S,Z)-(3-((1H-인돌-3-일)메틸)-1-(2-(2-(2-나프타미도)-5-브로모펜닐)- 1,4-디옥소-9-(페닐리미노)-2,5,8,10-테트라아자도데칸-12-일)카바메이트 (9):
생성물 9는 흰색 고형(0.253g, 62%)으로 얻어졌으며; 기온은 173.4–174.9 °C; 1H NMR (400 MHz, DMSO-d 6) δ 12.23 (s, 1H), 10.86 (s, 1H), 9.61 (s, 1H), 9.27 (d, J = 8.0 Hz, 1H), 8.57-8.54 (m, 2H), 8.44 (s, 1H), 8.11 (d, J = 4.0 Hz, 1H), 8.06-8.03 (m, 3H), 7.84 (dd, J = 4.0, 12.0 Hz, 1H), 7.78 (d, J = 12.0 Hz, 2H), 7.69–7.60 (m, 2H), 7.36 (t, J = 8.0 Hz, 2H), 7.27-7.23 (m, 5H), 7.01-6.97 (m, 3H), 4.82-4.78 (m, 1H), 3.14-3.13 (m, 10H), 1.32 (s, 9H); 13C NMR (100 MHz, DMSO-d 6) δ 172.3, 167.8, 165.1, 156.3, 154.4, 138.9, 136.5, 135.4, 134.9, 132.6, 131.7, 129.9, 129.1, 128.7, 128.4, 128.2, 127.6, 127.6, 126.4, 124.8, 124.1, 123.6, 122.8, 121.4, 118.9, 118.7, 115.1, 111.8, 110.9, 78.4, 55.2, 42.3, 41.9, 39.4, 38.3, 29.5, 28.6, 27.9; HRMS (ESI+): m / z 계산 C45H47BrN8O5 [M + H]+: 859.2926, 발견: 859.2925.
(S,E)-N-(2-((1-((2-(3-(2-(2-(2-아미노에틸)-2-페닐구아니디노)에틸)아미노)-3-(1H-인돌- 3-일)-1-옥소프로판-2-일)카르바모일)-4-브로모페닐)-2-나프타마이드 (RK758) (10):
RK758은 오프화이트 고체(0.039g, 75%)로 얻었으며; m.p. 240.0–240.9 °C; 1H NMR (400 MHz, MeOD-d 4): δ 8.39 (초, 1시간), 8.27 (d, J = 12.0 Hz, 1시간), 7.98–7.95 (m, 3H), 7.88 (d, J = 8.0 Hz, 1H), 7.79 (d, J = 4.0 Hz, 1H), 7.71-7.60 (m, 4H), 7.40 (t, J = 8.0 Hz, 1H), 7.30-7.20 (m, 4H), 7.16 (s, 1H), 7.05-6.97 (m, 2H), 4.88-4.86 (m, 1H), 3.33-3.32 (m, 4H), 3H), 3.27-3.24 (남성, 5H); 13C NMR (100 MHz, MeOD-d 4): δ 174.3, 168.5, 166.4, 154.6, 137.1, 136.7, 135.1, 134.7, 131.4, 132.6, 131.3, 130.8, 129.8, 128.9, 127.97, 127.8, 127.9, 127.6, 127.5, 127.2, 126.8, 125.6, 123.5, 123.24, 123.2, 118.6, 117.8, 116.1, 111.1, 109.6; HRMS (ESI+): C40H39BrN8O3 [M + H]+에 대해 m/z가 계산됨: 759.2401, 발견: 759.2407.
RK758 합성은 Cbz-L-트립토판에서 7단계에 걸쳐 총 17%의 수율로 수행되었습니다(그림 4). 이 공정의 전체 수확률은 7번 주요 중간체에 44%, RK758에 19%였습니다. 1H NMR 데이터는 최종 화합물의 높은 순도와 주요 검출 가능한 불순물이 없음을 나타냅니다.
콜로니 PCR 스크리닝 결과 Mel4 및 His-KSI-Mel4 카세트가 선택된 변형체에 성공적으로 삽입되었음이 확인되었습니다(그림 5A). 미니프렙 분리 플라스미드의 PCR 분석은 예상 앰플리콘 크기를 추가로 확인하여, 발현을 위한 BL21(DE3)으로 변환되기 전 올바른 구성 구성 구성을 뒷받침하였습니다(그림 5B).
고양이온성 항균 펩타이드 멜4의 재조합 생산 및 정제
Mel4는 AusPep Peptide Company에서 최소 순도가 90%로 상업적으로 공급되었지만, SPPS에 의해 합성되었고, 생물학적으로 Mel4를 생산하기 위해 재조합 기법도 사용되었습니다. 프로토콜 종료 시점에서 용해된 세포 펠릿에서 추출한 전체 세포 단백질(TCP)의 웨스턴 블롯 분석으로 재조합 HIS-KSI-Mel4 융합 단백질의 발현이 확인되었습니다. 단백질 샘플은 SDS-PAGE로 분리되어 단백질 사다리를 분자량 기준으로 시각화했습니다. HIS-KSI-Mel4 융합 단백질의 예상 분자량에 해당하는 뚜렷한 밴드가 관찰되어, 표적 단백질이 숙주 세포에서 성공적으로 발현되었음을 확인했습니다(그림 5B).
선택된 모티프의 단백질 서열을 바탕으로 이론적 아미노산 조성을 계산하고, 정제된 HIS-KSI-TEV-Mel4 IB 펩타이드에서 얻은 실험적 아미노산 분석 결과와 비교하였습니다. 비교 결과, 예측된 아미노산 비율과 실험적으로 결정된 비율 간에 좋은 상관관계가 나타나, 발현된 펩타이드 서열의 정확성과 포함체 분획에서의 성공적인 분리가 확인되었습니다(표 2).
아스파라긴은 아스파르트산으로, 글루타민은 글루탐산으로 전환됩니다. 아미노산 분석 방법은 시스테인과 트립토판에 민감하지 않아 이 방법으로는 분석하지 않습니다. 이러한 점은 결과를 분석할 때 반드시 고려해야 합니다.
Mel4와 RK758의 항균 활성
RK758, Mel4, 콜리스틴의 최소 억제 농도(MIC)를 두 가지 그람 음성 박테리아 균주인 K. pneumoniae JIE 2709와 E. coli NCTC 13846에 대해 평가하였다(표 3). RK758은 K. pneumoniae 와 대장균 모두에 대해 16 μg/mL(21 μM)의 MIC를 보였습니다. 비교하자면, Mel4는 K. pneumoniae 에서 62.5 μg/mL(26.6 μM)의 MICs, 대장균에 대해 125 μg/mL(53.2 μM)로, RK758보다 효능이 낮음을 나타냈다. 비교 항생제로 콜리스틴이 사용되었으며, K. pneumoniae에서 가장 낮은 MIC 1 μg/mL(0.87 μM)를 보였으며, 콜리스틴 내성 E. coli 참조 균주는 MIC가 8 μg/mL(6.9 μM)로 나타났습니다.
Mel4와 RK758의 세포독성 효과
Mel4와 RK758의 세포독성 잠재력은 L929 마우스 섬유아세포(ATCC CCL-1)에서 24시간 연속 농도 노출 후 MTT 분석법을 사용하여 평가하였다. 두 화합물 모두 GraphPad Prism(버전 9.5.1)의 "억제제 대 정규화 반응 - 가변 기울기" 모델을 통해 비선형 회귀를 통해 분석한 전형적인 시그모이드 용량-반응 곡선을 보였으며, 농도에 따른 세포 생존 억제가 확인되었습니다. RK758은 CC50 값 172.6 μM을 보였고, Mel4는 147.5 μM의 CC50 에서 약간 더 높은 세포독성 효능을 보였으며, 이는 RK758보다 약 1.17배 높은 세포독성을 나타냅니다(그림 6 및 그림 7).
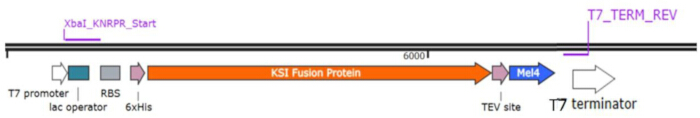
그림 1: p15TV-L-His-KSI-Mel4의 표현식 카세트의 도식식 . p15TV-L 발현 구조의 도식도로, T7 프로모터, 리보솜 결합 부위(RBS), 6×His 정제 태그, 케토스테로이드 이성질체(KSI) 융합 파트너, TEV 프로테아제 절단 부위, 그리고 Mel4 펩타이드 서열과 T7 전사 말단기를 보여줍니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
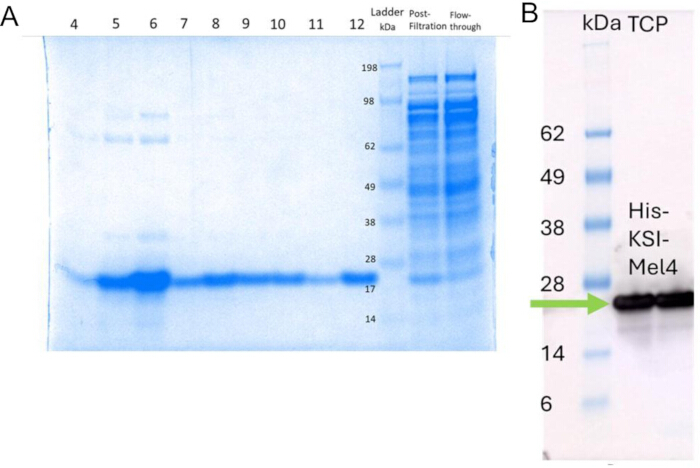
그림 2: 재조합 단백질 발현에 대한 SDS-PAGE 및 서부 블롯 분석. (A) 조수 세포 용해액의 여과 및 흐름 후 포함체와 전체 세포 단백질의 SDS-PAGE. (B) 총 세포 단백질의 웨스턴 블롯. 초록색 화살표는 관심 단백질이 예상 분자량에서 위치함을 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
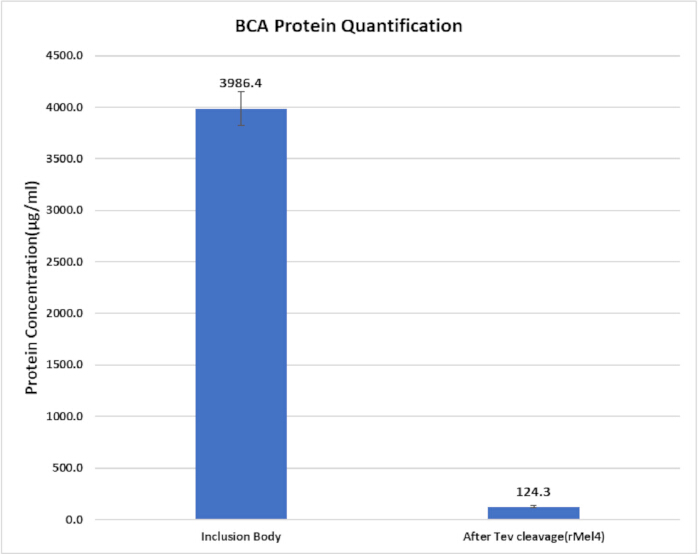
그림 3: TEV 절단 전후 재조합 단백질의 정량화. TEV 프로테아제 처리 후 분리된 포함체 분획과 절단된 재조합체 Mel4에 대해 BCA 분석으로 결정된 단백질 농도를 보여주는 막대 그래프. 오차 바는 측정값 간 실험적 변동을 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
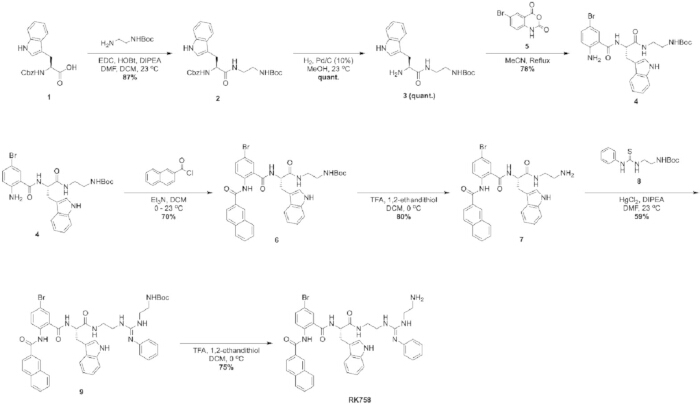
그림 4: RK758을 얻기 위한 전체 합성 접근법. Cbz-L-트립토판에서 시작된 RK758의 7단계 화학 합성 반응 체계로, 중간 형성, 작용기 변형, 최종 탈보호 과정을 포함하여 펩타이드 모방체를 얻습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
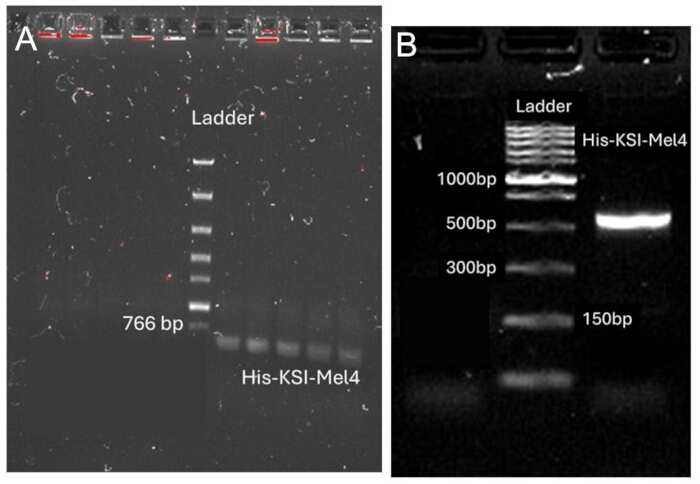
그림 5: 재조합 플라스미드의 아가로스 겔 전기영동. (a) His-Mel4 및 His-KSI-Mel4의 형질화체 집단 PCR. (B) 미니프렙 후 플라스미드의 PCR 확인. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
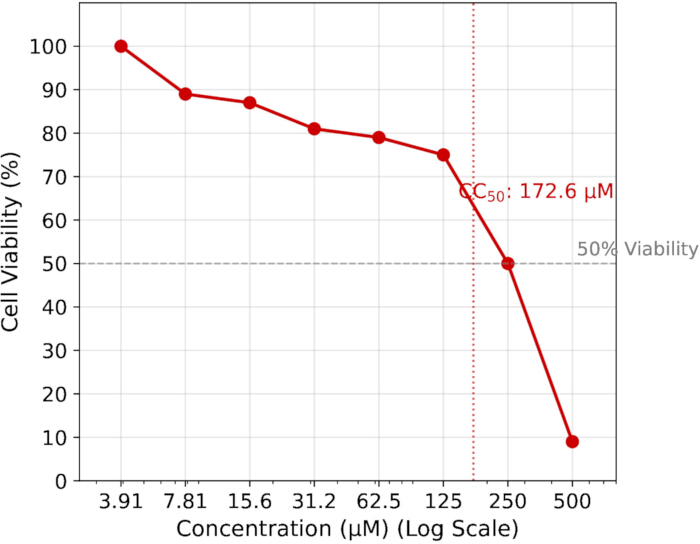
그림 6. R929 섬유아세포에 대한 RK758의 세포독성. 증가하는 농도에서 RK758이 세포 생존력에 미치는 영향을 보여주는 용량-반응 곡선. CC50 값은 GraphPad Prism의 "억제제 대 정규화 반응 - 가변 기울기" 모델을 사용한 비선형 회귀로 계산되었으며, 농도에 따른 세포 생존력 억제가 확인되었습니다. 데이터는 세 개의 독립적인 생물학적 복제± 평균 SD를 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
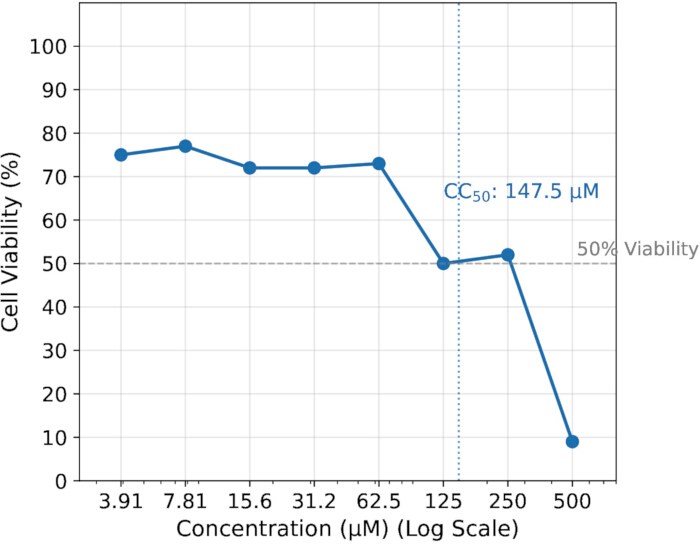
그림 7: L929 세포에 대한 Mel4의 세포독성. Mel4가 세포 생존력에 미치는 농도 의존적 효과를 보여주는 용량-반응 곡선. CC50 값은 GraphPad Prism의 "억제제 대 정규화 반응 - 가변 기울기" 모델을 사용한 비선형 회귀로 계산되었으며, 농도에 따른 세포 생존력 억제가 확인되었습니다. 데이터는 세 개의 독립적인 생물학적 복제± 평균 SD를 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
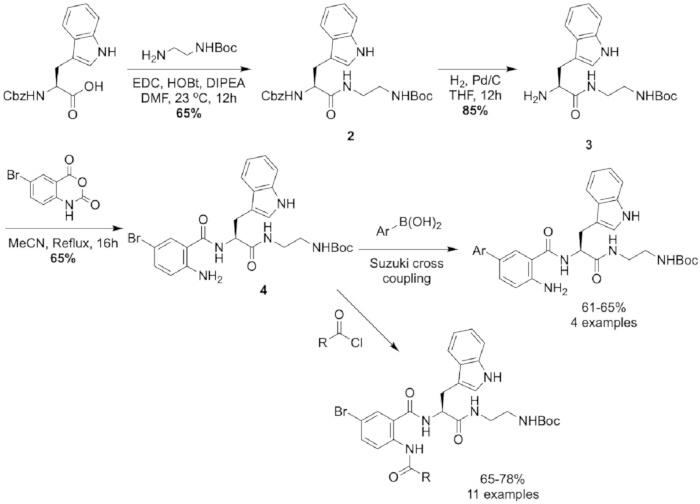
그림 8: Cbz-L-트립토판에서 시작한 수정 합성 전략. Cbz-L-트립토판을 이용한 안트라닐아마이드 중간체 제조 및 구조 다각화를 위한 후속 기능화 단계를 보여주는 대체 합성 경로. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
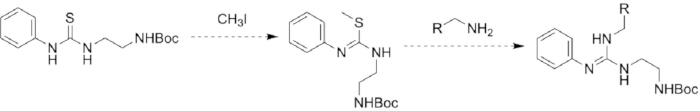
그림 9: 티우레아의 알킬화 후 아민 기질과의 친핵치환 .티우레아 황의 알킬화 후 아민 기질과의 친핵치환을 통해 구아니딘 함유 생성물을 생성하는 반응 경로 제안. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
| 섹션 | 이름/특징 | 순서 | |||
| 프라이머 | XbaI_KNRPR_Start | 5'-TAGGGGAATTGTGAGGGGATAACAATTCCCCTCTAGAAATAATT-3' | |||
| T7_TERM_REV | 5'-CCAAGGGGTTATGTAGTTATTGCTCA-3' | ||||
| 유전자 카세트 | His-KSI-Mel4 아미노산 서열 | MDHHHHHMIDETQRKATVLEYFERVNAKDLDGVKLF ATDAVVADPVGAPPVAGEEALRAYFQRVLHEFDTHDVPGV PSGAQDGQSVALPLKATINNPQDPTGGVRLDVNLVSVFTIG EDGLISEMRAYWGLTDIAPAGASSGRENLYFQGKNKRKRRR 으르르 | |||
| DNA 서열 | 5'-TAACAATTCCTCTAGAAATAATTTTTTTTTAACTTTAAGAGAGA 가타타카트가트카가트가악 GCAACGTAAGCGACGGTCTTAGATTTTTGAACGGGTGAATGCAA AAGACTTGGATGGCGTGTTAAACTCTTTGCGACGGACGCCGTGT AGCCGACCCTGTGTGCACCACCACCAGTGGCTGGTGAGGAGGCACTC CGTGCCTACTTCCAGCGGTCTTGCATGAATTTGACACCCATGATGTCC CGGGCGTTCCATCTGGTGCTCAGGATGGCCAATCAGTCGCACTCCCAC TTAAAGCAACCATCAACAATCCTCAAGATCCACAAGGCGGGGGCC TTGATGTGAACTTAGTGAGGTATTATCACGATTGGCGAAGGGGTTAAT CTCCGAGATGGTGCGTACTGGGGGTGTGTGACTGATTGCTCCGGCAGGT GCAAGCAGTGGTCGCGAGAACTTGTACTTCCAAGGTAAGAACAAGCGTA AGAGACGCCGGGCCGGAGGAGGAGGAGGAGGAGGAGAGGTCGCTAATCGAAC TCGAGATCCGGCT-3' | ||||
표 1: PCR 검증에 사용된 프라이머 서열과 최종 플라스미드 구성체의 전체 유전자 카세트 서열.
| 아미노산드 | 계산된 것 | 테스트 |
| 히스티딘 | 4.70% | 4.70% |
| 세린 | 3.60% | 3.40% |
| 아르기닌 | 10.70% | 9.20% |
| 글리신 | 9.50% | 11% |
| 아스파르트산 | 11.30% | 11.50% |
| 글루탐산 | 8.90% | 8.90% |
| 트레오닌 | 4.70% | 4.60% |
| 알라닌 | 9.50% | 9.70% |
| 프롤라인 | 5.30% | 5.30% |
| 라이신 | 4.10% | 4.50% |
| 티로신 | 2.40% | 2.20% |
| 메티오닌 | 1.80% | 1.90% |
| 이솔로신 | 3.00% | 3.20% |
| 류신 | 7.10% | 7.40% |
| 페냐라닌 | 3.60% | 3.60% |
| 발린 | 9.50% | 8.90% |
| 트립토판 | 0.60% | - |
표 2: 아미노산 조성 분석.
| 박테리아 균주 | MIC μg/mL (μM) | ||
| RK758 | 멜4 | 콜리스틴 | |
| K. pneumoniae JIE 2709 | 16 (21) | 62.5 (26.6) | 1 (0.87) |
| 대장균 NCTC 13846 | 16 (21) | 125 (53.2) | 8 (6.9) |
표 3: RK758, Mel4, 콜리스틴의 MIC가 그람 음성 박테리아에 대해 발견되었습니다.
토론
여기서 설명하는 프로토콜은 양이온성 AMP Mel4(다른 AMP와 함께 사용할 수 있도록 변형 가능)와 펩타이드 모방 RK758의 생산 및 기능 평가를 위한 포괄적인 틀을 제공합니다. 이 워크플로우는 대장균 에서 다단계 화학 합성 또는 재조합 발현과 항균 및 세포독성 검사를 결합합니다. 이러한 접근법의 통합은 체계적인 AMP 연구를 위한 다재다능한 플랫폼을 제공하여 화학적으로 합성된 펩타이드와 생물학적 생산된 펩타이드 간의 직접 비교를 가능하게 합니다. 이 프로토콜의 여러 단계는 성공적인 펩타이드 생산 및 활성 평가에 특히 중요합니다.
RK758은 안트라닐아마이드 스캐폴드를 기반으로 한 합성 펩타이드 모방체입니다. 새로운 AMP 모방체 발견을 위한 화합물 스크리닝 단계에서는 합성물 라이브러리를 계획하는 데 실 리코 스크리닝을 활용하는 것이 어렵습니다. 따라서 이러한 모방 분석은 화합물 라이브러리의 다양성을 허용하는 비계 위에 하는 것이 중요합니다. 안트라닐아마이드 비계는 이러한 이유로 선택되었습니다. 안트라닐아마이드 기반 스캐폴드의 추가적인 이점은 RK758 대사산물인 5-브로모안트라닐산이 항균 특성을 가진 것으로 밝혀졌다는 점입니다.
이전 연구들은 RK758 및 유사체의 구조와 항균 활성을 최적화하는 데 다양한 합성 절차를 사용했습니다. 원래의 구조 최적화 연구는 다양한 양이온기와 치환기가 안트라닐 페닐기에 미치는 영향을 조사했습니다. 따라서 합성은 L-트립토판 메틸 에스터와 이사토익 무수화물 유도체의 고리 개방으로 시작되었습니다. 그 후 쿠푸사미 등(등)이 보여준 대로 제품을 변형할 수 있습니다. 후속 연구에서는 소수성 그룹의 구조와 위치를 조사했습니다. 후속 연구에서는 브로모 치환 스캐폴드는 나프틸 위치에서 다양한 소수성 그룹을 허용하며, 중간 4는 브로모 위치에서 스즈키 교차 결합에 적합하다는 것을 보여주었으며, 이는 그림 8에 나타났다.
현재 연구는 이전 접근법의 문제점 중 일부를 다루고 있습니다. 그림 4에 나타난 접근법에서는, 중간체 11이 디에틸 에테르와의 분열을 통해 정제된다고 보고했음에도 불구하고, 이 결과를 재현하려는 시도는 이후 크로마토그래피 정제가 필요한 끈적한 불순물 혼합물을 낳았습니다. 또한 중간학 6도 이 방법을 이용한 크로마토그레시 정제가 필요했습니다. 전반적으로 원래 연구는 L-트립토판 메틸 에스터 하이드로클로라이드로부터 6단계 동안 중간 7/21%의 수율을 달성했습니다. 두 번째 접근법15는 수율이 낮았음에도 불구하고(Cbz-L-트립토판 14%), 중간 체는 더 적은 단계로 다루기 쉬운 중간체를 생산했습니다.
이 연구는 초기 연구 단계에서 관찰된 바와 같이 Cbz-L-Trp와 N-Boc-에틸렌디아민을 결합할 때 잔류 DMF가 잔여하지 않도록 최적화가 필요함을 확인했습니다. DMF와 DCM의 비율이 3:8(v/v)인 혼합 용매 시스템을 사용하면 DMF 양이 줄어들어 작업 중 제거가 용이해졌습니다; 하지만 염소 첨가 용매를 대체하는 것은 환경 영향에 대한 우려를 불러일으킬 수 있습니다. 이 변형으로 수율도 87%로 향상되었는데, 이는 EDC가 DCM 혼합물에 침전하여 반응을 촉진하는 요인으로 작용한 것으로 보입니다. 수소 첨가는 보통 90%>를 내는 병목 현상도 확인되었습니다. 이 연구에서는 메탄올 대신 THF를 사용했을 때 정량적 수율이 3로 줄었으며, 이전 연구에서는 85%였고 반응 시간도 4시간으로 단축되었습니다. 이는 원래 연구에서 남아 있는 DMF가 팔라듐 촉매를 오염시켰을 가능성이 있어 더 순수한 출발물질을 사용했기 때문일 수도 있습니다. 전반적으로, 이전 접근법과 비교했을 때, Cbz-L-트립토판으로부터 5단계 만에 중간 7의 수율이 48%로 향상되었습니다. 앞서 논의한 이전 실험에서는 전체 수율이 21%였고, 추적 반응은 14%였으나, 이 연구에서는 화합물 7에 대해 48%의 수율을 기록하여 적절히 치환된 이자토계 무수화물 유도체에서 합성할 수 있는 유사체의 다양성을 보여주었습니다.
안트라닐아마이드 4의 고도로 탈활성화된 아민( 그림 8 참조)은 효율적인 반응을 위해 세 가지 산성 염화물이 필요합니다. 화학양론적 양론만 사용할 경우, 4에서 6으로의 변환이 불완전해져, 중간체 4와 6의 크로마토그래피 및 용해도 특성이 유사해 정제가 복잡해집니다. 저자들은 이것이 비계의 한계임을 인정하며, 과도한 산 염화물을 줄이기 위한 새로운 방법론을 개발하기 위해 노력하고 있습니다.
티우레아 8을 아민 7에 결합하는 끝에서 두 번째 반응에는 매우 독성이 강하고 환경에 매우 해로운 수은(II) 염화물이 필요하며, 대규모 합성을 위한 이 방법을 불가능하게 할 수 있습니다. 이 접근법은 실온에서 수은(II) 매개 티우레아스 부착이 진행되기 때문에 현재 연구에서 사용되었습니다. 티우레아 8을 이용한 또 다른 방법은 황 원자를 알킬화한 후 아민 기질로 친핵 치환을 하는 것입니다(그림 9에 나타난 것). 이러한 반응은 보고된 바 있으나, 많은 경우 기질20,21과 부산물이 형성될 수 있는 높은 온도와 기본 조건이 필요합니다. 또는 유사한 메틸화된 티우레아 기질을 사용하여 Saetan 등에 의해 광촉매 접근법이 보고되었습니다. 그들은 이 반응이 백색 LED 빛을 이용한 방사선 조사 하 주변 온도에서 일어난다고 보고합니다. 이 반응은 다양한 1차 및 2차 아민에서 일어나 80% 이상의 생성물을 생성한다고 보고되었습니다. 최종 반응에서는 디에틸 에테르로 분쇄 후 동결 건조를 거쳐 추가 정제가 필요 없는 생성물이 나옵니다(>MeOD-d4에서 1HNMR로 95% 순도). 주요 불순물은 잔류하는 고끓는점 1,2-에탄에디티올로, 독특한 양배추 같은 냄새로 쉽게 감지됩니다. Mel4의 재조합 발현은 최적의 광학 밀도(OD600 0.5–0.6)에서의 유도와 박테리아의 생존력을 유지하면서 포함체 형성을 극대화하기 위해 유도 온도의 신중한 유지가 필요하다22.
항균 및 세포독성 검사에는 정확하고 재현 가능한 결과를 얻기 위한 필수 단계도 포함됩니다. 박테리아 밀도나 펩타이드 용해도의 작은 변동이 측정된 MIC 및 MBC 값을 크게 바꿀 수 있으므로 정확한 접종 제제와 펩타이드의 연속 희석이 필요합니다16. MTT 세포독성 검사에서는 정확한 세포 계수, 균일한 씨앗 투여, 완전한 포르마잔 용해가 신뢰할 수 있는 대사 측정을 얻는 데 매우 중요합니다23.
프로토콜에 여러 수정을 통해 일반적인 문제를 해결할 수 있습니다. 수용성이 제한된 펩타이드는 0.01% 아세트산16 에 용해될 수 있으며, 펩타이드 또는 모방체는 DMSO24 에 용해되거나 0.1–0.2% BSA17 을 보충하여 MIC 결정 중 플라스틱 표면에 흡착되는 것을 방지할 수 있습니다. 재조합 포함체는 구아니디늄 클로라이드 또는 요소 농도를 조절한 후 단계적 투석을 통해 용해되고 재접힐 수 있습니다. MTT 분석의 경우, 부드러운 흔들기와 DMSO 완전한 용해가 흡수도 측정값의 변동성을 줄일 수 있습니다.
이 프로토콜의 중요성은 보완적인 생산 및 평가 전략의 통합에 있으며, 이는 표준 단일 방법 접근법에 비해 이점을 제공합니다. 많은 연구들이 펩타이드 또는 모방 생산에 단일 방법에 초점을 맞추지만, 모든 화합물에 이상적인 단일 방법은 없습니다; 펩타이드 특성에 따라 적절한 방법을 선택하면 최적의 수율과 기능을 보장합니다. 예를 들어, 화학 합성은 비천연 아미노산과 펩타이드 모방체를 정밀하게 통합할 수 있게 하는데, 이는 재조합 시스템에서 어려울 수 있습니다. 반대로, 재조합 발현은 화학 합성 과정에서 응집할 수 있는 고양이온성 펩타이드를 비용 효율적으로 생산할 수 있습니다. 두 방법을 표준화된 기능적 분석법과 결합함으로써, 이 프로토콜은 표준 MIC 분석만의 범위를 넘어 AMP 활성과 세포독성의 엄밀한 특성 분석을 가능하게합니다.
전통적인 독립형 접근법과 비교할 때, 이 프로토콜은 항균 펩타이드 연구와 치료 개발에 폭넓게 적용 가능합니다. 구조-활성 관계를 탐구하고, 펩타이드 효능을 최적화하며, 독성을 평가하는 데 적응할 수 있습니다. 더불어, 이 방법들은 펩타이드 라이브러리의 고처리량 스크리닝, 박테리아 내성 기전 연구, 기존 항생제와의 병용 요법 평가를 지원할 수 있습니다. 항균 응용 외에도, 이 워크플로우는 항바이러스 또는 항진균 펩타이드 검사, 감염 통제를 위한 표면 코팅, 바이오필름 파괴나 면역조절과 같은 생의학적 응용 분야에도 적용될 수 있습니다.
결론적으로, 이 프로토콜은 AMP와 펩타이드 모방체의 생산, 정제 및 기능 평가를 위한 다재다능하고 재현 가능한 워크플로우를 제공합니다. 중요한 방법론적 고려사항을 다루고, 문제 해결 전략을 제공하며, 다양한 응용을 가능하게 함으로써 항균 및 생의학 연구의 견고한 기반을 마련합니다.
공개 사항
저자들은 이해 상충을 선언할 필요가 없습니다.
감사의 글
저자들은 뉴사우스웨일스 대학교의 마크 웨인라이트 분석 센터 및 재조합 제품 시설(RPF)에 감사의 뜻을 전합니다. 특히, HRMS 분석을 위한 생물분석 질량분석기와 NMR 기기 접근을 위한 NMR 시설이 포함됩니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 1,2-에탄에디티올 | 오크우드 | M03555 | |
| 100X 항생제 | 시그마 올드리치 | A5955-20ML | |
| 1-에틸-3-(3-디메틸아미노프로필)카보디이미드 염산염 | 콤비 블록 | SS-7536 | 이제부터 EDC라고 부릅니다 |
| 2-나프톨일 클로라이드 | 콤비 블록 | OR-0173 | |
| 아세트산 | 아약스 파인쳐 | R18401O | |
| 아세토니트릴 | VWR | 20060.35 | |
| 알칼리성 인산효소 | 뉴잉글랜드 바이오랩스 | M0525S | |
| 소 혈청 알부민 (BSA) | 시그마 올드리치 | A1933 | |
| 양이온 조정 뮐러-힌튼 브로스 (CAMHB) | 벡턴, 디킨슨 앤 컴퍼니 | 212322 | |
| Cbz-L-Trp | 콤비 블록 | QB-6691 | |
| 콜리스틴 | 시그마 올드리치 | C4461 | |
| 데이-엥글리 (D/E) 중화 육수 | 옥소이드 | R453042 | |
| 규조토 (Celite 545) | 시그마 올드리치 | 102693 | 입자 크기 0.02-0.1 mm |
| 디클로로메탄 (DCM) | VWR | 23366.327 | |
| 디에틸 에테르 | 켐-서플라이 | EA036 | |
| 디메틸 설폭사이드 (DMSO) | 켐-서플라이 Pty Ltd.; | LCS-CHEM-0098 | |
| 디티오트레이톨(DTT) | 써모 사이언티픽 | J15397.03 | |
| DMEM 배양 배양지 | 서모 피셔 사이언티픽 | UCS-BIO-0058 | |
| 대장균 BL21(DE3) 숙주 | 시그마 올드리치 | 70235-M | |
| 전기공공기 | 써모 사이언티픽 | NEON1SK | |
| 에틸 아세테이트 | 켐-서플라이 | EA011-2.5L-P | |
| 에틸렌디아미네테트라아세트산 (EDTA) | 써모 사이언티픽 | 118432500 | |
| 태아 소 혈청 (FBS) | 시그마 올드리치 | 12003C-500ML | |
| 그가 태그한 TEV Protease | 시그마 올드리치 | T4455 | |
| 하이드록시벤조트리아졸 하이드레이트 | 켐-임플렉스 | 24755 | |
| 이미다졸 | 써모 사이언티픽 | 288-32-4 | |
| 이소프로필 &베타;-D-1-티오갈락토피라노사이드 (IPTG) | 시그마 올드리치 | I6758 | |
| 루리아-베르타니 브로스 (LB), 그리고 nbsp; | 써모 사이언티픽 | 12795027 | |
| 용해 완충제 | 써모 사이언티픽 | 89822 | |
| 수은(II) 염화물 | 시그마 올드리치 | 215465 | |
| 메탄올 (HPLC 그레이지) | VWR | A452-4K | |
| MTT 시약 | 시그마 올드리치 | M2128-100MG | |
| N,N-디이소프로필레틸아민 (DIPEA) | 시그마 올드리치 | 3440 | |
| N,N-디메틸 포름아마이드 (DMF) | 켐-서플라이 | RP1051 | |
| 나노드롭 | 써모 사이언티픽 | ND-원 | |
| N-복-에틸렌디아민 | 콤비 블록 | AM-1613 | |
| NTA 어피니티 레진 컬럼 | 시그마 올드리치 | 70666 | |
| 탄소 위에 팔라듐 | 시그마 올드리치 | 205699 | 10% 백백 백성 |
| 플라스미드 정제 키트 | 치아겐 | 27104 | |
| 폴리프로필렌 마이크로타이터 튜브 | SARSTEDT | 72.690.008 | |
| 플래시 컬럼 크로마토그래피용 실리카 젤 | 실리사이클 | R12030B | 실리카 젤 60, 230-400 메쉬 |
| 실리카 겔 얇은 층 크로마토그래피 플레이트 | 메르크 | 1055540001 | 알루미늄 백킹에 0.2 mm 두께의 층을 적용하고 254 nm 형광 지시기 |
| 인산나트륨, 0.2M 완충 | 써모 사이언티픽 | J63816. AP | |
| 무균 평평한 바닥 96웰 폴리프로필렌 마이크로타이터 플레이트 뚜껑 | 코닝 | 3599 | |
| T4 DNA 리가제 | 뉴잉글랜드 바이오랩스 | M0202S | |
| 트리에틸아민 (Et3N) | 켐-서플라이 | TR02151000 | |
| 트리플루오로아세트산 (TFA) | 시그마 올드리치 | T6508 | |
| 트리스-HCL | 써모 사이언티픽 | J62848. AK | |
| 트리톤 X-100 | 써모 사이언티픽 | A16046.AE | |
| 트리판 블루 | MP 바이오메디컬스 오스트레일리아 Pty Ltd | ||
| 트립신-EDTA (0.25%) | 시그마 올드리치 | T4049-500ML | |
| 트립티카제 대두 농가와 nbsp; | 벡턴, 디킨슨 앤 컴퍼니 | 211043 | |
| 요소와 nbsp; | 써모 사이언티픽 | 29700 | |
| 벡터 (T7 프로모터) | - | 고복제수 플라스미드 선택 |
참고문헌
- Naghavi, M., et al. Global burden of bacterial antimicrobial resistance 1990–2021: a systematic analysis with forecasts to 2050. Lancet. 404 (10459), 1199-1226 (2024).
- Antimicrobial resistance. , World Health Organization. Available at: https://www.who.int/news-room/fact-sheets/detail/antimicrobial-resistance (2023).
- Puri, B., Vaishya, R., Vaish, A. Antimicrobial resistance: Current challenges and future directions. Med. J. Armed Forces India. 81 (3), 247-258 (2025).
- Zhang, T., Jin, Q., Ji, J. Antimicrobial peptides and their mimetics: promising candidates of next-generation therapeutic agents combating multidrug-resistant bacteria. Adv. Biol. 9 (4), 2400461(2025).
- Pasupuleti, M., Schmidtchen, A., Malmsten, M. Antimicrobial peptides: key components of the innate immune system. Crit. Rev. Biotechnol. 32 (2), 143-171 (2012).
- Oliveira Júnior, N. G., et al. Antimicrobial peptides: structure, functions and translational applications. Nat. Rev. Microbiol. , (2025).
- Keshri, A. K., et al. LL-37, the master antimicrobial peptide, its multifaceted role from combating infections to cancer immunity. Int. J. Antimicrob. Agents. 65 (1), 107398(2025).
- Alzain, M., et al. Antimicrobial peptides: mechanisms, applications, and therapeutic potential. Infect. Drug Resist. , 4385-4426 (2025).
- Kuppusamy, R., Willcox, M., Black, D. S., Kumar, N. Short cationic peptidomimetic antimicrobials. Antibiotics. 8 (2), (2019).
- Xu, J. Peptides chemistry, manufacturing, and controls. Peptide Science: Chemical Ligation, Lead Generation, and Therapeutic Advances. , 471-508 (2025).
- Wang, Q., et al. Expression and purification of antimicrobial peptide buforin IIb in Escherichia coli. Biotechnol. Lett. 33 (11), 2121-2126 (2011).
- Cai, Z., et al. Peptide synthesis: a review of classical and emerging methods. Biofabrication. 18 (1), 012001(2026).
- Gentilucci, L., De Marco, R., Cerisoli, L. Chemical modifications designed to improve peptide stability: incorporation of non-natural amino acids, pseudo-peptide bonds, and cyclization. Curr. Pharm pseudo-peptide. Des. 16 (28), 3185-3203 (2010).
- Kuppusamy, R., et al. Tuning the anthranilamide peptidomimetic design to selectively target planktonic bacteria and biofilm. Antibiotics. 12 (3), 585(2023).
- Kuppusamy, R., et al. Guanidine functionalized anthranilamides as effective antibacterials with biofilm disruption activity. Org. Biomol. Chem. 16 (32), 5871-5888 (2018).
- Wiegand, I., Hilpert, K., Hancock, R. E. Agar and broth dilution methods to determine the minimal inhibitory concentration (MIC) of antimicrobial substances. Nat. Protoc. 3 (2), 163-175 (2008).
- Ji, S., et al. Adsorption and morphology analysis of bovine serum albumin on a micropillar-enhanced quartz crystal microbalance. J. Phys. Chem. B. 128 (41), 10247-10257 (2024).
- Yasir, M., Dutta, D., Willcox, M. D. Activity of antimicrobial peptides and ciprofloxacin against Pseudomonas aeruginosa biofilms. Molecules. 25 (17), (2020).
- Methods for the determination of susceptibility of bacteria to antimicrobial agents. terminology. Clin. Microbiol. Infect. 4 (5), 291-296 (1998).
- Saetan, T., Sukwattanasinitt, M., Wacharasindhu, S. A mild photocatalytic synthesis of guanidine from thiourea under visible light. Org. Lett. 22 (20), 7864-7869 (2020).
- Woodring, J. L., et al. Disrupting the conserved salt bridge in the trimerization of influenza A nucleoprotein. J. Med. Chem. 63 (1), 205-215 (2019).
- Terpe, K. Overview of bacterial expression systems for heterologous protein production: from molecular and biochemical fundamentals to commercial systems. Appl. Microbiol. Biotechnol. 72 (2), 211-222 (2006).
- Berridge, M. V., Herst, P. M., Tan, A. S. Tetrazolium dyes as tools in cell biology: new insights into their cellular reduction. Biotechnol. Annu. Rev. 11, 127-152 (2005).
- Deni, W. H., Gao, T., Wu, J. Protocol for reconstituting peptides/peptidomimetics from DMSO to aqueous buffers for circular dichroism analyses. STAR Protoc. 5 (1), 102850(2024).
- Lou, M., et al. Microbial production systems and optimization strategies of antimicrobial peptides: a review. World J. Microbiol. Biotechnol. 41 (2), 66(2025).
- Hancock, R. E., Sahl, H. G. Antimicrobial and host-defense peptides as new anti-infective therapeutic strategies. Nat. Biotechnol. 24 (12), 1551-1557 (2006).
재인쇄 및 허가
