이 연구는 통합된 생물정보학과 실험적 검증을 통해 제2형 당뇨병 및 동맥경화성 심혈관 질환의 공통 유전자, 생물학적 경로, 면역 연관성 및 잠재적 치료 표적을 규명하였습니다.
이 논문에서
요약
초록
이 연구는 제2형 당뇨병(T2DM)과 동맥경화성 심혈관 질환(ASCVD) 간의 동반 질환 기전을 조사하고, 잠재적 치료 표적을 규명하였습니다. T2DM과 ASCVD 사이의 공통 차별 발현 유전자(C-DEGs)를 GSE78721 및 GSE12288 데이터셋에서 추출하였다. 유전자 온톨로지(GO)와 교토 유전자 및 게놈 백과사전(KEGG) 경로 풍부화 분석, 단백질-단백질 상호작용(PPI) 네트워크 구축, 허브 유전자 식별, 약물-유전자 상호작용 데이터베이스(DGIdb) 분석이 수행되었습니다. 허브 C-DEG와 면역 침윤 세포 간의 연관성을 CIBERSORT 방법을 사용하여 분석하였다. 허브 C-DEG의 발현 수준은 qRT-PCR 및 웨스턴 블롯 분석을 통해 정량하였다. 총 32개의 C-DEG가 확인되었으며, 20개의 상향 조절 유전자와 12개의 하향 조절 유전자로 구성되어 있습니다. C-DEG는 바이러스성 심근염, 부정맥성 우심실 심근병증, 비대성 심근병증, 확장성 심근병증 등 주요 경로에서 주로 풍부하게 관찰되었습니다. PPI 분석 결과 29개의 노드와 39개의 엣지가 확인되어, 두 데이터셋 모두에서 8개의 허브 C-DEG(HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C, CS)가 확인되었습니다. 더 나아가, 허브 C-DEGs(TOP3A, SLPI, NCF4, PRF1, PLAU)는 면역 침윤 세포 수치와 유의미한 상관관계를 보였습니다. 이 허브 C-DEGs를 특이적으로 표적으로 하는 약물은 T2DM 및 ASCVD 치료에 유망한 후보를 제시합니다. 또한, t2DM과 ASCVD 환자에서 mRNA와 단백질 수준 모두에서 허브 C-DEG의 발현이 검증되었습니다. 통합 생물정보학 분석을 통해 T2DM 및 ASCVD의 후보 치료 표적, 기전 및 약물 선별이 가능해졌으며, 이들 질환에 대한 분자 치료법에 대한 새로운 통찰을 제공하였습니다.
서론
당뇨병(DM)은 다양한 유전적 및 환경적 요인에 의해 영향을 받는 복잡한 병인을 가진 만성 질환으로, 현재 전 세계적으로 약 4억 6,300만 명이 영향을 받고 있으며, 2045년까지 7억 명으로 증가할 것으로 예상됩니다. 제2형 당뇨병(T2DM)은 베타세포 부전으로 인한 인슐린 저항성과 상대적 인슐린 결핍이 특징인 다인자 질환으로, 고혈당과 지질이상증을 유발하며, DM 환자의 90%를 차지합니다 3,4,5. 인슐린 저항성은 수많은 심혈관 대사 이상을 유발하는 주요 전구체로, 이로 인해 죽상동맥경화성 심혈관 질환(ASCVD) 발병을 촉진하고 예후에 영향을 미칠 수 있습니다 6,7. 관상동맥질환(CAD)은 주로 동맥경화성 물질의 점진적 축적에서 발생하며, 이로 인해 기관강 협착과 혈류 차단이 발생합니다8. 죽상동맥경화증은 고콜레스테롤혈증과 당뇨병 등 여러 요인에 의해 유발됩니다. T2DM과 CAD에 따른 상당한 인적·재정적 부담과 장기 관리의 어려움은 효과적인 예방 전략의 긴급한 필요성을 강조합니다.
CAD와 동시에 T2DM을 앓는 환자는 심장 사건 위험이 현저히 높다11. 심혈관 질환(CVD)은 T2DM의 흔한 합병증이며, T2DM 환자 중 사망률의 주요 원인으로 약 32.2%가 CVD12에 영향을 받습니다. LoDoCo2 하위 연구는 동반 T2DM이 만성 CAD 인구에서 주요 부작용 심혈관 사건 위험 증가와 상관관계가 있음을 확인했습니다13. 제2형 당뇨병 환자는 ASCVD위험이 높으며, 만성 CAD를 가진 환자 중 당뇨병이 동반된 경우 이후 심혈관 사건 위험이 유의하게 높으며, 이는 혁신적인 치료 옵션에 대한 중요한 미충족 필요성을 강조합니다.
점점 더 많은 연구 그룹이 다양한 데이터베이스의 전사체 데이터를 포괄적으로 분석하여 T2DM과 ASCVD에서 새로운 차별발현 유전자(DEG)를 선별하고 있습니다. 이러한 질병 간의 연관성을 밝히고 효과적인 생물학적 기능을 규명하는 데 노력이 집중되고 있습니다. 최근 생물정보학 연구들은 T2DM과 다른 질환과의 연관성을 탐구했습니다; 예를 들어, 송 등은 T2DM과 골관절염 사이에 공유 DEG를 확인했고, Castillo-Velázquez 등은 알츠하이머병과 DM18 간의 관계를 예측했으며, 생물정보학 분석을 통해 T2DM과 다낭성 난소 증후군의 중요한 유전자와 경로가 확인되었다19. 그러나 T2DM과 ASCVD를 연결하는 분자 기전은 아직 잘 이해되지 않아 두 질환 진행을 치료할 새로운 잠재적 치료 표적을 찾는 것이 중요함을 강조합니다.
본 연구는 GSE78721(T2DM) 및 GSE12288(ASCVD) 데이터셋의 전사체 데이터를 통합적으로 생물정보학 분석을 수행하여 T2DM과 ASCVD 간 공유된 분자 경로와 잠재적 치료 표적을 체계적으로 규명하는 것을 목표로 합니다. 이 데이터셋들은 각 질병별로 환자와 대조군이 일치하는 샘플을 제공하고, 유사한 마이크로어레이 플랫폼을 사용하여 견고한 비교 분석을 가능하게 하여 선택되었습니다. 현재 접근법은 흔한 DEGs(C-DEGs)를 식별하고, 기능적 풍부화 및 단백질 상호작용 분석을 수행하며, 면역 침윤과의 연관성 평가, 상호작용 약물 예측을 포함하고 있습니다. 추가로 예비 실험 검증도 수행되었습니다. 이 연구는 T2DM과 ASCVD의 동반 질환을 이해하기 위한 새로운 통찰과 후보 목표를 제공합니다.
프로토콜
이 연구 프로토콜은 닝샤 의과대학 윤리 기관심사위원회(내부 심사위원회 참조 번호: 윤리 [2023]-YCSKT-002)의 검토 및 승인을 받았으며, 헬싱키 선언에 명시된 원칙에 부합하였습니다. 연구에 참여한 모든 환자로부터 서면 동의가 사전 확보되었습니다.
T2DM과 ASCVD의 발현 데이터 출처
T2DM과 ASCVD의 유전자 발현 데이터는 각각 GEO 데이터베이스에서 가져온 GSE78721 및 GSE12288 데이터셋에서 얻었습니다. 두 데이터셋 모두 [PrimeView] Affymetrix 인간 유전자 발현 배열과 [HG-U133A] Affymetrix 인간 유전체 U133A 배열 플랫폼의 마이크로어레이 데이터를 활용했습니다. GSE78721 데이터셋에는 68명의 T2DM 환자와 62개의 정상 샘플(보 충표 1 참조)의 발현 데이터가 포함되어 있었고, GSE12288 데이터셋은 110개의 ASCVD 샘플과 112명의 정상 대조군(보 충표 2에 상세 참조)의 발현 데이터를 포함했습니다. 유전자 탐침은 플랫폼 주석 정보를 바탕으로 해당 유전자 기호로 변환되었습니다.
T2DM과 ASCVD에서 차별발현 유전자의 식별
GEO 데이터베이스에서 데이터를 다운로드한 후, T2DM과 ASCVD의 원시 발현 행렬을 "limma" 소프트웨어 패키지를 사용해 보정 및 정규화하여 DEG를 식별했습니다. DEG 선별에는 P < 0.05의 임계값이 적용되었습니다. 차분 표현 결과는 각각 '히트맵'과 'ggplot2' R 패키지를 사용하여 히트맵과 화산 플롯을 시각화했습니다. T2DM과 ASCVD 사이의 C-DEG는 벤 다이어그램 을 통해 확인되었습니다.
유전자 온톨로지(GO) 기능 및 교토 유전자 및 유전체 백과사전(KEGG) 경로 풍부화 분석
생물학적 기능과 경로는 GO 및 KEGG 경로 농축 분석을 통해 결정되었습니다. R 패키지 조직입니다. Hs.eg.db C-DEG 이름을 유전자 ID로 변환하는 데 사용되었고, R 패키지인 clusterProfiler, enrichplot, ggplot2, GOplot을 사용하여 C-DEG의 일반적인 생물학적 기능을 탐구하기 위해 GO 풍부 분석을 수행했습니다. 이후 KEGG 분석을 통해 T2DM과 ASCVD의 동반 질환의 분자 메커니즘에 관여하는 유의미한 경로가 확인되었습니다. GO 및 KEGG 풍부화 결과는 유전자 수, 기능 설명, P 값을 보여주는 막대 차트로 제시되었으며, 통계적 유의성은 P < 0.05로 정의되었습니다.
C-DEGs의 단백질-단백질 상호작용(PPI) 네트워크 분석
이 연구에서는 C-DEG와 허브 유전자를 공유 유전자로 정의하였습니다. 이 공유 유전자 간의 기능적 연관성을 평가하기 위해 STRING 데이터베이스(https://string-db.org)를 사용하여 PPI 네트워크를 구축하였습니다. 분석은 "SEARCH" 기능에서 "Multiple proteins"를 선택하고 C-DEG 이름을 입력하면서 종을 "Homo sapiens"로 지정하는 것으로 시작되었습니다. C-DEG의 기본 매개변수는 PPI 조절 네트워크를 표시하도록 설정되었습니다. PPI 네트워크의 시각화는 Cytoscape 소프트웨어(버전 3.9.1)(https://apps.cytoscape.org/)를 사용하여 수행되었으며, C-DEG 간 상호작용을 그래픽으로 표현했습니다. Hub C-DEG는 Degree 랭킹 알고리즘을 기반으로 Cytoscape의 CytoHubba 플러그인을 사용하여 PPI 네트워크 내에서 식별되었습니다.
면역 세포 침투 분석
T2DM 그룹과 정상 대조군 간 면역 세포 침윤 차이를 조사하기 위해 CIBERSORT 방법을 사용하여 다양한 면역 침투 세포 유형의 풍부도를 평가하였다. 이후 Wilcoxon 검사 알고리즘을 적용하여 T2DM과 대조군 샘플 간 침투 면역세포 비율을 비교하여 관찰된 차이 평가를 용이하게 했습니다. 데이터 시각화는 바이올린 플롯을 통해 이루어졌습니다. C-DEG와 면역 침윤 세포 간의 상관관계를 검증하기 위해 limma, scales, tidyverse, ggplot2와 같은 R 패키지를 사용하여 Spearman 상관계수를 계산하였습니다. 이 단계는 C-DEG 발현과 면역 세포 침윤 수준 간의 관계를 정량화하였으며, 결과는 히트맵으로 표시되었습니다. P값이 0.05 미만이면 통계적으로 유의미하다고 간주되었습니다.
허브 C-DEG와 잠재적 표적 약물의 상호작용 분석
약물-유전자 상호작용 데이터베이스(DGIdb)는 승인된 치료제와 잠재적 치료제의 약물-유전자 상호작용 및 유전 프로필에 대한 포괄적인 카탈로그를 제공합니다. 본 연구에서는 허브 C-DEG 목록을 데이터베이스에 입력하여 허브 C-DEG와 잠재적 표적 약물 간의 상호작용 정보를 얻었고, 이를 Cytoscape 소프트웨어로 시각화했습니다.
임상 샘플을 통한 핵심 유전자의 실험적 검증
핵심 유전자를 실험적으로 검증하기 위해 임상 대상자로부터 말초 혈액 샘플을 채취하였습니다. 연구 코호트에는 실험군과 대조군이 포함되었습니다. 실험군은 T2DM과 ASCVD를 모두 진단받은 15명의 환자로 구성되었으며, 이들은 동반 질환을 대표합니다. 대조군은 당뇨병, 심폐질환 또는 기타 주요 전신 질환 병력이 없는 연령과 성별이 일치하는 건강한 자원봉사자 10명으로 구성되었습니다. 실험군의 모든 환자는 제2형 당뇨병(T2DM)과 ASCVD에 대한 확립된 임상 지침에 따라 확정적으로 진단되었습니다.
정량적 실시간 중합효소 연쇄반응(qRT-PCR)
총 RNA는 TRIzol 시약을 사용해 분리되었고, 첫 번째 가닥 cDNA는 역전사 시스템 키트로 합성되었습니다. 그 후 cDNA는 SYBR-green PCR 마스터 믹스를 사용하여 qRT-PCR을 위해 희석되었으며, GAPDH가 내부 대조군으로 사용되었습니다. 발현의 상대적 폴드 변화는 2−ΔΔCt 방법으로 계산되었습니다. 분석에 사용된 프라이머는 다음과 같습니다: TUBA1C-앞으로: 5′-GACCTCGTGTGTTGGACCGAAT-3′, 후면: 5′-CGAGGTGACCCACACAAG-3′; NCF4-전진: 5′-CTAAGTTTCAAAGCTGGAGATGTG-3′, 후진: 5′-GAATTCCTGAAGGCTCCTG-3′; PRF1-앞으로: 5′-CCCAGTGACACACAAGGTT-3′ 및 후진: 5′-TCGTTGGGGATGCTACGAG-3′; SLPI-전진: 5′-CCCTCTGGTGTGCTGTT-3′ 및 후진: 5′-CCTCCTTGTGTGTGTGTGT-3′; HSP90B1 앞으로: 5′-CCGAAGAAGAACCTGAAGAGAG-3′ 및 후진: 5′-CATCTGTTCCCACATCCATT-3′; 플라우 앞으로: 5′-GGGGAGATGAGTGTGTGGTG-3′, 후진: 5′-GCAATGTCGTGTGTGTGGTGAGC-3′; GAPDH-전진: 5′-CAGGGCTGCTTTTAACTGGGG-3′, 후진: 5′-GGGTGGAATCATATTGGAACA-3′.
서부 블롯 분석
전체 단백질을 분리하여 로딩 버퍼에 희석한 후 10% SDS-PAGE로 분리한 후 PVDF 막으로 옮겼습니다. 막은 차단 및 특정 1차 항체로 탐침하였으며, 여기에는 항-TUBA1C(1:1000, ab222849), 항-HSP90B1(1:1000, ab238126), 항-NCF4(1:1000, 14648-1-AP), 항-PRF1(1:1000, ab256453), 항-SLPI(1:1000, ab46763), 항-PLAU(1:1000, 17968-1-AP), 항-GAPDH(1:5000, 10494-1-AP) 등이 포함되었다. 고추냉이 과산화효소(HRP)(1:2000, ab6721)와 결합된 2차 항체를 적용하고, 증강 화학발광(ECL) 기질을 사용하여 밴드를 시각화하였다.
통계 분석
통계 분석은 GraphPad 프리즘 소프트웨어를 사용하여 수행되었으며, 데이터는 평균 ± SD로 제시되었습니다. 그룹 간 차이는 학생 t-검정으로 평가되었으며, P값이 0.05 미만일 경우 통계적으로 유의하다고 간주되었습니다.
결과
DEG의 식별
본 연구에서는 GSE78721와 GSE12288 두 개의 데이터셋이 생물정보학 분석에 사용되었습니다. GSE78721년에는 T2DM 환자와 정상 샘플 사이에서 총 2,266개의 DEG가 확인되었으며, 이 중 1,209개의 상향 조절 유전자와 1,057개의 하향 조절 유전자가 포함되어 있습니다(그림 1A). GSE12288년에는 ASCVD 환자와 대조군 사이에서 924개의 DEG가 확인되었으며, 이 중 403개의 유전자는 과발현되었고 521개는 하향 조절되었습니다(그림 1C). 두 데이터셋에서 확인된 상위 50개의 DEG는 그림 1B,D에 표시된 히트맵에 나타났습니다. 이 두 데이터셋을 교차하여 32개의 C-DEG가 확인되었으며, 20개의 상향 조절 유전자와 12개의 하향 조절 유전자로 구성되었습니다(그림 2A,B).
C-DEG의 GO와 KEGG 농축
32개의 C-DEG와 관련된 생물학적 기능과 주요 경로를 밝히기 위해 GO 및 KEGG 분석이 수행되었습니다. C-DEGs에서 생물학적 과정(BP), 세포 성분(CC), 분자 기능(MF)과 관련된 상위 10개 용어가 그림 3A에 제시되어 있습니다. BP의 기능은 주로 플라스미노겐 활성화 조절, 섬유소 용해 조절, 심혈구 분화의 양성 조절, 단백질 결합의 음성 조절, 그리고 심장모세포 분화를 포함합니다. CC 기능은 세린형 엔도펩티다아제 복합체, 세포-기질 부착에 관여하는 단백질 복합체, 응축 염색체, 특정 과립막, PML 본체와 관련된다. MF는 세포골격의 구조적 구성 요소, 초산화물 생성 NADPH 산화효소 활성화제 활성, 분자 내 트랜스퍼라제 활성(인산트랜스퍼라제), 세린형 엑소펩티다제 활성, 그리고 IgG 결합을 포함합니다(그림 3A). KEGG 분석 측면에서 C-DEG는 주로 바이러스성 심근염, 부정맥성 우심실 심근병증, 보체 및 응고 연쇄 반응, 전립선암, 비대성 심근병증, 확장성 심근병증, 세포자멸사, 식체, 그리고 소포체의 단백질 처리 등 중요한 경로에 관여했습니다(그림 3B).
PPI 네트워크 구축과 허브 유전자 선별(hub gene screening)
32개의 C-DEG 중 3개의 유전자는 STRING 데이터베이스에서 다른 C-DEG와 알려진 상호작용이 없어 PPI 네트워크 구성에서 제외되었습니다. STRING 플랫폼은 나머지 29개의 C-DEG에 대한 PPI 분석에 사용되었으며, 29개의 노드와 39개의 엣지로 구성된 네트워크를 드러냈고, 이를 Cytoscape를 사용해 시각화했습니다(그림 4A). 이후 8개의 허브 C-DEG(HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C, CS)가 연결도에 따라 확인되었습니다(그림 4B).
면역 세포 침투의 차이와 허브 C-DEG와의 상관관계
이 분석은 T2DM 데이터셋(GSE78721)에만 집중하여 T2DM과 허브 유전자와의 관계 맥락에서 면역 미세환경 변화를 예비적으로 조사하였습니다. 바이올린 플롯을 사용하여 T2DM 데이터셋과 22종 면역 세포 유형의 침윤 수준 간의 관계를 시각화하였습니다(그림 5A; 보충 표 3에 상세 참조). 면역 세포 침윤 분석 결과, T2DM 그룹에서 활성화된 수지상 세포 비율이 대조군에 비해 더 높았음을 나타냈습니다(P = 0.049), 휴식 중인 수지상세포 비율은 T2DM 그룹에서 유의하게 낮았습니다(P = 0.023). 더 나아가, 8개의 허브 C-DEG의 발현 수준과 22가지 서로 다른 면역 세포 유형의 침윤 수준 간의 관계를 히트맵(그림 5B)을 통해 시각화하였습니다. 특히 TOP3A 발현은 조절 T 세포(Tregs)의 침윤 수준과 강한 양의 상관관계를 보였으며(P < 0.001), SLPI 발현은 감마 델타 T 세포 침윤과 강한 양상관을 보였다(P < 0.001). 반대로, NCF4 발현은 활성화된 NK 세포의 침윤 수준과 강한 음의 상관관계를 보였으며(P < 0.001), PRF1 발현은 M2 대식세포의 침윤 수준과 강한 음의 상관관계를 보였고(P < 0.001), PLAU 발현은 순진한 B 세포의 침윤 수준과 강한 음의 상관관계를 보였으며(P < 0.001),
허브 C-DEG의 후보 약물 표적 네트워크
8개의 허브 C-DEG 중 CS와 TOP3A는 DGIdb 데이터베이스에 알려진 약물 표적으로 등재되지 않아 후속 후보 약물-표적 네트워크 분석에서 제외되었습니다. T2DM과 ASCVD에서 잠재적 치료 역할을 가진 약물을 식별하기 위해 나머지 6개의 허브 C-DEG를 DGIdb 데이터베이스에 제출했습니다(자세한 내용은 보충표 4 참조). 이후 Cytoscape는 허브 C-DEG와 후보 표적 약물 간의 연관성을 보여주는 후보 약물-표적 네트워크를 구축하는 데 사용되었습니다(그림 6). 이 네트워크는 6개의 허브 C-DEGs, 136개의 분자 약물, 137개의 엣지로 구성되어 있었습니다. 구체적으로, TUBA1C, NCF4, PRF1, SLPI, HSP90B1, PLAU에 대해 각각 82, 5, 3, 4, 42개의 후보 표적 약물이 확인되었으며, 대부분은 항종양제, 항염증제, 항혈전제로 분류되었습니다.
허브 C-DEGs 표현의 검증
DGIdb 데이터베이스에 CS와 TOP3A가 후보 약물 표적으로 존재하지 않고, 이들의 생물학적 기능이 T2DM 및 ASCVD 연구 맥락에서 치료 전략과 직접적으로 덜 관련이 있었기 때문에, 연구는 실험적 검증을 위해 나머지 6개의 허브 C-DEG(HSP90B1, PLAU, SLPI, NCF4, PRF1, TUBA1C)에 집중했습니다. 이 허브 C-DEG의 역할을 더 탐구하기 위해 qRT-PCR 및 웨스턴 블롯 분석을 수행하여 다양한 그룹에서 핵심 유전자의 발현 수준을 평가하였습니다(그림 7 및 그림 8). T2DM 및 ASCVD 환자에서 TUBA1C, NCF4, SLPI, HSP90B1, PLAU의 발현 수준은 건강한 대조군에 비해 유의하게 상향 조절되었으나, PRF1 발현은 하향 조절되었습니다. 이러한 발견은 이 핵심 유전자들이 T2DM 및 ASCVD 환자의 진행에 중요한 역할을 할 수 있음을 시사합니다.
데이터 가용성:본 연구에서 생물정보학 분석에 사용되는 유전자 발현 데이터셋 GSE78721 및 GSE12288은 공개된 NCBI GEO 데이터베이스에서 확인할 수 있습니다. 이 연구에서 생성된 실험 검증 부분의 원시 데이터는 보충 파일 1에 제공된다.
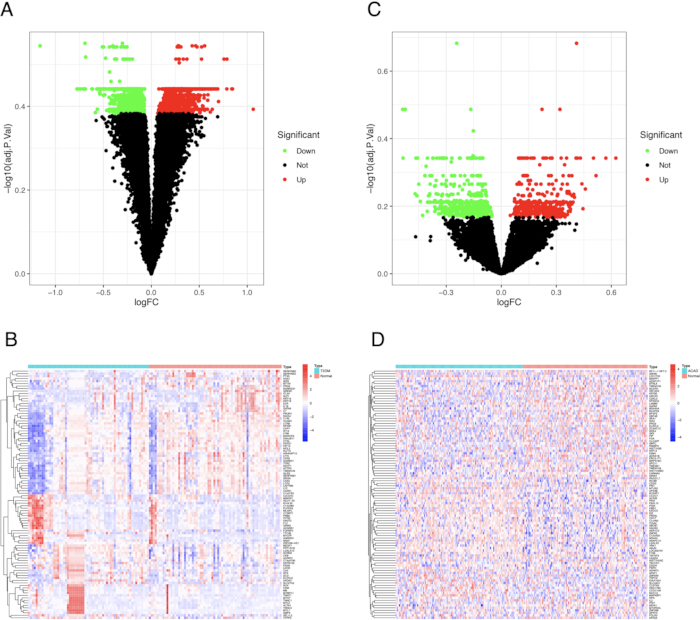
그림 1: 데이터셋 GSE78721 및 GSE12288에서 DEGs의 식별. (A,C) 각각 GSE78721와 GSE12288의 DEGs의 화산 플롯입니다. |logFC|≥ 0.5와 P < 0.05가 선별 임계치로 설정되었으며; 상향 조절된 유전자는 빨간색으로, 하향 조절된 유전자는 초록색으로 표시되었습니다. (B, D) GSE78721와 GSE12288 상위 50개 DEG의 히트맵입니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
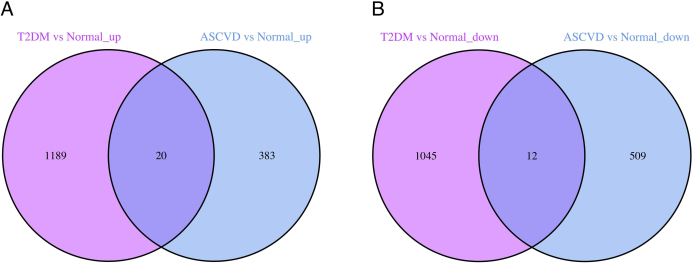
그림 2: 두 개의 데이터셋에서 나온 C-DEG의 벤 다이어그램. (A) GSE78721 및 GSE12288 데이터셋에서 T2DM 및 ASCVD에서 상향 조절된 C-DEG의 벤 다이어그램. (B) GSE78721 및 GSE12288 데이터셋에서 T2DM 및 ASCVD에서 하향 조절된 C-DEG의 벤 다이어그램. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
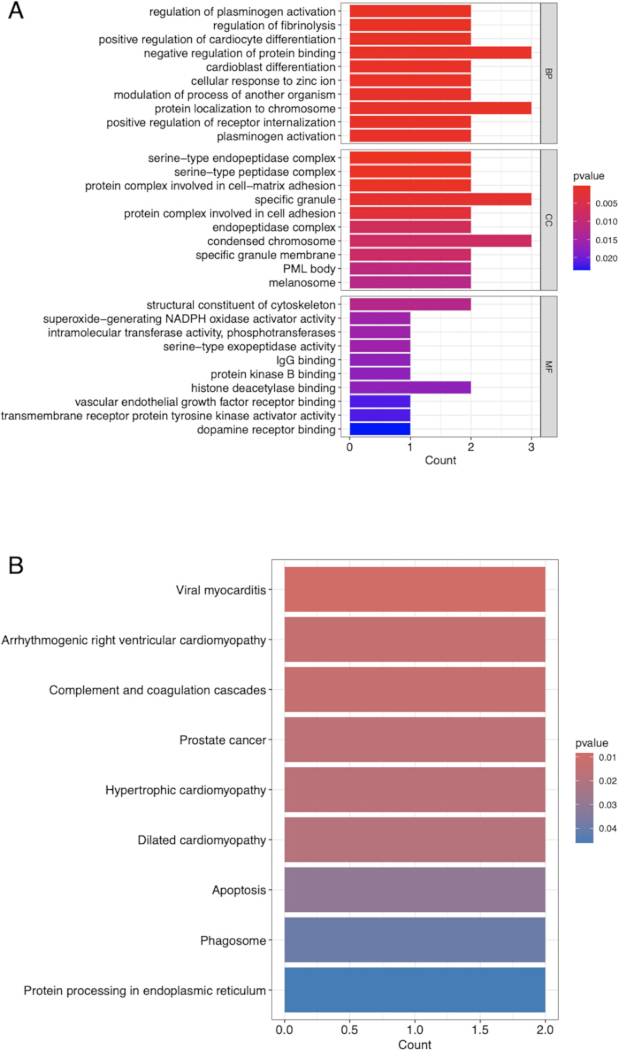
그림 3: C-DEGs의 기능 및 경로 풍부 분석. GO (A) 및 KEGG (B) 농축 분석의 막대 그래프. 수직 좌표는 다양한 GO 항목 또는 KEGG 경로의 설명을, 수평 좌표는 농축된 C-DEG의 수를 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
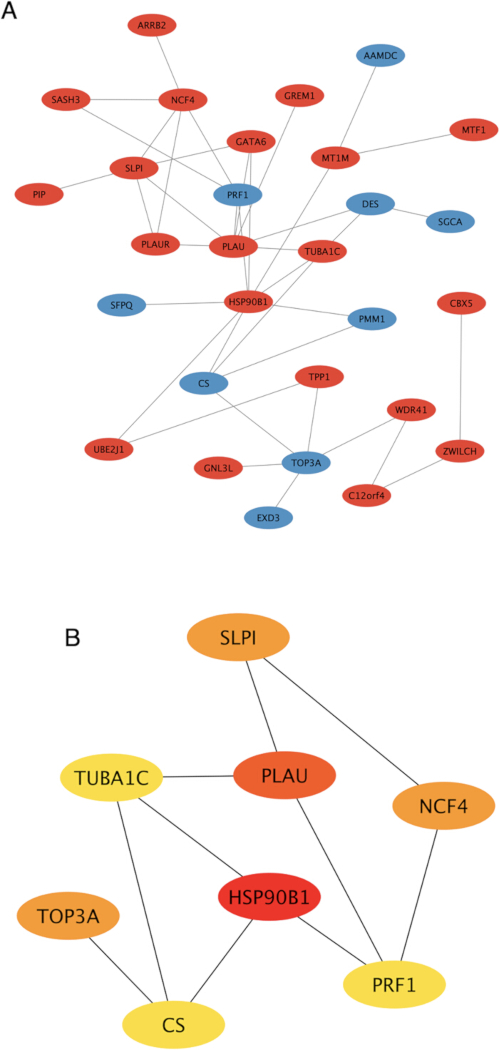
그림 4: C-DEG의 PPI 네트워크 및 허브 유전자 스크리닝. (A) C-DEG의 PPI 네트워크. 빨간색과 파란색은 각각 상향 조절과 하향 조절된 C-DEG를 나타냅니다. (B) C-DEG 중에서 8개의 허브 유전자가 확인되었다. 노드는 C-DEG를, 간선은 C-DEG 간의 상호작용을 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
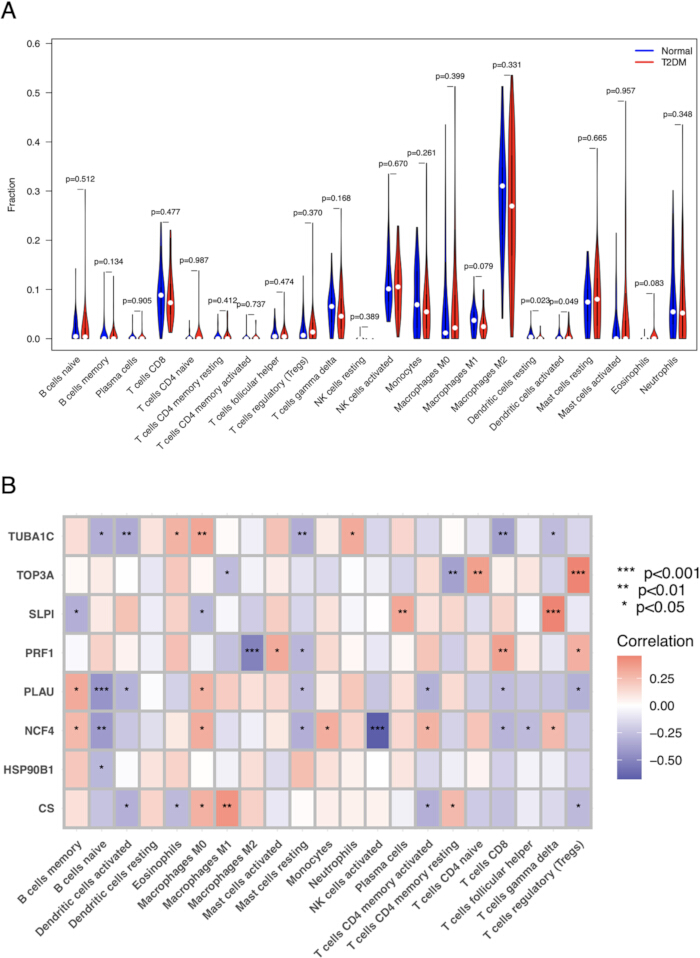
그림 5: 면역 세포 침윤 분석. (A) T2DM 그룹과 대조군 간 22가지 면역 세포 유형의 침윤 차이. 수평축: 면역세포 아형; 수직축: 면역 세포의 상대적 침윤 수준. (B) 8개의 허브 C-DEGs 발현과 22종 면역 세포 유형의 침윤 수준을 상관관계 열맵. 빨간 사각형: 양의 상관관계; 파란 사각형: 음의 상관관계. 어두운 색은 더 강한 상관관계를 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
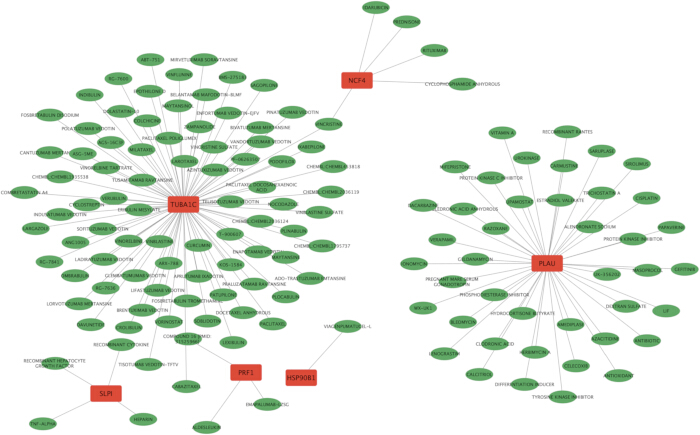
그림 6: 6개의 허브 C-DEG에 대한 후보 약물 표적 네트워크. 빨간색 노드는 허브 C-DEG를, 초록색 노드는 후보 표적 약물, 이들 사이의 경계는 상호작용 쌍을 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
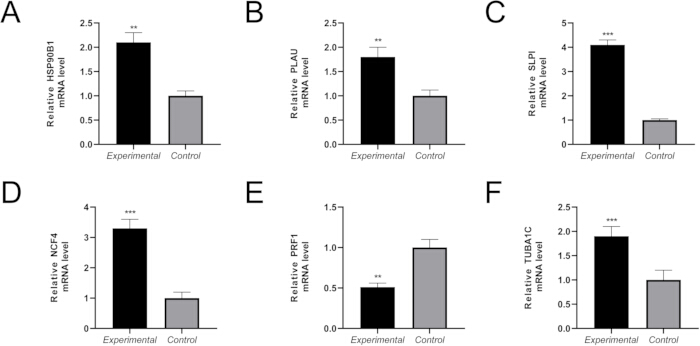
그림 7: qRT-PCR을 이용한 T2DM 및 ASCVD 환자에서 핵심 유전자 발현 검증. qRT-PCR로 HSP90B1(A), PLAU(B), SLPI(C), NCF4(D), PRF1(E), TUBA1C(F)의 mRNA 발현 수준을 검출하였습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
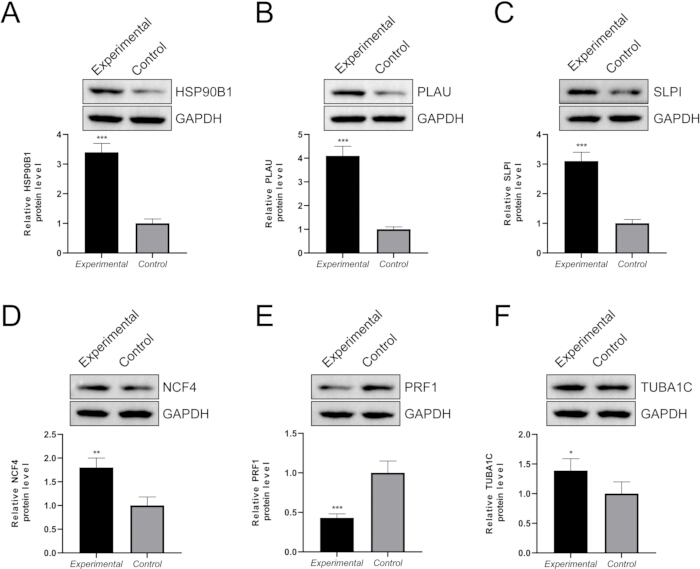
그림 8: T2DM 및 ASCVD 환자에서 웨스턴 블롯을 통한 핵심 유전자 발현 검증. HSP90B1(A), PLAU(B), SLPI(C), NCF4(D), PRF1(E), TUBA1C(F)의 단백질 발현 수준은 웨스턴 블롯 분석법으로 검출되었습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
보충 표 1. GSE78721 데이터셋의 유전자 발현 매트릭스는 본 연구에서 T2DM 전사체 분석에 사용되었습니다. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충표 2. 이 연구의 ASCVD 전사체 분석에 사용된 GSE12288 데이터셋의 유전자 발현 매트릭스. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충표 3: GSE78721 데이터셋에서의 면역세포 침윤 분석. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충표 4: 허브 공통 차별발현 유전자의 후보 약물-표적 상호작용. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보조 파일 1: 이 연구에서 생성된 실험 검증 부분의 원시 데이터입니다. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
토론
T2DM과 ASCVD는 복잡한 질환으로, 두 질환 사이에 중요한 연관성이 있음을 시사하는 새로운 증거가 있습니다. 인슐린 저항성은 T2DM을 포함한 다양한 심혈관 대사 이상의 중추적 전조 요인으로, 이들 질환은 ASCVD 발병에 기여하고 예후에 영향을 줄 수 있습니다 6,7. 또한, DM은 죽상동맥경화증20의 진행 요인 중 하나입니다. T2DM 환자들은 CAD21 위험이 증가하지만, 동반 질환의 근본 메커니즘에 대한 의문이 남아 있습니다. 본 연구는 이 두 질병을 연결하는 관계와 기전을 탐구하는 것뿐만 아니라, 생물정보학 분석과 실험적 검증을 통해 잠재적 바이오마커를 규명하는 것을 목표로 합니다.
이 연구에서는 T2DM과 ASCVD 사이에 총 32개의 C-DEG가 확인되었으며, 이 중 20개의 상향 조절 유전자와 12개의 하향 조절 유전자로 구성되어 있습니다. GO 및 KEGG 농축 분석 결과, 이 C-DEGs는 주로 CAD와 T2DM과 밀접한 관련이 있는 중요한 대사 경로에 풍부함을 보였다22,23. 8개의 허브 C-DEG(HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C, CS)가 두 조건에서 선별되었습니다. 특히, 중심 C-DEG(TOP3A, SLPI, NCF4, PRF1, PLAU)는 면역세포의 침윤 수준과 유의하게 연관되어 있었습니다. HSP90B1 암 진행과 관련이 있으며,25형25형 당뇨병과도 연관이 있을 수 있습니다. PLAU는 T2DM과 관련된 조기 혈관 노화를 예방하는 데 역할을 하는 것으로 입증되었으며, 죽상동맥경화성 플라크의 진행에 중요한 역할을 하여 조기 경보 바이오마커에 대한 통찰을 제공하고 CAD 진행의 기전을 밝히는 데 기여합니다. SLPI의 발현은 진행성 대사 기능 장애와 함께 증가하며, 포도당 내성 저하와 T2DM29와 관련된 C-DEG로 확인되었습니다. NCF4는 CAD30과의 연관성을 확립했으며, NADPH 산화효소 활성과 염증종 활성화 조절에 기여합니다. PRF1이 면역 모니터링 및 조절에서 중요한 역할을 하기 때문에, 심근경색과 안정적인 CAD33을 구분하는 진단 잠재력을 지니고 있습니다. 더 나아가, PRF1은 비만 관련 인슐린 저항성에서 중요한 면역 조절 역할을 합니다34. TUBA1C는 암과도 연관되어 있으며, 종양 미세환경 내 면역 침윤과 연관되어 있습니다35. 이 유전자는 관상동맥 심장병의 감수성 유전자로 확인되었습니다36. 그러나 ASCVD와 제2형 당뇨병(T2DM) 간의 관계는 아직 충분히 탐구되지 않았습니다.
KEGG 분석 결과, 이러한 후보 유전자가 "보체 및 응고 연쇄"와 "소포체에서의 단백질 처리"와 같은 경로에 관여함을 밝혀냈습니다. 이 경로 내 주요 유전자들, 특히 PLAU(섬유소용해와 응고에 관여하는 세린 프로테아제)와 HSP90B1(소포체 샤페론)에 대한 실험적 검증은 T2DM 모델에서 이들의 조절 이상을 확인했습니다. 이러한 발견은 우리의 연구를 특정 분자적 틀 안에 위치시키며, 소포체 스트레스 반응과 혈전용해 경로의 불균형이 널리 알려진 염증 과정을 넘어 당뇨병 병리에 필수적일 수 있음을 시사합니다.
광범위한 연구를 통해 당뇨병 환자에서 면역 반응 기능 장애가 문서화되었습니다. 비정상적인 면역 세포 활성화는 T2DM 진행에 중요한 역할을 합니다38,39. 면역 침윤 분석 결과, T2DM에서 수지상세포 구획에 유의미한 변화가 나타나 활성화된 수지상세포 비율이 증가하고 휴식 중인 수지상돌리 세포의 비율이 감소하는 것이 특징이 되었습니다(그림 5A). 이는 T2DM에서 항원 제시 및 면역 활성화가 강화된 상태를 나타내며, 표적 조직에서 만성 염증 손상에 기여할 수 있음을 시사합니다. 더불어, 특정 허브 유전자(예: 활성화된 NK 세포와 NCF4, M2 대식세포와 PRF1) 간의 강한 상관관계(그림 5B)는 대사 조직 내 유전자 발현과 국소 면역 미세환경 구성 간의 기전적 연관성을 시사하여 면역조절 개입의 새로운 표적을 규명합니다.
또한, T2DM 및 ASCVD의 잠재적 치료 표적, 기전 및 약물을 예측하기 위해 약물-표적 네트워크 분석도 수행되었습니다. 이 후보 약물-표적 네트워크는 6개의 허브 C-DEGs, 136개의 분자 약물, 137개의 엣지를 포함했습니다. 분석 결과 각각 TUBA1C, NCF4, PRF1, SLPI, HSP90B1, PLAU에 대해 82, 5, 3, 4, 1, 42개의 후보 표적 약물이 발견되었습니다. 이들 약물의 대부분은 항종양제, 항염증제, 항혈전제로 분류됩니다. 특히, 리툭시맙, 프레드니손, 항산화제, 베라파밀, 항생제, 콜히친, 헤파린 등 일부 약물 은 T2DM 15,40,41,42,43,44,45,46과 CAD 15,47,48,49,50 모두에서 치료 기능을 입증했습니다.51, 52, 53, 54, 55는 T2DM 및 CAD 환자에서 잠재적 치료 효과를 나타냅니다. 또한 알렌드로네이트 나트륨, 칼시트리올, 셀레코식, 마소프로콜, 미페프리스톤, 커큐민과 같은 여러 약물이 T2DM 56,57,58,59,60,61,62,63에서 치료 기능을 나타내는 것으로 나타났습니다이는 ASCVD에도 도움이 될 수 있습니다. 이 허브 C-DEGs의 T2DM 및 ASCVD에서의 발현 검증도 수행되었습니다.
이 연구에는 몇 가지 한계가 있습니다. 첫째, 검증 실험 내 임상 표본 크기가 부족하여 확대되어야 한다고 보았습니다. 둘째, T2DM과 ASCVD 간의 연관성에 대한 귀중한 통찰을 제공하기 위해 추가 실험 연구가 필요합니다. 향후 연구는 더 큰 임상 코호트를 대상으로 결과를 검증하고, 이 두 질환을 연결하는 분자 기전과 병리학적 경로를 밝히기 위한 보다 포괄적인 실험 연구를 수행하는 것이 포함될 것입니다. 실험 검증 섹션에서는 T2DM과 ASCVD 환자의 샘플을 건강한 대조군과 비교하기 위해 단일 "실험군"으로 통합되었습니다. 이 설계는 동반 질환에서 확인된 핵심 C-DEGs의 전반적인 발현 변화 검증을 용이하게 했지만, 이러한 발현 변화가 T2DM, ASCVD에만 국한되는지, 아니면 두 질환 모두에 공통적인지는 구분하지 않습니다. 이후 연구에서는 T2DM 환자, ASCVD 환자, 그리고 ASCVD와 함께 있는 T2DM 환자 그룹을 비교하여 개별 질환과 동반 질환에서 이들 유전자의 구체적 역할을 보다 정확히 구분해야 합니다. 더불어, 면역 세포 침윤 분석은 T2DM 데이터셋(GSE78721)에서만 수행되었으며, ASCVD 데이터셋(GSE12288)에 대해서는 병렬로 수행되지 않았습니다. 따라서 허브 C-DEG와 면역 세포 침윤 수준(예: Tregs의 TOP3A, 감마델타 T 세포의 SLPI 포함) 간의 보고된 상관관계는 T2DM의 병리학적 맥락에서 잠재적 면역조절 역할만을 반영합니다. 또 다른 한계는 예측된 약물-표적 상호작용에 대한 기능적 검증이 없다는 점입니다. 향후 연구에는 결합 친화도를 평가하기 위한 분자 도킹 시뮬레이션과 동물 모델을 이용한 생체 내 실험이 포함되어야 하며, 이 후보 약물들의 치료 효능을 평가할 수 있습니다.
결론적으로, 이 통합 생물정보학 분석은 예비 실험적 검증과 함께 T2DM과 ASCVD 사이의 여러 공유 허브 유전자와 경로를 확인하고, 이 유전자들을 표적으로 할 잠재적 약물 후보를 제안하였습니다. 이 발견들은 T2DM과 ASCVD 간의 복잡한 상호작용에 대한 기전적 및 치료적 탐구를 위한 새로운 가설과 후보 표적을 제시합니다.
공개 사항
저자들은 상충하는 이해관계가 없다고 선언한다.
감사의 글
저자들은 닝샤 자연과학재단 프로그램(보조금 번호 2023AAC03498)과 인촨 과학기술 혁신 프로젝트(보조금 번호 2024SF005)의 재정 지원에 감사드립니다. 저자들은 또한 이 연구를 가능하게 한 모든 참가자와 연구자들에게 감사의 뜻을 전합니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R package) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape plugin) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (version 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) substrate | Thermo Fisher Scientific | 34080 | |
| enrichplot (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel imaging system | Bio-Rad | ChemiDox XRS | |
| GEO Database (Datasets: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R package) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R package) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(version 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| loading buffer | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R package) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF membrane | Bio-Rad | 1620177 | |
| R software (version 4.0.2) | R Foundation | https://www.r-project.org/ | |
| Real-time PCR system | Bio-Rad | CFX-96 | |
| Reverse Transcription System Kit | Takara | D6110A | |
| scales (R package) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE Gels | Bio-Rad | 4561085 | |
| Secondary antibody | Abcam | ab6721 | |
| STRING databas | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR Master Mix | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R package) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot transfer system | Bio-Rad | 1704150 | |
| TRIzol reagent | Thermo Fisher Scientific | #1559602 |
참고문헌
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.