이 프로토콜은 조직 해리, 순차적 여과, 사전 플레이트 및 정의된 배양 조건을 통해 성체 및 신생아 마우스 골격근에서 1차 근모세포를 분리하고 농축하는 표준화된 방법을 제공하여, 위성 세포 유래 근아세포 배양을 하위 실험 응용으로 구축하고 유지할 수 있게 합니다.
방법 논문
시험관 내 근형성 연구를 위한 골격근 위성 세포 분리
* These authors contributed equally
이 논문에서
요약
초록
골격근의 재생과 성장은 근육 조직에 위치한 줄기세포인 위성 세포에 의존합니다. 현재 이 세포들은 자연 근형성 과정을 가장 정확하게 나타내는 시험관 내 모델 역할을 합니다. 그럼에도 불구하고, 위성 세포의 분리는 골격근 내에 소수만 존재하고 분리된 세포군이 전형적으로 이질적이기 때문에 기술적으로 어렵습니다. 본 연구에서는 성체 및 신생아 마우스의 골격근에서 1차 근모세포를 분리하고 풍부하게 하는 표준화된 방법을 설명합니다. 이 절차는 근육 해리, 효소 해리, 순차적 여과, 비근성 세포를 제한하기 위한 사전 도금 단계, 그리고 위성 세포 유래 근모세포 배양을 위한 정의된 배양 조건을 설명합니다. 이 프로토콜은 성공적인 문화를 구축하기 위한 타이밍, 처리 및 중요한 단계에 관한 실질적인 지침을 제공합니다. 이 프로토콜을 사용해 생성된 1차 근아세포는 근형성 연구, 기능 분석, 유전자 조작, 생세포 영상 또는 약물 시험 등 다양한 후속 응용 분야에 사용될 수 있습니다. 이 세포들은 신뢰성 있게 융합되고 성숙하여 근모세포 융합, 근육 발달, 골격근 기능 회복을 위한 재생 메커니즘, 그리고 대사 연구에 매우 적합합니다.
서론
골격근의 온전성이 손상된 후 재생하는 능력은 근섬유를 따라 위성 세포(SC)라 불리는 특수한 근생성 전구세포 집단에 근본적으로 의존합니다. 이들은 근섬유 라미나 아래에 위치하며, 다핵 근섬유 1,2,3에 붙어 있습니다. SC는 인간, 쥐, 원숭이, 돼지 등 여러 종에서 보존된 쌍 박스 단백질 Pax7의 발현으로 특징지어집니다. Pax7은 SCs가 휴면 상태와 활성화 상태 모두에서 최초로 검출 가능한 지표로 확인되었으며,SCs 4의 발달과 생존에 필수적입니다. 정상 조건에서 SC는 세포 주기의 G0 단계인 휴기 상태로 유지되며, 대사 활성이 낮고 전사적으로 비활성화된 상태입니다 5,6. 근육 손상이나 기계적 스트레스가 발생하면 활성화되어 세포 주기를 재개하고, 수가 증가하며, 새로운 근섬유에 기여하거나 손상된 근섬유를 복구하기 위해 분화합니다 7,8,9. 이 과정에서 일부 SC는 스스로 갱신되어 줄기세포 풀의 장기적인 무결성을 유지하기 위해 휴면 상태(Pax7⁺) 상태로 돌아갑니다. 자가 갱신은 비대칭 분열을 통해 일어나는데, 이는 한 딸세포가 줄기와 유사한 특성을 유지하고 다른 딸세포는 전형적인 근형성 전구세포가 되는 경우이며, 또는 대칭 분열에서는 두 딸세포가 줄기와 유사한 정체성을 유지하거나 분화하는 경우입니다. 이는 생리학적 및 지위적 맥락에 따라 10,11,12.
SC는 근육 재생에 중요한 역할을 하며, 골격근 생물학, 재생 의학, 근이영양증 연구의 핵심 초점입니다. 이 세포들이 어떻게 행동하고 기능하는지 이해하는 것은 근육 회복의 근본 과정을 이해하는 데 도움이 될 뿐만 아니라, 근육 소모 상태를 치료하고 재생을 촉진하는 치료법 개발의 길을 열어줍니다.
근육 조직에서 세포를 분리하는 것은 시험 관 내 연구에서 중요한 단계로, 이들의 분자 특성, 증식 잠재력, 분화 경로, 다양한 자극에 대한 반응을 조사할 수 있게 합니다. 그러나 이 과정은 근육의 복잡한 구조, 다른 세포 유형에 비해 위성 세포의 수가 상대적으로 적고, 격리 과정에서 위성 세포의 생존력과 줄기를 보존해야 한다는 점에서 여러 기술적 도전 과제를 안고 있습니다.
현재 SC 분리를 위해 세 가지 주요 기법이 사용되고 있습니다: 프리플레이트 방법, 형광 활성화 세포 분류(FACS), 그리고 자기 활성화 세포 분류(MACS). 각 방법은 순도, 수율, 세포 생존성, SC 보존 측면에서 뚜렷한 장단점을 제공합니다.
프리플레이트 방법은 근육 유래 세포의 차등 접착 특성을 활용하며, SC는 가장 밀착성 중 하나입니다. 골격근을 효소적으로 소화한 후, 이질적인 세포 현탁액은 일반적으로 콜라겐 I형으로 코팅된 배양판에 판이 부착됩니다. 37°C에서 1-24시간(프로토콜에 따라 다름) 배양 후, 비부착 세포를 수집하여 마트리젤 코팅된 플레이트로 옮겨추가 배양을 진행합니다. 결과적으로 생성된 개체군은 보통 척박 및 섬유아세포뿐만 아니라 소수의 지방세포와 내피세포를 포함한다17,18. 성체 마우스에서 분리된 SCs의 경우 최대 24-48시간마다 1주일, 신생아의 경우 최대 2주간 프리플레이트 과정을 반복하면 세포 집단의 순도를 향상시킬 수 있습니다. 이 방법은 비용 효율적이고 기술적으로는 간단하지만, 노동 집약적이며 종종 다양한 조성을 가진 배양물을 만들어냅니다. 프리플레이트 방법은 FACS나 MACS가 없는 실험실에 적합하며, 생존력과 줄기 유사 특성을 유지하면서 위성 세포를 간단하게 농축할 수 있는 방법을 제공합니다. 따라서 일반적으로 이 접근법과 추가 정제 방법을 결합하여 세포 집단의 전반적인 순도를 높이는 것이 권장됩니다. 현재 프로토콜에서는 콜라겐 코팅판을 사용하고 모델에 따라 타이밍을 조절하여 프리플레이트 단계를 최적화했습니다. 이 차등 부착은 섬유아세포 제거를 가속화하여 도금 전 기간을 단축하고, 성장 인자를 활용하며, 격리 시 취급 시간과 세포 스트레스를 줄입니다.
FACS는 특정 표면 마커(α7-인테그린, CD34, CD29, β1-인테그린, CXCR4)의 발현을 기반으로 위성 세포를 분리하는 널리 사용되는 방법으로, 높은 순도와 특이성을 가능하게 합니다19,20. 하지만 기술적 복잡성, 높은 항체 비용, 특수 장비의 필요성 등으로 인해 종종 도전적인 과제가 있습니다. 더불어, 분류 과정에서 가해지는 기계적 및 생화학적 스트레스는 세포 생존력을 저해할 수 있습니다. 단일 세포 현탁액을 생성해야 하는 요구는 상당한 세포 손실을 초래할 수 있으며, 특정 형광 마커에 의존하면 위성 세포 이질성의 불완전 표현을 초래할 수 있습니다. 또한, 세포 해리에 사용되는 효소 소화는 중요한 표면 항원을 분해하여 정확한 식별과 분리에 영향을 미치고, 근모세포 기능에도 손상을 줄 수 있습니다21,22. FACS는 특히 정확한 표현형 해상도가 필요한 경우 순도가 높은 집단을 단기간 내에 분리하는 데 적합합니다. 그러나 분류 과정에서 발생하는 기계적 및 생화학적 스트레스 때문에 온전하고 생존 가능한 세포를 유지할 때나 전문 장비가 부족한 실험실에서는 이 방법이 덜 적합하다.
반면 MACS는 섬유아세포와 일반 면역 세포의 특정 표면 마커에 항체에 결합한 자기 구슬을 위성 세포 표면에 결합한 뒤, 자기장을 이용해 원치 않는 세포 집단으로부터 분리하는 기술입니다. 정상상에서 부정 선택을 용출하는 것이 관심 있는 위성 셀 집단입니다. MACS는 비교적 높은 순도와 확장성을 가진 위성 셀의 효율적인 농축을 가능하게 하며, FACS에 비해 덜 전문화된 장비와 기술 전문성을 요구합니다. 더불어, 부드러운 자기 분리 공정은 세포 무결성을 보존하여 세포 배양, 유전자 발현 분석, 이식 연구와 같은 후속 응용에 적합합니다. 그러나 MACS는 다중 마커가 필요할 때 낮은 순도, 비특이적 결합 또는 구슬 전달 가능성, 그리고 마커발현 23,24,25에 대한 정량적 데이터 부족으로 제한됩니다.
골격근 세포 분리 프로토콜이 있음에도 불구하고, 발생 및 조직 특이적 변이성 때문에 재현 가능하고 조성적으로 균일한 1차 배양을 얻는 것은 여전히 도전적입니다. 신생아 근육으로부터의 SCs 분리는 성인 근육에 비해 덜 광범위하게 규명되었으며, 발표된 프로토콜은 상대적으로 적으며, 기술적 조건과 실험 목적에 따라 추가 최적화가 필요한 경우가 많습니다26, 27, 28. 효소 농도, 소화 기간, 배양 조건 등 다양한 발달 단계별 조정이 분리된 위성 세포의 최대 수율, 생존성, 순도를 달성하기 위해 종종 필요합니다. 이 글에서는 성체 및 신생아 마우스(출생 후 6-14일, P6-P14)에서 위성 세포를 분리하는 최적화된 프로토콜을 제시하며, 프리플레이트와 MACS 분류를 결합하여 프리플레이트 타이밍과 배지 조성 조정을 결합합니다. 이 프로토콜은 발달 단계에 걸쳐 재현 가능한 세포 집단을 제공하며, 분리된 세포는 높은 순도와 생존력을 보입니다. 면역염색 결과 Pax7+ 세포의 비율은 일반적으로 97%를 초과합니다. 더불어, 이 근모세포들은 강한 분화 잠재력을 보이며, 성장 배지를 분화 배지로 교체할 때 다핵 근관을 효율적으로 형성합니다. 분화된 근관은 위상 차비 현미경을 통해 관찰하거나 성숙한 근섬유를 나타내는 마커인 마이오신 중쇄(MHC)에 대한 면역염색을 통해 확인할 수 있습니다.
프로토콜
이 연구에는 C57BL/6J × STOCK Tyrcch Bmp5se+/+ Myo6sv/J 유전자형의 성체 수컷 쥐(3개월 된 생애)와 C57BL/6J x flox/MK5/flox 유전자형의 신생아 수컷 및 암컷 쥐(출생 후 6-14일, P6-P14)가 모두 사용되었습니다. 쥐들은 넨키 실험생물학 연구소(PAS) 동물 시설 내에서 병원체가 없는 환경에서 사육 및 교배되었습니다. 실험 내내 쥐들은 전통적인 설치류 식단을 제공받았다. 동물 돌봄과 안락사는 폴란드에서 채택된 유럽공동체 이사회(2015년 1월 15일 법률, 연구 대상 동물 사용에 관한 법률)에 따라 수행되었습니다. 모든 연구가 동물 조직을 사용해 고통을 유발하지 않았기 때문에 윤리 위원회의 승인이 의무화되지 않았습니다. 절차는 넨키 실험생물학 연구소 소장의 감독과 승인 하에 수행되었습니다. 다음과 같은 내부 승인이 승인되었습니다: 410P/2021/IBD 및 487W/2022/IBD. 실험에서는 성체 동물에서 다음과 같은 뒷다리 근육을 분석했습니다: 비근근, 자미근, 장신근 손가락근, 앞경골근. 신생아에서는 뒷다리와 앞다리 삼두근 전체를 검사했습니다.
쥐의 뒷다리 근육에서 1차 근모세포를 분리하고 정제하는 절차의 도식은 그림 1에 나와 있습니다.
이 연구에 사용된 시약 및 장비에 대한 정보는 재료표에 제공되어 있습니다.
1. 근육 박리
- IACUC가 승인한 기관 지침에 따라 쥐를 안락사시키세요.
- 생물안전 캐비닛 밖의 뒷다리 근육을 해부하세요. 뒷다리에 70% 에탄올을 뿌리고 쥐를 누운 자세로 눕히세요.
참고: 이 단계에는 멸균 기술이 필요하지 않으며, 표면 오염을 위한 70% 에탄올 사용과 함께 멸균 기구를 사용합니다. - 근육 수집
- 고용균 가위를 사용해 뒷다리 양쪽 피부를 조심스럽게 제거하여 밑에 있는 근육을 노출시킵니다. 멸균 가위와 겸자를 사용해 등쪽 피부에 절개를 내고 부드럽게 벗겨내어 뒷다리 근육을 완전히 노출시킵니다. 깨끗한 준비를 위해 보이는 지방 조직과 힘줄을 제거하세요.
- 근육 복부를 감싸는 근막을 조심스럽게 벗겨내어 균일한 고립과 오염을 줄이세요. 조직을 계속 분리하고 뒷다리 한쪽 근육을 채취하세요. 즉시 근육을 1% 페니실린과 스트렙토마이신(PBS + P/S)이 포함된 인산 완충 생리식염수 1개가 포함된 배양 플레이트로 옮깁니다. 반대쪽 뒷다리에 대해 해부를 반복하고 근육을 PBS + P/S가 포함된 두 번째 배양 플레이트에 넣습니다.
참고: 신생아 쥐의 최적 연령 범위는 출생 후 6일차(P6)부터 14일째(P14)까지입니다. P6 이하에서는 근육 분리가 덜 정밀해져 주변 조직에서 오염이 발생할 수 있어 배양 균일성이 감소합니다. P6부터는 근육 복부의 기원부터 삽입 힘줄까지 분리되어 더 깔끔해져 엑스트플랜트의 전반적인 품질이 향상됩니다. 신생아 쥐의 경우, 여러 동물의 근육을 하나의 플레이트에 모아 모을 수 있습니다. 이 시점부터 모든 절차는 오염을 방지하기 위해 생물안전 캐비닛 내에서 멸균 조건 하에서, 별도로 규정하지 않은 경우 상온(RT)에서 진행되어야 합니다.
- 플레이트 외부에 70% 에탄올을 뿌린 후 멸균 생물안전 캐비닛으로 옮기세요. 두 번째 오토클레이브 겸자를 사용해 배양판에서 근육을 PBS + P/S가 포함된 6웰 플레이트의 첫 번째 웰로 옮긴 후, 조직을 오염시키기 위해 베타딘(100 mg/mL) 2-3방울을 추가합니다. 10초 미만 부드럽게 흔든 후, 두 번째와 세 번째 웰을 통해 신선한 PBS + P/S를 통해 근육을 빠르게 옮겨 베타딘을 깨끗이 헹구고 남은 모발, 결합 조직 또는 기타 이물질을 제거합니다.
참고: 근육은 베타딘에 장기간 노출되어서는 안 되며, 이는 세포에 독성이 있을 수 있습니다.
2. 근육 소화
- 두 번째 오토클레이브된 겸자를 사용해 세척된 근육을 두 개의 1.5mL 튜브(뒷다리 근육군당 한 튜브)로 옮깁니다. 오토클레이드 가위로 조직을 곱게 다져서 근육이 약 1-2mm 크기의 작고 균일한 조각으로 줄어들 때까지 만들어, 이후 효소 소화 시 고르게 노출되도록 합니다.
- 콜라겐제 소화
- 다진 근육을 0.2% 콜라겐제가 포함된 조직 해리 튜브에 옮기고, 0.2 μm 모공 필터로 필터링한 Dulbecco's Modified Eagle Medium(DMEM)에 넣습니다. 뒷다리 근육군마다 해리 튜브를 하나씩 사용하며, 콜라겐제 용액 3mL당 조직 500mg 비율을 유지하세요.
참고: 콜라게나제는 단백질 분해 효소로, 흡입 시 피부와 눈 자극, 호흡기 민감을 유발할 수 있습니다. 화약을 화학 연기 후드에서 다루고 적절한 개인 보호 장비를 착용하세요.
이 단계에서 근육 조직을 철저히 다지는 것이 최적의 근모세포 수량을 얻기 위해 매우 중요합니다. 하지만 전체 조직 질량이 500mg을 초과할 경우, 과도한 조직은 아래에 설명된 효소 농도에서 효소 소화 효율을 저해할 수 있으므로 콜라겐제 양을 비례하여 늘려야 합니다. - 샘플을 37°C에서 30분간 배양하여 효소 소화를 시작하세요.
- 다진 근육을 0.2% 콜라겐제가 포함된 조직 해리 튜브에 옮기고, 0.2 μm 모공 필터로 필터링한 Dulbecco's Modified Eagle Medium(DMEM)에 넣습니다. 뒷다리 근육군마다 해리 튜브를 하나씩 사용하며, 콜라겐제 용액 3mL당 조직 500mg 비율을 유지하세요.
- m_muscle_01 프로그램(해리장치에 미리 정의된, 최적화된 프로그램으로, 제어된 기계적 교반으로 구성됨)을 사용하여 조직 해리를 수행하며, 효소 소화를 촉진하고 세포 생존력을 유지하도록 설계되었습니다. 조직의 기계적 파괴를 강화하기 위해 프로그램을 두 번 적용하세요.
- 조직 해리제가 없으면 다진 근육을 20G 주사기 바늘에 여러 번 통과시켜 큰 조직 조각이 없는 균질한 현탁액을 얻도록 합니다.
또는 다진 근육을 0.2% 콜라겐제가 포함된 15mL 원뿔관으로 옮기는 방법도 있습니다.
- 조직 해리제가 없으면 다진 근육을 20G 주사기 바늘에 여러 번 통과시켜 큰 조직 조각이 없는 균질한 현탁액을 얻도록 합니다.
- 소화 과정을 완성하기 위해 37°C에서 추가로 30분간 배양합니다.
- 남은 조직의 기계적 해리를 위해 2.3 단계를 다시 반복합니다.
참고: 이 단계에서 근육 소화를 주의 깊게 관찰하세요. 조직은 거의 완전히 해리되어 있어야 하며, 눈에 보이는 조각이 거의 남아 있지 않고, 소화 매체는 흐릿해 보여야 합니다. 과도한 배양은 세포를 손상시킵니다.
3. 세포 여과
- 50 mL 원뿔형 튜브 위에 100 μm 세포 체를 올려놓습니다. 1mL의 예열된(37°C까지) 중화배지(NM)와 고포도당 DMEM, 10% 태아 소 혈청(FBS), 1% P/S를 포함해 체를 미리 적셔야 합니다.
- 소화된 근육 현액액을 미리 젖힌 100 μm 체에 부어줍니다. 체에 NM 1mL를 추가로 담아 잔여 조직 이물질을 제거하세요.
- 새로운 50 mL 원뿔 튜브에 70 μm 세포 체를 놓고 1mL의 NM 배지를 미리 적신다. 100 μm 체에서 여과물을 미리 습윤한 70 μm 체를 통과시켜 대식세포를 포함한 더 큰 침투 세포를 제거합니다. 70 μm 체를 1mL NM으로 헹구어 남은 세포를 회수합니다.
- 새로운 50 mL 원뿔형 튜브에 40 μm 셀 체를 놓고 세포 혼합물을 미리 습윤한 40 μm 스트레이너를 통과시킵니다. 40 μm 체를 1mL의 NM으로 헹구어 남은 세포를 회수하세요.
- 15mL 원뿔형 튜브에 30μm 셀 체를 준비하고 1mL의 NM으로 미리 적신합니다. 40 μm 체에서 여과물을 미리 습윤한 30 μm 체를 통과시켜 셀 현탁액을 더욱 정밀하게 만듭니다. 세포 회복을 극대화하기 위해 30 μm 체를 1 mL NM으로 세척하세요.
- 수집된 세포 부유액을 300 × g에서 15분간 RT 원심분리합니다. 튜브 바닥에 백혈구 펠릿이 보이는지 확인하세요. 멸균된 생체 안전 캐비닛 아래에서 조심스럽게 상원액(소화 배지)을 제거하여 버립니다.
참고: 원심분리 후 세포 펠릿은 근모세포 증식 배지(MPM)에 재현탁하여 근모세포 농축을 위해 바로 섹션 5 로 진행하거나, 선택적으로 자기 활성화 세포 분류(MACS, 아래에 설명됨)를 통해 근모세포 집단의 순도를 더욱 높일 수 있습니다.
4. (선택적) 자기 활성화 셀 분류
- 3.6단계에서 얻은 세포 펠릿을 1x PBS(pH 7.2), 0.5% FBS, 2 mM EDTA로 구성된 신선한 MACS 분류 버퍼에 재현탁합니다. 원본 조직 1그램당 80 μL 완충제를 사용하세요.
참고: 절차 내내 MACS 분류 버퍼를 2-8 °C로 유지하세요. - 조직 1g당 위성 세포 분리를 위해 20 μL의 자기 표지 시약을 추가합니다.
참고: 1 g 미만의 샘플은 1 g에 대해 권장하는 동일한 시약 부피를 사용하세요. 1 g 이상의 샘플의 경우, 모든 시약 부피를 비례적으로 조절하세요(예: 2g 조직의 경우 시약 부피의 2배를 사용). - 샘플을 부드럽게 섞어 균질한 표지가 되도록 하고, 얼음 위에 2-8°C에서 15분간 배양합니다.
- 인큐베이션 후에는 최대 5g 조직에서 추출된 샘플에 대해 MACS 분류 버퍼를 사용하여 총 부피를 500 μL로 조절합니다. 더 많은 조직을 사용할 경우, 최적의 분리 효율을 유지하기 위해 현탁액을 여러 개의 튜브로 균등하게 나누어야 합니다.
- 자기 분리 및 위성 셀 수집
참고: 제조사의 지침에 따라 자기 셀 분리 시스템을 사용하여 자기 분리를 수행하십시오.- 자기 분리기의 자기장 안에 분리 컬럼을 배치합니다. 샘플 도포 전에 분리 컬럼을 3 mL의 분류 버퍼로 세척하여 평형을 맞추세요.
- 표지된 세포 현탁액을 컬럼에 적용하고, 위성 세포 농축 집단을 포함하는 용출 분획을 수집합니다.
- 컬럼을 1mL 분량의 정렬 버퍼 두 차례로 세척합니다. 각 알리코트는 기둥 저장소가 비워진 후에만 추가하세요. 통과하는 셀들을 수집해 4.5.3단계에서 사용한 용출액과 결합하세요.
- 복합 셀 현탁액을 300 × g에서 RT 온도에서 10분간 원심분리하여 분리된 위성 셀에 MPM으로 펠릿을 투여합니다.
5. 근모세포 정화 (도금 전 단계)
- 콜라겐 코팅 플레이트를 준비하세요.
- 1형 쥐 콜라겐을 멸균 증류수에 녹인 20 mM 아세트산에 희석하여 50 μg/mL의 작동 농도로 만든 후 배양 용기에 첨가합니다. RT에서 1시간 정도 부양하세요.
참고: 표면적이 ≈80 cm2인 100 mm 플레이트를 코팅하려면 약 50 μg/mL 콜라겐 5mL가 필요합니다. - 플레이트에서 용액을 조심스럽게 흡입하세요.
- 플레이트를 멸균 1x PBS로 3번 같은 양으로 깨끗이 헹구어 남은 산을 제거하세요.
참고: 판은 즉시 사용할 수 있거나 2-8 °C에서 자연 건조 후 보관할 수 있습니다.
- 1형 쥐 콜라겐을 멸균 증류수에 녹인 20 mM 아세트산에 희석하여 50 μg/mL의 작동 농도로 만든 후 배양 용기에 첨가합니다. RT에서 1시간 정도 부양하세요.
- 3.6단계 또는 4.5.4단계에서 얻은 세포 펠릿을 37°C로 예열한 10mL의 근모세포 증식 배지(MPM)에 재현탁합니다.
- 성체 마우스 근아세포에 대해 고포도당 DMEM, 20% FBS, 10% 말 혈청(HS), 0.5% 닭 배아 추출물(CEE), 멸균 증류 H2O에용해된 20 ng/mL 기본 섬유아세포 성장인자(bFGF), 그리고 신생아 마우스 F10 배지를 포함한 1% P/S 또는 MPM을 포함한 MPM을 준비하세요(신생아 배양을 위한 보다 통제되고 선택적인 성장 지원), 섬유아세포 비율이 더 높음), FBS 20%, HS 10%, CEE 0.5%, bFGF 20 ng/mL, P/S 1%입니다.
참고: bFGF를 배양지에 직접 최종 농도인 20 ng/mL로 첨가하세요. bFGF는 미분화된 근아세포 상태를 보존하고 증식을 촉진하는 데 필수적입니다29.
CEE는 또한 근아세포 성장과 증식을 촉진하며, 자발적 근아세포 융합을 예방하여 건강한 근아세포 배양을 유지하는 데 중요한 역할을 합니다. - 배양이 근생성 순도가 더 높아지면(일반적으로 세 번의 통과 후), 신생아 근아세포 내 배지는 고포당 DMEM과 F10의 1:1 혼합물로 구성된 MPM으로 전환되며, 이후 성체 마우스 근아세포에 사용되는 표준 MPM 제형으로 전환할 수 있습니다.
참고: 배지 변경으로 근모세포가 섬유아세포보다 선택적으로 성장하는 이점을 잃기 때문에 초기 순도를 미리 확인하는 것이 중요합니다. - 프리플레이트 셀.
- 첫 번째 프리플레이트
- 성체 근모세포: 콜라겐 코팅판 위에 있는 씨앗 세포. 플레이트를 37°C,CO2 인큐베이터에 24시간 보관하세요.
- 신생아 근모세포: 콜라겐 코팅된 접시에 세포를 배납하고 24시간 배양합니다. 별도의 명시가 없는 한 M-10 배지를 보충하여 MPM에서 배양을 유지하세요( 5.4절 참조).
참고: 이 단계에서 현미경 검사는 근육 조각과 세포가 불균질하게 혼합되어 있음을 알 수 있습니다(그림 2A).
신생아 섬유아세포는 높은 증식 능력, 향상된 세포골격 유연성(덜 경직된 액틴-마이오신 네트워크와 더 역동적인 국소 부착 회전으로 특징), 성인 섬유아세포와 비교해 독특한 인테그린 발현 프로필을 보인다32,33. 이러한 특성은 콜라겐과 같은 외부 세포외 기질 코팅이 없어도 배양 표면에 효율적으로 접착할 수 있게 합니다. 따라서 신생아 근아세포의 경우, 콜라겐 코팅 플레이트를 표준 코팅되지 않은 조직 배양용 플라스틱으로 대체할 수 있으나, 이는 필요한 프리 플레이트 수를 증가시킬 수 있습니다.
- 두 번째 프리플레이트
- 성체 근모세포: 10 mL 혈청학적 피펫을 사용해 MPM에 아직 떠 있는 세포를 37 °C로 예열한 콜라겐 코팅 플레이트로 부드럽게 옮깁니다. 원래 플레이트를 1-2mL의 따뜻한 MPM으로 헹구어 남아 있는 분리된 세포를 회수하세요. 플레이트를 37°C,CO2 인큐베이터에 6-8시간 보관하세요.
참고: 이 과정은 위상 대비 현미경으로 면밀히 모니터링하여 근형성 세포의 전체 스펙트럼을 대표하는 모든 비부착 세포가 수집되어 새로운 배양 플레이트로 옮겨지도록 해야 합니다. - 신생아 근모세포: 콜라겐 코팅된 플레이트에 두 번째 프리플레이트를 16시간 더 반복하며, 원래 플레이트를 1-2mL의 따뜻한 MPM F10으로 세척하여 남아 있는 분리된 세포를 회수합니다.
참고: 주로 섬유아세포로 구성된 큰 세포는 콜라겐 코팅판 바닥에 계속 부착되어 있습니다(그림 2B 및 그림 3).
- 성체 근모세포: 10 mL 혈청학적 피펫을 사용해 MPM에 아직 떠 있는 세포를 37 °C로 예열한 콜라겐 코팅 플레이트로 부드럽게 옮깁니다. 원래 플레이트를 1-2mL의 따뜻한 MPM으로 헹구어 남아 있는 분리된 세포를 회수하세요. 플레이트를 37°C,CO2 인큐베이터에 6-8시간 보관하세요.
- 첫 번째 프리플레이트
- 마트리젤 코팅 판에 부착된 도금 세포
- 마트리젤을 차가운 DMEM으로 희석하여 10% 마트리젤 용액을 준비합니다. 디스펜서 팁을 사용해 접시 표면을 고르게 코팅해 완전히 덮을 때까지 하세요. 마트리젤을 37°C에서 15분간 중합시키세요.
참고: 마트리젤 코팅은 얼음 위에서 수행해야 하며, 얼음은 RT에서 빠르게 중합됩니다. - 콜라겐 코팅 플레이트에서 마트리젤 코팅 플레이트로 비부착 세포를 옮깁니다. 콜라겐 코팅된 플레이트를 1-2mL의 따뜻한 MPM으로 헹구어 남은 세포를 회수하세요. 플레이트를CO2 인큐베이터에서 37°C에서 72시간 동안 보관하세요.
- 성체 근모세포의 경우, 72시간 후 배양 내에 주로 부착되고 작고 둥근 근모세포가 포함되는지 확인하라(그림 2C). 몇 개의 큰 삼각형 모양 섬유아세포도 존재할 수 있으나, 매우 적은 양입니다. 마트리젤에 씨앗을 뿌린 후에도 많은 섬유아세포가 남아 있다면, 섬유아세포 풍부도에 따라 2-6시간의 사전 도금 단계를 반복합니다.
- 신생아 근아세포의 경우, 섬유아세포를 제거하고 초기 이질적 배양에서 점진적으로 근모세포 집단을 풍부하게 하기 위해 사전 도금 단계와 함께 추가 통과를 수행해야 합니다.
- 마트리젤을 차가운 DMEM으로 희석하여 10% 마트리젤 용액을 준비합니다. 디스펜서 팁을 사용해 접시 표면을 고르게 코팅해 완전히 덮을 때까지 하세요. 마트리젤을 37°C에서 15분간 중합시키세요.
6. 근아세포의 유지 및 확장
- 정제된 근모세포는 MPM에서 배양하여 배양지를 격일로 교체하여 유지합니다.
참고: 세포 수율이 60-70%를 넘지 않도록 주의해야 하며, 밀도가 높으면 자발적 근아세포 융합이 유발되어 분화가 시작될 수 있습니다. - 필요하다면 세포를 여러 판에 나누어 10% 마트리젤로 코팅하여 배양을 확장할 수 있습니다.
참고: 성체 근모세포: 일반적으로 2-3개의 통과가 권장되며, 추가 통과는 세포 신장과 자발적 융합을 증가시킵니다. 신생아 근아세포는 일반적으로 5-6번의 통과를 거치며 유의미한 자연 융합이 없습니다.- 근아세포 개체군을 늘리기 위해, 섬유아세포 오염이 상당히 감소한 후 3번째 통로부터 MPM에서 고포도당 DMEM과 F10을 1:1 혼합하여 투여하세요. 4번째 구절부터는 이 배양군이 거의 순수한 근모세포 개체군으로 구성되어 있습니다; 신생아 마우스 근아세포는 MPM으로 전환하세요.
7. 근모세포 분화
- 세포를 현미경으로 시각화해 보세요. 세포가 비교적 균일하고, 작으며, 둥글거나 방추 모양이고, 활발히 증식하며, 과밀하지 않다는 것을 확인하세요. 이로 인해 문화가 차별화에 대비할 준비가 되어 있음을 보장합니다.
- 5.6.1절에 설명된 대로 실험 설계에 적합한 조직 배양 표면에 10% 마트리겔을 코팅합니다.
참고: 유리 표면에서 영상 품질이 우수하지만, 근형성 세포는 유리 챔버에서 부착 및 생존성이 감소했으며, 이는 조직 배양 플라스틱34에 비해 마트리젤 단백질 부착력이 낮기 때문인 것으로 보입니다. - 0.25% 트립신-EDTA 2mL를 추가하여 세포를 분리하고, CO₂ 인큐베이터에서 37°C에서 2-5분간 배양합니다.
- 모든 세포가 분리되었는지 확인하기 위해 현미경으로 배양물을 검사합니다. 분리가 완료되면 중화 배지 2mL를 추가합니다( 3.1절 참조).
- 세포 현탁액을 300 × g에서 RT 로 10분간 원심분리하여 세포에 펠릿을 넣으세요.
- 1차 근모세포를 마트리젤 코팅된 배양판에 재현탁하고 씨앗 종매하여 37°C에서 CO₂ 인큐베이터에서 24시간 배양합니다.
- 다음 날, MPM을 고포도당 DMEM, 5% HS, 1% P/S가 포함된 근모세포 분화 배지(MDM)로 교체합니다.
참고: 고품질 근관 형성을 달성하려면 분화 배지로 전환하기 전에 근모세포가 80-90% 합류율을 달성하도록 해야 합니다. 다음 날까지 원하는 합류점에 도달하지 못하면 최적의 밀도에 도달할 때까지 배양을 계속합니다.
8. 근모세포 및 근관의 면역염색
- 잔류 배지를 제거하기 위해 1x PBS로 셀을 2번 세척하세요.
- 세포를 4% 파라포름알데히드(PFA)와 1x PBS에 15분간 RT에서 고정합니다. 별도로 명시되지 않은 경우 RT에서 추가 조치가 진행될 예정입니다.
참고: PFA는 독성이 있습니다. PFA 용액은 항상 장갑, 실험복, 안구 보호구를 착용한 채 화학 연기 후드에서 다루세요. 피부나 눈과의 직접 접촉을 피하세요. PFA 함유 폐기물은 기관의 화학 및 생물학적 위험 규정에 따라 처리해야 합니다. - 고정된 세포를 50 mM 염화암모늄(NH₄Cl)과 함께 RT(가급적 셰이커 위, 50-100rpm)에서 30분간 배양하여 자유 알데히드 그룹을 소탕하고 이후 염색 단계에서 비특이적 결합을 줄입니다.
- 셀을 RT에서 3회 5분간 세척하고, 1개의 PBS(셰이커로, 50-100rpm)를 사용하세요.
- 0.2% Triton X-100을 1x PBS에 10분간 (셰이커에서) 세포를 투과화합니다.
- 셀을 2-3분, 각 5분, 1개의 PBS(셰이커에 사용)로 세척하세요.
- 세포를 차단액(2% 말혈청을 1x PBS에 넣고 0.02% Triton X-100을 함유)으로 1.5시간 동안 RT(셰이커, 50-100rpm)에서 배양하여 비특이적 항체 결합을 차단합니다.
- 1차 항체를 희석한 상태로 4°C에서 하룻밤 배양합니다(Pax7 - 1:100; MHC - 1:50) 블로킹 용액(셰이커에서 50-100rpm)에 넣었습니다.
- 셀을 3회 10-15분 동안 세척하고, 0.02% Triton X-100이 들어간 PBS 1개(셰이커 사용, 50-100rpm)를 사용하세요.
- 적절한 2차 항체를 차단액에 1:250 희석한 상태로 1-1.5시간 RT(셰이커 위에서 빛으로부터 보호)하여 배양합니다.
- 셀을 3회 10-15분 동안 세척하고, 0.02% 트리톤 X-100이 들어있는 PBS 1개(셰이커 사용, 50-100rpm)를 사용하세요.
- 실험 설계에 명시된 적절한 마운팅 매체와 커버슬립을 사용하여 시료를 장착하세요.
- 장기 보관을 위해서는 장착된 샘플을 4°C에서 빛으로부터 보호하여 보관하세요.
결과
이 프로토콜의 성공적인 실행은 성체 및 신생아 쥐의 뒷다리 근육에서 유래한 매우 유효하고 형태학적으로 구별되는 1차 근모아 배양을 얻습니다. 구멍 크기가 줄어드는 세포 체를 통한 순차 여과와 선택적 자기 활성화 세포 분류(MACS)를 결합함으로써, 이 프로토콜은 고도로 정제된 근모세포 집단을 분리할 수 있게 합니다. 분리된 Pax7+ 셀의 순도를 더욱 높이기 위해 최적화된 프리플레이트 단계가 도입되었습니다. 이 단계(프로토콜 섹션 5) 이후, 대부분의 섬유아세포와 기타 비근형성 세포는 초기 콜라겐 코팅 표면에 부착된 상태로 남아 있는 반면(그림 3), 반면 마이오모세포는 부유 상태로 남아 이후 마트리젤 코팅판에 부착됩니다(그림 2B). 고혈청 농도, bFGF 및 닭 배아 추출물(CEE) 보충, 그리고 마트리젤 코팅 사용 등 근모세포 증식 배지(MPM)의 특정 성분의 기존 효과를 바탕으로, 저희가 최적화한 이 제형은 근원성 세포보다 근모세포에 비해 근모세포에 뚜렷한 증식 이점을 제공합니다 14,30,31,35. 따라서 MPM 배양 후 72시간 이내에 핵과 세포질 비율이 높은 작고 둥근에서 방추 모양의 근모세포가 우세해야 합니다(그림 2C). 소수의 크고 납작한 섬유아세포 유사 세포가 남아 있을 수 있으며, 이는 일반적으로 배양 전체의 3% 미만을 차지합니다.
이 프로토콜을 사용한 분리 후 72시간 후 세포 수율은 기증 동물의 나이에 따라 달라집니다. 한 마리 성체 쥐에서 양다리의 네 개의 뒷다리근(비복근, 자자미근, 앞경골근, 앞경골근, 그리고 장신근)을 사용해 분리한 근아세포의 경우, 일반적으로 동물당 약 2-4개의 × 10⁶ 세포를 얻을 수 있습니다. 성체 마우스(**p < 0.01)와 신생아 마우스(***p < 0.0001)에서 분리된 세포의 97% 이상이 근원성 전구세포였으며, 이는 Pax7+ 발현(그림 4A,B)으로 나타나 근원성 전구세포의 높은 농축을 확인시켰습니다. 이 Pax7 기반 순도 평가는 사전 도금 후 MACS 및/또는 팽창을 포함한 전체 농축 작업 흐름이 완료된 후에 수행되었으며, 초기 접착 프리플레이트 분획에 대해서는 수행되지 않았습니다.
신생아 근아세포는 MACS 유무와 관계없이 높은 순도를 달성했으므로(그림 4A, B), 이 프로토콜은 다양한 기술 지원 수준을 가진 실험실에 적합했습니다. 하지만 MACS가 생략될 경우, 유사한 순도를 얻기 위해 추가적인 프리플레이트 단계가 필요합니다.
성체 근모세포에 대해서는 MACS 분류된 집단과 분류되지 않은 집단의 직접적인 통계적 비교가 수행되지 않았습니다. 그러나 증식 능력이 낮고 분화에 더 집중하는 점을 고려할 때, MACS는 단독 프리팅에 비해 농축을 향상시킬 것으로 예상됩니다.
80-90% 합류율에 도달한 후 분화 배지(MDM)로 전환하면, 근모세포는 48-72시간 이내에 길쭉하고 다핵된 근관을 효율적으로 융합하여 형성합니다. 이 근관들은 위상 차 현미경(그림 2D)으로 쉽게 관찰되며, 마이오신 중쇄(MHC) 면역염색을 통해 추가 확인이 가능합니다(그림 5A,B). 분화된 근관에서 조직화된 근절 구조가 존재하는 것은 이러한 배양 조건에서 근형성 분화와 일치하는 구조적 성숙을 나타냅니다.
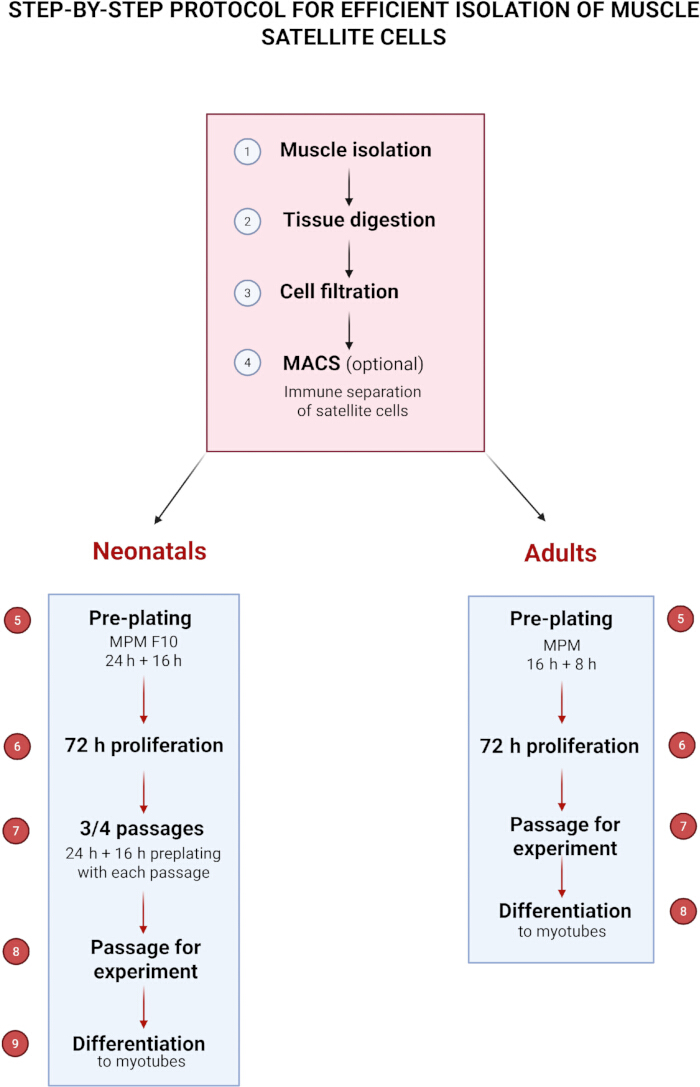
그림 1: 근육 위성 세포의 효율적인 분리를 위한 단계별 프로토콜. 이 그림의 더 큰 버전을 보려면 여기를 클릭해 주세요.
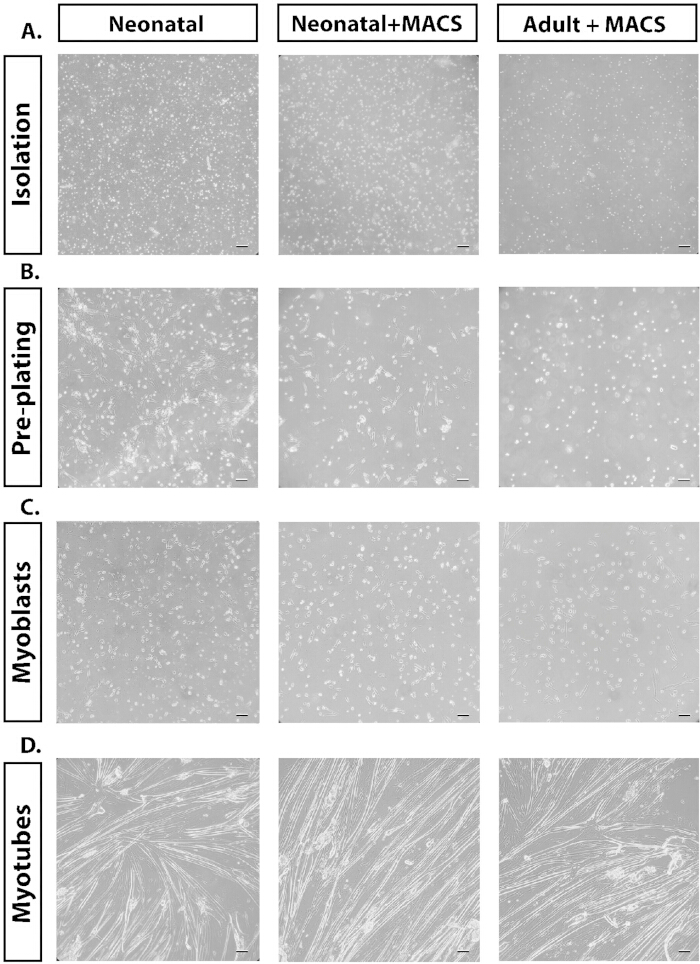
그림 2: 본문에서 논의한 다양한 방법론의 대표적인 위상 차이 현미경 이미지. (A) 소화 후 세포 분리 과정의 위상 차이(20배) 이미지. (B) 부착된 섬유아세포와 분리된 근아세포가 포함된 배양물의 프리플레이트 위상 대비(20배). (C) 부착 후 증식하는 근모세포의 위상 대비(20배). (D) 분화된 근관의 위상 대비(20배). 스케일 바 = 50 μm. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
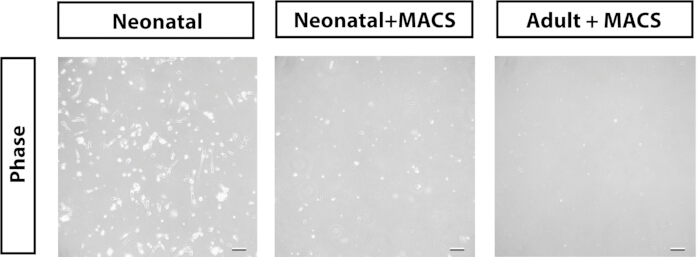
그림 3: 첫 번째 프리플레이트 단계 이후 부착된 세포의 대표적인 위상 대비 현미경 이미지(20×). 스케일 바 = 50 μm. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
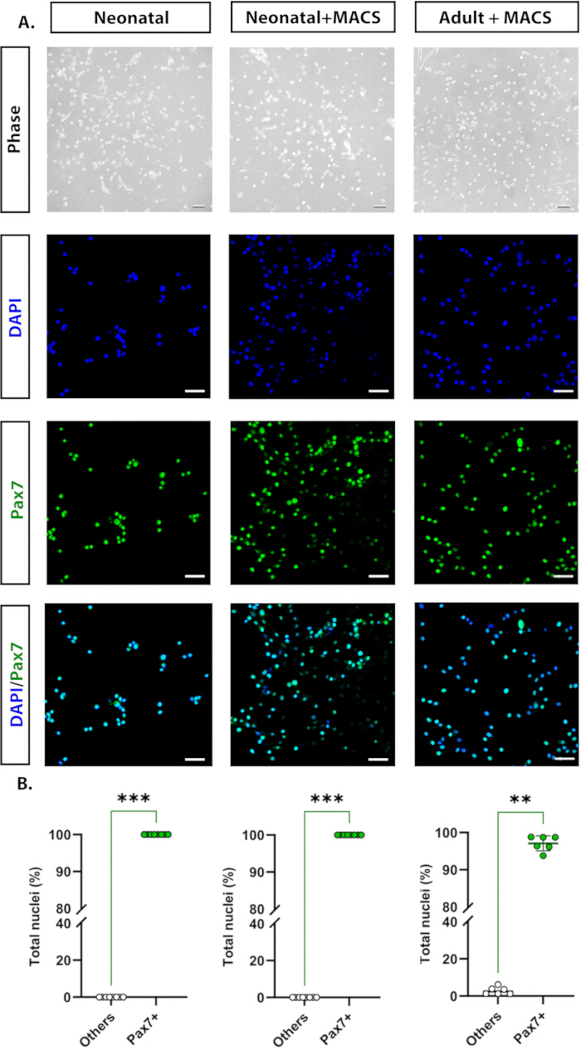
그림 4: 위상 차이 현미경(20배)과 면역세포화학(40배)으로 촬영한 대표 이미지. (A) Pax7+ (녹색)와 DAPI 염색(연한 파란색)으로 염색된 핵, 그리고 합병된 채널에서의 공존 위치 확인. (B) 근모세포 배양의 순도 분석으로, 획득된 필드당 핵으로 정규화된 Pax7+ 세포의 비율을 정량화합니다(각 웰당 최소 6개 웰에서 한 필드). 면역염색은 최소 세 번 반복되었으며, 실험당 두세 번의 기술적 복제가 이루어졌습니다. **p < 0.01, ***p < 0.0001 (통계적 유의성은 Mann Whitney U 검정을 사용해 분석됨). 스케일 바 = 50 μm. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
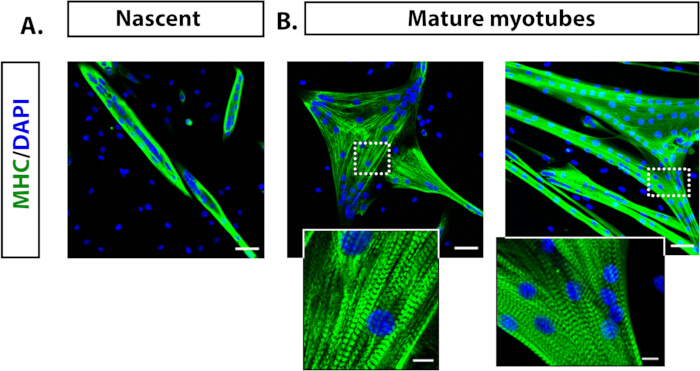
그림 5: 성체 마우스 근아세포와 구분된 근관을 보여주는 대표적인 면역형광 이미지. (A) 초기 근관(배양 3일)을 20배 MHC(녹색)로 촬영하고, 핵은 DAPI(연한 파란색)로 염색됨. (B) 20배 배양 후 6일간 촬영된 성숙한 근관과 마이오신 염색에 의해 정의된 근절 무늬 구조의 세부 사항. 면역염색은 최소 세 번 반복되었으며, 실험당 두세 번의 기술적 복제가 이루어졌습니다. 스케일 바 = 50 μm; 확대된 스케일 바 = 10 μm. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
토론
위성 세포(SCs)는 골격근의 성장, 수리, 재생을 담당하는 주요 근형성 줄기세포 및 전구세포 집단을 구성합니다36,37. 이들이 세포 주기에 다시 진입하여 성숙한 근섬유로 분화하는 능력은 골격근 생물학 연구에 필수적이다. 정의된 시험관 조건 하에서 분리 및 배양하면, SCs는 근육모세포로 증식하여 분화하여 다핵 근관으로 융합할 수 있으며, 이는 생체 내에서 관찰된 근형성의 핵심 측면을 재현합니다.
저희 방법은 신생아 조직에 맞게 효소 농도, 소화 기간, 배양 조건 등 주요 매개변수를 신중하게 조정하여 매우 생존 가능하고 균질한 세포 집단의 회복을 가능하게 합니다. 효소 및 기계적 해리, 다단계 여과 및 선택적 자기 활성화 세포 분류(MACS), 그리고 프리플레이트 작업의 조합은 높은 세포 수율과 순도를 보장합니다. 특히, 이 프로토콜은 일반적으로 97% 이상의 Pax7+ 근원 전구세포를 생성하여 후속 분화 분석과 분자 연구에 적합하게 만듭니다.
프리플레이트 기술은 섬유아세포와 SCs의 접착 특성 차이에 의존합니다16, 38, 39. 이 단계는 배양 순도를 결정하는 데 특히 중요하며, 타이밍이나 세척의 미세한 차이가 섬유아세포 오염이나 근모세포 회복 감소로 이어질 수 있습니다. 정확히 타이밍에 맞춘 프리플레이트 단계의 포함은 근형성세포를 섬유아세포 및 기타 비근형성 집단과 효율적으로 분리하여 특히 유리합니다. 이 방법은 자기 분리 장비가 없을 때나 근모세포 배양의 순도를 추가로 높이기 위한 추가 조치로 사용될 수 있습니다. 우리 프로토콜에서는 콜라겐 코팅 플레이트와 정밀한 시간 맞춰 사전 도금 과정을 최적화하여, 근형성 세포를 섬유아세포 및 기타 비근형성성 세포군과 효율적으로 분리합니다.
현재 프로토콜의 또 다른 방법론적 발전은 성인 및 신생아 세포 모두에 최적화된 정의된 근모세포 증식 배지(MPM)를 사용하는 것입니다. 높은 혈청 농도, 닭 배아 추출물(CEE), 그리고 기본 섬유아세포 성장 인자(bFGF)의 조합은 미분화 표현형의 지속적인 증식과 유지를 지원합니다. 특히 CEE는 근모세포 생존력을 높이고 자발적 융합을 지연시키는 성장 촉진 인자를 제공하며, bFGF는 정준 신호 전달 경로를 활성화하여 SCs 정체성을 유지한다29,31. 마트리겔 코팅 표면의 사용은 세포 부착력과 증식 효율을 더욱 향상시켜, 분리 후 72시간 이내에 관찰되는 높은 생존력과 형태학적 균질성에 기여합니다.
분화 배지로 전이된 정제된 근모세포는 다핵 수축성 근관으로 융합되어 마이오신 중사슬(MHC)을 발현하며, 근육생성 잠재력과 구조적 성숙이 보존됩니다. 이 배양물은 골격근 재생, 세포 신호 전달, 전사 조절, 질병 모델링 연구에 매우 적합합니다. 합류율은 매우 중요한 요소로, 매우 낮은 합류율의 배양은 진행에 실패하고, 지나치게 높은 합류율은 근모세포 융합과 분화를 유도합니다. 근모세포는 합류 여부와 관계없이 5일 이상 같은 배양 접시에 유지해서는 안 되며, 장기간 배양은 분화를 촉진할 수 있습니다.
이러한 장점에도 불구하고, 일부 단계는 실패에 민감합니다. 효소 소화는 조직 해리와 세포 생존 능력의 균형을 맞추기 위해 신중하게 조정되어야 합니다. 사전 도금 시기, 분화 전 세포 밀도, 해리 중 부드러운 취급 모두 수율, 순도, 융합 잠재력에 강한 영향을 미칩니다. 지속적인 섬유아세포 오염, 낮은 수율, 조기 분화, 부적절한 부착 또는 약한 근관 형성과 같은 일반적인 문제는 프리플레이트, 중간 보조 또는 플레이트 기술의 소폭 조정으로 해결할 수 있습니다.
문제 해결 및 실용적 고려사항:
분리 순도와 효소 소화는 효소 종류, 농도, 배양 시간, 조직 다름량의 차이가 세포 수율과 배양 순도에 큰 영향을 미치므로 세심한 주의가 필요합니다. 소화 부족은 조직을 부분적으로 남겨 세포 방출을 줄이고 다음 단계에서 체가 막힐 수 있으며, 과소화는 생물막처럼 보일 수 있어 세포 생존력을 저해할 수 있습니다. 따라서 재현 가능한 결과를 위해서는 신중한 최적화가 필수적입니다.
여과와 여과기 사용도 매우 중요한데, 불완전하거나 비효율적인 여과는 세포 부탁액에 조직 이물질이나 응집체를 남겨 세포 부착을 방해하고 배양 순도를 저하시킬 수 있기 때문입니다. 적절한 크기의 거름을 사용하고, 현탁액을 부드럽게 통과시키며, 필터를 미리 적시하면 이물질 제거를 개선하면서 셀에 가해지는 기계적 스트레스를 최소화할 수 있습니다. 더 큰 조직 조각이 필터를 막을 경우, 세포가 필터 표면에 갇혀 수율이 감소할 수 있으므로 부유액을 억지로 통과시키기보다는 새로운 체로 교체해야 합니다. 필요할 때 새 필터로 반복 여과하면 생존 가능한 근아세포 회복을 더욱 촉진할 수 있습니다.
조기 또는 실패한 분화는 배양 사이에 과도하게 조밀해질 수 있으며, 이는 자발적 분화나 조기 융합을 유발하여 실험 타이밍에 영향을 줄 수 있습니다. 따라서 분화 전에 세포 밀도를 모니터링하고 파종 밀도 또는 배지 부피를 조절하는 것이 매우 중요합니다. 과도한 합류의 경우, 부분 분할이나 부드러운 재파종을 통해 의도치 않은 근관 형성을 유도하지 않고 증식을 유지하는 데 도움이 됩니다. 반대로, 분화 시작 전에 원하는 합류점에 도달하지 못하면 효과적인 분화를 보장하기 위해 최적의 밀도가 달성될 때까지 배양을 계속해야 합니다. 권장 기간(>5일)을 초과하여 근모세포를 유지하면 초기 합류 여부와 관계없이 자연 분화 위험이 증가하고 증식 능력이 감소합니다. 세포 형태의 정기적인 평가, 배양 일정 준수, 적시에 배지 교체는 생존력과 분화 가능성을 모두 유지하는 데 필수적입니다.
지속적인 섬유아세포 오염은 근육 박리 중 결합 조직과 지방 조직을 신중하게 제거하는 등 세심한 조직 처리를 통해 최소화할 수 있습니다. 프리플레이트 단계의 최적화는 특히 중요한데, 빠르게 부착하는 섬유아세포는 코팅되지 않은 표면에 부착되는 반면 SC는 현탁 상태로 유지됩니다. 콜라겐 코팅 배양 플레이트와 bFGF를 보충한 정의된 근모세포 증식 배지를 결합하여 선택적 근아세포 확장을 촉진하고 섬유아세포 성장을 제한합니다. 추가적인 정제는 MACS와 같은 음성 선택 전략을 통해 섬유아세포 개체군을 감소시킬 수 있습니다. 정기적인 현미경 모니터링은 조기 섬유아세포 과증식을 발견하고 적시에 개입할 수 있도록 필수적입니다.
요약하자면, 이 프로토콜은 순차적 정제, 최적화된 배양 조건, 그리고 적응 가능한 정제 옵션을 통합하여 1차 근모세포 분리의 재현성과 효율성을 향상시킵니다. 중요한 점은, 이 기체는 고농축 Pax7+ 세포를 신뢰성 있게 산출하며, 이는 SC의 생물학, 근형성 기여, 분화 역학의 통제된 연구에 추가로 활용될 수 있다는 것입니다.
장기간 직렬 확장에 최적화된 프로토콜이 세포 행동을 변화시키고 근생성 전위 및 융합 능력을 감소시킬 수 있는 것과 달리, 저희 방법은 견고한 근형성 정체성과 높은 융합 능력을 가진 세포를 보존하도록 의도적으로 설계되었습니다. 이러한 초점은 생리학적 관련성, 효율적인 근형성 분화, 그리고 근형성 및 재생 연구를 중심으로 한 실험에서 근형성 특성의 유지가 필요한 응용 분야에 유리합니다.
공개 사항
저자들은 이해 상충을 선언할 필요가 없습니다.
감사의 글
공초점 영상은 넨츠키 실험생물학 연구실 내 영상 핵심 시설인 조직 구조 및 기능 영상 연구소에서 수행되었으며, 폴란드 유로-바이오이미징 노드의 인프라 일부입니다.
이 작업은 폴란드 국립과학센터(2022/47/D/NZ3/02737 소나타 보조금, 릴랴 레카에게, 소나타 비스 보조금 2020/38/E/NZ4/00314 그제고시 수마라에게)과 과학고등교육부의 법정 자금으로 넨츠키 연구소에 지원받았습니다. 이 작업은 교육과학부 장관이 계약 번호 2022/WK/05(폴란드 유로-바이오이미징 노드 "첨단 광학 현미경 노드 폴란드")에 따라 자금을 지원한 프로젝트의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 0.25% 트립신-EDTA | 깁코 | 25200-056 | |
| 100 & 마이크로; M 세포 스트레이너 | VWR | 732-2759 | |
| 30 & 마이크로; M 스트레이너 | 밀텐이 바이오텍 | 130-041-407 | |
| 40 & 마이크로; M 세포 스트레이너 | VWR | 732-2757 | |
| 70 & 마이크로; M 세포 스트레이너 | VWR | 130-095-823 | |
| 아세트산 | 포크 | 568760114 | dH2O에 최종 농도가 20 mM로 용해되어 0.2 & 마이크로로 멸균; M 필터 |
| 알렉사 플루어 488, 당나귀 안티 래빗 | 인비트로젠 | A21206 | 블로킹 용액에 1:250 희석으로 용해(8.7절 참조) |
| 알렉사 플루어 488, 염소 쥐 방지 및 nbsp; | 앱캠 | AB150113 | 블로킹 용액에 1:250 희석으로 용해(8.7절 참조) |
| 염화암모늄(NH4Cl) | 바이오샵 | AMC303.500 | 최종 농도 50 mM까지 물에 녹입니다 |
| 안티페이드 마운팅 미디어 | 벡타쉴드 | H-2000-10 | |
| 항-PAX7 항체 | 앱캠 | AB187339 | 블로킹 용액에 1:100 희석 비율로 용해(8.7절 참조) |
| 기본 섬유아세포 성장 인자 | 코닝 | 354060 | 멸균된 dH2O에 용해되어 10 및 마이크로 농도로 사용; g/mL |
| 베타딘, 100 mg/mL | 에지스 제약회사 | ||
| 세포 배양 플레이트, 6웰, Cell+ | 사스테트 | 83.3902.300 | |
| 닭 배아 추출물 | MP 생의학 | 2850145 | |
| 콜라겐 I, 랫테일 | 깁코 | A10483-01 | 20 mM 아세트산에 용해됨; |
| 콜라게나제, 제1형 | 시그마 | C0130-500MG | DMEM에 용해되어 0.2 & 마이크로로 멸균; M 필터 |
| 해리 튜브 (gentleMACS C 튜브) | 밀텐이 바이오텍 | 130-093-237 | |
| 둘벡코의 변형 이글 미디엄, 고포도당 | 깁코 | 31966-021 | |
| EDTA | 인비트로젠 | AM9260G | |
| 팔콘 원뿔 원심분리관, 15 mL | 코닝 | 352096 | |
| 팔콘 원뿔 원심분리관, 50 mL | 코닝 | 352070 | |
| 태아 소 혈청 | 깁코 | 10082147 | |
| 말 혈청 | 깁코 | 26050088 | |
| 자기 라벨링 시약 (위성 셀 격리 키트) | 밀텐이 바이오텍 | 130-104-268 | |
| 자기 분리기 (MidiMACS 분리기) | 밀텐이 바이오텍 | 130-042-302 | |
| 마트리겔 | 코닝 | CLS356234 | DMEM에 10% 농도로 용해하고 nbsp; |
| PBS에서 파라포름알데히드 4% | 써모피셔 사이언티브 | J61899. AK | |
| 페니실린-스트렙토마이신 | 깁코 | 15140122 | |
| 인산 완충 식염수 | VWR | 392-0334 | |
| 분리 기둥 (LS 기둥) | 밀텐이 바이오텍 | 130-042-401 | |
| 골격근 미오신 항체, MHC | 산타크루즈 | SC-32732 | 블로킹 용액에 1:50 희석으로 용해(8.7절 참조) |
| TC-접시, 100 x 20 mm | 사스테트 | 83.3902 | |
| 조직 해리기 (GentleMACS 해리기) | 밀텐이 바이오텍 | 130-093-235 | |
| 트리톤 X-100 | 시그마-올드리치 | X100-1L |
참고문헌
- Yeh, C. -J., Sattler, K. M., Lepper, C. Molecular regulation of satellite cells via intercellular signaling. Gene. 858, 147172(2023).
- Gonzalez, M. L., Busse, N. I., Waits, C. M., Johnson, S. E. Satellite cells and their regulation in livestock. J Anim Sci. 98 (5), skaa081(2020).
- Mauro, A. Satellite cell of skeletal muscle fibers. J Biophys Biochem Cytol. 9 (2), 493-495 (1961).
- Yin, H., Price, F., Rudnicki, M. A. Satellite cells and the muscle stem cell niche. Physiol Rev. 93, 23-67 (2013).
- Kahn, R. E., Dayanidhi, S., Lacham-Kaplan, O., Hawley, J. A. Molecular clocks, satellite cells, and skeletal muscle regeneration. Am J Physiol Cell Physiol. 324 (1), C1332-C1340 (2023).
- Abreu, P., Mendes, S. V. D., Ceccatto, V. M., Hirabara, S. M. Satellite cell activation induced by aerobic muscle adaptation in response to endurance exercise. Life Sci. 170, 33-40 (2017).
- Dueweke, J. J., Awan, T. M., Mendias, C. L. Regeneration of skeletal muscle after eccentric injury. J Sport Rehabil. 26 (2), 171-179 (2017).
- Michele, D. E. Mechanisms of skeletal muscle repair and regeneration in health and disease. FEBS J. 289 (21), 6460-6462 (2022).
- Domingues-Faria, C., Vasson, M. -P., Goncalves-Mendes, N., Boirie, Y., Walrand, S. Skeletal muscle regeneration and impact of aging and nutrition. Ageing Res Rev. 26, 22-36 (2016).
- Tierney, M. T., Sacco, A. Satellite cell heterogeneity in skeletal muscle homeostasis. Trends Cell Biol. 26 (6), 434-444 (2016).
- Troy, A., et al. Coordination of satellite cell activation and self-renewal by Par-complex-dependent asymmetric activation of p38α/β MAPK. Cell Stem Cell. 11 (4), 541-553 (2012).
- Dumont, N. A., Wang, Y. X., Rudnicki, M. A. Intrinsic and extrinsic mechanisms regulating satellite cell function. Development. 142 (9), 1572-1581 (2015).
- Danoviz, M. E., Yablonka-Reuveni, Z. Skeletal muscle satellite cells: background and methods for isolation and analysis. Myogenesis. DiMario, J. X. 798, Humana Press. 21-52 (2012).
- Gharaibeh, B., et al. Isolation of a slowly adhering cell fraction containing stem cells from murine skeletal muscle by the preplate technique. Nat Protoc. 3 (9), 1501-1509 (2008).
- Benedetti, A., et al. A novel approach for the isolation and long-term expansion of pure satellite cells based on ice-cold treatment. Skelet Muscle. 11 (1), 7(2021).
- Yoshioka, K., et al. A modified preplating method for high-yield and high-purity muscle stem cell isolation. Front Cell Dev Biol. 8, 793(2020).
- Uezumi, A., Fukada, S., Yamamoto, N., Takeda, S., Tsuchida, K. Mesenchymal progenitors distinct from satellite cells contribute to ectopic fat formation. Nat Cell Biol. 12 (2), 143-152 (2010).
- Christov, C., et al. Muscle satellite cells and endothelial cells: close neighbors and privileged partners. Mol Biol Cell. 18 (4), 1397-1409 (2007).
- Elizalde, G., Munoz, A. Z., Almada, A. E. Protocol for the isolation of mouse muscle stem cells using fluorescence-activated cell sorting. STAR Protoc. 4 (4), 102656(2023).
- Pasut, A., Oleynik, P., Rudnicki, M. A. Isolation of muscle stem cells by fluorescence-activated cell sorting. Myogenesis. DiMario, X. 798, Humana Press. 53-64 (2012).
- Lee, J. D., Sinha, B. C., Larkin, L. M., Vandenburgh, H. H. Isolation and purification of satellite cells for skeletal muscle tissue engineering. J Regen Med. 3 (2), (2015).
- Llufrio, E. M., Wang, L., Naser, F. J., Patti, G. J. Sorting cells alters their redox state and cellular metabolome. Redox Biol. 16, 381-387 (2018).
- Cusmano, A. A., et al. Efficient isolation and ex vivo differentiation of murine satellite cells. Stem Cell. Turksen, K. 2939, Springer. 37-54 (2025).
- Park, Y. G., Moon, J. H., Kim, J. A. Comparative study of magnetic-activated cell sorting and preplating for myoblast purification. Yonsei Med J. 47 (2), 179-186 (2006).
- Park, Y. G., Baek, A., Kim, S. Myoblast purifying by magnetic-activated cell sorting. Methods Cell Biol. 112, Elsevier. 439-447 (2012).
- Lee, H., Han, N. R., Kim, S. J., Yun, J. I., Lee, S. T. Development of a high-yield isolation protocol for active muscle satellite cells. Int J Stem Cells. 15 (3), 283-290 (2022).
- Cui, Y., et al. An easy and practical method for isolation, culture and identification of mouse skeletal muscle satellite cells. Int J Clin Exp Med. 9, 19424-19431 (2016).
- Ding, S., et al. Characterization and isolation of highly purified porcine satellite cells. Cell Death Discov. 3, 17003(2017).
- Pawlikowski, B., Vogler, T. O., Gadek, K., Olwin, B. B. Regulation of skeletal muscle stem cells by fibroblast growth factors. Dev Dyn. 246 (5), 359-367 (2017).
- Shahini, A., et al. Efficient and high-yield isolation of myoblasts from skeletal muscle. Stem Cell Res. 30, 122-129 (2018).
- Lee, D. H., Kwak, K. B., Park, Y. C., Chung, C. H., Ha, D. B. Purification and characterization of myoblast fusion inhibitor. Mol Cells. 1, 177-182 (1991).
- Moulin, V., et al. Fetal and adult human skin fibroblasts display intrinsic differences in contractile capacity. J Cell Physiol. 188 (2), 211-222 (2001).
- Wilson, C. G., et al. Age-dependent expression of collagen receptors in rat cardiac fibroblasts. Microsc Microanal. 17 (4), 555-562 (2011).
- Kohen, N. T., Little, L. E., Healy, K. E. Characterization of Matrigel interfaces during defined hESC culture. Biointerphases. 4 (4), 69-79 (2009).
- Wang, Z., et al. In vitro culture system supporting robust expansion of myogenic progenitors. BioRes Open Access. 3 (3), 79-87 (2014).
- Péault, B., et al. Stem and progenitor cells in skeletal muscle development and therapy. Mol Ther. 15 (5), 867-877 (2007).
- Le Grand, F., Rudnicki, M. A. Skeletal muscle satellite cells and adult myogenesis. Curr Opin Cell Biol. 19 (6), 628-633 (2007).
- Rando, T. A., Blau, H. M. Primary mouse myoblast purification and transplantation. J Cell Biol. 125 (6), 1275-1287 (1994).
- Hindi, L., McMillan, J., Afroze, D., Hindi, S., Kumar, A. Isolation, culturing, and differentiation of primary myoblasts. Bio Protoc. 7 (9), (2017).
재인쇄 및 허가
