사춘기 이전 뇌에서 바이러스 벡터를 발현하는 능력은 뇌 발달의 세포 및 회로 메커니즘 연구에 근본적입니다. 여기서는 영아 쥐에서 출생후 11일 또는 12일(P11-P12)에 입체흡입 바이러스 수술을 수행하는 프로토콜을 설명하고, 수술 후 관리 지침을 제공합니다.
이 논문에서
요약
초록
출생 후 발달, 세포, 회로 과정을 이해하는 것은 뇌 발달의 복잡성과 그것이 행동 및 사회적 성숙에 미치는 영향을 명확히 하는 데 매우 중요합니다. 영아에서 성인으로의 전환은 시냅스 가지치기와 수초화 등 인지 능력, 정서 조절, 사회적 상호작용에 기본적인 신경생물학적 변화를 포함합니다. 사춘기 이전 쥐의 뇌 발달을 연구함으로써 연구자들은 건강한 뇌 성장을 지원하는 중요한 시기를 식별하고 신경발달 장애에 대한 시기적절한 개입을 확립할 수 있습니다. 뇌 기능을 정밀하게 해부하기 위해 입체정합수술은 신경과학 연구에서 중요한 기법으로, 관심 있는 뇌 부위를 정확히 정확히 정확히 하고 바이러스 에이전트를 전달할 수 있게 해왔습니다. 성체 마우스에서 입체정합 수술이 신경생물학 연구실에서 널리 시행되고 있음에도 불구하고, 사춘기 이전 쥐에서 입체정위수술을 시행하는 지침은 매우 제한적이며, 영아가 암컷과 형제끼에게 성공적으로 재도입될 수 있도록 하는 중요한 수술 후 관리도 마찬가지입니다. 여기서는 영아(P11-P12) 마우스에서의 입체주혈 수술 및 바이러스 주사 프로토콜을 설명하며, 마취 및 진통 전달, 수술 후 관리에 대한 고려사항, 그리고 성인 입체주행수술과의 차이점을 강조합니다. 이 프로토콜은 원하는 목표 좌표를 업데이트하여 관심 있는 뇌 영역에 구현할 수 있으며, 유아기(P15-P30)와 같은 출생 후 발달 후반부의 뇌 표적화에 맞게 수정될 수 있습니다. 전반적으로 이 프로토콜은 출생 후 뇌 발달과 기능 연구의 입문점을 제공합니다.
서론
영아기와 청소년기는 뇌 발달에 중요한 출생 후 시기로, 척수형성, 시냅스 생성, 시냅스 가지치기를 특징으로 하여 회로 정교화를 촉진합니다 1,2. 교미, 공격성, 사회적 놀이 등 사회적 행동의 출현은 사춘기 전기(P28-40)3에 발생하며, 순환하는 스테로이드 호르몬에 의해 엄격히 조절됩니다. 성인 사회 행동의 세포 기초를 해부하는 도구가 크게 발전했음에도 불구하고, 출생 후 발달 전반에 걸친 사회적 행동의 출현에 기저된 신경 메커니즘에 대해서는 거의 알려진 바가 없습니다. 사회 회로 발달에 대한 이해 부족의 원인으로는 1) 영아 쥐 수술 시 발생하는 어려움, 예를 들어 어린 마우스를 위해 설치되지 않은 입체 흡입 장치 포함, 2) 수술 중 진통과 마취의 안전성 및 효과 균형6, 3) 수술 후 댐에 의한 영아 수용 문제 등이 있습니다. 더욱이, 자궁 내 전기천공7, 신생아 마우스(P0-P10) 뇌내 뇌 시점에 유전적 구조물을 전달하는 현재 방법들은 정확한 표적이 부족하고 배아 또는 P0 표적에 집중하기 때문에 이상적이지 않습니다.
여기서는 영아 마우스(P11-P12)에서 입체정위수술과 수술 후 관리를 위한 간단한 프로토콜을 제공하여 암컷과 새끼 생쥐와의 성공적인 재통합을 지원합니다. 이 프로토콜은 성인 마우스10용 현재 입체 접근법을 활용하며, 입체 배치에 약간의 변경만 필요합니다. 또한 영아 쥐의 수술 후 관리와 성공적인 마취 및 진통에 관한 상세한 안내도 제공합니다. 우리는 P11-12 시점을 수술로 선택했는데, 이는 바이러스 발현에 2주간의 잠복 기간이 있기 때문에, P24부터 생체 내에서 테스트할 수 있기 때문이며, 사춘기 전(P28-40)3 이전입니다. 하지만 이 프로토콜은 이후 시점의 입체형 수술에도 사용할 수 있습니다. 우리는 다양한 사회적 행동에서 역할을 하는 편도체 하위 구분인 발달 중 편도체(MeA)에 초점을 맞추고 있습니다11,12. 우리는 Foxp2를 발현하는 MeA 하위 집단인 포크헤드 박스 전사 인자를 구체적으로 조사하는데, 이 세포들이 수컷 마우스의 출생 후 발달 전사 과정에서 남성 감각 신호를 생체 내에서 처리하는 데 독특하게 하드와이어되어 있음을 밝혀냈기 때문입니다14. 또한, MeAFoxp2 아집단은 수컷에서 영역 공격성을 양방향으로 조절하는 데필요합니다. 전반적으로 현재 프로토콜은 신경과학자들이 바이러스 에이전트를 출생 후 뇌 발달의 주요 단계에 정밀하게 전달하여 청소년기와 성인기에 걸친 사회적 및 친밀 행동의 세포 및 회로 기반을 연구할 수 있게 합니다.
프로토콜
이 절차는 NIEHS 동물 관리 및 사용 위원회의 승인을 받았으며, 미국 국립보건원(NIH)의 동물 사용 및 관리 지침에 부합했습니다. 장갑, 마스크, 일회용 가운, 헤어넷, 신발 커버 등 적절한 개인 보호 장비가 수술 내내, 그리고 동물이 있을 때도 사용되었습니다.
1. 마우스 입체이동 장치 준비 및 조정 (그림 1)
- 영아 쥐를 위한 입체 타격 부속품으로 입체 이동 장치를 준비하라. 여기에는 비랩처 귀 바 한 쌍, 수정된 가스 마취 헤드 홀더, P12 영아용 구개바가 포함된다.
- 모든 수술 도구는 유리 구슬 멸균기(250°C, 작은 도구는 30초, 큰 도구는 1분)로 소독하세요. 멸균 후에는 멸균 도구를 멸균 커튼 위에 올려놓으세요. 멸균 도구는 수술 내내 무균 필드에 그대로 있어야 합니다.
- 입체 흡입 장비 위에 ~37 °C 온도의 온열 패드 위에 또 다른 멸균 드레이프를 덮어 수술 내내 아기를 조절된 온도로 유지하세요. 수술 내내 온열 패드 온도를 모니터링하세요.
2. 마우스 수술 준비, 입체 배치, 평탄화 및 두개술
- 적절한 진통제 용량을 제공하기 위해 체중을 측정하세요.
- 마우스를 산소 유량 0.9 L/min의 3% 이소플루란 충전 유도 챔버에 넣습니다. 마우스의 호흡이 ~1 호흡/초로 감소했는지, 그리고 페달 철수 반사를 테스트한 후 반응이 없는지 확인하세요. 이소플루란/산소 흐름을 입체적 틀로 전환하고 이소플루란 농도를 2%로 낮춥니다.
참고: 충분한 마취는 수술 중 5분마다 페달 철수 반사에 대한 반응이 없어야 합니다. 수술 내내 쥐의 호흡 패턴을 주의 깊게 관찰하세요. 수술 중 가장 낮은 비율로 이소플루란 농도를 조절하여 심마취를 유지하고 마취 과다복용을 방지하세요. - 마우스를 수정된 입체 정체 장치에 장착하고, 아기 쥐용 입체 택시 액세서리가 장착되어 있습니다. 쥐 머리 옆에 구멍 없는 이어바를 놓고, 이어바 자를 입체 택시 프레임 자와 양쪽이 같은 거리로 정렬하도록 합니다. P11 영아의 경우, 입체 조절 자를 5mm로 설정하세요.
참고: P11 영아는 보통 눈을 뜨지 않아 윤활제가 필요하지 않습니다. P12쯤에는 일부 영아들이 눈을 뜨게 됩니다. 영아의 눈이 떠져 있을 때는 수술 내내 필요에 따라 안과 연고를 바르고 다시 바르는 것이 좋습니다. - 1mL 주사기와 27G 바늘을 사용해 피하(s.c.) 경로로 멜록시캄을 5 mg/kg 주입하세요.
- 0.5% 부피바카인(5 mg/mL)을 식염수와 함께 희석하여 0.5 mg/mL(1:10)로 만들고, 머리 피부 아래에 S.C.를 주사합니다(예: 5g 영아의 경우 0.05 mL).
참고: 2.6단계부터 3.15단계까지는 멸균 장갑을 착용하고 수행해야 합니다. - 머리 중앙선을 따라 작은 가위로 1.5cm 절개를 하세요.
- 멸균된 면봉으로 베타딘과 함께 두개골 표면의 연조직을 조심스럽게 제거하세요.
- 당긴 유리 모세관(~0.8mm 길이)을 유리 피펫 홀더에 넣습니다. 홀더를 수직 입체 팔에 장착하세요.
참고: 2.9단계부터 3.10단계까지는 해부 현미경 아래에서 수행해야 합니다. - 두개골 표면의 전후각 평탄화:
- 모세혈관을 Chan 등15에 설명한 대로 등쪽 부동(RCS) 합류점(그림 2)으로 이동시킵니다.
- 2배 확대 현미경 아래에서, 모세혈관이 RCS 지점의 두개골에 약간 닿을 때 X(내측-외측), Y(전후), Z(등쪽-복측) 좌표를 0으로 설정하는데, 이는 입체주행 기기의 디지털 디스플레이 콘솔을 사용한다.
- 모세혈관을 람다(Y = -7.30 mm)로 이동시키고, 모세혈관을 두개골에 살짝 닿도록 낮춥니다(그림 2).
- Z 좌표 값을 확인하고 입체 탐지 장비에서 전후각 수평을 맞추어 머리의 기울기(tilt angle)를 변경합니다. 2.9.1부터 2.9.3까지 단계를 반복하여 RCS와 람다 간 Z좌표 값 차이가 <0.02 mm가 될 때까지 반복합니다.
- 두개골 표면의 내측-외측 각도를 평평하게 맞춥니다:
- 모세혈관을 RCS 지점으로 옮기세요.
- 모세혈관이 두개골에 약간 닿을 때 X(내측-외측)와 Y(전후측) 좌표를 0으로 합니다.
- 후배측 MeA(MeApd) 좌표를 사용해 머리를 평평하게 맞추려면, 모세혈관이 두개골에 약간 닿을 때 모세혈관을 X = +2.50 mm, Y = -4.20 mm, 그리고 Z(등쪽-복측)로 0으로 이동시킵니다.
- 모세혈관을 X = -2.50 mm, Y = -4.20 mm 반대편 반구로 이동시키고, 모세혈관을 약간 낮춰 두개골에 닿게 합니다.
- Z 값을 확인하고 입체 탐지 장비의 내측-측횡축을 조정해 머리의 기울기 각도를 변경하세요. 2.10.1부터 2.10.4까지 반복하여 좌우 반구 Z 값 차이가 <0.03 mm가 될 때까지 반복합니다.
- 모세관 홀더를 제거하고 #75 드릴 비트가 달린 마이크로 드릴을 수직 입체 밀 홀더에 장착하세요.
- 드릴 비트 팁을 RCS 지점 위에 올리고, X(내측-외측)와 Y(전후) 좌표를 0으로 설정하세요. X = ±2.03 mm, Y = -4.20 mm로 이동하여 P11 영아의 MeApd 대상을 목표로 합니다.
- 두개골을 통해 0.5mm 직경의 두개골 절개술을 뚫어.
- 섬세한 작업 물티슈와 면봉을 사용해 멸균 생리식염수로 두개골 표면을 조심스럽게 닦으세요.
참고: 두개골 표면을 수분 유지하기 위해 멸균 식염수를 정기적으로 사용하세요.
3. 바이러스 주사
- 마이크로필 플렉시블 바늘을 사용해 미네랄 오일로 새 모세혈관을 채우세요.
- 모세관을 나노리터 인젝터에 부착하고 조여.
- 마이크로 드릴을 제거하고 나노리터 인젝터를 수직 입체 유도 암에 장착하세요.
- 수술에 필요한 바이러스 양의 최소 두 배(여기서는 400 nL)를 10 nL/s 속도로 빼세요.
참고: 관심 있는 AAV 바이러스는 기관 승인 후 바이러스 주입에 사용할 수 있습니다. 이 프로토콜에서는 AAV2-DIO-mCherry(BSL-1, 2.5 E+13 vg/mL, 3 μl/튜브, -80 °C에 보관 후 수술을 위해 얼음으로 옮긴 )을 사용했습니다. - 모세관을 RCS 지점으로 옮기고 X와 Y 좌표를 0으로 설정하세요.
- 모세혈관을 관심 있는 뇌 목표 부위, 여기서는 MeApd(좌표: X = ±2.03 mm, Y = -4.20 mm, Z= -5.08 mm RCS로 이동).
- 모세혈관을 두개골 표면까지 낮춘 후 Z 좌표를 0으로 설정하세요.
- 모세혈관을 원하는 깊이로 낮추고 모세혈관을 뇌 밖으로 빼내어 경로를 만듭니다.
- 모세혈관이 막히지 않도록 ~8 nL 바이러스를 주입한 후 뇌로 다시 주입하세요. 막혔다면 멸균 식염수를 작업 와이퍼에 넣고 모세혈관 옆과 바닥을 부드럽게 닦아 막힘을 제거하세요.
- 모세혈관을 원하는 깊이까지 한 번 더 낮추고, 원하는 바이러스량(이 경우 150 nL 바이러스)을 분당 20 nL의 속도로 주입합니다.
- 끝나면 5분간 기다렸다가 천천히 모세혈관을 빼내세요.
- 필요 시 3.4-3.11 단계를 반복하여 반대쪽 반구에 바이러스를 주입합니다.
- 나노리터 인젝터에서 모세혈관을 제거하세요. 사용한 모세혈관과 바이러스 튜브는 50mL 원뿔형 튜브에 10% 표백제를 넣어 버렸습니다.
참고: 각 실험실은 기관 생물학 및 생물안전 부서의 모든 폐기물 처리, 유출 관리, 생물안전 준수 지침을 반드시 준수해야 합니다. - 흡수성 7-0 봉합사로 피부를 꿰매세요. 봉합할 때 머리카락을 들어 올려서 봉합사가 가려지도록 하세요.
참고: 보통 3-4봉합이면 충분합니다. 저희 경우에는 7-0 봉합사가 아기가 다시 집 케이지로 돌아갔을 때 댐이 봉합사를 찢는 것을 막기 위해 가장 효과적입니다. - 봉합 부위를 3% 과산화수소로 닦고, 멸균 면봉으로 생리식염수를 닦아주세요.
참고: 수술은 주입된 바이러스 수에 따라 보통 1시간에서 2시간 정도 지속됩니다. 바이러스는 보통 완전히 발현되기까지 최소 2주가 필요합니다.
4. 수술 후 관리
- 아기를 입체성 프레임에서 꺼내 깨끗한 케이지에 넣고, 온열 패드 위에 올려놓으세요. 탈수를 예방하기 위해 멸균 식염수 주사가 권장됩니다.
- 아기가 움직일 때까지 계속 관찰하세요.
- 아기가 새장 안을 움직일 수 있게 되면, 댐을 새 깨끗한 우리에 ~2분 정도 넣어주세요.
- 아기를 원래 집 우리에 가두고, 새끼들과 함께 두세요. 모든 새끼를 둥지와 침구 재료로 집 우리에서 조심스럽게 닦아낸 후 다시 둥지 안에 넣으세요. 댐을 다시 케이지에 넣으세요.
- 댐과 새끼들을 면밀히 관찰하세요. 댐이 둥지로 돌아와 수술용 새끼를 손단질하지만 봉합사는 당기지 않는지 확인하세요.
- 1시간이 지나도 암컷이 수술용 아기를 받아들이지 않는다면, 임시 보호용 암컷을 사용하세요. 이미 새끼를 받아들이는 암컷이 있다면, 이후 새끼 배지에 이 암컷을 사용하세요(첫 배 유아를 받은 후 수용률이 100%입니다).
- 수술 후 24시간 후 절개 부위를 확인하고 멜록시캄(5 mg/kg, S.C.)을 투여합니다.
- 수술 후 치료가 성공적으로 끝난 후에는 수술용 마우스를 엄마와 새끼들과 함께 두고 P21에 이유할 때까지 두세요. 수술 후 10-14일 이내에 보이는 봉합사는 모두 제거하세요.
참고: 수술용 마우스는 형제곱 대조군과 비교하여 음식 섭취량, 체중, 운동 행동에서 유의미한 차이가 예상되지 않습니다.
영아는 수술 후 최소 2일간 매일 모니터링을 받고, 그 후에는 주 2회 이상 모니터링됩니다. 인도적 평가 기준: 수술 후 2시간 이내에 보행이 가능하지 않은 영아는 인도적으로 안락사됩니다. 수술 후 아기가 체중 감소 및/또는 움직임이 보이면 인도적으로 안락사됩니다.
결과
영아 수술을 위한 이소플루란, 부피바카인, 멜록시캄 병용 치료의 안전성
영아 쥐에서 마취 및 진통제를 사용하는 안전성은 아직 명확하지 않습니다6. 따라서 우리는 마취와 진통을 병행하여 영아 쥐에서 생존율을 결정하는 실험을 수행했습니다. P11 상태의 영아 쥐(체중 = 6.09 ± 0.90g, 최소 체중은 3.9g; n=13)를 유도 마취실에 넣어 초기 마취를 시행했으며, 3% 이소플루란을 0.9리터/분의 산소에 투여하였습니다. 영아가 마취되고 발 철수 반사에 반응하지 않자, 입체탐색기로 옮겨졌고, 이소플루란 마취는 0.9 L/min 산소와 온열 패드(41.23 ± 2.28 °C)에서 1.5-2% 이소플루란으로 감원되었습니다. 영아를 입체주행 장치에 삽입한 후, 진통제는 보갑 간(멜록시캄 5 mg/kg)과 두부 피부 아래에 국소 마취(0.05 mg/mL 부피바카인)를 투여하였다. 30분 후, 우리는 아기들을 입체정지에서 꺼내 깨끗한 우리에 넣었습니다. 진통제 투여 후 30분 후 100% 생존율(13/13)을 관찰했습니다. 더불어, 수술 후 24시간과 72시간이 지난 후, 그리고 성인이 된 후에도 합병증은 관찰되지 않았습니다. 이 결과들은 국소 마취와 비스테로이드성 항염증제를 병행하면 영아 쥐에게 안전하고 통증과 고통을 줄여준다는 것을 보여줍니다.
정밀하고 정확한 바이러스를 MeA로 전달합니다
영아 입체정체수술 중 바이러스 전달의 정확성과 정밀도를 확인하기 위해, 우리는 AAV2-hSyn-DIO-mCherry를 P11 부근의 Foxp2cre+/- 수컷 마우스의 MeApd에 양측적으로 전달하였다(그림 3A). 그 후 쥐는 P21에 이유식을 시켰습니다. P45에서는 우리 그룹14 와 기타그룹 16 이 이전에 설명한 대로 마우스 뇌를 면역조직화학 및 영상 분석을 위해 수집되었습니다(그림 3B, C). 쥐들은 마취 후 1× PBS 30mL를 투여한 뒤, 4% PFA 30mL를 분당 10mL로 투여했습니다. 뇌는 4% PFA에 4°C에서 하룻밤 고정되고, 30% 자당에 냉동보호를 한 뒤 O.C.T.에 삽입한 뒤, 50 μm 절개를 냉동체에 올려 절개했습니다. 세 번째 절편마다 앞서 설명한 면역조직화학을 위해 처리되었습니다. 자유 부유 절편은 10% 정상 당나귀 혈청에 차단하고, 1차 항체와 함께 하룻밤 배양한 뒤, 세척 후 2차 항체와 함께 4시간 배양한 뒤 다시 세척한 뒤 DAPI 함유 배지를 장착한 후 커버슬립하였습니다. 뇌 절편은 Foxp2 항체와 Alexa Fluor 488 AffiniPure Donkey Anti-Rabbit IgG(H+L)로 염색하였습니다.
표적 효율을 확인하기 위해 MeA 내 mCherry+ 와 Foxp2+ 세포의 공동 발현을 결정했고, 집단 간 90.2% ± 2.1 세포가 겹치는 것을 관찰하여 mCherry 발현이 크레 의존적으로 Foxp2+ 세포에 제한됨을 나타냅니다(그림 3D). 이 결과는 이 프로토콜을 이용한 바이러스 주사의 높은 효율성을 보여줍니다. 더 나아가, 우리는 모든 영역에서 mCherry 전체 비율에 비해 MeApd 내 mCherry+ 세포의 비율을 분석하여 바이러스 주사의 정확도를 조사했습니다. mCherry+ 세포의 93.7%± 1.4%가 MeApd 내에 위치함을 관찰했으며, 이는 바이러스의 공간적 발현이 관심 영역 내에 제한됨을 나타냅니다(그림 3E).

그림 1: 영아 입체주격 수술 설치 (A) 입체 흡입 장비. (B) 파열 방지 귀 봉. (C) P12 영아용 가스 마취 헤드홀더 및 구개봉. (D) 구슬 살균기. (E) 워밍 패드 컨트롤러. (여성) 입체주성 팔. (G) 나노리터 인젝터. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.

그림 2: P11 쥐 두개골의 주요 랜드마크들. (A) 영아 두개골의 주요 랜드마크 도식. (B) 영아의 머리는 파열 방지 귀걸이, 개조된 가스 헤드 홀더, P12 마우스용 펠릿 바 등 특수 입체 주행 액세서리로 고정됩니다. 약어: RCS = 부비동의 주척동 합류, SSS = 상시상부동, RRV = 후근-비정맥, SOS = 상후각 부동. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
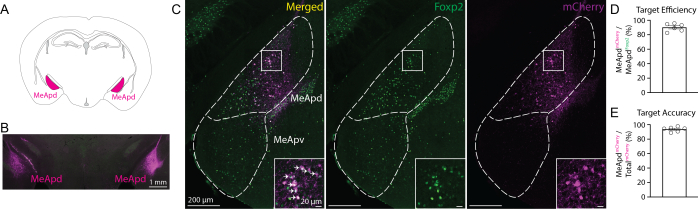
그림 3: 영아 입체성 수술 후 MeApd 내 표적 바이러스 발현. (A) MeApd 도식(관상 시점). (B) Foxp2항체(녹색)와 mCherry+ 세포(마젠타)의 양측 발현을 대표하는 조직학 이미지. (C) 합병된 채널과 개별 채널 모두에서 MeA의 확대 뷰. 흰색 화살표는 Foxp2 항체와 mCherry+ 세포가 공동 표지됨을 나타냅니다. (D) 주입 효율. (E) 주입 정확도. (D,E) n=3마리의 쥐, 좌우반구/마우스. 약어: MeApd = 후외측 내측편도체; MeApv = 후복측 내측 편도체. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
| 방법 | 장점 | 단점 | 참고문헌 |
| 자궁 내 전기천공 | 더 큰 플라스미드 트랜스펙션 | 정확한 타겟팅 부족, 독성 부족, 고도의 숙련도가 필요합니다 | 왕 외, 몰 생물학 방법( 2013). |
| 뇌실내바이러스 주사 | 빠르고, 쉽고, 경제적이에요 | 정확한 표적 설정 부족, 영아 살해 위험 | 김 외, J Vis Exp. (2014). |
| P0에서의 입체 유도 미세주사 | 정확한 표적, 모성 거부 위험 감소 | 바이러스에 의한 세포 독성, 사춘기 이후 시기 연구에는 적합하지 않습니다 | 첸 외, J Vis Exp. (2018). |
| 재조합 계통 유전적 교차 | 비침습적 | 정확한 조준 부족, 비용도 많이 들고, | Robertson 외, 내셔널 신경과학. (2013). |
표 1: 설치류의 세포 및 회로 배아 및 출생 후 발달 연구에 사용된 이전 방법들의 요약.
토론
출생 후 발달 전반에 걸친 사회적 행동의 신경 메커니즘을 연구하는 것은 그 출현뿐만 아니라 환경적 요인이나 신경발달 장애에 의해 어떻게 이 메커니즘이 교란될 수 있는지 이해하는 데 필수적입니다. 본 연구는 P11-12 영아 마우스의 뇌에 바이러스를 정확하고 효율적으로 전달하기 위한 입체 수술 프로토콜을 설명합니다. 따라서 이 프로토콜은 바이러스 전략을 사용하여 사춘기 전후의 분자적으로 정의된 신경 하위 집단을 조작, 기록, 회로 연구할 수 있게 합니다. 우리는 수술 전후 수정과 관리, 그리고 영아 쥐가 잘 견딜 수 있는 안전한 마취 및 진통제 조합을 강조합니다.
영아 입체흡입 수술의 핵심이자 도전 과제 중 하나는 아기를 암컷과 새끼들과 함께 집 케이지로 성공적으로 다시 도입하는 것입니다. 새장에 다시 도입할 때 적절한 영아 관리를 보장하기 위해, 암컷은 과도한 그루밍 없이 아기를 회수하고 그루밍해야 하며, 방치의 징후가 있으면 면밀히 관찰해야 합니다. 영아의 절개와 봉합으로 인해 댐이 머리 부위를 과도하게 그루밍하여 봉합사가 찢어지고 제거될 수 있습니다. 이는 해로울 수 있으므로 수술 후 댐의 영아에 대한 행동을 관찰하는 것이 생존을 보장하는 데 매우 중요합니다. 수술 후 영아의 댐 수용을 높이기 위해 봉합 후 과산화수소와 식염수를 사용해 피부와 털에 남아 있는 혈액 잔여물을 제거하고, 성인보다 얇은 봉합사(7-0)를 사용할 것을 권장합니다(5-0). 이 두 가지 전략 덕분에 암컷은 수술 후 유아 쥐를 수용하게 되었습니다.
또한, 본 연구는 영아 수술에서 마취 및 진통제의 안전한 사용에 관한 지침을 제공합니다. 이는 신생아와 영생쥐가 성인만큼 진통과 마취 용량을 견디지 못해 호흡기 및 심장 부작용을 초래할 수 있기 때문에 매우 중요합니다. 우리는 경구 마취인 이소플루란과 멜록시캄과 부피바카인 진통의 조합을 피하(구두내, 피부 아래) 투여가 영아들에게 잘 내약되어 장기 생존에 기여함을 관찰했습니다. 더불어, 영아 마우스에서 입체적 탐색 수술 절차가 수술 후 2주 후 어린 마우스에서 동종에 대한 조사 시간을 비슷하게 보였음을 보여주었으며, 이는 수술을 받지 않은 연령 일치 대조군과 비교했을 것입니다14. 따라서 이 결과는 영아 쥐에서 수술 후 충분한 회복과 명백한 운동 결손이 없음을 나타냅니다. 참고로, 수술 내내 혈중 산소 농도는 측정하지 않았습니다. 저산소증17을 예방하기 위해 혈중 산소 수치는 맥박 산소 측정기로 모니터링해야 합니다.
이 프로토콜의 또 다른 중요한 요소는 시상 정중선15의 람다와 RCS를 기반으로 한 입체 배치 좌표계의 사용입니다. RCS는 시상동 정중선을 따라 상시상동과 상후각 동이 접합하는 지점으로 정의되는 랜드마크입니다. 이 지형은 머리의 전반적 정렬 후 다른 등쪽 지형에 비해 일관되게 낮은 위치 변동성을 보인 것으로 나타났습니다. 이는 RCS/람다 간 분리 거리가 증가하여 동물 간 수평 각도15의 안정성과 재현성을 높이기 때문입니다.
기존의 신경 발달 연구 방법은 배아 및 P0 시점의 바이러스 전략, 또는 관심 세포의 운명을 지도하는 유전적 교배에 초점을 맞추어 왔습니다(표 1). 자궁 내 전기천공술이나 뇌실내 바이러스 주사와 같은 기술은 정확한 표적 설정이 부족합니다. P018에 표적 바이러스 주입을 수행하면, 관심 영역에 정밀하게 바이러스 구조물을 주입함으로써 이 문제를 극복합니다. 하지만 바이러스 구조체는 몇 주 후 세포독성을 발휘하여 세포 사멸로 이어질 수 있습니다. 따라서 신생아의 뇌에 바이러스 구조물을 주입하여 성인기까지 지속할 수 있는 사춘기 종기 연구를 수행하는 것은 이상적이지 않을 수 있습니다. 따라서 출생 후 1주 반 후에 바이러스 주사를 시행하는 우리의 접근법은 사춘기 중 세포 독성 위험을 줄여줍니다.
우리의 접근법이 가진 장점에도 불구하고, 몇 가지 고려해야 할 점이 남아 있습니다. 첫째, 영아 쥐에서 사용하는 뇌 좌표를 성인 쥐와 비교해 수정해야 합니다. 예를 들어, P11 영아 쥐에서 MeApd를 목표로 하는 좌표는 다음과 같습니다: X= +2.03 mm, Y= -4.20 mm, Z = -5.08 mm; 성인의 좌표는 X= +2.15 mm, Y= -5.00 mm, Z= -5.10 mm입니다. 안타깝게도 사춘기 이전 마우스에 대한 뇌 지도집 참고문헌은 성체 쥐보다 적습니다(Allen Mouse Brain Atlas, mouse.brain-map.org 및 atlas.brain-map.org)20,21. 따라서 MeA 외 다른 뇌 영역에서도 올바른 바이러스 표적화를 성공적으로 달성하려면 연구자들은 좌표에 대한 정확한 추정치를 얻고 좌표 검사를 수행해야 합니다. 둘째, AAV의 잠복 기간을 고려해야 합니다. 생체 내 AAV 발현의 최적 잠복 기간은 최소 2-3주입니다. 우리 프로토콜에서는 영아 마우스에서 입체성 수술이 P11에 시행되므로, 연구자들은 최적의 AAV 잠복 기간 이후인 P25부터 수술 후 마우스 검사를 시작할 수 있습니다.
전반적으로 이 프로토콜은 바이러스 벡터를 사용하여 영아 마우스에서 관심 있는 뇌 영역을 고정밀도로 표적으로 삼을 수 있도록 연구자들이 상세한 지침을 제공합니다. 이 방법은 매우 유연하여 매우 유리합니다: 상업용 또는 맞춤형 AAV 구조물도 주입할 수 있습니다. 따라서 관심 있는 세포 아집단과 그 해부학적 회로, 신경 역학, 세포 역할을 사춘기 전후의 중요한 시기에 연구할 수 있게 해줍니다. 또한, 이 방법은 여기서 보듯 편도체뿐만 아니라 시상하부와 피질 영역과 같은 다른 피질 하부 구조도 표적으로 삼는 데 성공적입니다.
공개 사항
저자들은 이해 상충을 신고할 필요가 없습니다.
감사의 글
설치류 수술의 마취 및 진통에 관한 귀중한 논의를 해주신 국립환경보건과학연구소(NIEHS/NIH) 비교의학 분과(CMB)의 Andrew Gorman 박사, Donna Webb 박사, David Goulding에게 감사드립니다. 또한 NIEHS의 모든 CMB 회원들이 동물 대상자들을 최대한의 배려해 주신 분들과 신경행동회로 그룹 모든 회원들께 감사드립니다. 이 연구는 국립보건원(NIEHS/NIH) 산하 국립환경보건과학연구소(ZIA ES103403) (J.E.L.)의 내부 연구 프로그램의 지원을 받았습니다. NIH 저자들의 기여는 미국 정부의 저작물로 간주됩니다. 이 논문에서 제시된 발견과 결론은 저자들의 것이며, 반드시 NIH나 미국 보건복지부의 견해를 반영하지는 않습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| #75 드릴 비트 | 드릴 비트 시티 | 10WS75-850FL | |
| 27G 바늘 | 코베트루스 | 60757 | |
| 3% 과산화수소 | 백조 | NDC 0809-0871-43 | |
| 32% 파라포름알데히드 | 전자현미경 과학 | 15714 | |
| AAV2-hSyn-DIO-m체리 | 애드진 | 50459-AAV2 | |
| Alexa Fluor 488 AffiniPure Donkey (1:1000) 항토끼 IgG (H+L) | 잭슨 면역 연구 | 711-545-152 | |
| 분석 균형 | 사르토리우스 | 1102--15 | |
| 베타딘 | 아브리오 약국 | NDC 67618-155-15 | |
| 부피바케인 | 호스피라 | NDC 0409-1163-18 | |
| 크라이오스탯 | 라이카 | CM1950 | |
| 해부 현미경 | 자이스 | 2149-629 | |
| 눈 연고 | 데크라 수의원 | 푸랄루베 | |
| DAPI를 이용한 플루오로마운트 마운팅 매체 | 써모피셔 사이언티브 | 00-4959-52 | |
| Foxp2 항체 (1:1000) | 아틀라스 항체/코스모 바이오 | HPA000382 | |
| Foxp2cre+/- 마우스 | 잭슨 연구소 | 30541 | |
| P12 강아지를 위한 가스 마취 헤드 홀더 및 입천장 바 | 데이비드 코프 인스트루먼츠 | 1934-C | |
| 유리 구슬 살균기 | 피셔 사이언티브 | 10-000-632 | |
| 유리 모세관 | 월드 프리시전 인스트루먼트 | 504949 | |
| 유리 피펫 홀더 | 데이비드 코프 인스트루먼츠 | 1975-1.2-A | |
| 히트패드 | 켄트 사이언티픽 법인 | RT-0520 | |
| 이소플루란 | 피라말 중환자 치료 | NDC 66794-017-10 | |
| 멜록시캄 | 피베탈 수의용 공급 | NDC 46066-937-13 | |
| 마이크로 드릴 | 데이비드 코프 인스트루먼츠 | 모델 1911 드릴 | |
| 마이크로필 플렉스 바늘 | 월드 프리시전 인스트루먼트 | MF28G67-5 | |
| 현미경 슬라이드 | 써모피셔 사이언티브 | 12-550-15 | |
| 광유 | 시그마-올드리치 | M5904-500ML | |
| 나노리터 인젝터 | 월드 프리시전 인스트루먼트 | NANOLITER2020 | |
| 비흡수성 봉합사 | AD 외과 | S-N718SP13 | |
| 비랩처 귀띠 | 데이비드 코프 인스트루먼츠 | 1921-A | |
| 일반 당나귀 혈청 | 잭슨 면역연구소 | 017-000-121 | |
| O.C.T. 컴파운드 | 사쿠라 | 4583 | |
| 입체 탐정 장비 | 데이비드 코프 인스트루먼츠 | 1900 | |
| 멸균 면봉 | 울린 | S-21102 | |
| 멸균 드레이프 | 부세 병원 일회용품 | 696 | |
| 멸균 식염수 | 호스피라 | NDC 0409-1966-02 | |
| 멸균수 | 호스피라 | NDC 0409-4887-24 | |
| 자당 | 피셔 케미컬 | S5-500 | |
| 주사기 | 피셔 사이언티브 | 50-252-2568 |
참고문헌
- Andersen, S. L. Trajectories of brain development: Point of vulnerability or window of opportunity. Neurosci Biobehav Rev. 27 (1-2), 3-18 (2003).
- Zeiss, C. J. Comparative milestones in rodent and human postnatal central nervous system development. Toxicol Pathol. 49 (8), 1368-1373 (2021).
- Bell, M. R. Comparing postnatal development of gonadal hormones and associated social behaviors in rats, mice, and humans. Endocrinology. 159 (7), 2596-2613 (2018).
- Auger, A. P., Olesen, K. M. Brain sex differences and the organisation of juvenile social play behaviour. J Neuroendocrinol. 21 (6), 519-525 (2009).
- Barkley, M. S., Goldman, B. D. A quantitative study of serum testosterone, sex accessory organ growth, and the development of intermale aggression in the mouse. Horm Behav. 8 (2), 208-218 (1977).
- National Research Council (US) Committee on Guidelines for the Use of Animals in Neuroscience and Behavioral Research. Guidelines for the care and use of mammals in neuroscience and behavioral research. , The National Academies Press. (2003).
- Wang, C., Mei, L. In utero electroporation in mice. Methods Mol Biol. 1018, 151-163 (2013).
- Kim, J. Y., Grunke, S. D., Levites, Y., Golde, T. E., Jankowsky, J. L. Intracerebroventricular viral injection of the neonatal mouse brain for persistent and widespread neuronal transduction. J Vis Exp. (91), e51863(2014).
- Robertson, S. D., Plummer, N. W., De Marchena, J., Jensen, P. Developmental origins of central norepinephrine neuron diversity. Nat Neurosci. 16 (8), 1016-1023 (2013).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Prakash, N., Abu Irqeba, A., Corbin, J. G. Development and function of the medial amygdala. Trends Neurosci. 48 (1), 22-32 (2025).
- Raam, T., Hong, W. Organization of neural circuits underlying social behavior: A consideration of the medial amygdala. Curr Opin Neurobiol. 68, 124-136 (2021).
- Lischinsky, J. E., et al. Embryonic transcription factor expression in mice predicts medial amygdala neuronal identity and sex-specific responses to innate behavioral cues. Elife. 6, e21012(2017).
- Lischinsky, J. E., et al. Transcriptionally defined amygdala subpopulations play distinct roles in innate social behaviors. Nat Neurosci. 26 (12), 2131-2146 (2023).
- Chan, E., Kovacević, N., Ho, S. K., Henkelman, R. M., Henderson, J. T. Development of a high resolution three-dimensional surgical atlas of the murine head for strains 129s1/svimj and c57bl/6j using magnetic resonance imaging and micro-computed tomography. Neuroscience. 144 (2), 604-615 (2007).
- Tu, L., et al. Free-floating immunostaining of mouse brains. Methods Mol Biol. 176, 1-12 (2021).
- Thal, S. C., Plesnila, N. Non-invasive intraoperative monitoring of blood pressure and arterial pCO during surgical anesthesia in mice. J Neurosci Methods. 159 (2), 261-267 (2007).
- Chen, S. -Y., Kuo, H. -Y., Liu, F. -C. Stereotaxic surgery for genetic manipulation in striatal cells of neonatal mouse brains. J Vis Exp. (137), e57270(2018).
- Kronman, F. N., et al. Developmental mouse brain common coordinate framework. Nat Commun. 15 (1), 9072(2024).
- Dong, H. W. The Allen reference atlas: A digital color brain atlas of the C57BL/6J male mouse. , John Wiley & Sons. (2008).
- Paxinos, G., Franklin, K. B. The mouse brain in stereotaxic coordinates. , Academic Press. (2004).
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공