이 프로토콜은 건강한 쥐 및 종양이 있는 쥐 폐 조직 모두에서 고품질 단세포 현탁액을 분리하는 상세한 방법을 제시합니다. 이 프로토콜은 scRNA-seq, 유세포분석 및 1차 세포 분리에 적용할 수 있습니다.
이 논문에서
요약
초록
NSCLC는 폐암의 약 85%를 차지하며, Kirsten rat 육종(KRAS)은 NSCLC에서 가장 흔히 돌연변이되는 유전자입니다. 최근 몇 년간 NSCLC 관리가 크게 발전했음에도 불구하고, 그 이질성과 가소성은 아직 완전히 이해되지 않았습니다. 단세포 RNA 시퀀싱(scRNA-seq)은 폐와 같은 복잡한 조직에서 세포 이질성을 해부하는 데 필수적인 도구가 되었습니다. 그러나 종양을 가진 폐 조직에서 고품질 단세포 현탁물을 생성하는 것은 특히 조직이 섬유화되고 이질적으로 변하는 종양 형성 과정에서 어렵습니다. 성공적인 scRNA-seq의 핵심 조건은 처리로 인한 스트레스나 손상을 최소화한 생존 가능한 단일 세포를 준비하는 것입니다. 여기서는 KrasG12D에서 건강한 마우스 폐 조직과 종양이 있는 마우스 폐 조직에서 고품질 단세포 현탁액을 분리하는 상세한 단계별 프로토콜을 제시합니다; tdTomato 리포터 마우스 모델. 이 절차는 조직 관류, 조절된 효소 소화, 부드러운 기계적 해리, 적혈구 용해, 여과 및 생존 가능성 평가를 포함하며, scRNA-seq 이전에 >85%의 생존 세포를 달성합니다. 마지막으로, tdTomato+ 종양 세포는 FACS로 효율적으로 분리되며, 이 프로토콜을 이용한 scRNA-seq를 통해 별개의 군집으로 검출할 수 있습니다.
서론
폐암은 전 세계적으로 암 관련 사망의 주요 원인 중 하나입니다. 이 질환은 크게 두 가지 하위 유형으로 분류할 수 있습니다: 소세포폐암(SCLC)과 비소세포폐암(NSCLC)1. NSCLC는 전체 폐암 사례의 약 85%를 차지하며, 선암종이 가장 흔한 조직학적 아형2입니다. NSCLC의 치료 전략이 지난 수십 년간 크게 개선되었음에도 불구하고, 폐암의 사망률은여전히 높습니다. 화학요법과 면역요법은 임상 실무에서 주로 사용되는 두 가지 주요 치료 기법입니다; 그러나 많은 환자들이 약물 내성을 경험하거나 면역치료에 반응하지 않습니다 4,5.
종양 미세환경(TME)은 종양의 시작, 진행,치료 저항성에 중요한 역할을 합니다. 점점 더 많은 증거는 TME의 구성이 시간에 따라 동적으로 변함을 시사합니다 7,8. 항종양 면역 세포는 종양 형성 초기 단계에서 TME에 풍부해지는 반면, 종양이 발달하면서 면역억제 및 암 관련 세포 집단이 우세해지는9. 따라서 폐암 진행 과정에서 TME의 이질성과 가소성을 이해하는 것은 질병 기전을 밝히고 치료 결과를 개선하는 데 필수적입니다.
단일 세포 RNA 시퀀싱(scRNA-seq)은 개별 세포 수준에서 유전자 발현의 고해상도 프로파일링을 가능하게 하여 복잡한 조직 전사체의 포괄적인 특성 분석이 가능합니다10. 이 기법은폐암에서 세포 이질성을 연구하고 종양 진행 및 약물 내성의 기전을 규명하는 데 필수적인 도구가 되었습니다. 고품질 단세포 현탁액의 준비는 성공적인 scRNA-seq의 핵심 요소로, 해리 과정에서 세포 스트레스나 손상이 부정확한 결과를 초래할 수 있기 때문입니다12,13.
이 프로토콜은 전체 종양 보유 폐에서 정제된 모든 단일 세포에서 RNA를 시퀀싱할 수 있게 하며, 세포 크기에 구애받지 않고 살아있는 세포 하위 집단을 버리지 않습니다. 이전 많은 연구들은 종양 수용 폐의 단일 세포 시퀀싱을 보고했으며, 이는 종양 세포에 집중하여 버려진 CD45+ 세포14, 15, 16 또는 면역 세포 또는 기타 특정 세포 유형에 집중한17과 버려진 종양 세포에 초점을 맞추었습니다. 이 프로토콜은 모든 세포 유형을 전체 쥐 종양 보유 폐 조직에서 효율적으로 분리시키고, 악성 세포의 방출과 정상 세포의 생존 가능성을 보장하는 것을 목표로 합니다. 모든 생체 단일 세포를 포함함으로써, 이 프로토콜은 암 관련 대식세포 유사 세포(CAMLs)를 포함한 종양 수용 폐 미세환경 내 모든 관련 세포 유형을 연구할 수 있게 합니다18. 품질 관리 및 특정 세포 집단의 농축을 위한 선택적 형광 활성화 세포 분류(FACS) 단계도 포함되어 있습니다. 즉각적인 분류가 불가능할 경우 항체 염색, 4'6-디아미디노-2-페닐린돌(DAPI) 표지, 단기 고정 절차에 대한 추가 지침이 제공됩니다.
이 프로토콜의 잠재적 한계는 초기 종양이 포함된 폐 조직과 종양 부하가 40% 미만인 폐 조직에 최적화되고 검증되었다는 점입니다. 고등급 종양이 있거나 종양 부담이 50%를 초과하는 폐의 경우, 밀집된 기질 성분과 광범위한 섬유화로 인해 해리 효율이 저하될 수 있으며, 이는 악성 세포의 완전한 방출을 차단할 수 있습니다.
프로토콜
모든 동물 관련 실험은 동물 관리 및 사용에 관한 스크립스 연구 지침에 따라 수행되었으며, 스크립스 연구 기관 동물 관리 및 사용 위원회의 승인을 받은 프로토콜 #10-0019입니다. 크라스LSL-G12D/+; TdTomato+/- 마우스는 KrasLSL-G12D/+ 마우스와 TdTomato 리포터 마우스를 교배하여 생성되었습니다. 9주 또는 10주 된 크라스LSL-G12D/+; TdTomato+/- 마우스를 폐암 모델로 사용하였습니다. 이들은 기관 내 렌티바이러스 발현 Cre 재조합효소에 감염되며, 쥐당 5× 10⁵ 플라크 형성 단위의 바이러스 역가가 존재합니다. 종양 보유 폐 조직은 25주 후에 채취되었다. 잠재적인 소화 문제와 문제 해결 방법은 보충 표 1에 나열되어 있습니다. 시약과 사용된 장비는 재료표에 나열되어 있습니다.
1. 완충재 준비
- DMEM/F12 매체: DMEM/F12 매체에 2%(v/v) 열로 비활성화된 FBS를 준비합니다.
- 세포 세척 완충제: Ca+/Mg+ 자유 PBS(pH 7.4)에 2%(v/v) 열로 비활성화된 FBS를 준비합니다.
- 관류 완충제: 사전 냉각된 자유 Ca+/Mg+ 자유 PBS(pH 7.4).
- 효소 스톡 용액: 10 mg(1600 U/mg) 콜라겐제 IV를 1 mL DMEM/F12 배지에 용해하여 16000 U/mL 콜라게나제 IV 스톡 용액을 얻습니다; 42 mg(1.19 U/mg)의 Dispase II를 1 mL DMEM/F12 배지에 용해하여 50 U/mL Dispase II 스톡 용액을 얻습니다; 5mg의 DNase I를 1mL DMEM/F12 배지에 용해하여 5mg/mL DNase I 스톡 용액을 얻습니다.
- 소화 배지: 콜라겐제 IV 250 μL, 디스파제 II 200 μL, DNase I 정액 100 μL 5 mL DMEM/F12 배양액을 혼합하여 최종 농도는 800 U/mL 콜라게나제 IV, 2 U/mL 디스파제 II, 0.1 mg/mL DNase I를 만듭니다.
- 현탁 버퍼: 0.5 M EDTA 1 μL (10 μM), 열 비활성화 FBS 1 mL(2% v/v)를 50 mL Ca+/Mg+ 자유 PBS(pH 7.4)에 혼합합니다.
- BSA 스톡 용액: 0.5 g BSA를 100 mL Ca+/Mg+ 자유 PBS에 용해하여 0.5% (w/v) BSA 스톡 용액을 얻습니다.
- FACS 버퍼: 1 M HEPES 2.5 mL와 0.5 M EDTA 200 μL 100 mL BSA 정액을 혼합하여 최종 농도는 25 mM HEPES와 1 mM EDTA를 얻습니다.
2. 쥐 폐 조직 채취
참고: 모든 수술 기구는 샘플 사이에 70% 에탄올로 소독됩니다. 각 단계마다 샘플은 얼음 위에 보관되며, 모든 플라스틱 제품은 DNase/RNase 무첨가 인증을 받았습니다.
- 기관에서 승인한 프로토콜에 따라CO2 챔버에서 쥐를 안락사시킵니다. 쥐를 해부 패드 위에 눕히고 발을 고정하세요. 70% 에탄올을 넉넉히 뿌리세요.
- 하복부 피부와 근육을 가로지르는 2–3cm 너비의 중간 절개를 합니다. 가슴을 조심스럽게 열고 폐나 심장을 절개하지 마세요.
- 안전 멀티플라이 21G 바늘을 50mL 주사기에 연결하고 30mL 관류 완충제를 흡인하세요.
- 왼쪽 심실에 바늘을 꽂고 날카롭고 곧은 가위로 오른쪽 심방에 작은 절개를 내세요.
- 전신21 에 15 mL 관류 완충액을 주입하세요.
참고: 간의 백색은 전신 관류가 완료되었음을 나타냅니다. - 폐를 흉부에서 분리하고 폐에 붙어 있는 과도한 조직을 절단하세요22. 폐를 10mL 미리 냉각된 자유 Ca+/Mg+ 자유 PBS에 넣어 과도한 혈액을 씻어내세요.
- 폐를 500 μL 얼음 냉각 DMEM/F12가 들어 있는 1.5 mL 튜브로 옮깁니다.
3. 폐 단세포 현탁액 준비
- 아주 좁은 직선 가위로 폐 조직을 작은 조각(1–2 mm3)으로 2–3분 동안 자릅니다.
- 다진 폐 조직을 5mL 소화제가 들어 있는 6cm 접시에 옮깁니다.
- 6cm 접시를 50rpm 온도에서 37°C에서 25분간 온도정전기 셰이커에 올려놓으세요. 현탁액은 1mL 피펫으로 8분마다 섞으세요.
- 10cm 접시에 100μm 메시 체를 넣으세요. 체를 1mL DMEM/F12 배지로 미리 적셔두세요.
- 소화된 현탁액을 체로 옮기세요. 멸균 주사기 플런저의 고무 끝으로 조직을 체에 밀어 넣으세요.
- 50 mL 원심분리기 튜브 위에 70 μm 메시 체를 올려놓습니다. 체를 1mL DMEM/F12 배지로 미리 적셔두세요.
- 세포 부유물을 체로 걸러내고 5mL DMEM/F12 배지로 체를 헹군다.
- 원심분리기는 400g의 셀 현탁액을 4°C에서 10분간 여과한 후 상상액을 조심스럽게 제거합니다. 세포 펠릿을 1 mL 적혈구 용해 완충제에 실온에서 2분간 재현탁합니다.
- 14mL 셀 세척 완충제를 넣고 400g에서 4°C에서 10 분간 원심분리기를 사용하세요.
참고: 세척 후에도 펠릿이 여전히 빨간색이라면, 8단계와 9단계를 반복하세요. - 상청액을 버리고 세포를 20mL 재현탁 완충제에 재현탁합니다.
- 10 μL 단일 셀 현탁액과 같은 부피의 트라이판 블루를 혼합한 후 10 μL 혼합물을 셀 카운팅 챔버 슬라이드에 첨가합니다. 살아있는 세포 생존력, 세포 수, 단일 세포 상태를 세포 카운터로 확인하세요.
4. 유세포분석(flow cytometry) 분석
- 세포를 얼음처럼 차가운 FACS 완충제에 재현탁하고, 100 μL 세포 현탁액을 1 μL Fc 블록 항체(1:100)가 포함된 1.5 mL 튜브에 옮깁니다. 샘플을 얼음 위에 15분간 배큐하세요.
- 원심분리기로 500g에서 5분 간 샘플링한 후 상청액을 버립니다. 세포를 200 μL CD326-APC 항체(1:100)에 재현탁한 후 4°C의 어두운 환경에서 45분간 배큐합니다.
- 원심분리기로 500g에서 5분 간 샘플링한 후 상청액을 버립니다. 세포를 DAPI 염색액 1:5000이 포함된 FACS 버퍼 500 μL에 재현탁합니다.
- 모든 샘플을 FACS 튜브로 옮기고 빛으로부터 보호하세요.
- 유동 세포계를 사용해 샘플을 분석하세요. 다음 형광체가 사용되었습니다: DAPI-V450, Tdtomato-YG585, CD326-APC. 게이팅 전략은 그림 1에 나와 있습니다.
결과
이 최적화된 프로토콜을 사용해 준비한 단일 세포 현탁액에서 높은 세포 생존성이 달성되었습니다. 종양 탑재 폐의 세포 생존력을 개선한 변화로는 효소 농도 최적화(보충표 2), 흔들기, 37°C에서 인큐베이션 중 샘플 혼합 등이 포함되었습니다. 또한, 6단계에서 추가로 40 μm 메시 스트레이너를 사용하지 않아 기계적 전단 응력을 줄여 세포 손상 가능성을 높이기 위해 제거되었습니다; 추가 체를 포함하면 다중항 형성을 줄일 수 있습니다. 평균적으로 세포 생존율은 최적화 전의 80% 미만과 비교해 85%를 초과했습니다(표 1). 세포 농도의 차이는 주로 복제체 간 폐 크기와 사용된 현탁 배양의 차이에 기인하였다.
이 KrasG12D 기반 생쥐 폐 선암 모델에서는 종양 결절이 존재하며, 종양 시작 25주 후 종양 부담은 10%에서 40% 사이입니다. 두 개의 전폐 단일 세포 현탁액을 10x 유전체 플랫폼에서 scRNA-seq에 노출시켰습니다. Cell Ranger 품질 평가에서는 두 샘플에서 각각 23,488개와 21,436개의 추정 세포가 확인되었습니다(표 2). 바코드 플롯은 주변 RNA 오염이 최소한임을 나타내며, 이는 높은 세포 생존율을 반영한 것으로 보입니다(그림 2A,B).
주성분 분석(PCA)과 균등 다양체 근사 및 투영(UMAP)을 통해 모든 주요 폐 세포 유형이 잘 정의된 클러스터가 드러났습니다(그림 3A). 대표적인 마커 유전자들의 도트 플롯은 해당 세포 유형에서 정식 바이오마커가 매우 발현됨을 확인했습니다(그림 3B). 또한 TdTomato+ 세포는 상피 관련 군집에서 풍부하게 관찰되었고, TdTomato+/EpCAM+ 세포는 FACS에 의해 성공적으로 분리되었습니다(그림 1).
요약하자면, 이 최적화된 프로토콜은 쥐 종양 보유 폐 조직의 효율적인 해리를 가능하게 하여 높은 세포 생존력, 낮은 RNA 오염, 포괄적인 세포 표현을 달성합니다.
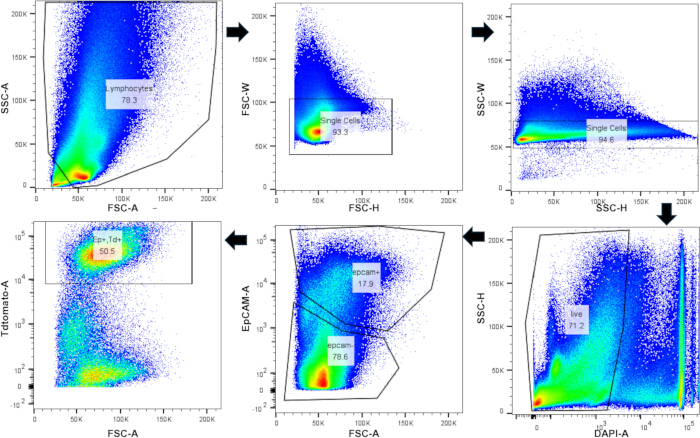
그림 1: 유세포분석을 이용한 TdTomato+/CD326 (EpCAM+) 세포 분리. 쥐 폐 단세포 현탁을 위한 유세포 게이트 전략. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
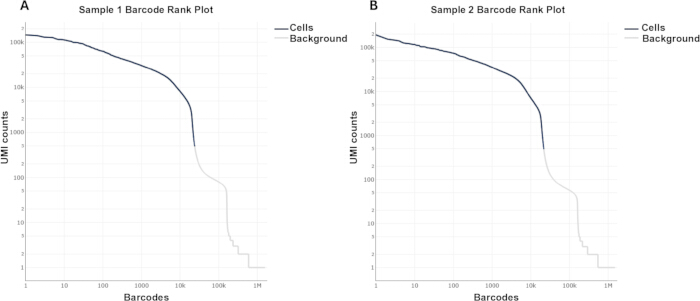
그림 2: 쥐 종양 보유 폐의 ScRNA-seq 바코드 순위 플롯. 크라스LSL-G12D/+; TdTomato+/- 쥐 폐는 렌티바이러스-Cre 감염 후 25주 후에 채취하였다. (A,B) Cellranger 분석에서 얻은 종양 보유 폐 바코드 순위 그래프. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
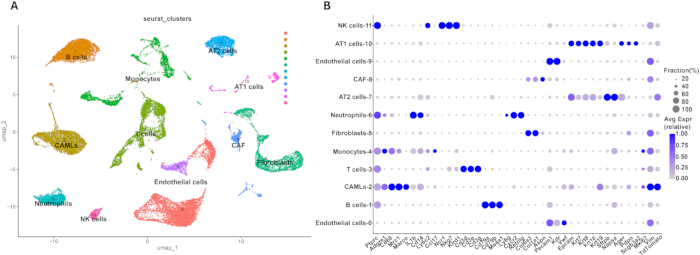
그림 3: 쥐 종양 보유 폐의 단세포 전사체 분석. (A) 전체 종양 보유 폐 데이터셋의 UMAP 예측. (B) 군집 주석에 사용되는 고전 유전자들의 점도표. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
| 최적화 이전 | 최적화 후 | |||
| 1번 반복 | 반복 2 | 1번 반복 | 반복 2 | |
| 총 셀 번호 | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| 살아있는 세포 | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| 살아있는 세포 비율 | 76% | 77% | 83% | 89% |
표 1: 종양 탑재 폐 단일 세포 현탁 세포 생존 능력 최적화 전후. 이 프로토콜을 사용하기 전후로 측정된 세포 농도와 생존 세포 비율.
| 샘플 1 | 샘플 2 | |
| 추정 셀 수 | 23,488 | 21,436 |
| 셀당 평균 읽기 수 | 18,354 | 20,542 |
| 세포당 중앙 유전자 수 | 2,565 | 2,513 |
| 총 검출된 유전자 | 30,893 | 30,556 |
| 셀당 UMI 중앙값 | 6,864 | 6,583 |
| 유효한 바코드 | 95.90% | 95.80% |
| 시퀀싱 포화 | 26.10% | 28.20% |
| 세포 내 분수 읽기 | 94.10% | 95.40% |
표 2: Cell Ranger에 의한 ScRNA-seq 품질 관리 분석. 셀 레인저에서 얻은 단일 셀 데이터의 주요 추정치
보조 표 1: 문제 해결 방법. 소화 과정에서 발생할 수 있는 문제를 해결하기 위한 해결책이 제안됩니다. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
보충 표 2: 사전 최적화 및 후후 최적화 효소 칵테일 성분. 최적화 전후로 사용된 효소 칵테일의 최종 농도. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
토론
이 프로토콜은 쥐 폐 조직에서 고품질 단세포 현탁액을 준비하는 상세한 단계별 절차를 제공합니다. 최적의 결과를 얻기 위해서는 여러 중요한 단계가 필요합니다.
효소 소화 전에 폐에서 혈액을 제거하기 위해 전신 관류가 이루어져야 합니다. 이로 인해 scRNA-seq로 검출된 면역 세포가 혈액 순환이 아닌 폐 조직에서 유래함을 보장한다. 관류 중에는 바늘을 좌심실에 삽입하여 관류액이 폐 순환계로 들어가 폐 세포를 손상시키는 것을 방지하는 것이 필수적입니다. 세포 생존을 유지하기 위해 세척액, 재현탁액, 관류 용액을 포함한 모든 완충제는 얼음 위에 미리 냉각되어야 합니다. 폐조직의 고유한 이질성을 고려할 때, 샘플은 소화 전과 중에 DMEM/F12 배지에 보관되어야 하며, 이 배지는 세포 생존을 유지하는 필수 영양소를 제공하기 때문입니다.
이 프로토콜에서 관찰된 높은 세포 생존율과 명확한 세포 클러스터는 효소 조합이 경미하면서도 효과적임을 확인시켜 줍니다. 칼슘과 마그네슘 이온은 세포 응집을 촉진하고 효소 활성을 증진시키는 것으로 알려져 있습니다25,26. 따라서 Ca+/Mg+ 자유 PBS는 대부분의 완충제를 준비하여 응집을 최소화하는 데 사용되며, 이 이온을 포함한 DMEM/F12는 소화 완충제의 기저 배지로 사용되어 균형 잡힌 효소 효율을 유지합니다.
이전 연구들은 해리되는 쥐 폐나 종양 조직을 기술했으나, 이들은 종종 프로테아제 선택과 농도에 대해 유의미한 변동성이나 불완전한 설명을 보인다 11,15,27. 예를 들어, Han 등은 농도 보고하지 않고 효소 칵테일을 사용해 재현이 어렵게 만들었습니다. 반면, Chen 등이 설명한 고도로 전문화된 방법은 폐포 II형(AT2) 세포의 해리에 효과적이지만, 복잡한 작업 흐름이 필요해 여러 마우스를 동시에 수집해야 할 경우 비현실적입니다.
폐종양학 연구에서 중요한 과제는 연약한 정상 세포와 악성 종양 세포로 구성된 종양 수용 폐의 구조적 이질성입니다. 표준 프로토콜이나 상업용 키트는 종종 정상 조직 샘플이나 종양 샘플을 위해 특별히 설계되었습니다. 이들은 소화가 불완전해 종양 중심부에서 암세포가 방출되지 않거나, 과도한 소화로 인해 종양이 있는 폐 샘플에서 더 민감한 정상 조직에 상당한 스트레스와 세포 사멸을 유발합니다.
이 프로토콜은 효소 혼합물(콜라겐제 IV, 디스파제 II, DNase I)을 미세 조정하여 균형 잡힌 해리를 달성합니다. 이 최적화는 정상 세포의 생존력을 보존하면서 악성 세포의 방출을 보장합니다. 이는 유세포분석 분석으로 뒷받침되며, 두 개의 뚜렷한 상피 세포를 성공적으로 확인하고 해명했습니다. 상피세포는 TdTomato+ 또는 TdTomato- 세포로 잘 분리되어 있습니다. 이러한 해상도는 이 방법이 숙주 조직의 완전성을 희생하지 않고 종양을 보유한 폐 미세환경을 연구하는 데 적합함을 보여줍니다. 분석에 모든 생체 단일 세포를 포함시킴으로써, 이 프로토콜은이전 연구에서 널리 보고되지 않았던 암 관련 대식세포 유사 세포(CAML)를 포함한 종양 수용 폐 미세환경 내 모든 관련 세포 유형을 연구할 수 있게 합니다(그림 3).
소화 후 scRNA-seq 분석 결과, 이 절차가 다양한 세포 유형을 성공적으로 분리할 수 있음이 입증되었습니다. 효소 용액은 실험 당일에 신선하게 준비해야 합니다. 모든 소화 매개변수는 단일 전체 쥐 폐에 최적화되어 있습니다. 단일 엽 또는 여러 폐만 사용할 경우, 세포 생존율이 높고 조직이 완전히 해리되도록 소화 시간을 조정해야 합니다. 주변 RNA 오염과 다중자 형성은 scRNA-seq 품질에 영향을 미치는 두 가지 주요 요인입니다. 죽은 세포 제거 키트가 생존 가능성을 높이기 위해 자주 사용되지만, 이 프로토콜은 소화 후 80% 이상의 생존 세포를 지속적으로 생산하므로 이 단계는 선택 사항입니다. 바코드 랭크 플롯은 죽은 세포 제거 없이도 주변 RNA 오염이 최소화된 것으로 확인되었습니다.
본 연구는 이 방법론을 종양 보유 쥐 폐 전체의 맥락에서 검증합니다. 이 최적화된 효소 소화는 유사한 미세환경을 가진 다양한 종양 조직을 연구하는 템플릿을 제공합니다. 더불어, 이 프로토콜이 달성한 모든 세포 유형의 높은 생존력과 보존성은 표면 단백질 매핑을 위한 CITE-seq, 후생유전학적 프로파일링을 위한 ATAC-seq 같은 첨단 시퀀싱 기술에 적합합니다.
이 프로토콜은 저비용으로 고품질 단세포 현탁물을 생산하지만, 효소 소화 과정에서 과정에 의한 세포 스트레스가 발생할 수 있습니다. 스트레스 관련 유전자 발현 인위를 최소화하기 위해 한 명의 연산자는 동시에 최대 4개의 샘플을 처리해야 합니다.
공개 사항
저자들은 서로 상충하는 이해관계가 없다고 선언한다.
감사의 글
이 연구는 미국 국립보건원(NIH), 국립안과 연구소(NEI)의 지원을 받아 R01EY035333년 5R01EY026202; 국립치과두개안면연구소(NIDCR)의 보조금은 R01DE031044, 2R01DE014756이며, 국립암연구소(NCI)의 보조금은 R01CA271500 및 2R01CA211187입니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| DMEM/F12 | 써모피셔 | 11320033 | 세포 배양 |
| 콜라게나제 IV형 | 시그마 알딕 | C5138 | 소화 효소 |
| 디스파즈 II | 시그마 알딕 | D4693 | 소화 효소 |
| DNase I | 로슈 | 11284931001 | DNA 제거 |
| 팔콘 70 셀 스트레이너 | 팔콘 | 352350 | 소화되지 않은 조직을 제거하세요 |
| 멸균 가위 | FST | 14088-10 | 절단 조직 |
| 적혈구 용해 완충제 | 시그마 알딕 | R7757 | 혈액 세포를 제거하세요 |
| 열로 비활성화된 FBS | 피닉스 사이언티브 | PS100 | 세포 보호 |
| Ca+/Mg+ 무료 PBS | 써모피셔 | 10010023 | 용해 효소/세척 셀 |
| 안전-멀티플라이 21G 바늘 | 사르스테트 | 3051524 | 전신 관류 |
| 50 mL 주사기와 nbsp; | BD | 300866 | 전신 관류 |
| 6cm 접시 | 코닝 | 430116 | 소화 조직 |
| 10cm 접시 | 코닝 | 430167 | 소화 조직 |
| Fc 차단 항체 | BD | 553141; RRID:AB_394655 | 유세포검사 |
| 다피 | BD | 564907; RRID:AB_2869624 | 유세포검사 |
| CD326 | BD | 563478; RRID:AB_2738234 | 유세포검사 |
| HIVmPGKCre VSVG | UI 바이럴 벡터 코어 | 아이오와 VVC-U-7556 | 렌티비루스 |
| ZE5 (Yeti) 유세포계 | 바이오-래드 | 유세포검사 분석 | |
| KrasLSL-G12D/+ 마우스 | 잭슨 연구소 | 008179; RRID:IMSR_JAX:008179 | |
| TdTomato 기자 마우스 | 잭슨 연구소 | 007909; RRID:IMSR_JAX:007909 |
참고문헌
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
재인쇄 및 허가
태그
