이 연구는 조직 줄기세포에서 유래한 장 오가노이드를 이용한 세균 감염의 시험관 내 조사 방법을 제시합니다. 이 프로토콜은 2차원에서 오가노이드를 배양하고 구분하는 방법, 침착성 대장균으로 감염시키는 방법, 그리고 상피 장벽 돌파, 감염 영상, 상피 RNA 반응 등 주요 측정값을 평가하는 방법을 설명합니다.
이 논문에서
요약
초록
오르가노이드 기술은 건강과 질병에서 인간 생리학을 연구하는 실험적 시험관 내 플랫폼을 제공합니다. 암 유래 세포주나 엑스플랜트와 같은 다른 시험관 내 시스템과 비교할 때, 조직 줄기세포(TSC) 유래 오가노이드는 주요 장점을 제공합니다: 유전체 안정성을 유지하면서 무한히 증식할 수 있고 CRISPR 변형도 가능합니다. 이 오가노이드는 정상적인 TSC에서 생성되기 때문에, 기원지의 세포 유형을 포함하고 있습니다. 이로 인해 오르가노이드는 박테리아와 분화된 비종양 인간 세포 간의 상호작용을 조사하는 데 특히 가치가 있습니다. 장 오가노이드는 기저막 추출물(BME) 또는 인바신으로 코팅된 세포 배양 인서트에 2차원 편극 단일층으로 배양되며, 이는 동물이 없는 비용 효율적인 대안이며, 병원성 침착성 대장균 감염을 위한 주요 장 상피 세포 유형으로 구분할 수 있습니다. 주요 감염 지표로는 역전사 정량 PCR(RT-qPCR)을 이용한 상피 유전자 발현 모니터링, 공초점 현미경을 통한 박테리아-상피 상호작용 시각화, 상피 장벽 돌파 정량 측정이 포함됩니다. 이 프로토콜은 다른 장기와 박테리아 종 연구에 쉽게 적용할 수 있어, 오가노이드 내 숙주-미생물 상호작용을 연구하는 데 다목적 플랫폼을 제공합니다.
서론
장 상피는 장 내강에 존재하는 병원성 박테리아에 대한 첫 번째 방어선 역할을 합니다. 장 상피의 시험관 내 모델은 박테리아가 상피 세포와 어떻게 상호작용하는지, 이 세포들이 감염에 어떻게 반응하는지, 박테리아가 어떻게 상피 장벽을 돌파하는지 연구하는 데 널리 사용되어 왔습니다1. 이 모델들은 통제되고 환원주의적인 환경에서 인간 특이적 병원체를 조사하는 데 특히 가치가 있습니다. 역사적으로 시험관 내 감염 생물학은 Caco-2 세포와 같은 종양 유래 세포주나 환자 유래 세포주를 외부 체외에서 유지하는 데 의존해 왔습니다 2,3. 최근에는 인간 조직 줄기세포에서 생성된 장 오가노이드가 두 접근법의 장점을 결합한 강력한 도구로 부상했습니다: 세포주처럼 오가노이드도 배대, 증식, 냉동 보존, 해동, 유전적 조작이 가능하며; 그리고 엑스플랜트와 마찬가지로, 이들은 모든 주요 상피세포 유형으로 분화할 수 있는 비종양성 줄기세포에서 유래합니다 4,5.
마트리젤이나 베이스먼트 멤브레인 추출물(BME)과 같은 매트릭스에 내장된 인간 장 오가노이드는 일반적으로 구형의 편광 구조로 스스로 조직되며, 꼭대기면은 안쪽을, 기저면은 바깥쪽을 향합니다. 대부분의 장 병원체가 상피 세포의 꼭대기에서 접근하기 때문에, 이 표면을 오가노이드 내 박테리아에 노출시키기 위한 여러 전략이 개발되었습니다. 한 가지 방법은 박테리아를 직접 오가노이드 내궁6에 주입하는 것입니다. 또 다른 방법은 오르가노이드를 세포외 기질에서 방출하여 극성을 반전시켜 '꼭대기 아웃' 오가노이드를 현탁 상태로 만드는것입니다. 세 번째 전략은 오가노이드를 단일 세포로 분리하여 세포 배양 삽입물 삽입물에 시딩하여 극성 2차원 단일층(2D 오가노이드 시트)을 형성하는 것으로, 이 단층 끝이 상단 구획8을 향하고 있습니다. 처음 두 방법에는 중요한 한계가 있습니다: 미세 주입은 시간과 노동 집약적이기 때문에 처리량이 제한되며, 꼭대기 밖 오가노이드는 매트릭스 지지 없이 며칠만 생존하며구분할 수 없습니다. 반면, 2D 오가노이드 시트는 고처리량 실험을 지원하며(박테리아를 단순히 상부 구획에 추가할 수 있음), 주요 장 상피세포 유형으로 분화하는 동안 수주간 유지할 수 있습니다.
플라스틱 표면에 쉽게 부착하는 불멸화된 세포주와 달리, 오가노이드 유래 세포는 효율적인 접착을 위해 플레이트 코팅이 필요합니다. 코팅은 희석된 BME10을 사용하거나, 또는 오가노이드 세포의 인테그린에 결합하는 박테리아 단백질인 인바신을 사용할 수 있습니다. 인바신은 실험실에서 쉽게 생산할 수 있고, BME나 마트리젤보다 훨씬 비용 효율적이며, 완전히 동물성 성분이 없습니다.
이 프로토콜은 침습 또는 저저막 추출물(BME)으로 코팅된 세포 배양 삽입물 삽입물 위에 장내 오가노이드를 2차원 편광 단일층으로 형성하고 분화하는 과정을 설명합니다. 분화된 오가노이드 시트는 이후 염증성 장 질환과 관련된 병원성 균주인 부착성 침습성 대장균(Escherichia coli , AIEC)에 감염된다12. 상피 반응과 박테리아 전위를 평가하기 위해 여러 하위 감염 수치가 제시됩니다. AIEC가 상피세포를 침범하여 장 상피를 침범하는데, 이는 그 병원성에 기여하는 메커니즘으로 여겨지므로, 상피 돌파는 장벽 무결성이 확인된 후 세포 배양 삽입물의 기저측 챔버에 도달하는 박테리아를 측정하여 정량화합니다13. 감염된 단일층을 고정하고 영상화하여 세포 내 및 세포 외 AIEC를 시각화하는 절차, 그리고 감염에 대한 상피 전사 반응을 평가하기 위한 RNA 추출 절차도 제공됩니다. 전체 프로토콜은 2주 이내에 수행할 수 있으며, BSL-2 캐비닛, 공초점 현미경, 정량 PCR 기기 등 흔히 구할 수 있는 실험실 장비만 필요합니다.
전반적으로 이 프로토콜은 분화된 인간 장 상피의 세균 감염을 시험 관 내에서 연구하는 데 비용 효율적이고 다재다능하며 접근성이 좋은 방법을 제공합니다. 다른 오가노이드 시스템과 미생물 종에도 쉽게 적응할 수 있어 시험관 내 감염 생물학 연구에 유용한 청사진이 됩니다.
프로토콜
인간 장 내 오가노이드는 위트레흐트 대학교 의료센터(UMCU)에서 대장암 수술을 받는 환자의 노폐물에서 생성되었습니다. 환자들은 지역 생물은행 기준 지역 윤리 위원회에서 승인한 UPORT 암 바이오뱅크 21-042 프로토콜에 따라 오르가노이드 생성에 대한 사전 동의를 제공했습니다. 그림 1A 는 프로토콜의 8개 섹션을 보여줍니다. 시약과 장비 세부 사항은 재료표에 나와 있습니다.
1. 세포 배양 인서트의 코팅
- 인바신 코팅
- 모든 시술은 조직 배양 후드 내에서 멸균 환경에서 수행하세요.
- 멸균 인산염수(PBS)에 5 μg/mL 인바신 용액을 준비합니다.
- 이 용액 100 μL을 24웰 플레이트에 배치한 각 3 μm 기공 폴리에스터 세포 배양 인서트의 상단 구획에 첨가합니다.
- 멤브레인이 완전히 덮여 있는지 확인하세요.
- 4°C에서 하룻밤 부양하세요.
참고: 분배 시 기포 발생을 피하세요. 기포는 균일한 코팅을 방해합니다.
- 베이스먼트 멤브레인 추출물 코팅 (대체 방법)
- 해동 지하실 멤브레인 추출물을 얼음 위에 올려놓으세요.
- 얼음처럼 차가운 DMEM에 10% 용액을 준비하세요.
참고: 조기 중합을 막기 위해 용액을 차갑게 보관하세요. - 희석된 용액 100 μL을 각 3 μm 공극 세포 배양 인서트의 상단 구획에 첨가합니다.
- 멤브레인 표면을 완전히 덮어야 합니다.
- 상온에서 1시간 동안 배양하세요.
2. 오르가노이드 세포의 씨앗
- 오가노이드 준비
- 팽창 상태(분할 후 3-5일)에 유지된 오가노이드 플레이트에서 배양지를 제거하세요.
- 얼음처럼 차가운 DMEM14 1mL에 오가노이드를 재현탁합니다.
- 현탁액을 4mL의 얼음 냉각 DMEM이 들어 있는 15 mL 원뿔 튜브로 옮깁니다.
참고: 12웰 플레이트에서 약 1개의 전체 웰을 사용하여 4개의 세포 배양 인서트를 시딩하세요.
- 펠팅 오가노이드
- 500 × g , 4 °C에서 5분간 원심분리기로 가열합니다.
- 상정액을 완전히 제거하세요.
- 해리 오가노이드
- 펠릿을 3mL의 재조합 트립신 대체물에 재현탁합니다.
- P1000 피펫을 사용해 오가노이드를 기계적으로 교란시키기 위해 피펫을 위아래로 움직이세요.
- 37°C에서 15-20분간 배양하여 단일 세포 또는 작은 군집(3-4개 세포)이 나올 때까지 보관합니다.
참고: 20분을 초과하지 않는 부화 기간을 유지하세요. 해리를 돕기 위해 5분마다 피펫을 사용하세요. 추가적인 기계적 힘이 필요하다면 P10 팁을 P1000 팁 안에 삽입하세요.
- 세척 셀
- 얼음처럼 차가운 DMEM 5mL를 추가하세요.
- 500 × g , 4 °C에서 5분간 원심분리기.
- 상정액을 제거하세요.
- 세포 현탁액 준비
- 세포를 팽창 배양지에 재현탁합니다(세포 배양 인서트당 100 μL; 확장액 조성은 표 1 참조).
참고: 항생제는 포함하지 마세요. 아노이키스 예방을 위해 Rho 키나제 억제제를 포함하세요. - 세포 계수기나 혈구계를 사용해 세포를 세세요.
- 약 2× 10⁶ 세포/mL로 조절하세요.
- 세포를 팽창 배양지에 재현탁합니다(세포 배양 인서트당 100 μL; 확장액 조성은 표 1 참조).
- 세포 배양 인서트 씨앗
- 인서트에서 코팅 용액을 제거하세요.
- 상부 구획에 100 μL 세포 현탁액(2×10 5 세포)을 추가합니다.
- 하부 구획에 팽창 매체 500 μL을 추가합니다.
3. 세포 배양 삽입 배양 및 분화
- 37°C에서 5%CO2 와 함께 수합점(약 3일)까지 배양합니다.
참고: 필요 시 두 구획 모두 4-5일마다 매번 매체를 교체하세요. - 물이 합치면 두 구획 모두 미리 예열된 DMEM으로 세척하세요.
- 하부 구획에 500 μL 분별 배지를 추가합니다(표 2).
- 상부 구획에 HEPES와 글루타맥스(AdvDMEM++) (AdvDMEM++) (표 3)를 보충한 100 μL 고급 DMEM/F12를 추가합니다.
- 5%CO2로 37°C에서 5일간 배양합니다.
- 두 칸 모두의 미디어는 2일마다 교체하세요.
4. 경상피/경내피 전기 저항(TEER) 측정
- TEER 전극을 70% 에탄올에 15분간 소독하세요.
- 전극은 멸균 PBS에 세척하세요.
- 짧은 전극을 상부 구획에, 긴 전극을 하부 구획에 삽입하세요.
참고: 전극 끝으로 단분층을 만지지 마십시오. - 저항값 기록.
- PBS가 포함된 셀 프리 인서트(상부 100 μL, 하부 500 μL 포함)를 사용하여 빈 저항을 측정합니다.
- TEER 계산: TEER = (R_cell 배양 삽입물 − R_blank) × 표면적(cm²)
참고: 24웰 인서트의 경우 표면적 = 0.33 cm².
5. AIEC 감염
- 박테리아 배양 준비
- 형광 AIEC를 3 mL LB 배지15에 접종합니다.
- 37°C에서 하룻밤 동안 흔들면서 부양하세요.
주의: 모든 박테리아 시술은 BSL-2 후드에서 수행하세요.
- 접종 준비
- 원심분리기로 500 μL 1500 × g에서 5분간 배양합니다.
- 1 mL AdvDMEM++에 재현탁하세요.
- 광학 밀도(OD)를 측정합니다.
- AdvDMEM++에 약 1× 10⁸ CFU/mL로 희석합니다.
참고: OD = 1은 약 1 × 10⁹ CFU/mL에 해당합니다.
- 단과계층 감염
- 두 칸 모두의 미디어를 교체하세요.
- 하부 구획에 500 μL 분별 배지를 추가합니다.
- 감염된 상태에 대비해 상부 구획에 100 μL 박테리아 현탁액을 추가하세요.
- 감염되지 않은 상태에서는 상부 구획에 100 μL AdvDMEM++를 추가하세요.
- 37°C, 5% CO₂에서 배양하세요.
6. 상피 붕괴 평가
- 감염 후 2.5시간쯤 하부 구획에서 100 μL을 채취하세요.
- PBS에 희석하고 LB 한천에 플레이트하세요.
- 하부 구획에 100 μL 신선 분화 배지를 추가하세요.
- 플레이트를 37°C에서 하룻밤 동안 배큐하세요.
- 감염 후 5시간 후에 다시 샘플링을 하세요.
- 다음 날 식민지 형성 단위(CFU)를 방문했습니다.
- 세포 배양 인서트당 CFU 계산: CFU/세포 배양 인서트 = 5 × 희석 인자 × 콜로니
7. 이미지 감염
- 감염 후 5시간 후에 배지를 제거하고 4% 파라포름알데히드로 고정합니다.
주의: 파라포름알데히드는 독성이 있고 휘발성이 큽니다. 장갑을 끼고 배기구 안에 손잡이를 넣는 것. - 30분 동안 고쳐.
- PBS로 세 번 세척하세요.
- 막 삽입물을 절제하고 웰 플레이트에 세포를 위를 향하게 배치하세요.
- 형광 팔로이딘으로 1-2시간 동안 염색하세요.
- PBS로 세 번 세척하세요.
- 핵을 DAPI로 10분간 염색합니다.
- PBS로 세 번 세척하세요.
- 마운팅 매체가 있는 유리 슬라이드에 장착하고 커버슬립을 붙입니다.
- 매니큐어로 밀봉하세요.
- DAPI, 액틴, 박테리아 채널의 공초점 이미지를 획득합니다.
- 기저면에서 꼭대기면까지 1 μm 간격으로 Z-스택을 획득합니다.
- 피지에서 오픈 이미지.
- 이미지 → Z 프로젝트 → 평균 강도를 선택하세요.
- 단면을 시각화하려면 이미지 → 스택 → 직교 뷰를 선택하세요.
8. 상피 반응 분석
- 감염 후 5시간이 지나면 배지를 제거하세요.
- 상부 구획에 350 μL 용해 버퍼를 추가합니다.
- 피펫으로 용해세포를 옮기고, 얼음 위에 있는 RNase 없는 튜브로 옮깁니다.
- 키트 설명서에 따라 RNA 추출을 수행하세요.
- RNA 농도를 측정하고 샘플을 정규화하세요.
- 역전사를 수행하세요.
- 제조사의 지침에 따라 정량 PCR을 수행하세요( TNFα 와 참조 유전자 β-액틴 의 프라이머 서열은 표 4에 제공됨).
결과
합류점에 도달한 후, 세포 배양 삽입물의 장 세포들은 단일층에 눈에 띄는 틈 없이 모자이크 같은 패턴을 보였다(그림 1B). 분화 후에는 상피 조성도를 측정하여 경상피 전기 저항(TEER)을 측정했습니다(그림 1C). TEER 값이 500 Ω·cm² 이상은 조개 상피 단일층¹⁶의 형성과 일치하였다.
기저외측 구획에서 검출된 AIEC 양은 시간이 지남에 따라 증가했으며, 이는 박테리아가 상피 장벽을 돌파한 것을 반영합니다(그림 2A,B). 하부 구획에 AIEC가 없다면 박테리아 전위 실패를 나타낸다.
감염 시각화 워크플로우는 그림 3A에 요약되어 있습니다. 공초점 영상은 핵이 기저에 국한되고 액틴 네트워크의 끝부분 농축이 나타나는 편광 단일층의 형성을 보여주었습니다(그림 3B). 더 높은 배율 확대 시 세포 내 AIEC와 세포외 박테리아가 모두 첨단막에 부착되어 있음을 확인했습니다(그림 3C).
RT-qPCR 분석 결과, AIEC 감염에 반응하여 TNFα 발현이 상향 조절되는 것으로 나타났으며(그림 4A, B), 상피 염증 반응의 활성화를 확인하였습니다.
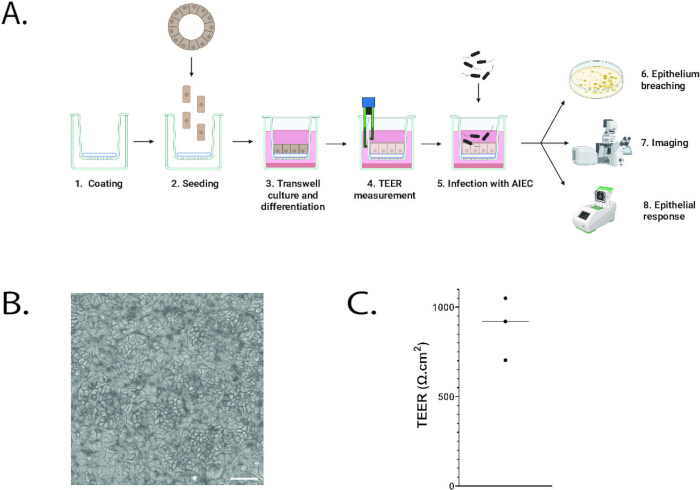
그림 1: 프로토콜 개요. (A) 프로토콜의 설계도. (B) 인바신 코팅 세포 배양 인서트에서 배양 및 분화된 장 오가노이드 세포의 밝은 시야 이미지. 스케일 바: 50 μm . (C) 장내 오가노이드의 transepithelial/transendothelial 전기 저항(TEER)을 침습 코팅 세포 배양 삽입물에서 배양 및 분화한 상태. 각 점은 독립적인 실험을 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
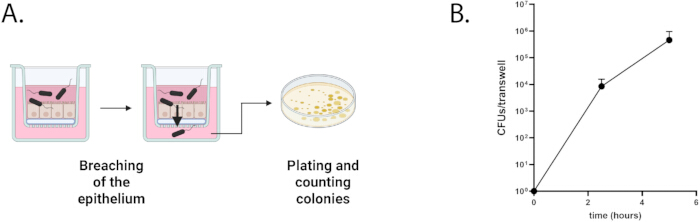
그림 2: 상피 붕괴 평가 (A) 프로토콜 도식. (b) 세포 배양 삽입물 하단 구획에서 AIEC 콜로니 형성 단위(CFU)의 시간에 따른 정량화. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
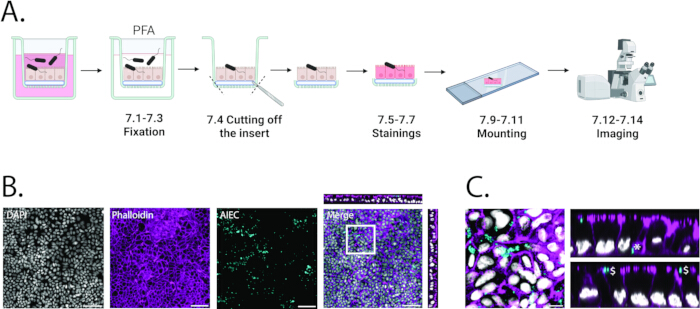
그림 3: 영상 감염. (A) 프로토콜의 설계도. (B) 형광 AIEC에 감염된 장 오기체의 초점 영상 5시간 동안 그레이: DAPI. 마젠타: 팔로이딘. 시안: AIEC. 스케일 바: 50 μm. 병합된 이미지의 직교 뷰가 상단과 오른쪽에 표시됩니다. (C) B의 흰색 사각형의 고배율. 그레이: DAPI. 마젠타: 팔로이딘. 시안: AIEC. 스케일 바: 10 μm. 오른쪽에는 직교 뷰가 표시되어 있습니다. 세포 내 AIEC(*)와 상피세포 끝막에 부착된 세포외 AIEC($)가 강조되어 있습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
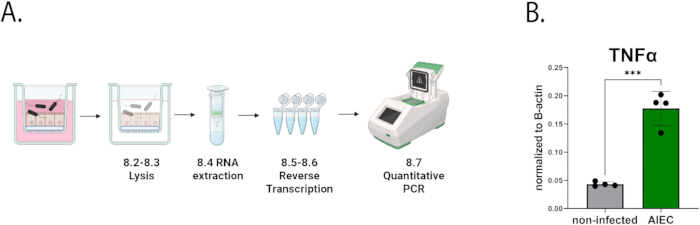
그림 4: 상피 반응 분석 (A) 프로토콜의 설계도. (B) AIEC 감염 후 5시간 후 장 내 오가노이드에 의한 TNFα 발현(녹색) 대 비감염 대조군(회색)의 비교. TNFα 발현은 2-(Cq(TNFα)-Cq(β-actin))를 사용하여 B-액틴 발현으로 정규화되었습니다. n=4가 복제됩니다. 통계 분석은 쌍이 없는 학생의 t-검정을 사용하여 수행되었습니다. P < 0.001. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
| 구성 요소 | 집중 |
| Adv DMEM | 1X 결승 |
| 젠장 | 1% v/v |
| 글루타맥스 | 1% v/v |
| 대리인 | 0.5 nM |
| R-spo1 UPE | 2% v/v |
| 노긴 UPE | 1% v/v |
| 비타민 A 없는 B27 | 2% v/v |
| N-아세틸 시스테인 | 1.25 mM |
| 니코티나마이드 | 10 μM |
| hEGF | 50 ng/mL |
| A83-01 (TGF-β 억제기) | 0.5 μM |
| SB202190 (p38 억제제) | 3 μM |
| 프로스타글란딘 E2 | 1 μM |
| 로 키나제 억제제 | 10 μM |
표 1: 인간 장 오가노이드의 확장 배지. 인간 장 오가노이드의 유지 및 증식에 사용되는 확장 배지의 조성.
| 구성 요소 | 집중 |
| Adv DMEM | 1X 결승 |
| 젠장 | 1% v/v |
| 글루타맥스 | 1% v/v |
| R-spo1 UPE | 2% v/v |
| 노긴 UPE | 1% v/v |
| 비타민 A 없는 B27 | 2% v/v |
| NAC | 1.25 mM |
| hEGF | 50 ng/mL |
표 2: 인간 장 오가노이드의 분화 배지. 인간 장 오가노이드 단층의 상피 성숙을 촉진하는 데 사용된 분화 배지의 조성.
| 구성 요소 | 집중 |
| Adv DMEM | 1X 결승 |
| 젠장 | 1% v/v |
| 글루타맥스 | 1% v/v |
표 3: 감염을 위한 고급 DMEM++. 박테리아 감염 분석에 사용되는 HEPES 및 글루타맥스(Adv DMEM++)를 보충한 고급 DMEM/F12 배양지의 조성.
| 이름 | 순서 |
| TNFα F | CTCTTCTGCCTGCTGCTGTGTGTGTGT |
| TNFα R | ATGGGCTACAGGCTTGTCCTC |
| β-액틴 F | TGACGTTGACATCCGTAAG |
| β-액틴 R | 가가카트가트가트가트가트 |
표 4: TNFα qPCR 프라이머. β-액틴 유전자를 기준 유전자로 사용하여 TNFα의 정량적 PCR 분석에 사용된 프라이머 서열을 보여줍니다.
토론
이 연구는 TSC 유래 오가노이드를 세포 배양 삽입물에 배양하여 인간 장 상피 세포의 박테리아 감염을 조사하는 프로토콜을 확립하였습니다. 3 μm 구멍을 가진 삽입물은 효율적인 세포 부착과 박테리아 전위를 가능하게 하는 반면, 0.4 μm 구멍은 AIEC 통과를 허용하지 않으며, 이는 대 장균의 약 1 μm 크기와 일치합니다. 3 μm 구멍을 통한 오가노이드 세포의 전위는 관찰되지 않았는데, 이는 상피 및 비침습적 표현형 때문으로 추정됩니다.
재현성에 중요한 여러 실험 변수로는 효율적인 세포 부착, 적절한 시딩 밀도, 감염 전 완전한 합류 등이 포함되었다. 오가노이드 유래 상피세포는 코팅되지 않은 플라스틱에 부착하지 않아 코팅이 필수적입니다. BME는 꾸준히 높은 부착 효율을 제공했습니다. 인바신 코팅도 유사한 결과를 냈으며, 자체 생산이 필요하지만 비용 효율적인 대안11을 제공합니다. 콜라겐 코팅도 대안으로 제안된 바있습니다.
박테리아 증식 조건은 감염 효율에 큰 영향을 미칩니다. 대 장균 은 DMEM에서 잘 자라며; 하지만 잔류 항생제는 증식을 억제할 수 있습니다. 최적의 조건에서는 감염된 배양물이 대조군에 비해 탁도가 더 높으며, 박테리아 증식은 끝부분 구획 내용물을 플레이트링하여 확인할 수 있습니다.
이 영상 전략은 구성적 프로모터 하에 형광체를 발현하는 AIEC를 표적으로 하여 세포 내 및 세포외 박테리아 모두를 시각화할 수 있게 했습니다(예: 플라스미드 pMB1-spect-PthrC-eGFP 사용). 대안적 방법으로는 세포 내 박테리아의 선택적 검출이 가능하며, 여기에는 차별적 면역형광 염색18 또는 침입19의 특정 단계에서 발현된 리포터가 포함됩니다. 겐타미신 보호 분석은 추가적인 정량적 접근법을 제공합니다.
이 모델은 의도적으로 환원주의적이며 박테리아와 장 상피 간의 직접적인 상호작용에 초점을 맞춥니다. 이는 추가적인 생체 내 세포 유형 없이도 분화된 상피 단일층에서 감염을 조사할 수 있게 합니다. 분화 배지는 주로 장세포와 고블릿 세포의 분화를유도했으나, 상피 조성을 변화시키도록 변형할 수 있다22,23. 기저 구획에 면역 또는 기질 세포를 공동 배양함으로써 시스템 복잡성을 높일 수있습니다.
이 시스템은 장 점막의 3차원 구조를 재현하지 않습니다. 장기 온 칩 플랫폼은 일부 구조적 한계를 극복하지만, 더 큰 기술적 복잡성과 자원이 필요합니다. 더불어, 이 모델은 박테리아 과증식으로 인해 실험 시간이 약 8시간으로 제한되므로 급성 감염에 가장 적합합니다. 만성 감염을 시험관 내에서 연구하기 위해서는 연속 매질 교환을 가능하게 하는 마이크로유체 플랫폼과 같은 더 복잡한 시스템이 필요합니다.
유사한 세포배양 삽입물 기반 오르가노이드 감염 시스템은 헬리코박터 파일로리27,28에 감염된 위 오가노이드, 시겔라29에 감염된 장 오가노이드, Pseudomonas aeruginosa10에 감염된 기도 오가노이드, 그리고 Enterococcus faecalis30에 감염된 요루피 오가노이드 등 여러 조직과 병원체에 적용되었습니다. 따라서 이 프로토콜은 병원체 특이적 성장 요구사항을 고려할 경우 장기 간 상피-박테리아 상호작용을 조사하는 데 다목적 틀을 제공합니다.
오르가노이드 기술은 비형질전환 상피세포 내 숙주-병원체 상호작용을 조사할 수 있는 생리학적으로 중요한 인간 모델을 제공합니다 4,5. 항생제 내성 감염의 증가하는 부담과 만성 염증성 질환 및 암과의 연관성을 고려할 때, 이러한 시험관 내 시스템은 기전 및 중개 연구에 귀중한 도구가 됩니다.
공개 사항
H.C.는 오르가노이드 기술과 관련된 여러 특허의 발명가입니다. H.C.의 전면 공개는 https://www.uu.nl/staff/JCClevers/ 에서 제공된다.
감사의 글
저자들은 위트레흐트 포털 오르가노이드 기술(UPORT), 특히 안네타 브루살리, 조리케 살리, 아놀드 빈다, 그리고 위트레흐트 대학교 의료센터의 환자와 외과의사들에게 대장 조직을 제공해 주신 것에 감사를 표합니다. 저자들은 또한 Nicolas Barnich가 AIEC 균주 LF82를 공유해 준 것에 감사를 표합니다. 이 연구는 CRUK 보조금인 OPTIMISTIC(C10674/A27140)의 지원을 받았습니다. TG는 마리 스클로도프스카-퀴리 보조금 협정 101107988 하에 유럽연합의 Horizon 2020 연구 및 혁신 프로그램의 지원을 받았습니다. 회로도는 BioRender(https://www.biorender.com/)를 사용해 작성되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| A83-01 (TGF-&베타; 억제제) | 토크리스 | 2939 | |
| 부착성 침습성 대장균 LF82 | 니콜라 바르니히의 친절한 기부 | ||
| 고급 DMEM/F12 | 인비트로젠 | 12634-010 | |
| 비타민 A 없는 B27 | 인비트로젠 | 12587010 | |
| cDNA 키트 | 응용 생명 시스템 | 4387406 | 매뉴얼은 여기에서 확인할 수 있습니다: https://documents.thermofisher.com/TFS-Assets/LSG/manuals/MAN 0017977_highcap_cDNA_RT_UG.pdf |
| 셀 카운터 | 드노빅스 | H2796 | |
| 셀 카운터 | 라이카 | 스텔라리스 | |
| 커버슬립 24mm x 50mm | 멘젤-글란다움; 저 | BB024050S1 | |
| Cultrex 기저막 추출물(BME) | R& D 시스템즈, 바이오-테크네 | 3533-001-02 | |
| 다피 | 시그마-올드리치 | 10236276001 | |
| 일회용 멸균 메스 N° 10 | 스완 모튼 | 3033838 | |
| DMEM | 깁코 | 11965092 | |
| 피지 | 피지 | 피지는 오픈 액세스이며 여기에서 다운로드할 수 있습니다: https://imagej.net/software/fiji/downloads | |
| 글루타맥스 | 깁코 | 35050-061 | |
| hEGF | 페프로텍 | AF-100-15 | |
| 젠장 | 깁코 | 15630-080 | |
| 인바생 | Wijnakker 외, PNAS 2024에 따라 맞춤 제작됨 | ||
| 라인배커 | 서모피셔 | CM0996 | |
| LB 아가르 | 서모피셔 | CM1116 | |
| 말라세즈 챔버 | 코바 | 87144E | |
| 현미경 슬라이드 | 스카이크래프트 | 18901 | |
| 밀리 셀 볼토옴미터 (TEER 측정) | 머크 | MERS00002 | |
| 장착 매체 | 벡터 연구소 | 벡타쉴드 H-1000-10 | |
| N-아세틸 시스테인 | 시그마-올드리치 | A9165 | |
| 니코티나마이드 | 시그마-올드리치 | N0636 | |
| 노긴 UPE | IPA 테라퓨티스 | N002 | |
| 파라포르말데히드 용액 4% | 시그마-올드리치 | 1.00496 | |
| 팔로이딘 647 | 시그마-올드리치 | 65906-10NMOL | |
| 플라스미드 pMB1-스펙트-PthrC-eGFP | 애드진 | 107408 | |
| 프로스타글란딘 E2 | 토크리스 | 2296 | |
| qPCR 기계 | 바이오라드 | C1000-터치 | |
| 로 키나제 억제제 | 아브몰 | M1817 | |
| RNA 추출 키트 | 치아겐 | 74534 | 매뉴얼은 여기에서 확인할 수 있습니다: https://www.qiagen.com/us/resources/resourcedetail?id=bf60203 F-291D-48AE-8206-86B0696B28C0& lang=en |
| R-spo3 UPE | IPA 테라퓨티스 | R001 | |
| SB202190 (p38 억제제) | 시그마-올드리치 | S7076 | |
| 스펙티노마이신 | 시그마-올드리치 | S9007 | |
| 오가노이드 배양용 현탁판 | 그라이너 | 665102 | |
| SYBR 그린 | 바이오라드 | 170-8887 | 매뉴얼은 여기에서 확인할 수 있습니다: https://www.bio-rad.com/webroot/web/pdf/lsr/literature/4106212.pdf |
| 열순환기 | 바이오라드 | T100 | |
| 세포 배양 삽입물 | 트랜스웰 24w 3 & 마이크로; 모공이야, 그라이너 | 662631 | |
| 트리톤 X-100 | 시그마-올드리치 | T8787 | |
| 트립LE | 깁코, 써모피셔 사이언티브 | 12605-010 | |
| 대리인 | U-단백질 발현 | 맞춤 주문 | 그리고 nbsp; https://www.life-sciences-europe.com/organisation/protein-express-immunoprecise-group-utrecht-netherlands-west-europe-2001-30404.html |
참고문헌
- McCoy, R., et al. In vitro Models for Investigating Intestinal Host-Pathogen Interactions. Adv Sci. 11 (8), 2306727(2023).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., Zucco, F. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Gustafsson, J. K., Ermund, A., Johansson, M. E. V., Schütte, A., Hansson, G. C., Sjövall, H. An ex vivo method for studying mucus formation, properties, and thickness in human colonic biopsies and mouse small and large intestinal explants. Am J Physiol Gastrointest Liver Physiol. 302 (4), G430-G438 (2012).
- Puschhof, J., Pleguezuelos-Manzano, C., Clevers, H. Organoids and organs-on-chips: Insights into human gut-microbe interactions. Cell Host Microbe. 29 (6), 867-878 (2021).
- Clevers, H. Modeling Development and Disease with Organoids. Cell. 165 (7), 1586-1597 (2016).
- Kim, M., Fèvre, C., Lavina, M., Disson, O., Lecuit, M. Protocol for live imaging of bacteria-cell interactions in genetically modified mouse small intestinal organoids. STAR Protoc. 5 (1), 102773(2024).
- Co, J. Y., Margalef-Català, M., Monack, D. M., Amieva, M. R. Controlling the polarity of human gastrointestinal organoids to investigate epithelial biology and infectious diseases. Nat Protoc. 16 (11), 5171-5192 (2021).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunol. 7 (4), 818-828 (2014).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Pleguezuelos-Manzano, C., et al. Dual RNA sequencing of a co-culture model of Pseudomonas aeruginosa and human 2D upper airway organoids. Sci Rep. 15 (1), 2222(2025).
- Wijnakker, J. J. A. P. M., et al. Integrin-activating Yersinia protein Invasin sustains long-term expansion of primary epithelial cells as 2D organoid sheets. Proc Natl Acad Sci U S A. 122 (1), e2420595121(2025).
- Darfeuille-Michaud, A., et al. Presence of adherent Escherichia coli strains in ileal mucosa of patients with Crohn's disease. Gastroenterology. 115 (6), 1405-1413 (1998).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Pleguezuelos-Manzano, C., Puschhof, J., van den Brink, S., Geurts, V., Beumer, J., Clevers, H. Establishment and culture of human intestinal organoids derived from adult stem cells. Curr Protoc Immunol. 130 (1), e106(2020).
- Anilionyte, O., Liang, H., Ma, X., Yang, L., Zhou, K. Short, auto-inducible promoters for well-controlled protein expression in Escherichia coli. Appl Microbiol Biotechnol. 102 (16), 7007-7015 (2018).
- Chen, S., Einspanier, R., Schoen, J. Transepithelial electrical resistance (TEER): a functional parameter to monitor the quality of oviduct epithelial cells cultured on filter supports. Histochem Cell Biol. 144 (5), 509-515 (2015).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. J Vis Exp. (146), e59357(2019).
- Quereda, J. J., et al. A dual microscopy-based assay to assess Listeria monocytogenes cellular entry and vacuolar escape. Appl Environ Microbiol. 82 (1), 211-217 (2016).
- Schulte, M., Grotheer, L., Hensel, M. Bright individuals: Applications of fluorescent protein-based reporter systems in single-cell cellular microbiology. Mol Microbiol. 121 (3), 605-617 (2024).
- Sharma, A., Puhar, A. Gentamicin protection assay to determine the number of intracellular bacteria during infection of human TC7 intestinal epithelial cells by Shigella flexneri. Bio-protocol. 9 (13), e3292(2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture conditions. Cell Stem Cell. 23 (6), 787-793 (2018).
- He, G. -W., et al. Optimized human intestinal organoid model reveals interleukin-22-dependency of paneth cell formation. Cell Stem Cell. 29 (9), 1333-1345 (2022).
- Ding, L., et al. Toll-like receptor 9 pathway mediates Schlafen⁺-MDSC polarization during Helicobacter-induced gastric metaplasias. Gastroenterology. 163 (2), 411-425 (2022).
- Alonso-Roman, R., et al. Organ-on-chip models for infectious disease research. Nature Microbiol. 9 (4), 891-904 (2024).
- Jalili-Firoozinezhad, S., et al. A complex human gut microbiome cultured in an anaerobic intestine-on-a-chip. Nature Biomed Eng. 3 (7), 520-531 (2019).
- Vllahu, M., et al. Inflammation promotes stomach epithelial defense by stimulating the secretion of antimicrobial peptides in the mucus. Gut Microbes. 16 (1), 2390680(2024).
- Aguilar, C., et al. et al.Helicobacter pylori shows tropism to gastric differentiated pit cells dependent on urea chemotaxis. Nature Commun. 13 (1), 1-14 (2022).
- Llanos-Chea, A., et al. Bacteriophage therapy testing against Shigella flexneri in a novel human intestinal organoid-derived infection model. J Ped Gastroenterol Nutr. 68 (4), 509-516 (2019).
- Horsley, H., Dharmasena, D., Malone-Lee, J., Rohn, J. L. A urine-dependent human urothelial organoid offers a potential alternative to rodent models of infection. Sci Rep. 8 (1), 1238(2018).
재인쇄 및 허가
