SNRNP70 골관절염(OA) 진단 지표로서의 잠재력을 보여주며, OA 조직에서 대조군보다 발현이 일관되게 낮습니다. 또한 항염증 효과도 있을 수 있어 치료적 가능성을 시사합니다. 향후 기전적 연구는 OA 관리의 발전에 도움이 될 수 있습니다.
연구 논문
SNRNP70 골관절염에서 국소 유착 관련 징후와 연골혈구 염증과 관련이 있습니다
* These authors contributed equally
이 논문에서
요약
초록
골관절염(OA)은 연골이 점진적으로 손상되고 활막 염증이 발생하는 퇴행성 관절 질환이지만, 그 병인의 주요 분자 요인은 아직 완전히 밝혀지지 않았습니다. 여기서는 프리-mRNA 스플라이싱에 필수적인 U1 snRNP 복합체의 핵심 구성 요소인 SNRNP70가 OA 진행에 기여하는지 여부를 조사하였습니다. 10개의 공개 전사체 데이터셋 분석 결과, 정상 대조군에 비해 골관절염 연골에서 SNRNP70 현상이 일관되게 하향 조절된 것으로 나타났습니다. 메타분석에서는 OA에 대한 우수한 진단 정확도를 보여주었으며, 통합 AUC는 0.92였습니다. 인터루킨-1β(IL-1β)로 자극된 1차 쥐 연골세포에서는 염증성 상태에서 SNRNP70 발현이 억제되었습니다. SNRNP70 의 강제 발현은 염증성 매개체(IL-6 및 MMP-13)의 생성을 감소시켰을 뿐만 아니라 주요 세포외기질(ECM) 구성 요소(ACAN 및 COL2A1)를 복원하고 연골세포 이동과 상처 치유를 촉진했습니다. 피어슨의 상관관계와 이어지는 KEGG 농축은 국포 부착 신호가 SNRNP70 조절과 관련된 경로임을 시사했다. 구조 실험은 SNRNP70 이 이 경로를 활성화함으로써 연골 복원 능력을 적어도 부분적으로 향상시킨다는 생각을 뒷받침했습니다. 이 결과들은 SNRNP70 가 염증성 연골 기능과 연골 항상성의 이전에 인식되지 않은 조절 역할을 할 수 있음을 시사합니다. 또한 이들은 스플라시오좀 활성과 국소 부착 매개 기질 합성 간의 기전적 연관성을 제기하여, SNRNP70 를 골관절염 진단 지표 또는 치료 표적 후보로서 추가 평가할 필요성을 제시합니다.
서론
골관절염(OA)은 주로 65세 이상 사람들에게 흔히 발생하는 관절 질환으로, 전 세계 인구의 약 7%에 영향을 미친다 1,2. 놀랍게도 1990년부터 2019년 사이에 전 세계 OA 유병률은 무려 113.25%나 급증하여 2억 4,751만 건에서 5억 2,781만 건으로 증가했습니다. OA는 주로 관절 조직 내에서 은밀하게 진행되는 퇴행성 변화가 특징이며, 특히 연골 손상과 활막 염증이 두드러집니다 4,5,6. 특히 기계적 과부하와 시간의 끊임없는 변화가 발병 기전에 가장 두드러진 두 가지 위험 요인으로 확인되었습니다 7,8. 또한, 점점 더 많은 연구가 반월상연월판 퇴행이 골관절9의 복잡한 병리에서 핵심 요소로서 중요한 역할을 한다는 점을 강조하고 있습니다. 이전 연구들은 반월상 연골 병변이 골관절염 환자의 68%에서 90%에 영향을 미친다는 것을 설득력 있게 입증했습니다10,11.
분자 수준에서 점점 더 많은 증거가 OA가 단순히 생체역학적 스트레스와 노화의 결과가 아니라, 유전자 조절과 전사 후 조절의 복잡한 변화에 의해 유발되는 질병임을 시사합니다 12,13,14. 이러한 메커니즘 중에서, 스플라시오좀은 다양한 질병 맥락에서 점점 더 주목받고 있습니다. 흥미롭게도, 염증의 발병기전에서 광범위한 연구의 중심이 되었음에도 불구하고, 골관절염에서 스플라시오좀의 역할은 여전히 현저히 충분히 연구되지 않았습니다15, 16, 17. 본질적으로 스플리시오좀은 단백질 매개 금속 리보자임으로 개념화할 수 있습니다18,19. 이러한 메커니즘 중 RNA 스플라이싱은 연골세포 표현형과 ECM 항상성의 중요한 결정 요인으로 부상하고 있습니다. 정밀한 스플라이싱은 연골 완전성에 필수적인 구조 및 신호 단백질의 정확한 발현을 보장하는 반면, 비정상적인 스플라이싱은 ECM 회전을 방해하고 이화 경로를 촉진하며 연골 퇴화를 가속화할 수 있습니다 20,21,22.
최근 연구들은 스플라시오좀 단백질이 관절 조직 항상성의 핵심 조절자임을 강조했으나, 이 단백질들이 골관절염 병인기전에서 차지하는 역할은 아직 거의 탐구되지 않았습니다23. 특히, U1 소형 핵핵단백질 복합체의 핵심 구성 요소인 SNRNP70는 선전 mRNA 처리 중 5′ 접합 부위의 인식을 조절하여 특정 엑손의 포함 또는 제외에 영향을 미친다24,25. SNRNP70 조절 장애는 다양한 병리학적 상태와 관련이 있는 것으로 알려져 있으나, 연골 퇴행에 대한 기여는 이전에 규명된 적이 없습니다. 스플라시오좀 매개 조절의 잠재적 표적 중 하나는 초점 부착 키나아제(FAK)로, 이는 연골구 부착, 세포골격 역학, 생존 및 기계적 전달을 조절하기 위해 기계적 및 생화학적 신호를 통합하는 중심 신호 분자입니다26. FAK 활성 증가는 국소 부착 신호 증가와 연관되어 있으며, 이는 응집체(ACAN)와 콜라겐 II 알파 1(COL2A1) 등 주요 연골 특이 단백질의 ECM 합성과 상향 조절을 촉진합니다27,28. 이 단백질들은 연골 구조와 기능을 유지하는 데 필수적이며, 이들의 하향 조절은 골관절염 진행의 특징입니다.
OA의 전사 및 후생유전학 연구가 진전되었음에도 불구하고, 스플리시오좀 매개 FAK 조절이 국소 부착 신호와 ECM 대사를 조절하는 역할은 여전히 불확실하다. 이러한 관찰을 바탕으로 SNRNP70 FAK 대체 접합과 하류의 국소 부착 신호를 조절함으로써 연골세포 행동과 ECM 항상성에 영향을 줄 수 있다고 추론되었습니다. 이 아이디어를 검증하기 위해 첫 번째 질문은 OA에서 SNRNP70 표현이 변경되는지 여부였으며; 진단 지표로서의 잠재력을 평가하고, 연골 세포에서 염증 반응 및 국소 유착 관련 경로와의 가능한 연관성을 탐구하였습니다.
프로토콜
동물 연구 프로토콜은 광시 의과대학 윤리위원회와 광시 의과대학 제1부속병원(프로토콜 코드 202109001, NO.2022-KY-E-252)의 승인을 받았습니다.
주의: 모든 절차는 기관 및 국가 동물 관리 지침을 따라야 합니다. 훈련된 인원은 동물이나 샘플을 다룰 때 PPE(장갑, 마스크, 실험복)를 착용해야 합니다. 수술은 적절한 마취와 수술 후 모니터링이 필요합니다. 부작용(출혈, 감염, 행동 변화)은 신속히 보고하세요. 사체와 오염된 물질은 적절히 처리하세요. 규정 준수를 위해 정기적인 시설 점검을 실시하세요. 이 연구에 사용된 동물, 시약, 장비의 상업적 세부사항은 재료표에 나열되어 있습니다.
환자 및 유전자 발현 데이터셋
OA에서 SNRNP70 의 발현 패턴을 조사하기 위해, 공개된 RNA-시퀀싱(RNA-seq) 및 마이크로어레이 데이터셋을 Gene Expression Omnibus(GEO) 데이터베이스에서 체계적으로 검색하였다(https://www.ncbi.nlm.nih.gov/geo/)21. 검색 전략에는 "SNRNP70 OR RPU1 또는 Snp1 또는 U1AP 또는 U170K OR U1RNP 또는 RNPU1Z 또는 SNRP70 또는 U1-70K"와 "OA"가 결합되어 포함되었습니다. 포함 기준은 다음과 같이 정의되었습니다: (i) 인간 샘플에서 도출된 데이터셋; (ii) 류마티스 관절염 및 기타 염증성 관절 질환은 제외된 골관절염에 특화된 연구; (iii) OA와 정상 대조군(NC) 그룹 모두에서 최소 세 개의 독립적인 생물학적 복제체가 존재하여 표준화된 평균 차이(SMD) 계산이 가능함을 의미합니다. 데이터 처리 워크플로우: 적격 데이터셋을 식별한 후, 원시 발현 데이터와 해당 임상 메타데이터를 다운로드했습니다. 마이크로어레이 데이터셋의 경우, 프로브 수준 데이터는 강인한 다중 배열 평균(RMA) 알고리즘을 사용해 정규화되었고, 프로브는 플랫폼 주석 파일을 사용해 공식 유전자 기호로 주석을 달았습니다. RNA-seq 데이터셋의 경우, 원시 수치를 백만 당 전사체(TPM) 값으로 변환한 후 log2 변환하여 데이터셋 간 비교 가능성을 보장했습니다. 여러 프로브가 동일한 유전자에 매핑되었을 때, 샘플 간 발현 분산이 가장 큰 프로브가 유지되었습니다. 품질 관리 및 조화: 서로 다른 연구에서 배치 효과를 최소화하기 위해 "sva" R 패키지의 ComBat 함수를 적용하였습니다. 배치 효과 제거의 효과를 평가하기 위해 교정 전후로 주성분 분석(PCA)이 수행되었습니다. 품질이 낮거나 주석이 불완전하거나 OA와 NC 그룹을 구분하지 못한 데이터셋은 추가 분석에서 제외되었습니다.
골관절염과 정상 연골 조직에서 차별발현 SNRNP70 확인
OA와 정상 연골(NC) 조직 간 SNRNP70 의 차이 발현을 평가하기 위해 다단계 분석 접근법이 사용되었습니다. 먼저, SNRNP70 의 표현 데이터를 이용 가능한 데이터셋에서 추출했습니다. OA와 NC 그룹 간의 통계적 비교를 학생 t-검정을 사용하여 평균 발현 수준이 유의미하게 달라졌는지 확인하였습니다. SNRNP70의 판별력을 추가로 평가하기 위해 GraphPad Prism 8.0과 Sangerbox 플랫폼(http://vip.sangerbox.com/)을 사용해 수신기 운전 특성(ROC) 곡선을 생성했습니다. 곡선 아래 면적(AUC)은 SNRNP70 발현 수준의 진단 효율성을 정량화하기 위해 계산되었습니다.
다음으로, Stata 14.0을 사용하여 여러 데이터셋에 걸쳐 결과를 통합하는 메타분석을 수행했습니다. 통계적 이질성은 코크란 Q 검정과 I2 통계량을 사용하여 평가하였습니다. 이질성이 낮을 때(p > 0.01, I2 < 50%)에는 고정 효과 모델이 적용되었고; 그렇지 않으면 무작위 효과 모델이 채택되었습니다. 표준화 평균차(SMD)와 이에 대응하는 95% 신뢰구간(CI)을 산출하여 OA와 NC 조직 간의 차등 SNRNP70 발현을 정량화하였습니다. 진단 정확성을 위해 Stata의 Midas 모듈을 사용하여 진단 메타분석이 수행되었습니다. 이 분석은 SNRNP70에 대해 민감도, 특이성, 양성우도비(PLR), 음성우도비(NLR), 진단오디비(DOR)를 통합하여 추정하였다. 또한, 진단 성능의 전반적인 평가를 제공하기 위해 요약 수신기 작동 특성(sROC) 곡선이 구축되었습니다. 마지막으로, 개별 데이터셋을 순차적으로 제외하여 통합 결과의 견고성과 안정성을 평가하는 민감도 분석이 수행되었습니다. 잠재적 출판 편향은 Deeks의 깔때기 플롯 비대칭 검정을 사용하여 평가되었다. 이 통합 분석 틀을 사용하여 골관절염 조직과 NC 조직의 SNRNP70 발현 패턴 및 진단 잠재력을 체계적으로 평가하였다.
세포 분리 및 배양
1차 연골세포는 출생 후 2일차 스프래그-도울리 쥐의 관절 연골에서 분리되었습니다. 각 분리에는 총 6마리의 신생아 쥐가 사용되었습니다. 동물들은 출생 후 초기 단계에서 수집되었기 때문에 성별은 결정되지 않았다. 각 독립 세포 준비에 대해, 여섯 대의 쥐 모두의 연골 조직을 채취하여 배양 전에 모았습니다. 각각의 독립적으로 분리된 연골세포 준비물은 별도의 동물 세트에서 유래했으며, 하나의 생물학적 복제체로 취급되었습니다. 동일한 세포 준비물에서 반복 웰 또는 qRT-PCR 반응을 포함한 기술적 복제는 독립적인 생물학적 복제로 간주되지 않았습니다.
간단히 말해, 신생아 쥐들은 멸균 환경에서 안락사되었고, 무릎 관절을 해부하여 관절 연골이 노출되었습니다. 연골 조직은 미세수술용 가위로 연골하 뼈에서 신중하게 분리되어 약 1 mm³ 크기의 조각으로 잘게 만든 후 효소로 순차적으로 소화되었습니다. 조직 조각은 먼저 0.25% 트립신-EDTA와 37°C에서 30분간 배양하여 잔여 결합 조직을 제거하였습니다. 인산염 완충 식염수로 세척한 후, 남은 조각들은 0.2% 콜라게나제 II형과 함께 37°C에서 4–6시간 동안 37°C에서 부드러운 교반을 통해 소화하였습니다. 결과 세포 부탁액은 70 μm 세포 체로를 거쳐 300 × g에서 5분간 원심분리한 후, 10% 태아 소 혈청, 100 U/mL 페니실린, 100 μg/mL 스트렙토마이신을 보충한 완전한 DMEM에 재현탁했습니다. 세포는 배양용 플라스크에 씨앗을 뿌리고 5% CO₂를 포함한 가습 인큐베이터에서 37°C에서 유지되었습니다. 매체는 2일에서 3일마다 교체되었습니다. 탈분화를 최소화하기 위해 후속 실험에서는 1번 또는 2번 연골세포만 사용되었습니다.
연골세포의 정체와 순도는 실험 사용 전에 확인되었습니다. 형태학적으로, 1차 세포는 위상 대비 현미경 아래에서 전형적인 다각형 또는 자갈과 유사한 연골세포의 모습을 보였습니다. 분자 수준에서는 연골 관련 마커(COL2A1, ACAN을 포함)의 발현을 통해 연골 혈구 정체를 웨스턴 블롯을 통해 확인되었습니다. 시험관 염증 모델에서는 1차 연골 세포를 10 ng/mL 용량의 재조합 쥐 인터루킨-1β(IL-1β)로 48시간 자극하였다. 동일한 조건에서 배양된 처리되지 않은 세포가 정상 대조군으로 작용했습니다. SNRNP70 과발현 실험에서는 독립적인 생물학적 준비물에서 온 연골세포를 별도로 형질전환하였고, 각 생물학적 복제체는 형질전환, IL-1β 자극, RNA/단백질 추출, 통계 분석 과정을 거쳐 독립적으로 처리되었습니다.
실시간 정량 PCR(qRT-PCR)
총 RNA는 RNAfast200 키트를 사용하여 아결속 연골 배양(~80% 합류도)에서 분리하였습니다. RNA 순도는 NanoDrop 2000으로 평가되었으며, A260/280 비율이 1.8–2.0인 샘플만 받았고, 1% 아가로스 겔 전기영동으로 무결성이 확인되었습니다. 첫 번째 가닥 cDNA는 qPCR RT 키트를 사용해 총 RNA 1 μg에서 20 μL 반응에서 무작위 프라이머와 dNTP를 포함한 20 μL 반응에서 역전사되었습니다. 역전사의 열 프로파일은 30분 동안 42 °C, 이어서 5분 동안 95 °C였습니다. qPCR은 실시간 PCR 시스템에서 SYBR Green 기반 프리믹스를 사용해 수행되었습니다. 각 20 μL 반응은 10 μL SYBR 그린 마스터 믹스, 각 0.5 μL 순방향 및 역방향 프라이머(10 μM), 2 μL cDNA, 7 μL 무 뉴클레아제 물로 구성되었습니다. 사이클 조건은 95°C에서 30초, 95°C에서 5초, 60°C에서 30초간 사이클이었습니다. 증폭 후 단일 제품 특이성을 검증하기 위해 용융 곡선 분석이 수행되었습니다. GAPDH 가 내부 기준 역할을 했고, 상대 표현식은 2−ΔΔCt 방법으로 계산되었습니다. 반응은 세 개의 독립적인 생물학적 복제체로 3회로 수행되었습니다. 프라이머 서열은 표 1에 나열되어 있습니다.
서부 블롯
IL-1β 처리 및 과발현 SNRNP70 후 연골세포에서 ACAN, COL2A1, MMP13의 단백질 발현을 평가하였다. 세포는 얼음처럼 차가운 인산염 완충 식염수(PBS)로 두 번 세척한 후, 프로테아제와 인산효소 억제제가 포함된 RIPA 버퍼에 용해하였습니다. 용해액은 얼음 위에서 30분간 주기적으로 소용돌이치며 배양한 후, 12,000 × g 에서 4°C에서 15분간 원심분리했습니다. 제거된 상원액의 단백질 농도는 BCA 키트를 사용해 측정하였습니다. 동일한 양의 단백질(레인당 30 μg)을 10% SDS-PAGE로 분리하여 습식 전달을 통해 PVDF 막으로 전달했습니다. 막은 TBST에서 5% 무지방 우유로 1시간 동안 차단한 후, 4°C에서 ACAN(1:1000), COL2A1(1:1000), MMP13(1:1000)에 대한 1차 항체로 밤새 탐침하였다. 세 번의 TBST 세척(각각 10분) 후, 막을 HRP 결합 2차 항체(1:5000)와 실온에서 1시간 동안 배양하였습니다. 신호는 ECL 시약을 사용하여 개발되었으며 ChemiDoc XRS+ 시스템에서 포획되었습니다. ImageJ를 이용한 밴드 밀도측정이 수행되었고, 모든 표적 단백질 신호는 GAPDH로 정규화되어 하중을 조절하였습니다. 데이터는 대조군 과 비교한 상대적 단백질 수준으로 제시됩니다.
형질전환
연골세포는 배양 합류율이 약 80%에 도달하면 SNRNP70 과발현 플라스미드(OE-SNRNP70)로 형질전환되었습니다. 형질전환을 위해 세포는 6웰 플레이트에 2× 10⁵ 세포를 입혀 표준 배양지(DMEM에 10% 태아 소 혈청과 1% 페니실린/스트렙토마이신 보충)에서 37°C, 5% CO₂에 접착하도록 하룻밤 동안 두었습니다. 형질전환은 제조사의 지침에 따라 LipoFiter 3.0을 사용해 수행되었습니다. 간단히 말해, 웰당 2–3 μg의 플라스미드 DNA를 100 μL 무혈청 배지에 희석하고 적절한 양의 지질 시약과 혼합했습니다. DNA-지질 복합체는 상온에서 15–20분간 배양하여 복합체 형성을 도왔고, 이후 신선하고 혈청이 없는 배지에서 연골세포가 포함된 각 웰에 부드럽게 첨가되었습니다. 6시간 후에는 세포독성을 줄이기 위해 완전 배양지로 교체했습니다.
형질전환 효율과 SNRNP70 발현은 형질전환 후 48–72시간 동안 평가하였습니다. SNRNP70 mRNA 수준은 정량적 실시간 PCR(qRT-PCR)으로 측정되었으며, 내부 대조군은 GAPDH였습니다. 단백질 발현은 제조사 프로토콜에 따라 Simple Western Automated Western Blot System을 사용하여 평가되었습니다. 간단히 말해, 세포 용해액을 준비하고 단백질 농도를 측정한 후 샘플을 모세관 카트리지에 적재하여 자동 분리 및 항SNRNP70 항체로 면역 검출을 수행했습니다. 형질전환 효율은 OE SNRNP70 형질전환 세포의 SNRNP70 발현량과 빈 벡터를 형질전환한 대조 세포의 발현을 비교하여 계산하였습니다.
면역형광
면역형광을 이용해 IL-1β 자극 후 OE-SNRNP70 연골세포에서 IL-6 및 MMP-13 단백질 농도를 조사하였습니다. 간단히 말해, 세포는 24웰 플레이트의 멸균 유리 커버슬립에 시딩되어 표준 조건에서 70–80% 합류율에 도달할 때까지 배양했습니다. 그 후 4% 파라포름알데히드로 상온에서 15분간 고정한 후 PBS로 세 번 세척했습니다. 투과화를 위해 0.1% Triton X-100을 PBS에 실온에서 10분간 적용하였다. 비특이적 결합 부위는 5% 소 혈청 알부민(BSA)을 PBS에서 1시간 실온에서 배양하여 차단하였다.
차단 후, 세포는 IL-6와 MMP-13에 대한 1차 항체(1:200 비율로 1% BSA/PBS에 희석됨)와 함께 4°C에서 하룻밤 배양하였습니다. 결합되지 않은 1차 항체를 제거하기 위해 PBS로 세 차례 세척한 후, 세포는 실온에서 어두운 환경에서 1시간 동안 종 특이적 형광포자 결합 2차 항체(희석된 1:500)와 함께 배양했습니다. 핵은 4′,6-디아미디노-2-페닐린돌(DAPI)으로 5분간 교환되었다. 커버슬립은 안티페이드 마운팅 매체와 함께 유리 슬라이드에 장착되었고, 형광 현미경으로 20× 배율로 형광 이미지를 촬영했습니다. 정량 분석을 위해 샘플당 무작위로 선정된 10개의 세포를 ImageJ에서 분석하여 표적 단백질의 형광 강도를 측정하였습니다. 각 그룹별로 평균 형광 강도를 계산하여 통계적 비교에 사용하였습니다.
세포 긁기 상처 봉합 분석
다양한 치료 조건에서 연골교세포가 인공 상처 간격을 닫는 능력을 평가하기 위해 스크래치 상처 봉합 검사가 수행되었습니다. 1차 연골 세포는 6웰 플레이트에 1× 10⁵ 세포 밀도로 시딩되어 약 90% 합류점에 도달할 때까지 배양했습니다. 멸균된 200 μL 피펫 팁을 사용해 세포 단층에서 선형 스크래치를 생성했습니다. 분리된 세포는 PBS로 두 번 세척하여 제거한 후, 해당 처리가 포함된 신선한 완전 배양지를 추가했습니다. 세포는 정상 대조군, IL-1β 처리군, IL-1β 및 SNRNP70 과발현군에 배정되었습니다. 같은 상처 부위의 이미지는 역현미경으로 긁은 후 6시간 및 12시간 시점에 촬영되었습니다(보조 그림 1). 상처 봉합은 0시점에서 초기 상처 면적에 대한 상처 면적 감소 비율로 계산되었으며, 다음 공식을 사용했습니다:
상처 봉합 (%) = [(0시간 시점의 상처 부위 - 지정된 시점의 상처 부위) / 0시의 상처 부적] × 100. (1)
통계 분석
모든 정량적 데이터는 별도의 언급이 없는 한 세 개의 독립적인 생물학적 복제(n = 3)의 평균 ± 표준편차(SD)로 제시됩니다. 통계 분석은 GraphPad Prism 8.0을 사용하여 수행되었습니다. 두 그룹 간 비교에는 쌍이 없는 학생 t-검정을 사용했습니다. 통계적 유의성은 다음과 같이 나타났습니다: *p < 0.05, **p < 0.01.
결과
SNRNP70 관절강 조직에서의 발현
SNRNP70의 OA에서의 역할을 포괄적으로 조사하기 위해, 엄격한 포함 및 제외 기준을 충족하는 10개의 공개 RNA-seq 및 마이크로어레이 데이터셋을 체계적으로 선별하였습니다(표 2). SNRNP70 발현 수준은 이 데이터셋 전반에서 신중하게 추출 및 분석되었습니다. 특히 10개 코호트 중 6개 코호트에서 OA 조직에서 SNRNP70 발현이 정상 <대조군에 비해 유의미하게 하향 조절되어 전사 억제 패턴이 일관된 것으로 나타났습니다(그림 1).
주목할 점은, 세 개의 데이터셋(GSE114007, GSE169077, GSE19060)에서 OA와 대조군 표본 간에 통계적으로 유의미한 차이를 보여주지 못했다는 것입니다. 이러한 불일치를 무시하는 대신, 배치 보정과 데이터셋 통합 전략을 활용하여 분석의 견고성과 신뢰성을 높였습니다. 구체적으로, 동일한 시퀀싱 플랫폼에서 파생된 데이터셋을 병합하여 통계적 검정력을 높였습니다. 예를 들어, GSE114007는 GSE89408와 결합되어 GSE114007-89408을 생성했고, GSE169077, GSE12021, GSE55457은 GSE169077-12021-55457로 합쳐졌습니다(그림 1). 이 통합적 접근법은 연구 간 변동성을 최소화하고 결과의 재현성을 강화했습니다. 요약하자면, 인간 데이터셋 분석 결과 OA 관절 조직에서 SNRNP70 의 지속적인 하향 조절이 나타나 진단 바이오마커로서의 잠재력을 시사합니다. 그러나 이 감소가 인간에서 스플라이싱 조절 이상이나 연골 퇴행을 직접적으로 유발하는지는 불분명하며, 가능하다면 인간 조직 모델에서 검증을 기다리고 있습니다.
SNRNP70의 임상 진단 능력
OA에서 SNRNP70 의 진단 가치를 엄격히 평가하기 위해, 165개의 OA 샘플과 125개의 정상 대조군 데이터를 통합한 포괄적인 메타분석이 수행되었습니다. 이는 알려진 바에 따르면 골관절염에서 SNRNP70 를 잠재적 진단 바이오마커로 체계적으로 평가하는 것입니다. 이질성 분석 결과 데이터셋 간에 상당한 이질성이 나타났습니다(I2 = 72.9%; p = 0.001), 따라서 무작위 효과 모델이 필요합니다. 통합 분석은 정상 대조군에 비해 OA 조직에서 SNRNP70 발현이 견고하고 일관되게 감소하는 것을 보였으며, 표준화 평균 차이(SMD)는 -1.07(95% 신뢰구간: -1.34에서 -0.80)입니다(그림 2A–B). 발현 프로파일링을 넘어 SNRNP70 의 진단 성능도 추가로 평가되었습니다. 통합 진단 검사 결과는 민감도가 0.82(95% 신뢰구간: 0.57–0.94)와 특이도가 0.88(95% 신뢰구간: 0.73–0.95)로 나타났으며, 이는 강력한 구별력을 강조했다(그림 3A). 일관되게, 요약 수신자 작동 특성(SROC) 곡선은 곡선 아래 면적(AUC)이 0.92(95% 신뢰구간: 0.90–0.94)를 보여주었으며, 이는 골관절염 환자와 건강한 개인을 구분하는 데 있어 SNRNP70 의 높은 정확성을 더욱 강조합니다(그림 3B).
이 결과의 견고성을 보장하기 위해 민감도 분석을 수행하여 개별 데이터셋의 순차적 제외가 전체 효과 크기에 실질적인 변화를 주지 않았음을 확인했습니다(그림 4A). 중요하게도, Deek의 깔때기 플롯 비대칭성 검정(p = 0.41)과 Egger 검정 모두 유의미한 출판 편향이 없음을 보여주어 결과의 신뢰성을 강화했습니다(그림 4B). 이 데이터를 종합해 보면, OA에서 SNRNP70 발현이 감소한다는 점이 진단 바이오마커로 작용할 수 있음을 시사합니다. 그럼에도 불구하고, 데이터셋 간 이질성과 독립적인 검증 코호트의 부재는 주의가 필요합니다. 따라서 이 결과는 예비적인 것으로 간주되며, 골관절염 진단 및 관리에서 SNRNP70 의 임상적 유용성을 명확히 하기 위한 추가 연구가 진행될 때까지 기다리고 있습니다.
SNRNP70 골관절염에서 염증 유전자 발현의 조절
골관절염 진행 중 염증 신호전달에서 SNRNP70 의 조절 역할을 규명하기 위해, 초기에는 연골세포를 잘 알려진 염증성 사이토카인인 IL-1β에 노출시켜 시험 관 내 OA 모델을 구축하였습니다. IL-1β 자극 48시간 후 수행된 qRT-PCR 분석은 NC 그룹에 비해 SNRNP70 mRNA 수치가 유의미하게 하향 조절된 것으로 나타났습니다(그림 5). 염증 상태에서 SNRNP70 발현 억제는 공개된 OA 데이터셋의 전사체 데이터와 일치하여, OA 관련 염증에서 SNRNP70 가 일관되게 억제된다는 강력한 증거를 제공하였습니다. SNRNP70 발현 복원이 연골 세포 염증 표현형을 조절할 수 있는지 더 연구하기 위해, SNRNP70 과발현 플라스미드(oe-SN)를 이용해 세포를 형질전환하였습니다. 놀랍게도, SNRNP70 의 발현 강제는 전사 및 번역 변화 모두에서 IL-1β 유발 염증을 상당히 완화시켰습니다. 구체적으로, qRT-PCR은 OE-SN 그룹에서 IL-1β 처리 대조군에 비해 IL-6 및 MMP-13 mRNA 수치가 크게 감소하는 것을 보였습니다(그림 5).
이러한 분자 연구 외에도, 면역형광 염색은 SNRNP70의 항염증 잠재력을 세포 세포에 직접 입증하는 증거를 제공했습니다. IL-1β 처리 세포에서 IL-6는 활성화된 염증 상태와 일치하는 뚜렷한 세포질 축적을 보였다. 특히 SNRNP70 의 과발현으로 인해 IL-6 세포질 염색 강도가 현저히 감소하여 세포 수준에서 염증 반응을 역전시키는 능력을 강조했습니다(그림 6A). MMP-13에서도 유사한 패턴이 관찰되었는데, IL-1β 처리는 발현을 증강했으나, 과발현 SNRNP70 MMP-13의 위치와 신호 강도는 현저히 억제되었습니다(그림 6B).
주로 구조적 연골 손상에 초점을 맞춘 이전 연구들과 달리, 쥐 연골 세포의 시험관 내 데이터는 SNRNP70 가 염증성 유전자 발현을 조절하는 역할을 한다는 것을 시사합니다. 특히, 이 쥐 모델에서 IL-6와 MMP-13을 포함한 SNRNP70 감쇠된 IL-1β 유도 염증 매개 물질의 강제 발현을 특징으로 합니다. 중요한 점은, 이 실험들이 쥐 염증 모델에서만 수행되었기 때문에 인간 데이터셋의 결과를 직접적으로 재현하지 않는다는 것입니다. 그럼에도 불구하고 이 결과들은 SNRNP70 가 단순한 접합 인자뿐만 아니라 염증의 조절 요인으로도 기능할 수 있음을 시사하는 개념적 틀을 제시하며, 이는 인간 조직에서 더 깊이 탐구할 가치가 있는 가능성입니다.
OA에서 SNRNP70 관련 경로의 식별
골관절염에서 SNRNP70 발현과 관련된 생물학적 경로를 탐구하기 위해, 피어슨 상관분석 분석은 GSE98918, GSE117999, GSE129147, GSE51588, GSE169077_12021_55457, GSE114007-89408, GSE82107-19060 공개 전사체 데이터셋에서 별도로 수행되었습니다. 절대 상관계수(|r|)가 0.8 > p < 0.05인 유전자는 각 데이터셋에서 SNRNP70 발현과 유의한 상관관계를 보였다. 모든 데이터셋에서 상관된 유전자들의 연합이 생성되어 929개의 SNRNP70 관련 유전자가 생성되었습니다.
이후 클러스터프로파일러 패키지를 사용하여 KEGG 경로 농축 분석이 수행되었으며, 벤자미니-호흐버그 방법(Benjamini–Hochberg method)을 통해 다중 테스트를 위해 조정되었습니다. 분석 결과 확인된 유전자들이 국부 부착 경로를 포함한 여러 경로에서 유의미하게 풍부해졌음이 드러났습니다(그림 7). 이 신호 전달 연쇄 반응은 연골 세포 부착, 기계전달, ECM 재형성을 조절하는 것으로 알려져 있으며, 이는 모두 골관절염 진행의 핵심 과정입니다. 이 결과들은 OA 데이터셋에서 SNRNP70 발현과 국소 부착 관련 유전자 발현 서명 간의 연관성을 시사합니다.
SNRNP70 국소 유착 경로를 통해 염증성 연골 수리를 매개합니다
염증성 연골세포의 상처 치유 능력에서 SNRNP70의 역할을 평가하기 위해, 1차 연골세포를 이용한 스크래치 상처 봉합 검사가 수행되었습니다. 세포는 정상 대조군, IL-1β 처리군, IL-1β 및 SNRNP70 과발현군 세 그룹으로 배정되었습니다. IL-1β 자극은 정상 대조군에 비해 긁힌 틈 닫힘 정도를 감소시켜, 염증성 상태에서 상처 치유 능력 저하를 나타냈다. 반면, SNRNP70 과발현은 IL-1β 처리 연골세포에서 IL-1β 처리 단독 치료에 비해 스크래치 갭 폐쇄를 촉진했습니다(그림 8A). 종합적으로 이 결과들은 SNRNP70 과발현이 IL-1β 처리된 연골세포의 상처 폐쇄 반응을 증진시킨다는 것을 시사합니다.
분자 수준에서 웨스턴 블롯 분석은 IL-1β 처리가 연골 기질 단백질인 ACAN과 COL2A1의 발현을 억제하는 반면, 분해성 효소인 MMP13의 상향 조절을 촉진함이 입증되었습니다. 중요하게도, SNRNP70 과발현은 ACAN 과 COL2A1 수치를 회복했을 뿐만 아니라 MMP13의 현저한 하향 조절을 하여 ECM의 무결성을 유지했습니다(그림 8B). 기계적으로, 시험관 내에서 SNRNP70 의 유익한 효과는 국소 부착 신호 경로의 활성화와 밀접하게 연관되어 있었습니다.
종합적으로 인간 데이터셋 분석은 SNRNP70 가 OA에서 하향 조절되며, 그 발현이 국소 부착 경로에 관여하는 유전자와 상관관계가 있음을 보여줍니다. IL-1β 자극에 노출된 쥐 연골 세포에서는 SNRNP70 의 강제 발현이 염증 세포 수리와 ECM 합성을 촉진하며, 국소 부착 신호 전달과도 연관됩니다. 쥐 모델에서의 이러한 시험관 내 관찰은 시사가 되지만, 인간 데이터셋에서 도출된 결과를 직접적으로 뒷받침하지는 못합니다. 그럼에도 불구하고, 이러한 수렴하는 증거들은 SNRNP70 가 국소 부착 신호를 통해 인간 OA 병인에 기여한다는 모델을 지지하며, 이는 현재 인간 조직이나 인간과 관련된 생 체 내 모델에서 확정을 기다리고 있는 가설이다.
데이터 가용성:
이 연구에서 사용되고 분석된 데이터셋은 GEO 데이터셋(https://www.ncbi.nlm.nih.gov/geo/)에서 확인할 수 있습니다. 이 연구 중 생성된 모든 데이터는 원고 내에서 완전히 제시되고 논의되었습니다. 이 연구의 원시 데이터는 보충 문서로 업로드됩니다.
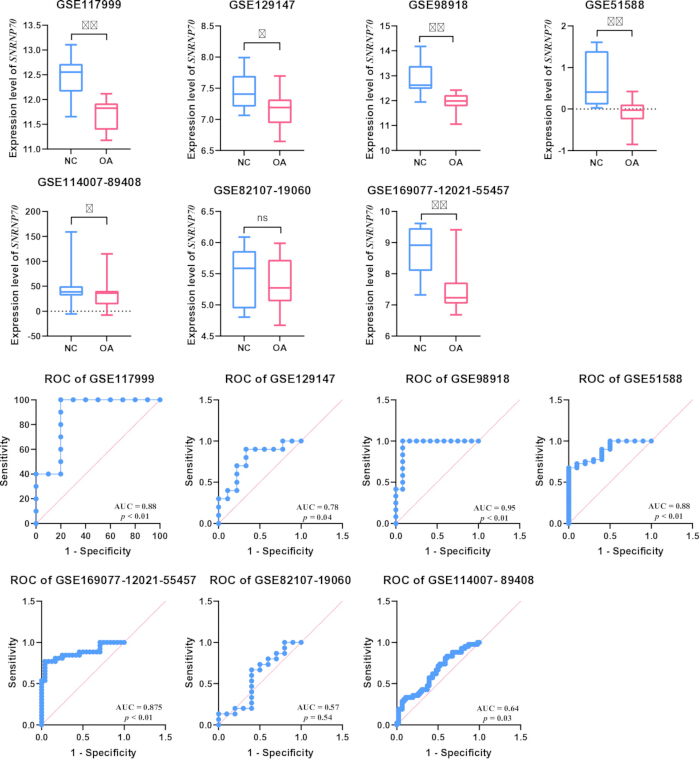
그림 1: 7개 연구의 학생들의 t 검정과 ROC 곡선. 결과는 GSE117999, GSE129147, GSE98918, GSE51558, GSE114007-89408, GSE169077-12021-55457에서 골관절염 조직에서 SNRNP70 발현이 NC 조직보다 낮았음을 시사했으며(p < 0.05), ROC AUC는 높은 타당성을 나타냈다. p < 0.05 (*), p < 0.01(**). 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
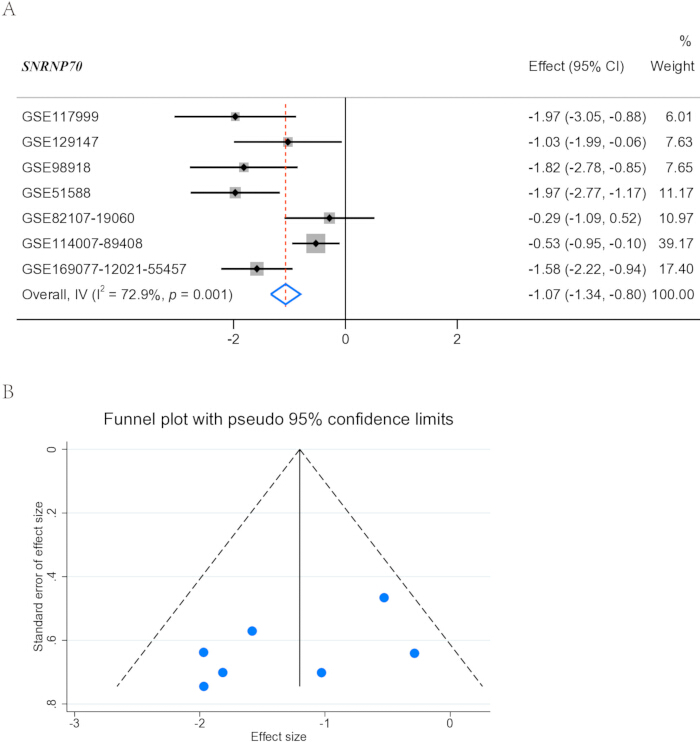
그림 2: 7개 데이터셋에 대한 메타분석. (A) 결과는 I2 = 72.9%, p = 0.001, 전체 SMD는 -1.07임을 보여주었다. (B) 메타분석에서 퍼널 다이어그램이 출판 편향 여부를 평가하였다. 기본적으로 대칭적임이 밝혀졌습니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
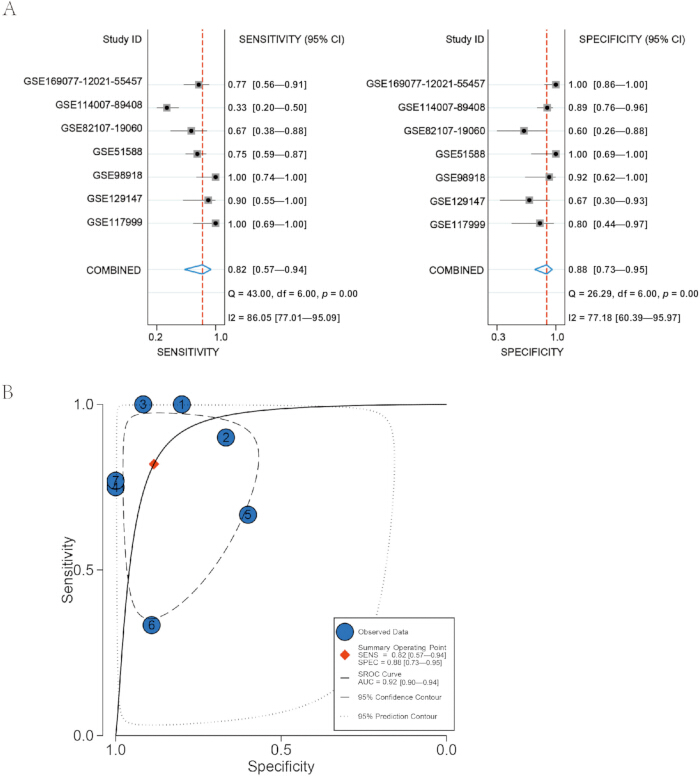
그림 3: SNRNP70의 진단 성능. (A) Q-검정 결과 민감도와 특이도는 각각 p값< 0.05, I2 값은 각각 86.05%와 77.18%로 상당한 이질성을 나타냈다. 연구는 민감도가 0.82, 특이도가 0.88로 나타났으며, 이는 주목할 만한 성능을 강조했습니다. (B) sROC의 AUC는 0.92로, 연구에 대한 높은 신뢰도를 나타냈다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
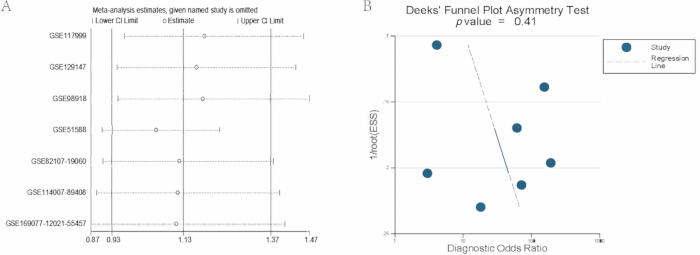
그림 4: 영향 분석과 딕의 깔때기 플롯. (A) 영향 분석 결과, 개별 연구를 제외해도 전체 결과에 현저한 영향을 미치지 않았다. (B) 7개의 연구에서 모든 결과는 유의미한 편향이 없음을 보였으며(p = 0.41), 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
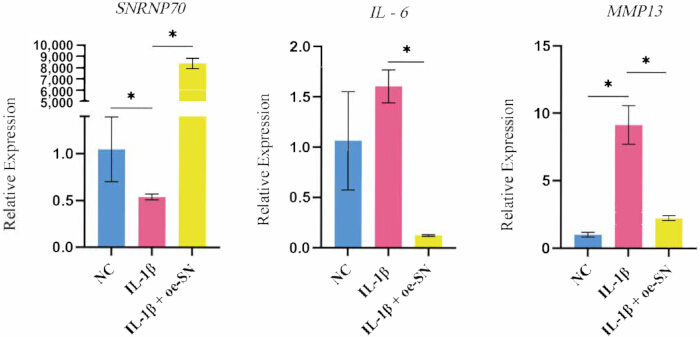
그림 5: qRT-PCR 결과는 IL-1β 처리 후 연골 세포에서 SNRNP70 발현이 유의미하게 감소함을 나타냅니다. OE-SN 그룹에서는 IL-1 그룹에 비해 염증 지표 IL-6와 MMP13의 발현 수준이 유저히 감소하여, SNRNP70 과발현이 IL-1β 처리된 연골세포에서 염증 표지자를 역전시킬 수 있음을 시사합니다. 데이터는 n=3개의 독립적인 생물학적 복제± 평균 SD로 제시됩니다. p-값< 0.05(*), p값은 0.01(**)<. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
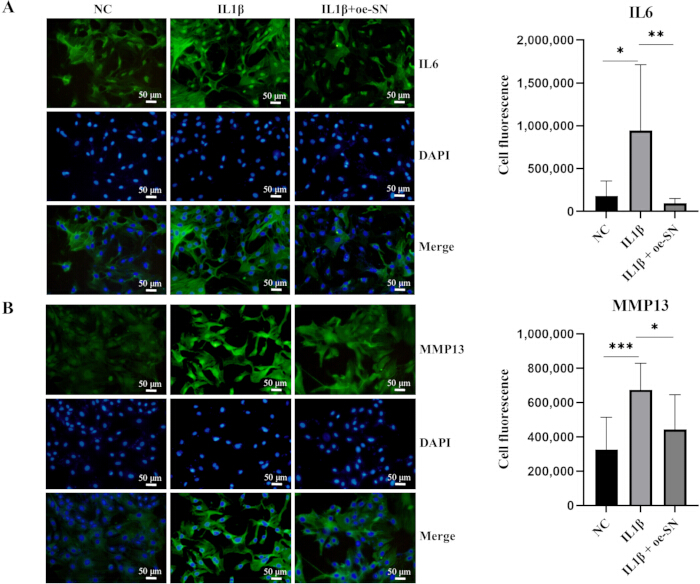
그림 6: IL-1β 처리 후 IL-1β 처리 연골세포의 IF 분석, 형광 강도 보여줌. (A) IL-6의 형광 강도와 (B) MMP13의 형광 강도가 유의하게 증가했다. 그러나 SNRNP70 의 과발현으로 인해 염증 지표인 IL-6와 MMP13의 형광 강도가 현저히 감소했습니다. 이 결과는 SNRNP70 과발현이 IL-1β 처리 연골세포에서 염증을 완화할 수 있음을 시사합니다. 모든 현미경 이미지는 10배 배율로 촬영되었습니다. 데이터는 n=3개의 독립적인 생물학적 복제± 평균 SD로 제시됩니다. p-값은 0.05(*)<, p-값은 0.01(**)<. 스케일 바 = 50 μm. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하세요.
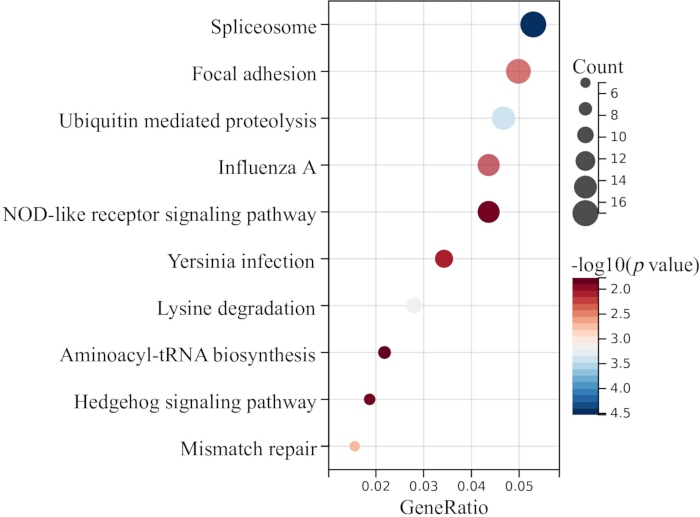
그림 7: 골관절염 데이터셋에서 SNRNP70 관련 유전자의 상관 기반 KEGG 풍부 분석. clusterProfiler가 식별한 상위 10개의 농축 경로(Benjamini–Hochberg 보정). 버블 크기 = 유전자 수; color = 중요성 (-log10(p 값)). 국소 유착 경로(강조됨)는 골고관절염에서 연골 유착, 기계전달, ECM 재형성을 매개합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
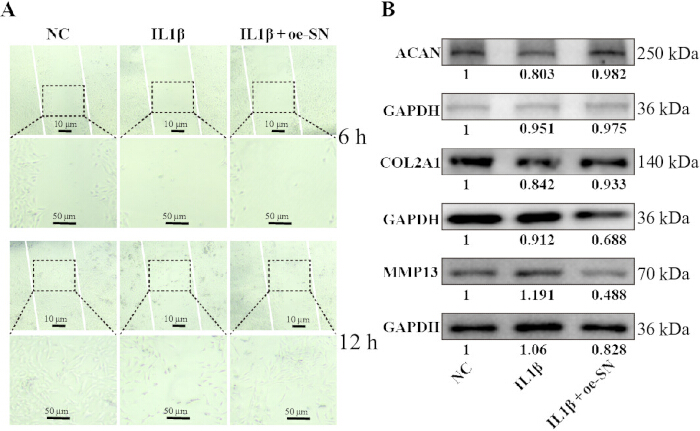
그림 8: SNRNP70 과발현은 IL-1β 처리 연골세포에서 ECM 수리를 회복시킵니다. (A) 대조군, IL-1β 처리, IL-1β 및 SNRNP70-과발현 연골세포 중 긁힌 상처 봉합 영상. (B) 주요 연골 기질 및 이화화 단백질의 대표적인 서구 블롯. 막을 ACAN, COL2A1, MMP13에 대해 탐침하였다. GAPDH는 하중 제어로 표시됩니다. 배율은 다음과 같습니다: NC, IL-1β, 그리고 IL-1β+oe-SN 그룹: 4배 배율에서는 스케일 바 = 10 μm. 10배 배율에서: 스케일 바 = 50 μm. 이 그림의 더 큰 버전을 보려면 여기를 클릭하세요.
보충 그림 1: 상처 봉합 및 서부 블롯 덴시토미터의 정량적 분석. (A) NC, IL-1β, IL-1β + OE-SNRNP70 그룹의 1차 연골세포에서 긁힌 상처 폐쇄의 정량화. (B) ACAN, COL2A1, MMP13 서부 블롯 밴드의 덴시토미터 정량화. 밴드 강도는 ImageJ를 사용해 정량화하여 GAPDH로 정규화하였습니다. 데이터는 n=3개의 독립적인 생물학적 복제± 평균 SD로 제시됩니다. *p < 0.05, **p < 0.01. 이 파일을 다운로드하려면 여기를 클릭해 주세요.
| 표적 유전자 | 전방향 프라이머 서열 | 전방향 프라이머 서열 |
| 가프드 | 5'-TCTCTGCTCCTCCCTGTTCT-3' | 5'-ATCCGTTCACACCACCTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGGTGTGTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGGAGACT-3' | 5'-ACAGTGCATCATCGCTGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCCC-3' | 5'-GGCATGACTCTCACAATGCG-3' |
표 1: 표 유전자의 프라이머. qRT-PCR에서 사용되는 GAPDH, SNRNP70, IL6, MMP13 의 순방향 및 역방향 프라이머 서열> 모두 5′ 3′ 방향으로 나타난다. GAPDH 는 내부 통제 역할을 했습니다.
| 연구 ID | 강령 | NC (n) | OA (인명 포함) | 조직 |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | 연골 |
| GSE117999 | GPL20844 | 10 | 10 | 연골 |
| GSE129147 | GPL15207 | 9 | 10 | 연골 |
| GSE169077 | GPL96 | 5 | 6 | 연골 |
| GSE12021 | GPL96 | 13 | 20 | 시노비움 |
| GSE55457 | GPL96 | 10 | 10 | 시노비움 |
| GSE89408 | GPL11154 | 28 | 22 | 시노비움 |
| GSE82107 | GPL570 | 7 | 10 | 시노비움 |
| GSE19060 | GPL570 | 3 | 5 | 반월판 |
| GSE98918 | GPL20844 | 12 | 12 | 반월판 |
| GSE51588 | GPL13497 | 10 | 40 | 연골하뼈 |
표 2: 이 연구의 데이터셋은 GEO 데이터베이스에서 가져왔습니다. 포함 기준을 충족하는 11개의 공개 GEO 데이터셋 요약. 각 데이터셋마다 accession ID, 플랫폼, 정상 대조(NC) 및 골관절염(OA) 샘플 수와 조직 유형이 제공됩니다. n = 샘플 수.
토론
본 연구는 SNRNP70이 다면적 관절 질환인 OA의 발병 기전에서 보호 유전자로 기능할 수 있음을 시사합니다. OA는 전 세계적으로 중요한 의료 문제를 제기합니다29,30. 이 연구는 OA에서 SNRNP70의 역할을 처음으로 보고한 연구입니다. 본 연구에서는 GEO 데이터 분석을 통해 OA 조직에서 SNRNP70 발현의 유의미한 하향 조절이 입증되었습니다(전체 SMD = -1.07, 95% 신뢰구간: -1.34, -0.80; 그림 2). 중요하게도, 이 발견은 이후 IL-1β 처리 연골세포에서 검증되었습니다. 더 나아가 본 연구는 IL-1β 처리 연골세포의 염증 반응에서 SNRNP70의 역할을 탐구하였습니다. OA와 관련된 보호 유전자로서, SNRNP70 IL-1과 MMP13의 발현을 억제하여 OA의 진행을 방해하는 능력을 보였습니다. 현재까지 본 연구는 OA와 NC 조직 간 SNRNP70 발현 수준에 뚜렷한 차이가 보고된 최초의 실험 연구로, SNRNP70이 OA 발병기전에서 역할을 할 수 있음을 시사합니다. 이 흥미로운 관찰은 골관절염에서 SNRNP70의 진단적 함의를 고려하게 만듭니다.
여러 RNA-seq 데이터셋과 배열을 통합한 메타분석은 SNRNP70의 진단적 관련성이 있음을 입증했습니다. SMD가 -1.07인 것은 골관절염 조직에서 SNRNP70의 지속적인 하향 조절을 강조하며, 진단 후보로서의 유용성을 제시했습니다. ROC 곡선 분석은 AUC가 0.92로 강력한 판별력을 나타내는 이 잠재력을 더욱 강조했습니다. 더불어, 감도와 특이도를 결합한 값은 SNRNP70이 더 조기 및 정확한 OA 진단을 가능하게 할 수 있다는 생각을 뒷받침했습니다. 진단적 가능성 외에도 SNRNP70 OA 관리 맥락에서 여전히 관심 대상입니다. OA의 병인은 기계적 과부하, 노화, 유전적 소인, 염증을 포함하는 다요인 과정입니다31,32. 이 요인들 중 염증은 골관절염 진행의 주요 원인으로 점점 더 인정받고 있습니다33,34. 연골 손상, 활막 염증, 관절 항상성 변화 등 일련의 연쇄 반응을 일으킵니다.
이 연구는 SNRNP70의 항염증 가능성을 탐구했으며, 이는 이 스플라시오좀 구성 요소로서의 역할을 하는 데 기반을 두고 있습니다35,36. 시험관 내 모델을 사용하여, 연골 구합구는 골관절 내 염증성 미세환경을 모방하기 위해 재조합 쥐 IL-1β로 처리되었습니다. 이러한 발견은 SNRNP70가 IL-1β 자극 연골세포의 염증 조절에 역할을 할 수 있음을 시사합니다. IF 검사는 SNRNP70의 항염증 특성을 추가로 뒷받침했습니다. IL-1β 처리된 연골세포는 염증성 단백질의 발현이 증가했으며, 이는 OE-SN에 의해 약화되었습니다. SNRNP70에 의한 염증성 단백질 발현의 이러한 조절은 골관절염 발병과 관련된 염증 연쇄 반응과 잠재적 연관성을 강조합니다.
이 연구는 OA에서 SNRNP70의 진단 및 치료 잠재력에 대한 관찰적 증거를 제공하지만, 그 효과의 정확한 기전은 여전히 흥미로운 영역입니다. SNRNP70은 RNA 접합에 관여하는 복합체인 스플라시오솜의 핵심 구성 요소로, 유전자 발현 조절의 기본 과정입니다. RNA 스플라이싱은 mRNA 분자의 비암호화 영역(인트론)을 제거하고 코딩 영역(엑손)을 결합하여 유전자 발현에 중요한 역할을 하며, 궁극적으로 프로테옴38, 39, 40을 형성합니다. RNA 스플라이싱에 SNRNP70의 관여가 OA 병인과 관련된 유전자의 발현에 영향을 미칠 가능성은 충분히 있습니다. OA 영향을 받은 조직에서 SNRNP70에 의해 조절되는 특정 RNA 표적과 스플라이싱 이벤트는 아직 밝혀지지 않았습니다. 이러한 메커니즘을 이해하는 것은 OA의 분자적 기초와 추가 연구를 위한 후보 표적에 대한 귀중한 통찰을 제공할 수 있습니다. 더 나아가 향후 연구에서는 OA 발병에 관여하는 다른 분자와의 SNRNP70 상호작용을 탐구해야 합니다. 염증, 연골 분해, 관절 조직 재형성에 관여하는 신호 전달 경로와의 교차 반응을 조사하면 그 다면적인 영향을 보다 포괄적으로 이해할 수 있을 것입니다.
이 연구에는 고려할 만한 한계가 있습니다. 메타분석은 상당한 수의 데이터셋을 포함했지만, 연구 설계, 환자 인구통계, 데이터 처리 방식의 차이로 인해 이질성이 발생할 수 있습니다. 또한, 포함된 데이터셋은 조직 기원(예: 연골 대 활막)과 처리 플랫폼 등에서 다양했으며, 이는 연구 간 이질성(I2 = 73.3%)을 일부 설명할 수 있습니다. 더불어, 이 통합 분석은 공개된 인간 데이터셋을 기반으로 한 반면, 기능적 실험은 신생아 쥐에서 분리된 연골세포를 사용했습니다. 이러한 종 간 차이는 시험관 내 소견을 인간 OA 병태생리로 직접 외삽할 수 있는 범위를 제한합니다. 또 다른 주의사항은 급성 IL-1β 자극 모델에 의존한다는 점인데, 이는 초기 염증 반응만 포착하고 인간에서 OA의 만성적이고 진행적이며 다인자적인 특성을 완전히 재현하지 못합니다. 또한, 기능 실험은 기능 이득 접근법(SNRNP70 과발현)으로 제한되었고; 기능 상실 실험(예: SNRNP70 넉다운)은 수행되지 않았으며, 이는 본 연구의 한계를 나타냅니다. 마지막으로, 상관관계 분석은 SNRNP70 가 국소 부착 경로와 관련이 있음을 시사하지만, FAK 스플라이싱 사건은 직접 조사되지 않았으며, SNRNP70 하류에서 국소 부착 신호가 변화한다는 실험적 증거도 제공되지 않았습니다. 따라서 이러한 발견의 견고성을 강화하기 위해서는 더 큰 환자 집단과 동물 모델에서의 검증이 필요합니다. 더불어, 시험관 내 실험은 세포 배양 모델을 사용했으나, 골관절의 복잡한 생체 내 미세환경을 완전히 재현하지 못할 수 있습니다. 향후 연구에서는 SNRNP70의 OA 동물 모델에서의 효과를 탐구하여 보다 생리학적으로 중요한 맥락에서 치료 잠재력을 평가해야 합니다.
공개 사항
저자들은 이해 상충이 없습니다.
감사의 글
이 연구는 중국 광시 핵심연구소(GuiKe AB22035014), 광시 의과대학 제1부속병원 특성혁신팀특별기금(YYZS2022003), 그리고 2026년 하이난성 보건과학기술혁신공동프로젝트(WSJK2026QN087)의 지원을 받았습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | 1:1000 희석의 1차 항체 |
| Anti-collagen type II alpha 1 (COL2A1) antibody | Abcam | ab34712 | 1:1000 희석의 1차 항체 |
| Anti-IL6 antibody | Proteintech | 21865-1-AP | 세포 배양 용 항생제 |
| Anti-MMP13 antibody | Proteintech | 18165-1-AP | 1:1000 희석의 1차 항체 |
| BCA 단백질 분석 키트 | Thermo Fisher Scientific | 23225 | 총 단백질 농도 결정 |
| CFX96 실시간 PCR 검출 시스템 | Bio-Rad | 1855195 | 실시간 PCR 검출 시스템 |
| ChemiDoc XRS+ 이미징 시스템 | Bio-Rad | 1708265 | 화학 발광 이미징 시스템 |
| Collagenase type II | Sigma-Aldrich | C6885 | 연골 조직 분해, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | 핵 카운터 스테인 |
| Dulbecco’s Modified Eagle Medium/F12 | Gibco | 11320033 | 기본 세포 배양 배지 |
| ECL 시약 | Thermo Fisher Scientific | 34580 | 향상된 화학 발광 시약 |
| 태아 소 혈청 | Gibco | 10082147 | 배양 보충제로서 10% 농도 |
| 형광 현미경 | Olympus | BX53 | 면역 형광 이미징(20배 배율) |
| GEO 데이터베이스 | NCBI | N/A | 공공 RNA-seq 및 마이크로어레이 데이터 세트 |
| GraphPad Prism 8.0 | GraphPad | N/A | ROC 곡선 분석 |
| HRP-결합 2차 항체 | Santa Cruz Biotechnology | sc-516102 | 2차 항체 |
| ImageJ 소프트웨어 | NIH | N/A | 밀도 분석 소프트웨어 |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | 형질주입 시약 |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | RNA 순도 및 농도 측정(A260/280 비율) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | 과발현 플라스미드 |
| 페니실린 | Thermo Fisher Scientific | 15140122 | 세포 배양용 항생제 |
| Primer-BLAST | NCBI | N/A | 유전자 특이적 프라이머 설계 |
| 프라이머(합성) | Sangon Biotech | N/A | PCR 프라이머의 상업적 합성 |
| 단백질분해효소 및 인산분해효소 억제제 칵테일 | Roche | 4693159001 | 단백질분해효소 및 인산분해효소 억제제 칵테일 |
| PVDF 멤브레인 | Millipore | IPVH00010 | 단백질 전달 멤브레인 |
| ReverTra Ace qPCR RT 키트 | TOYOBO | FSQ-101 | 1가 합성 cDNA 합성 |
| RIPA 버퍼 | Beyotime | P0013B | 단백질 분해효소 및 인산분해효소 억제제가 있는 세포 용해 버퍼 |
| 재조합 랫 인터루킨-1β | PeproTech | 400-01B | 연골세포에서 염증 반응 유도 |
| Sangerbox 플랫폼 | http://vip.sangerbox.com/ | N/A | ROC 곡선 분석 |
| Simple Western 자동 웨스턴 블롯 시스템 | ProteinSimple Jess | Jess (모델 004-600) | 자동 단백질 발현 검출 시스템 |
| Stata 14.0 | Stata | N/A | 메타 분석 |
| 스트렙토마이신 | Thermo Fisher Scientific | 세포 배양용 항생제 | |
| SYBR® Premix Ex Taq™ Kit | Takara | QPK-201 | 실시간 정량 PCR |
| RNAfast200 키트 | Fastagen Biotech | 220010-100 | 연골세포에서 총 RNA 추출 |
| Trypsin-EDTA | Gibco | 25200072 | 0.25% trypsin-EDTA를 이용한 세포 분리 |
참고문헌
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).