이 프로토콜은 대 장균 에서 수소포빈 SC16의 재조합 생산 및 정제를 설명하며, 자기 조립을 모니터링하기 위한 형광 기반 분석법을 제공합니다.
이 논문에서
요약
초록
수소포빈은 소수-친수성 경계면에서 자기 조립하여 곰팡이 포자 위에 안정적인 방수 코팅을 형성하는 작은 양산성 단백질입니다. 클래스 I 하이드로포빈은 표면을 코팅하는 질서 있는 아밀로이드 유사 구조를 포함하는 특히 안정적인 '막대기'를 형성합니다. 이러한 독특한 표면 화학 특성은 약물 전달, 폼 안정화, 유화, 표면 변형 등에 잠재적 응용을 제공합니다. 하이드로포빈을 생산하기 위해서는 단순한 발현 시스템에서 포괄적이고 고수율 프로토콜이 필요합니다. 더 나아가, 재조합 생산 및 정제 후 하이드로포빈 기능을 쉽게 특성화할 수 있는 방법을 제공하는 것이 필요합니다. 여기서는 균류 Schizophyllum commune에서 생성되는 IB 클래스 수소포빈 SC16의 생산 및 특성 분석 프로토콜을 설명하며, 이 균은 대 장 균에서 재조합 발현되어 이후 환원되지 않는 토착 조건에서 정제될 수 있습니다. 이 과정은 SC16을 N-말단 융합 단백질에 융합한 발현 플라스미드를 대 장균으로 변환하고, 단백질 발현을 유도하며, 자연 조건에서 세포 용해, 친화성 크로마토그래피, 프로테아제 절단을 통해 ≥5 mg의 수율로 하이드로포빈을 분리하는 과정을 포함합니다. SC16의 자기 조립은 티오프플라빈 T를 이용한 종단 또는 동성 형광 기반 분석법으로 모니터링할 수 있습니다. 두 검사 모두 SC16을 배양하고 장시간 혼합하여 공기-물 계면에서 자기 조립을 촉진하는 과정을 포함하며, 형광 측정으로 모니터링됩니다. 이 방법들은 SC16의 정제와 자기 조립 모니터링을 위한 간소화된 프로토콜을 제공하며, 유사한 단백질 자기 조립이 포함된 다른 시스템으로도 확장될 수 있습니다.
서론
하이드로포빈은 균류가 분비하는 표면 활성 양피성 단백질로, 소수-친수성 경계면(예: 균류 구조의 공기-물 경계)에서 자기 조립됩니다. 자연에서 이들은 포자와 자실체를 코팅하여 방수 기능을 강화하고, 공기 통로의 수분 고임을 방지하며, 확산을 촉진하는 역할을 합니다. 특이한 표면 화학 특성 덕분에 하이드로포빈은 임플란트 및 보철물의 생체적합성 향상을 위한 코팅 3,4,5, 약물 전달 및 의료 치료를 위한 생체 적합성 계면활성제 6,7,8,9,10, 그리고 나노플라스틱 포획 후보11 등 다양한 산업적 응용 분야에 사용됩니다.
하이드로포빈은 클래스 I과 클래스 II로 세분화할 수 있으며, 두 계면 모두 공기-물, 오일-물12,13,14, 플라스틱-물 15,16,17 계면을 포함한 소수-친수성 계면에서 자가 조립됩니다. 클래스 I 하이드로포빈의 특징 중 하나는 계면에서 매우 안정적인 '로드렛' 구조를 형성하며, 질서 있는 아밀로이드 유사(β-시트 풍부한) 특징을 포함한다는 점으로, 표면 변형이나 보호가 필요한 응용에 특히 적합합니다. 반면, 클래스 II 하이드로포빈은 아밀로이드 유사 구조를 형성하지 않고 쉽게 해리될 수 있는 막을 형성합니다 1,18. 흥미롭게도, 세 번째 수소포빈 계급도 존재하는데, 이는 I급과 II급의 구조적 특징을 유지하고 있다18,19. 이러한 차이로 인해, 하이드로포빈의 자기 조립 모니터링은 분류와 재조합 생성된 하이드로포빈의 적절한 접힘 및 기능 평가에 중요합니다.
하이드로포빈의 자기 조립은 티오플라빈 T(ThT)와 같은 아밀로이드 결합 염료를 이용한 형광측정법으로 쉽게 관찰할 수 있으며, 이는 아밀로이드20에 존재하는 교차 β 구조에 결합합니다. ThT는 두 방향족 고리를 분리하는 단일 공유 결합을 포함하며, 이 두 방향족 고리는 보통 자유롭게 회전합니다. 교차 β 구조에 결합하면 이 회전이 제한되어 형광20이 생성됩니다. 선택적 형광 특성 때문에 ThT는 공기-물 경계 21,22,23,24,25,26,27,28에서 하이드로포빈의 자기 조립을 모니터링하는 데 널리 사용됩니다. ThT 분석법은 수소포빈 자기 조립 23,27,28에 대한 시간 의존적인 동역학적 정보를 제공하여, 원자력현미경(AFM)이나 접촉각 측정과 같은 기술에 비해 장점이 있습니다. 이들 기법은 처리량이 낮고 시간 의존적 분석에 적합하지 않습니다. 또한 ThT는 교차 β 구조에 결합할 때 강한 형광 증강을 보이며, 자유형20에서는 최소한의 형광이 나타납니다. 이러한 특성들은 ThT 분석법을 간단하고 민감한 방식으로 하이드로포빈 자기 조립을 모니터링하게 하며, 이는 보다 집중적인 구조적 기법으로 보완할 수 있습니다.
하이드로포빈의 다양한 용도로 인해 자기 조립을 모니터링할 수 있는 접근 가능한 프로토콜이 필요합니다. 구체적으로, 본 프로토콜은 재조합 하이드로포빈의 정제 및 기능적 특성 분석을 최적화하기 위한 틀을 제공합니다. 이전에 Morris와 Sunde(2013)는 대 장균에서 재조합 발현, 정제 및 ThT 기반 하이드로포빈 자기 조립 모니터링 프로토콜을 제시했습니다. 이 연구는 수소포빈 SC16을 정제하는 수정된 절차를 설명함으로써 이러한 방법을 확장합니다. SC16은 Schizophyllum 코뮌 에서 유래한 클래스 I 하이드로포빈으로, 이황화 결합의 변성, 환원, 재산화 없이도 대 장균 에서 쉽게 정제할 수 있습니다. 결과적으로 생성된 SC16 단백질은 기능성을 보이며, 이는 종단 및 운동학 ThT 기반 자기조립 분석법으로 로드렛 형성을 모니터링합니다. 이 글의 목적은 클래스 IB 하이드로포빈 SC16의 재조합 생성, 정제 및 기능성 ThT 기반 분석법을 위한 포괄적이고 간소화된 프로토콜을 상세히 설명하는 것입니다.
프로토콜
이 연구는 인간 참가자, 척추동물, 조직 샘플링을 포함하지 않습니다. 따라서 윤리적 승인은 필요하지 않았습니다.
1. 대장균에서 수소포빈 SC16의 발현
- 변환 SHuffle T7은 헥사히스티딘 태그가 있는 단백질 G의 B1 도메인을 암호화한 pET-21 발현 플라스미드를 사용하여 45초간 열충격을 통해 대 장균 세포를 발현합니다. 이 도메인은 SC16(H-GB1-SC16)과 융합되었습니다.
참고: Suffle T7 발현 세포는 올바른 이황화 결합 형성을 촉진하는 능력으로 선정되었습니다. H-GB1-SC16 플라스미드는앞서 설명한 제한효소 클로닝으로 생성될 수 있습니다. - 100 μg mL−1 암피실린을 포함한 용해성 육수(LB) 2mL를 단일 콜로니로 접종합니다. 37°C에서 하룻밤 동안 진동시키며 부양하세요.
- 1L LB를 1mL에 접종하세요(2.8L 배플 처리된 둥근 바닥 플라스크에 담고) 하룻밤 배양 1mL를 투여합니다. 배양물을 37°C에서 흔들며(~120–135 rpm, 원형 궤도 19mm) 600 nm에서 광학 밀도가 0.6 ± 0.1에 도달할 때까지 배양합니다.
- 최종 농도는 0.5 mM에 이소프로필-β-D-1-티오갈락토피라노사이드를 첨가하여 H-GB1-SC16의 발현을 유도합니다. 20°C에서 하룻밤 동안 진동시키고 배양하세요.
참고: 이 온도는 포함체 형성 위험과 부적절한접힘 위험을 줄이기 위해 선택되었습니다. - 4000 × g에서 원심분리하여 20분간 세포를 채취하세요. 상원액을 부어.
잠시 멈춘 지점: 셀 펠릿은 정제에 들어가기 전에 최대 3주간 −20°C에서 보관합니다. 반복되는 냉동-해동 사이클을 피하세요.
2. 하이드로포빈 SC16의 정제
- 세포 펠릿을 30 mL의 용해 완충제(20 mM 트리스(하이드록시메틸)아미노메탄 [Tris], pH 8, 250 mM NaCl)에 재현탁합니다.
- 세포를 용해하여 현탁 현탁물을 80°C 물욕에 15분간 배양합니다. 부화 기간 동안 5분마다 부드럽게 섞으세요.
참고: 이 단계는 SC16의 열 안정성에 의존하므로 다른 단백질에는 적합하지 않을 수 있습니다.
주의: 튜브와 80°C의 물욕을 다룰 때는 내열 장갑을 착용하세요. 혼합 및 튜브 제거 시 뜨거운 액체를 튀기지 마세요. - 세포를 4°C에서 25,000 × g에서 20분간 원심분리합니다. 상청액을 2–3 mL Ni2+-전하 금속 친화력 크로마토그래피(IMAC) 수지가 포함된 중력 칼럼에 적재합니다.
- 30 mM 이미다졸이 포함된 용해 버프로 컬럼을 세척합니다. 300 mM 이미다졸이 함유된 10 mL 용해 완충제를 사용하여 단백질을 유출합니다.
- 3500 kDa 분자량 차단 투석관을 사용해 3시간 동안 Tris(pH 8; 20 mM)와 NaCl(50 mM)을 포함한 버퍼 1L에 대해 3시간 동안 용출된 분획을 100 rpm에서 저어줍니다.
참고: 투석 중 교반 속도는 설치 방식(예: 튜빙 부피, 비커 형상)에 따라 달라질 수 있습니다. 투석 백이 부드럽게 회전하도록 필요한 최소 회전수로 저어줍니다. - 트롬빈 프로테아제(20 U mg−1 융합 단백질)를 투석 백(총 반응 10 mL)에 직접 첨가하여 융합 단백질을 절단합니다. 버퍼를 교체하세요.
잠시 멈춘 지점: 프로테아제 첨가 및 완충제 교체 후, 4°C에서 하룻밤 투석을 계속합니다. 다음 날 정화를 재개하세요. SDS-PAG로 절단 완성을 검증하라(~18 kDa 밴드가 사라지고 ~10 및 ~8 kDa 밴드가 나타날 것으로 예상). - 다이애리스 시료를 Ni2⁺ 전하 IMAC 컬럼에 재장전하세요. 각각 30 mM과 300 mM 이미다졸이 포함된 약 12 mL의 완충액으로 세척 및 용출합니다.
- 로딩 버퍼 내 β-머캅토에탄올 사용) 환원 조건에서 나트륨 도데실 황산염–폴리아크릴아마이드 겔 전기영동(SDS-PAGE)으로 수집한 분획을 분석합니다. SC16은 예상 분자량(~10 kDa)의 워시 분율 내 밴드의 존재로 식별합니다. SC16 전체가 포함된 워시 분획을 Tris(pH 8; 20 mM)와 NaCl(50 mM)이 포함된 완충액 1L에 3시간 동안 투액하여 잔류 이미다졸을 제거합니다.
참고: SC16은 일반적으로 워시 분획에서 검출되며, H-GB1은 일반적으로 유루액에서 농축됩니다. 소량의 SC16 잔류도 용출액에 존재할 수 있습니다. - SC16은 선택한 방법(예: 고성능 액체 크로마토그래피 아미노산 분석, 브래드포드 분석법, 또는 280 nm 흡수 분석)으로 정량화할 수 있습니다. 이 방법을 사용하면 배양 리터당 ≥ 5 mg SC16의 수확량이 기대됩니다.
참고: 우리 연구팀은 예측된 소멸계수 3480 M−1 cm−1 32 를 사용하여 280 nm 흡광도로 SC16을 정량화하는 방식을 일상적으로 사용합니다. 이 방법은 단순하기 때문에 선호되는 SC16 정량화 방법입니다. - 정제 과정에서 SDS-PAGE 분석을 위해 샘플을 수집하세요.
3. SC16 자기조립의 종단 형광 분석
- 50 μg mL−1 SC16, 50 mM NaCl, 20 mM 2-(N-모르폴리노)에탄설폰산(MES), 트리스, 인산나트륨을 각각 포함하는 삼중산 반응 혼합물을 준비합니다. MES, Tris, 인산나트륨을 미리 준비하여 최종 pH 6.5로 조절하여 농축된 HCl 또는 1 M NaOH를 점진적으로 첨가합니다. 분석하기 직전에 단백질과 NaCl을 추가하세요.
참고: 이 단계에서 통제 장치를 준비할 수 있습니다. 예를 들어, SC16을 포함한 양성 대조군은 끝까지 회전하지 않고, 음성 대조군은 완충만 포함합니다. 25–100 μg mL−1 사이의 SC16 농도가 시험되었으며, 결과는 50 μg mL−1에서 가장 일관된 결과를 보였습니다. 필요에 따라 이 매개변수를 최적화하세요. - 혼합물을 2–5mL 튜브에 옮깁니다.
참고: 반전 시 적절한 혼합이 가능하도록 샘플 튜브를 50% 용량으로 채워 주세요. - 튜브를 20rpm으로 끝에서 끝으로 2시간 회전시키세요. 각 샘플 100 μL을 불투명한 바닥의 검은색 96웰 플레이트에 원형 굴뚝 스타일 웰로 옮깁니다.
- 모든 샘플에 최종 농도인 20 μM의 여과된 ThT를 첨가합니다.
- 마이크로플레이트 리더를 ThT 형광에 적합한 범위 내에서 여기 및 방출 파장으로 설정하세요 33,34,35,36. 게인을 55로 설정하고 적분 시간을 20μs로 설정하세요. 각 샘플의 2시간 회전 주기 직후 형광 강도를 측정합니다.
참고: ThT의 보고된 여기 및 방출 최대 파동은 각각 450 nm와 490 nm37입니다. 이 실험은 광학 필터 가용성을 기준으로 각각 438 nm와 494 nm의 여기 및 방출 값을 사용했습니다. 끝-끝 회전은 제작된 회전 장치를 사용해 수행되었습니다.
4. SC16 자기 조립의 동역적 형광 분석
- 검은색 96웰 플레이트에 100 μL 반응 혼합물을 3중으로 준비합니다.
- 50 μg mL−1 SC16, 50 mM NaCl, 20 μM 여과된 ThT, 그리고 각각 20 mM MES, Tris, 인산나트륨을 포함합니다. ThT와 완충제만 포함된 음성 대조군(SC16 제외)을 준비합니다.
- SC16과 ThT를 첨가하기 전에 농축된 HCl 또는 1 M NaOH를 사용해 완충제(트리스, MES, 인산나트륨 포함)의 pH를 5.5, 6.5, 7.5, 8.5로 조절합니다. 혼합 버퍼 시스템은 버퍼 정체성을 변경하지 않고도 pH 조절이 가능합니다.
- 플레이트를 마이크로플레이트 리더기에 넣으세요.
- ThT 형광에 적합한 범위 내에서 여기 및 방출 파장을 33,34,35,36 범위 내에 설정하세요.
- 리더기를 70초마다 주기적으로 측정하도록 프로그래밍하세요.
- 432 rpm에서 60초의 궤도 흔들리기, 그리고 사이클당 10초의 휴식 기간을 포함합니다.
- 적분 시간을 20μs, 게인을 55μs로 설정하세요.
- 2시간 동안 흔들면서 형광 변화를 모니터링하기 위해 120회 사이클을 돌리세요.
참고: 궤도 흔들림이 선택되었는지 확인; 선형 흔들림은 자기 조립 결과가 일관되지 않거나 최적이 아닐 수 있습니다.
결과
그림 1 은 SC16의 정제를 모니터링하는 Coomassie 염색 SDS-PAGE 겔을 보여줍니다. 코드는 유도 전(B), 유도 후(A), 용해성 분획(S), 흐름 통과(F), 세척(W), 용출(E), 그리고 다결(D)을 나타냅니다. 첫 번째 IMAC 용출물에서는 추정 분자량 ~18 kDa의 밴드가 트롬빈 절단 이전의 H-GB1-SC16 단백질에 해당합니다. 트롬빈으로 절단한 후에는 두 번째 IMAC 플로우스루 분획에 단백질이 없고, 세척 내에는 SC16에 해당하는 ~10 kDa 밴드가 형성됩니다. 두 번째 IMAC 용출물에는 일부 잔류 SC16과 H-GB1에 해당하는 더 작은 ~8 kDa 단백질이 존재합니다. 정제된 SC16은 종단 및 동성 자기 조립 분석에 사용되었습니다. 이 결과는 예상되는 분자량 밴드의 존재와 트롬빈 절단 후 H-GB1 융합 파트너의 분리로 SC16의 성공적인 정제를 확인시켜 줍니다.
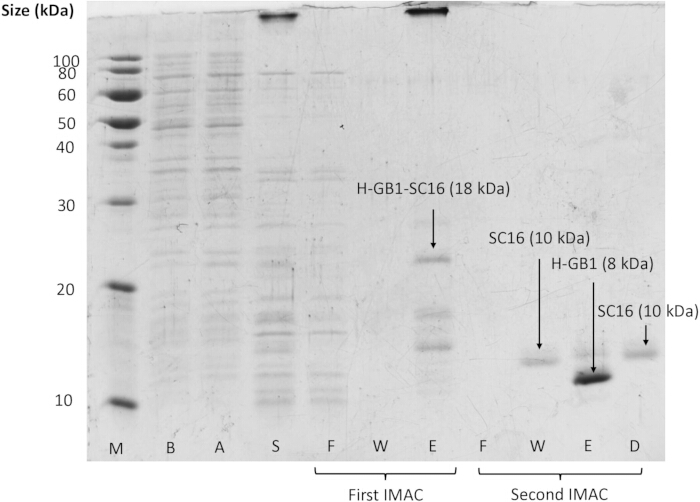
그림 1. SC16의 첫 번째(트롬빈 절단 전)와 두 번째(트롬빈 절단 후) IMAC 분리에 대한 정제 과정을 SDS-PAGE 분석했습니다. 분자량 마커(M)와 유도 전(B), 유도 후(A), 세포 용해 상정액(S), 흐름 통과(F), 세척(W), 용출(E) 분획, 그리고 투석 샘플(D)이 표시됩니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
표 1에 제시된 SC16 자기 조립의 종단 ThT 분석법은 회전하지 않은 단백질 함유 대조군에 비해 2시간 회전 후 ThT 형광 강도가 11배 증가함을 보여줍니다. 마찬가지로, 버퍼 샘플을 회전시켜도 형광 강도에 유의미한 변화가 관찰되지 않습니다. SC16 교반 시 ThT 형광의 증가는 SC16 자기 조립을 나타내는 아밀로이드 유사 β-시트의 형성을 나타냅니다24,25. 이 결과는 기술된 형광 기반 분석법이 시험된 조건에서 SC16의 자기 조립을 효과적으로 모니터링함을 보여줍니다.
| 샘플 | ThT 형광 (수치± SD) |
| 회전 없는 SC16 | 2679 ± 177 |
| 회전 후 SC16 | 30315 ± 2141 |
| 회전 후 버퍼 | 665 ± 888 |
표 1. SC16 샘플의 엔드 오버 엔드 회전 후 수집된 ThT 형광 측정값. SC16(50 μg mL−1) 샘플은 교반 없이 배양하거나 2시간 동안 회전시켰습니다. 형광 측정 전에 ThT(20 μM)가 첨가되었습니다. 형광은 각각 438 nm와 494 nm의 여기 및 방출 파장에서 측정되었으며, 원시 수치로 보고됩니다. 값은 평균 ± 표준편차(SD)로 제시됩니다.
SC16의 다양한 버퍼에서 몇 시간 동안 교반했을 때의 동학적 자기 조립 분석은 그림 2에 제시되어 있습니다. 아밀로이드 세동의 전형적인 S자형 운동 자기 조립 곡선에는 특징적인 지연기, 성장기, 평원 주기가 포함됩니다38. SC16의 경우 초기 측정 시 상당한 지연 기간이 관찰되지 않지만, EAS21,23과 같은 다른 수소포빈에서는 이러한 행동이 문서화되었습니다. 각 pH의 자기 조립 곡선은 비교 가능하며, 강한 양의 기울기는 로드렛 형성에 해당합니다. 약 20분간 교반 후 형광 강도가 정체되었다가 서서히 점차 감량됩니다. SC16이 없는 대조 샘플에서는 실험 내내 형광에 큰 변화가 없습니다.
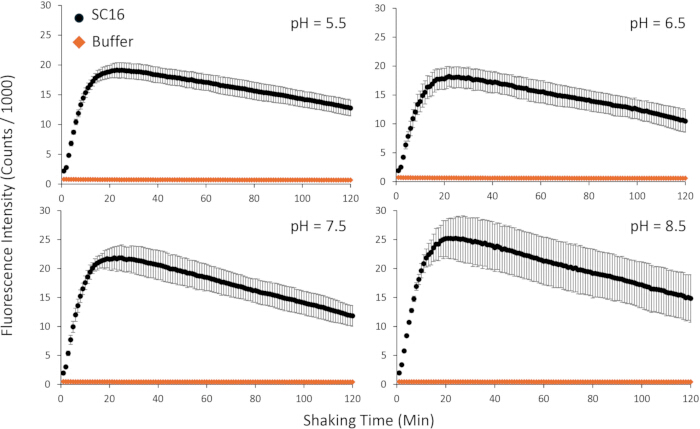
그림 2. 운동 ThT 형광 분석법을 이용한 SC16의 자기 조립 곡선. SC16은 20 μM ThT, 50 mM NaCl, 20 mM 인산나트륨, 20 mM MES, 20 mM Tris가 포함된 다성분 버퍼에서 50 μg mL−1 용량으로 준비되었습니다. 측정은 60초간의 궤도 흔들림과 10초간의 휴식 후 이루어졌습니다. x축은 흔들리는 시간(총 2시간)을 나타냅니다. 형광은 각각 438 nm와 494 nm의 여기 및 방출 파장을 사용하여 측정되었으며, 카운트는 10⁻³ × 보고되었습니다. 오차 막대는 표준편차(n = 3)를 나타냅니다. 패널은 pH 5.5(왼쪽 위), 6.5(오른쪽 위), 7.5(왼쪽 아래), 8.5(오른쪽 아래 pH)에 해당합니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
그림 3 은 동역적 자기조립 분석의 비최적 결과의 예시를 보여줍니다. 이 경우 검사는 프로토콜 섹션에서 설명한 대로 완료되었으나, "궤도" 흔들기 설정 대신 "선형" 흔들림 설정을 사용했습니다.
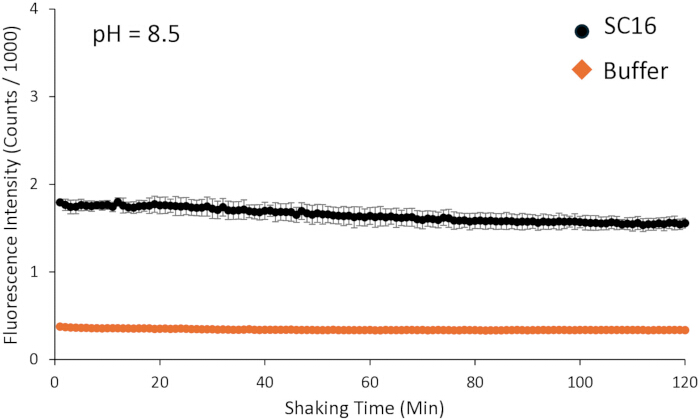
그림 3. 운동 ThT 형광 분석법을 사용해 얻은 SC16의 비최적의 동체 자기 조립 데이터 예시. 이 경우, 궤도 흔들림 대신 선형 설정을 사용해 흔들림이 수행되었습니다. 샘플은 그림 2에 설명된 대로 준비되었습니다. 측정은 60초간의 선형 흔들기와 10초간의 휴식 후에 이루어졌습니다. x축은 흔들리는 시간(총 2시간)을 나타냅니다. 형광은 각각 438 nm와 494 nm의 여기 및 방출 파장을 사용하여 측정되었으며, 10⁻³ × 카운트로 보고되었습니다. 오차 막대는 표준편차(n = 3)를 나타냅니다. 이 그림의 더 큰 버전을 보시려면 여기를 클릭해 주세요.
토론
여기서는 수소포빈 SC16의 발현 및 정제, 그리고 SC16 자기 조립의 저처리량 및 고처리량 형광 분석법에 대한 프로토콜을 요약하며, 각각의 장단점을 설명합니다. 이러한 워크플로우는 단백질 자기 조립을 모니터링하는 관련 시스템에 적용할 수 있습니다. 이 프로토콜에서는 SC16 정제 전에 열을 이용해 세포를 용해하는 방식으로, 대부분의 전통적인 대장균 용해 방식과 다릅니다. 우리는 H-GB1-SC16이 80°C까지 용해되고 열에 안정적이며, 열분해가 세포 용해액39 내에서 열에 안정적이지 않은 프로테아제와 기타 오염 단백질을 침전시켜 초기 샘플 정화 단계 역할을 한다는 것을 발견했습니다. 그러나 SC16은 특수한 경우로, 하이드로포빈은 종종 포함체12, 21, 40에서 불용적으로 발현됩니다. 포함체로 표현할 때는 일반적으로 변성 조건이 필요하며, 그 후 확립된 프로토콜21, 40, 41에 따라 재접힙니다.
이 프로토콜에서는 SDS-PAGE를 사용하여 유도 전후 세포 펠릿, 세포 용해 후 용해성 분획, 그리고 이후 모든 컬럼 분획을 포함하여 각 단계에서 SC16 정제를 평가합니다. 이는 그림 1에 나와 있습니다; H-GB1과 비교하면 SC16에 해당하는 대역은 상대적으로 희미합니다. SC16을 포함한 많은 수소포빈에서 일관되고 강렬한 쿠매시 염색을 달성하는 것이 어렵다는 것을 발견했습니다. SC16은 β-머캅토에탄올을 환원제로 사용할 때 보통 중간 강도 밴드로 나타납니다(그림 1). 경우에 따라 수소포빈을 더 명확히 시각화하기 위해 은 염색이 필요할 수 있습니다.
종단 및 동역형 형광 분석법은 SC16의 자기 조립 상태를 모니터링하는 데 사용될 수 있습니다. 종단 ThT 분석법은 자기 조립을 빠르고 간단하게 평가할 수 있어 유리합니다. 2시간 동안 작업대를 회전시킨 후 형광이 증가하는 것 외에도, 자가 조립 시 반응관 내에 눈에 띄는 흰색 흐림이 동반되는 경우가 많습니다. 이 분석법은 간단한 벤치탑 회전기를 사용하여 혼합하여 마이크로플레이트 리더 부품의 마모를 최소화합니다. 저희 경험상, 이 분석법은 마이크로플레이트 리더의 흔들기 설정과 같은 기기 매개변수에 상대적으로 둔감합니다.
동역학 ThT 분석법은 자기 조립에 대한 더 자세한 정보를 제공합니다. 예를 들어, SC16의 자가 조립은 버퍼 조건24에 크게 의존하지 않지만, pH가 높을수록 복제 간 변동이 더 커집니다. 그러나 이러한 행동은 하이드로포빈 모두에게 보편적인 것은 아니며, 염 농도, pH 24, 27, 42, 첨가제(예: 세제나 알코올)와 같은 요인들이 하이드로포빈 자기 조립에 영향을 미치는 것으로 알려져 있습니다. 예를 들어, 하이드로포빈 SLH4는 낮은 이온 강도와 낮은 pH24에서 더 효율적인 자가 조립을 보이는 반면, HFBII는 SC16과 유사하게 pH와 전해질 농도에 독립적이라는 보고가 있습니다. 다른 연구들은 첨가제가 로들렛 형성에 미치는 영향을 표면 장력 변화와 상관관계 있게 했습니다27,28. 이러한 차이를 고려할 때, 각 시스템의 완충 조성과 pH를 고려하고, 지연상, 성장기, 평원 영역 등 자기 조립 곡선에 미치는 영향을 모니터링하는 것이 중요합니다.
중요한 한계는 운동 ThT 분석법이 마이크로플레이트 리더의 기기 매개변수에 매우 민감하며 기기별로 다를 수 있다는 점입니다. 예를 들어, SC16의 자기 조립 방식에서 궤도(원운동)와 선형(앞뒤로 흔들림) 설정(각각 그림 2 와 그림 3) 간에 상당한 차이가 관찰됩니다. ThT 기반 분석법은 하이드로포빈 자기 조립을 모델링하는 데 효과적인 방법을 제공하지만, 선택성 가변으로 인해 위양성 또는 거짓음성 신호가 발생할 수 있는 내재적 한계가 있습니다43. 또한, 하이드로포빈 집합체에서 발생하는 빛 산란은 측정된 형광 세기44에 영향을 미쳐 측정 정확도를 떨어뜨릴 수 있습니다. 샘플 희석과 경로 길이 단축이 이러한 영향을 완화하는 데 도움이 될 수 있습니다.
여기서 요약된 프로토콜은 SC16의 자기 조립을 정제하고 모니터링하는 효과적인 방법을 제공합니다. 종단 분석법은 단순하고 기기에 덜 의존하는 반면, 동역학 분석법은 상세한 시간 분해 정보를 제공하지만 기기 매개변수에 대한 민감도가 더 높습니다. 이 프로토콜은 SC16을 정제하는 간단한 접근법을 제시하며, 대장균에서 발현된 다른 적절히 접힌 수수소포빈에도 적용할 수 있습니다. 설명된 ThT 분석법은 고유한 한계가 있지만, AFM이나 접촉각 측정 기법과 같은 기법에 비해 접근 가능한 시간 의존적 자기 조립 정보를 제공합니다. 이러한 워크플로우는 관련 단백질에 맞게 조정할 수 있으며, 특히 생체재료 개발, 약물 전달 및 단백질 자기 조립 이해가 중요한 기타 분야에 적합합니다.
공개 사항
저자들은 상충하는 재정적 또는 비재정적 이해관계가 없다고 선언합니다.
감사의 글
저자들은 뉴 프런티어 연구 기금(Exploration Stream; NFRFE-2023-00322) 및 캐나다 자연과학 및 공학 연구 위원회(NSERC; 디스커버리 그랜트; RGPIN-2024-06440). IED는 캐나다 대학원 장학금-석사 프로그램(NSERC)의 지원을 받고 있습니다. RH는 달하우지 의과대학 2024 대학원생 장학금 프로그램과 노바스코샤 대학원 장학금(박사 과정)을 통해 몰리 어필 기부자들의 지원을 받고 있습니다.
재료
```html
```
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 2-(N-morpholino)ethanesulfonic acid (MES) | Sigma-Aldrich | 145224-94-8 | 자기조립 분석용 버퍼 구성 요소 |
| 5 mL 원형 바닥 폴리스티렌 튜브 | Falcon | 352054 | 저용량 자기조립 분석에 사용 |
| 96웰 검은색 폴리스티렌 마이크로플레이트 | Grenier | 655076 | 마이크로플레이트 판독기에서 형광 측정에 사용 |
| 아크릴아마이드/비스-아크릴아마이드 (29:1) 용액 (40%) | BioShop | ACR004.500 | SDS-PAGE 겔 준비에 사용 |
| 아가르 | BioShop | AGR002.1 | 암피실린 내성 LB 플레이트 제조에 사용되는 아가르 |
| 암피실린 | IBI Scientific | IB02040 | LB-아가르 플레이트에 사용되는 항생제 |
| 2.8 L Fernbach 플라스크 (배플 포함) | Fisher Scientific | 955239 | 대용량 박테리아 배양 성장에 사용 |
| β-머캅토에탄올 | TCI Chemicals | 60-24-2 | SDS-PAGE 샘플 준비에 사용되는 환원제 |
| 칼럼 (1.5 cm 직경 중력 칼럼) | Bio-Rad | 7371522 | 니켈 친화성 정제에 사용 |
| 투석 튜빙 (3500 kDa MWCO) | BioDesign | D302 | 정제 중 버퍼 교환에 사용 |
| 발광 필터 | Edmund Optics | 84080 | ThT 분석에 사용 (494 nm, 대역통과 20 nm) |
| 자극 필터 | Edmund Optics | 67012 | ThT 분석에 사용 (438 nm, 대역통과 24 nm) |
| 형광 마이크로플레이트 판독기 | Tecan | Infinite F200 Pro | ThT 형광 강도 측정에 사용 |
| 핫플레이트 | Lab Fish | HS5C | 온도 모니터링이 있는 수조 설정에 사용 |
| 염산 (HCl) | Fisher Chemical | A144-212 | 버퍼 pH 조정에 사용 |
| 이미다졸 | TCI Chemicals | 288-32-4 | IMAC 정제 (세척 및 용출 버퍼)에 사용 |
| 아이소프로필 β-D-1-티오갈락토피라노시드 (IPTG) | Sigma-Aldrich | 367-93-1 | E. coli에서 단백질 발현 유도 |
| LB 브로스 (Lennox) | BioShop | LBL405.5 | 박테리아 배양을 위한 성장 배지 |
| 저속 냉장 원심분리기 | Beckman Coulter | 360291 | 세포 저장 전 세포를 펠릿화하는 데 사용 |
| 니켈 NTA 아가로스 비드 | GoldBio | H-350-50 | His-태그 단백질의 친화성 정제에 사용되는 수지 |
| SC16 플라스미드 | BioBasic | N/A | H-GB1-SC16 융합 단백질을 암호화하는 사용자 지정 DNA 구성 |
| SHuffle T7 Express 컴피턴트 E. coli | New England Biolabs | C3029J | 재조합 단백질 발현에 사용되는 호스트 균주 |
| 나트륨 염화물 (NaCl) | BioShop | SOD001.5 | 버퍼 구성 요소 및 이온 강도 조절제 |
| 수산화 나트륨 (NaOH) | Fisher Chemical | SS255-1 | 버퍼 pH 조정에 사용 |
| 나트륨 인산염 | BioShop | SPD579.1 | pH 유지를 위한 버퍼 구성 요소 |
| 분광 광도계 | Pharmacia Biotech | 5096 | SC16 정량에 사용 |
| 티오플라빈 T (ThT) | Acros Organics | 2390-54-7 | 단백질 자기조립 모니터링에 사용되는 형광 염료 |
| 트롬빈 프로테아제 | Sigma-Aldrich | 04-04-9002 | H-GB1-SC16 융합 단백질 분리에 사용 |
| 트리스(하이드록시메틸)아미노메탄 (트리스) | BioShop | TRS001.5 | 정제 및 분석 용액에 사용되는 버퍼 |
| 고속 냉장 원심분리기 | Sorvall | 46915 | 세포 용해 후 용해액을 맑게 하는 데 사용 |
| SDS-PAGE 설정 | Bio-Rad | 1658000EDU | SDS-PAGE 겔 준비 및 실행에 사용 |
재인쇄 및 허가
