본 논문은 동물 사육, 알 처리, 부화 후 관리, 대표적인 성능 지표 및 해당 종의 수명과 생물학적 특성에 대한 개요를 포함하여 Carausius morosus 실험실 군락을 유지하기 위한 상세 프로토콜을 설명합니다.
방법 논문
실험실 환경 내 Carausius morosus (Phasmatodea, Insecta) 사육을 위한 표준화된 프로토콜
이 논문에서
요약
초록
Carausius morosus인도 대나무벌레(Indian stick insect)는 인도 고유종으로, 가느다란 나뭇가지 모양을 한 곤충입니다. 전 세계적으로 사육을 통해 널리 보급되어 실험실에서 흔히 사용되거나 가정용 반려동물로 키워지고 있지만, 표준화된 동물 사육 실험실 프로토콜은 부족한 실정입니다. 이에 본 논문에서는 다음과 같은 상세한 실험실 배양 조건을 보고합니다. C. morosus우리는 ~에서 스톡을 보관합니다. 23 °C, 상대 습도 70%, 12:12시간 명암 광주기 조건에서 사육하였습니다. 이러한 조건 하에서 2년 이상 성공적으로 배양되었으며, 식이 및 케이지 설정 조건에 대한 표준 프로토콜이 마련되어 있습니다. 또한, 지속적인 실험을 지원하기 위한 알 및 부화 개체 관리 방법을 기술합니다. C. morosus본 연구의 배양 조건하에서, 동일한 24시간 이내에 산란된 105개의 모니터링 배치는 일관되게 12일 이내에 부화하였으며, 부화한 개체의 13.9%가 성공적으로 성체에 도달하였다. 이러한 표준화된 방법은 재현성과 접근성을 향상시켜, 발달, 행동 및 생리학 분석을 포함한 광범위한 연구를 위한 실험실 모델 시스템으로서 *C. morosus*의 더 폭넓은 활용을 가능하게 한다.
서론
비포유류 대체 모델 시스템에 대한 관심이 높아짐에 따라, 곤충은 포유류 모델보다 연구 비용이 저렴하고 관리가 용이하며 규제 장벽이 낮으면서도 광범위한 생물학적 다양성을 탐구할 수 있는 기회를 제공합니다1. 새롭게 등장하는 곤충 모델 시스템을 통해 Carausius morosus (Sinéty, 1901)와 같은 대벌레의 단성생식과 같은 독특한 생물학적 현상을 연구할 수 있게 되었습니다2. 초파리 Drosophila melanogaster가 20세기 초부터 발달 및 유전 과정에 대한 우리의 이해를 형성해 왔으나3, C. morosus와 같은 다른 곤충 모델 시스템은 발달 생물학뿐만 아니라 운동 제어, 이동 및 신경호르몬 조절 시스템을 조사할 수 있는 독특한 기회를 제공합니다4.
또한, 진화 발생 생물학 분야에서 불완전 변태(직접 발달) 곤충은 여전히 연구 비중이 낮으며, 완전 변태(간접 발달 또는 변태 과정을 거침) 곤충에 비해 *D. melanogaster* 가장 광범위하게 연구된 모델 곤충으로서 역할을 하고 있습니다. 다음과 같은 직접 발달 곤충 종을 연구하는 것은 C. morosus, 이는 성적 성숙에 도달하기 전 여러 단계의 약충 령기를 거칩니다5는 진화 발생 생물학 연구에서 주요한 계통 발생적 공백을 메울 수 있게 해줍니다. 이를 통해 곤충 진화 초기 단계에서 분화되었으나 현재의 실험실 모델 시스템에서는 동일한 비중으로 다뤄지지 않고 있는 불완전 변태 곤충과 완전 변태 곤충 간의 비교 연구가 가능해집니다. 더 광범위한 사용은 *C. morosus* 실험실 모델 생물로서의 활용은 일관되지 않고 재현 불가능한 사육 조건과 발달 및 생존에 대한 명확한 기준점의 부재로 인해 제한되어 왔습니다. 본 연구에서는 여러 연구실에서 적용 가능한 정의된 배양 조건과 예상 결과를 포함한 단계별 프로토콜을 제시하며, 이는 배아 발생 추적, 종단적 발달 및 생식 결과 실험을 포함한 다양한 응용 연구를 지원합니다.
C. morosus는 사육이 쉬워 실험실 연구 및 교육 환경 모두에 적합합니다. 단성생식으로 번식할 수 있는 능력6 덕분에 복잡한 교배 설정이 필요하지 않아 유지 관리 요구 사항이 줄어들고 개체군 관리가 간편합니다. 성공적인 사육을 위해서는 통제된 환경 조건이 유리하지만, 다른 많은 실험실 모델과 비교했을 때 사육 방법은 단순하고 비용 효율적입니다. C. morosus는 아이비(Hedera helix), 블랙베리(Rubus fruticosus) 또는 장미 잎(Rosa spp.)과 같은 일반적인 식물체를 잘 먹습니다. 이 시스템의 다른 장점으로는 자절, 다리 재생 능력7, 큰 체구, 그리고 다양한 기주 식물을 먹을 수 있는 능력이 있습니다. 하지만 공개된 게놈 서열의 부재, 상대적으로 긴 발달 시간, 그리고 주입을 어렵게 만드는 단단한 배아 외막8과 같은 한계점도 있습니다. 이러한 한계에도 불구하고, C. morosus는 연구 및 교육 응용 분야 모두에서 실용적이고 효과적인 모델을 제공합니다.
C. morosus의 표준화된 사육 프로토콜은 연구 연구에서 일관되고 재현 가능한 결과를 도출하는 데 매우 중요합니다. 문헌에 C. morosus에 관한 다수의 실험실 연구가 보고되어 왔으나6,9,10,11,12, 저희가 알고 있는 바로는 현재까지 실험실 내 C. morosus 사육을 위한 심층적인 프로토콜은 발표된 바 없습니다. 본 연구에서 저희는 알, 부화 유충, 그리고 생식적으로 성숙한 성체의 사육을 포함하여, C. morosus 실험실 배양을 위한 포괄적인 표준 프로토콜 세트를 성공적으로 구축하였습니다. 이러한 방법들을 통해, 저희는 더 넓은 생물학 연구 커뮤니티가 이 곤충을 더 쉽게 활용할 수 있도록 하는 것을 목표로 합니다.
프로토콜
1. 환경적 사육 조건
- 환경 조건을 다음 기준에 따라 조절한 기후 제어실 또는 인큐베이터에서 실험실 배양을 유지한다: 23 °섭씨, 상대 습도 70%, 광주기 12시간 밝음-12시간 어두움
참고: 이러한 조건에서, C. morosus 알은 낳은 후 약 74~80일 후에 부화할 것으로 예상된다.
2. 메시 울타리 시설의 설치 및 유지관리
참고: 사육에는 세 면에 직물 메쉬 환기구가 있는 메쉬 곤충 사육장이 권장된다. C. morosus61 x 61 x 91.5 cm 크기의 사육장은 성체 최대 50마리까지 사육하거나, 새로운 집단을 설립할 때에는 부화된 개체 최대 500마리까지 유지하는 데 적합하다.
- 적절한 크기의 메쉬 울타리를 선택한다. 동물을 넣기 전에 용기가 깨끗하고 잔해물이 없는지 확인한다.
- 성체를 이용하여 새로운 집단을 설립할 경우, 25마리를 넣는다.–청결한 61cm × 61cm × 91.5cm 크기의 메쉬 용기에 성숙한 암컷 50마리를 넣는다.
참고: 메쉬 구멍은 0.2 범위 내에 있어야 한다.–1.0 mm로 하여 작은 1령 유생이 탈출하는 것을 방지한다. - 새로운 집단을 부화된 병아리로 구축할 경우, 약 500마리 이하의 병아리를 깨끗한 61cm × 61cm × 91.5cm 크기의 메쉬 사육장으로 옮긴다.
3. 먹이 주기 및 유지 관리
- 케이지 청소 시 곤충들이 사육장 내에 그대로 있도록 한 후, 잎에서 곤충을 조심스럽게 제거하고 청소하는 동안 메쉬 사육장 바닥에 옮겨 놓는다.
참고: 세척 과정은 약 10분 정도 소요될 것으로 예상됨–1개의 케이지당 20분 - 일주일에 한 번 아이비, 가시덩굴 또는 장미와 같은 신선한 잎을 공급한다. 모든 식물성 재료는 농약이 전혀 없는지 확인해야 한다. 새장에 넣기 전에 수돗물로 잎을 세척하여 표면의 잔해물과 오염물질을 제거한다.
- 줄기는 수돗물이 담긴 작은 병이나 용기에 맞게 잘라서 잎의 수분을 유지할 수 있도록 한다. 준비한 잎을 용기 안에 넣되, 잎이 들뜨고 곤충이 접근할 수 있도록 주의한다. 잎을 넣은 후에는 용기를 조심스럽게 닫는다.
- 매주 케이지 청소 시, 울타리 바닥에서 시든 또는 마른 잎과 축적된 배설물을 제거한다.
참고: 잎이 마르거나 부rittle해지거나 시들거나 변색되는 등 탈수 증상이 나타날 경우 잎을 교체하십시오. 청결한 환경을 유지하는 것은 군집의 건강과 복지에 필수적입니다. - 매일 각각의 사육장에 약간의 물을 분무한다.–250 mL 스프레이 병에서 수돗물을 2회 분사하여 적절한 수분 공급을 확인한다.
참고: 이것은 특히 중요하다. 부화 후 첫날. 먹이가 빠르게 고갈되는 경우 밀도를 낮춘다.
4. 수집 및 유지 관리 Carausius morosus 부화된 병아리
참고: 본 연구에서는 다음을 사용한다 “새끼 병아리” 알에서 부화된 직후의 개체(제1령)를 지칭하기 위해 “약충” 참조함 ~하기 위해 후배아 탈피 후의 유생 단계.
- 새롭게 부화된 병아리를 담기 위해 6 cm 페트리접시를 준비한다.
- 무딘 플라스틱 집게를 사용하여, 500마리 이하의 부화된 유충을 깨끗한 61 cm × 61 cm × 91.5 cm 크기의 메쉬 울타리 안으로 조심스럽게 옮긴다.
참고: 완전히 부화하여 외골격 확장이 끝난 나이ymph만을 채집하십시오. 나이ymph가 알에서 완전히 부화하기 전에 간섭할 경우 신체 신장을 방해하여 조기 사멸을 유발할 수 있습니다. 비슷한 이유로, 메쉬 사육장으로 나이ymph를 옮긴 후 직접적인 취급을 최소화하려는 노력을 기울이십시오. - 3절에 설명된 대로 신선한 잎을 제공한다.
- 새로운 집단 사육 용기를 다음 정보로 표시한다: 난괴 채집 일자(들), 부화 일자 또는 부화 기간 범위, 그리고 추가된 부화 새끼의 수.
참고: 이 방법은 사육 환경에서의 경과 시간을 추적하여 생식 성숙기의 시작 시점을 예측한다. - 부화 후 각각의 사육 공간을 이식한 직후에 약간의 물안개를 뿌리고, 그 후에는 매일 1회씩 물안개를 뿌린다.–250 mL 스프레이 병에서 수돗물을 2회 분사하여 적절한 수분 공급을 확인한다.
참고: 이는 부화 후 첫날에 특히 중요하다. 부화된 개체는 성체가 될 때까지 동일한 사육 공간에서 사육할 수 있다. 1절에 기술된 실험실 조건에서 약 13%의 부화 개체가 성체까지 생존한다.–5개월 (표 1). - 주간 케이지 청소 시 죽은 또는 손상된 병아리를 모두 제거하여 오염을 방지한다.
5. 채집 및 유지 관리 C. morosus 난자
- 성숙한 암컷이 들어 있는 사육 용기를 연다.
- 장갑을 낀 손으로, 알과 배설물이 함께 있는 케이지 바닥의 기질을 조심스럽게 앞으로 밀어 앞쪽 열림 부분으로 모은다.
- 장갑 낀 손을 사용하여 시료를 조심스럽게 옮겨 15 cm 페트리접시에 담아 난자 채취를 진행한다.
6. 곤충의 안락사 및 사육 장치 폐기물 처리
참고: 언제 C. morosus 실험에 더 이상 필요하지 않거나, 죽었거나, 또는 난자가 필요하지 않은 경우:
- 안락사/곤충 폐기: 배양이나 실험에 더 이상 필요하지 않은 생물 또는 사체 곤충을 고온고압 살균 가능한 폐기물 봉투로 옮긴 후, -20도에서 보관하십시오. °최소 72시간 동안 C 냉동고에 보관한다.
- 난자 파괴: 과잉 번식을 방지하기 위해 모든 알을 제거한다 실험에 사용하지 않은 쥐나 페트리접시에서 꺼낸 시료는 고압증기 멸균이 가능한 폐기물 봉투에 넣고 -20도에서 보관하십시오. °최소 72시간 동안 C
- 폐기물 처리: 오염된 폐기물이나 계란 또는 곤충 채집에 사용된 기자재는 고압증기 멸균이 가능한 폐기물 봉투에 넣고, -20℃에서 보관한다. °최소 72시간 동안 C
- 냉동한 후에는 고온고압 살균 가능한 폐기물 봉투를 생물학적 위험물용 쓰레기통으로 옮겨 적절히 폐기한다.
참고: 다음과 같이 하십시오. C. morosus 인도 외 지역에서는 침입종이므로, 환경으로의 우연한 유출을 방지하기 위해 위에 설명된 대로 모든 재료를 적절히 폐기하는 것이 중요하다.
7. 난자 채취
- 둔한 플라스틱 집게를 사용하여 각 알을 조심스럽게 집어 올린 후 깨끗한 6 cm 페트리디쉬에 넣는다.
참고: 성숙한 난은 딱딱한 외포자막(exochorion)으로 보호되어 있으며 짙은 갈색을 띠고 있어 식물의 씨앗과 유사하다. 계란을 선별할 때 흰색 배경을 사용하면 배설물과 난을 구분하는 데 도움이 될 수 있다. - 접시에 채취 날짜와 시간을 기재하여 추적 관리할 수 있도록 한다. 배양 중에는 통풍을 위해 뚜껑을 열어 둔다.
참고: 200개의 알을 보관하는 데에는 6cm 페트리접시로 충분하다. - 예상 부화 시기 약 1주일 전(74일차)–난생 후 80일; Kovacikova & Extavour, 미공개 데이터), 페트리 접시 뚜껑을 다시 덮는다.
- 예상 부화일 이전부터 달걀 용기를 매일 점검하여 부화되는 병아리의 출현을 관찰한다.
8. 기대 수명
- 부화 후, 1절에서 설명한 실험실 조건 하에서 평균적으로 부화 후 139일째에 생식 성숙기에 도달할 때까지 개체들이 5~6회의 탈피를 거치는 과정을 관찰한다(표 1).
- 이 프로토콜을 따르기 위해, 다음의 배양 조건에서 발생 시기를 다음과 같이 정의한다: 배아 발생 기간(알 낳기에서 부화까지)은 74시간이다.–80일; 부화 후 성숙기(산란 시작)까지의 시기는 약 135일이며, 이는 산란에서 성숙기까지 약 200일에 해당하고, 산란에서 사망까지의 전체 수명은 약 9.5개월이다.
결과
우리는 2024년 9월부터 2025년 11월 사이에 C. morosus를 알부터 생식 성숙 성체까지 실험실에서 성공적으로 사육한 데이터를 수집했습니다. 이 14개월의 기간 동안, 우리는 성체 사망률, 산란 수, 알의 부화 시기, 부화 유충의 성체 생존율 중 하나 이상의 항목을 설정, 유지 및 모니터링하기 위해 5개의 케이지를 운영했습니다. 우리의 방법은 병원균 관련 질환이나 생식 능력 저하와 같은 최적이지 않은 결과의 징후 없이 장기간 군집을 유지하는 것을 지원합니다. 2년 이상의 연속 배양 기간 동안, 우리는 병원균 관련 집단 폐사 현상을 관찰하지 않았으며, 알과 부화 유충의 생산량은 세대를 거쳐 안정적으로 유지되었습니다.
~에 표시된 데이터 그림 1 및 그림 2 설치 단계부터 부화 개체의 성체 도달까지 모니터링한 5개 케이지의 관찰 결과와 각 케이지별 산란 수 및 성체 사망률을 제시한다. 각 케이지의 창시자 개체들이 성적 성숙에 도달하여 산란을 시작한 후, 산란 시작 시점의 초기 개체군을 설정하기 위해 각 케이지에 존재하는 성체의 수를 기록하였다. 시간에 따른 각 케이지의 성체 수는 다음의 [그림/표]에 나타나 있다. 그림 1 및 표 1우리는 생존율의 지속적인 감소를 연령 관련 사망으로 해석합니다.
성체 생존율을 관찰한 동일한 5개 케이지에서 산란량 또한 병행하여 모니터링하였습니다(그림 1 및 그림 2). 케이지당 일일 산란 수는 산란 시작 후 첫 30~50일 동안 가장 높았으며, 그 이후에는 점차 감소하였습니다. 총 산란량은 케이지마다 차이가 있었으나(표 2), 이러한 일반적인 패턴은 5개의 반복 케이지 모두에서 일관되게 나타났습니다. 총 105개의 알 묶음(egg batch)에 대해 50일 동안 부화 역학을 모니터링하였으며, 여기서 각 알 묶음은 24시간 이내에 동일한 케이지에 산란된 알의 집단을 의미합니다. 그림 3에 제시된 묶음 크기 분석을 위해 75개의 묶음을 소형, 중형, 대형 범주로 분류하였습니다. 분석 결과, 묶음 크기와 관계없이(그림 3B), 한 묶음에서 첫 번째 알이 부화한 후 12일 이내에 90% 부화 완료에 도달하는 것을 확인하였습니다(그림 3D). 한 묶음에서 첫 번째 개체가 부화한 후 특정 시점까지 부화한 알의 비율을 나타내기 위해 "부화 완료"라는 용어를 사용하였으며, 90% 부화 완료일까지의 알 묶음 분포를 보면 대부분의 묶음이 첫 부화 개체 출현 후 부화 10일에서 14일 사이에 이 임계값에 도달했음을 알 수 있습니다(그림 3C).
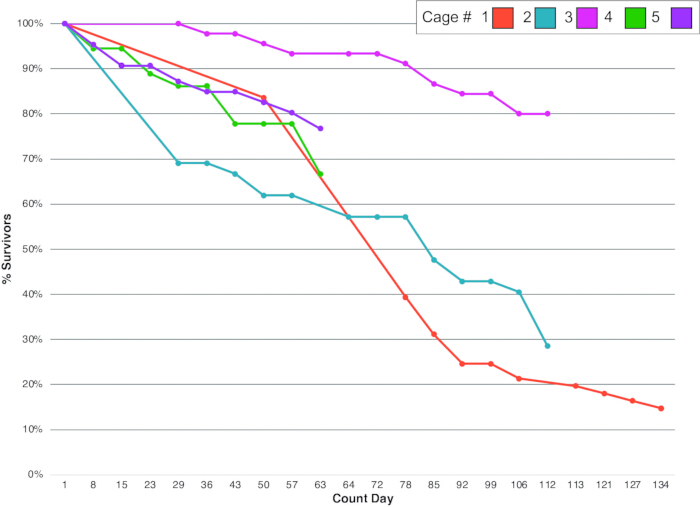
그림 1성체 사망률 역학. 5회 반복 실험에 따른 생존 궤적 *C. morosus* 시간 경과에 따른 실험 케이지의 변화입니다. 각 모니터링 케이지 내 개체들의 시간 경과별 생존율을 그래프로 나타냈습니다. 다음의 요약 지표를 참조하십시오. 표 1. 이 그림의 더 큰 버전을 보시려면 여기를 클릭하십시오.
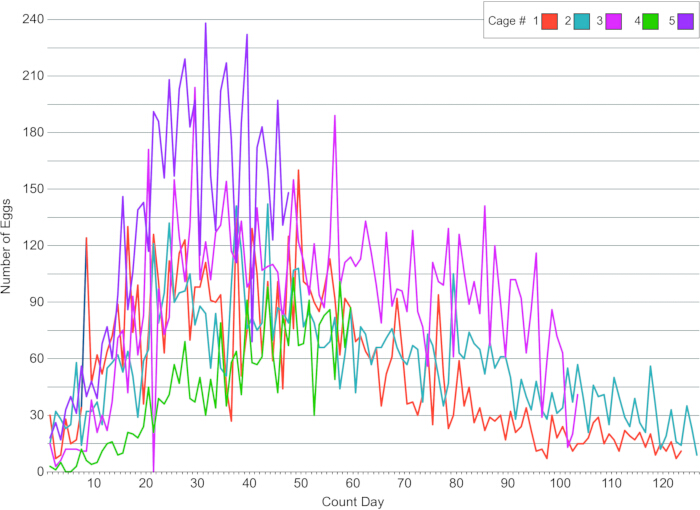
그림 2. 산란 역학. 그림 1에서 모니터링한 동일한 5개 케이지에서 수집된 알의 수. 케이지 1부터 5까지 각각 47, 58, 106, 129, 132일 동안 매일 모니터링하였다. 그래프는 산란 시작 후 첫 126일 동안의 데이터를 보여준다. 요약 지표는 표 2를 참조하십시오. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
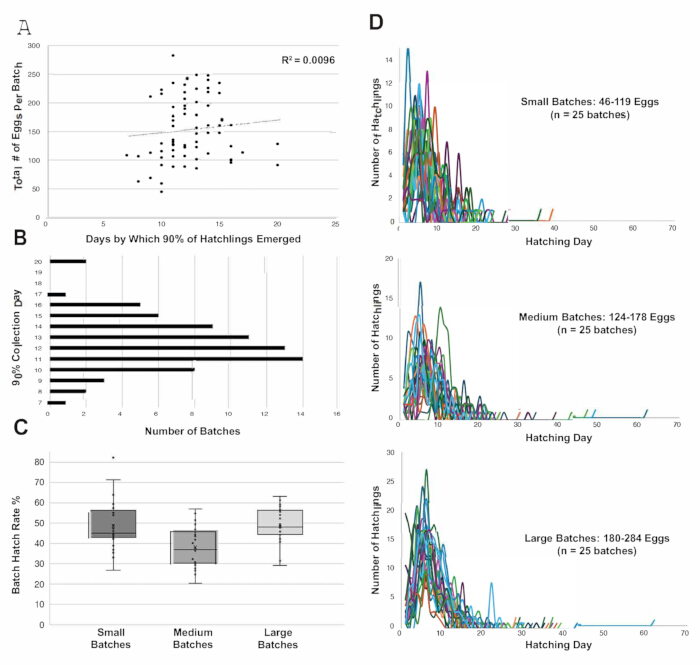
그림 3. 알 부화 역학. (A) 배치당 총 알 수와 부화율 90%에 도달하는 데 필요한 일수 사이의 관계. (B) 부화 7~20일 사이에 부화율 90%에 도달한 날짜별 알 배치의 분포. (C) 소형, 중형 및 대형 알 배치에 따른 배치 부화율의 분포. n = 배치 크기 범주당 25개 배치. (D) 배치 크기 분석에 사용된 75개 알 배치의 70일 수집 기간 동안의 부화 궤적. 총 105개의 알 배치를 모니터링했으며, 여기에 표시된 분석을 위해 75개 배치를 삼분위수 컷오프를 사용하여 총 알 수별로 그룹화했다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
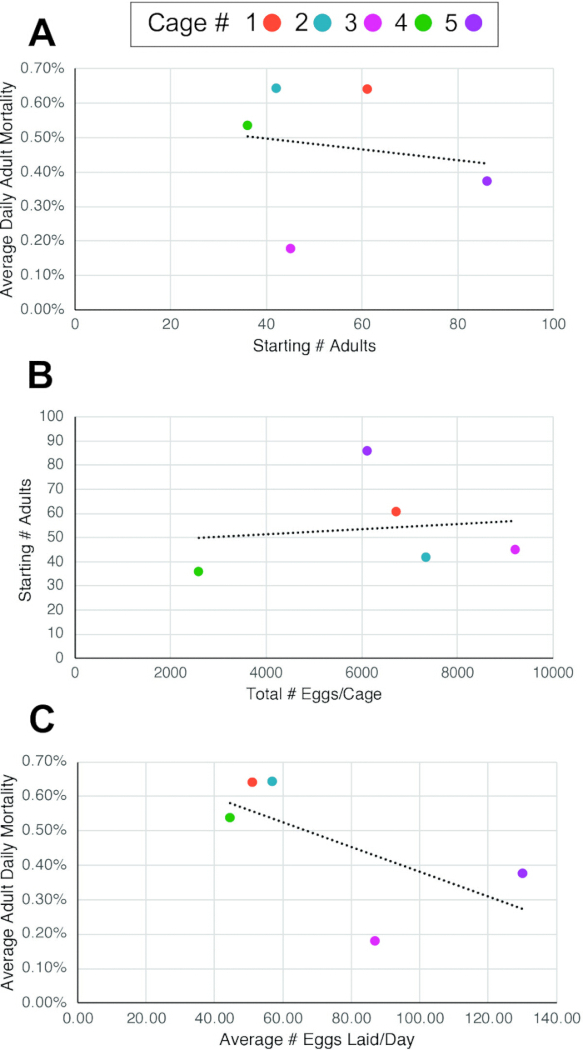
그림 4케이지당 성체 수, 성체 사망률 및 산란량 사이의 관계. (A) 유의미한 관계가 없다 (R2 성인 일일 평균 사망률과 케이지 내 초기 성체 수 사이에 (p = 0.025) 유의미한 상관관계가 있었습니다. (B) 유의미한 관계가 없다 (R2 = 0.017) 총 산란량과 케이지 내 초기 성체 수 사이에 유의미한 상관관계가 있는 것으로 나타났다. (C) 중간 정도의 음의 상관관계(R2 = 0.411)는 일일 평균 산란량과 성체 일일 평균 폐사율 사이의 상관관계를 나타낸다. 성체 일일 평균 폐사율 = (총 폐사율(%)) / (총 모니터링 일수). 이 그림의 확대 버전을 보시려면 여기를 클릭하십시오.
| 케이지 번호 | 이전 케이지 번호 | 부화 첫날 설립 모체 케이지에 새끼 추가됨 | 최종 부화일 설립 케이지에 새끼 돼지 추가 | # 부화 새끼를 케이지에 추가함 | 부화 소요 일수 범위 추가되었습니다 | 케이지 시작부터 성체 수 측정까지의 평균 시간 | 성체 계수 첫째 날 | 성충이 알을 낳기 시작한 첫째 날 | 부화 후 성체까지 소요된 시간 | 부화와 산란 사이의 경과 시간 | 초기 성체 수 | 부화 개체의 성체까지의 생존율 후드 | 성체 계수 마지막 날 | 최종 성체 수 | 성인 모니터링 기간 및 인원수 [일] | 모니터링 기간 동안의 성인 평균 사망률 [%] | 성인 일일 평균 사망률 [%] |
| 1 | 7 | 12/7/ 2024 | 12/21/ 2024 | 검출되지 않음 | 14.00 | 166.00 | 5/29/ 2025 | 5/29/ 2025 | 173.00 | 173.00 | 61.00 | 검출되지 않음 | 10/9/ 2025 | 9.00 | 133.00 | 85.25% | 0.64% |
| 2 | 8 | 2/10/ 2025 | 3/9/ 2025 | ND | 27.00 | 130.00 | 7/17 /2025 | 7/17/ 2025 | 157.00 | 157.00 | 42.00 | 검출되지 않음 | 11/5/ 2025 | 12.00 | 111.00 | 71.43% | 0.64% |
| 3 | 9 | 4/5/ 2025 | 4/12/ 2025 | 검출되지 않음 | 7.00 | 110.00 | 7/17/ 2025 | 7/27/ 2025 | 103.00 | 113.00 | 45.00 | 검출되지 않음 | 11/5/ 2025 | 36.00 | 111.00 | 20.00% | 0.18% |
| 4 | 10 | 5/8/ 2025 | 5/22/ 2025 | 350 | 14.00 | 121.00 | 9/4/ 2025 | 9/13/2 025 | 119.00 | 128.00 | 36.00 | 10.29% | 11/5/ 2025 | 24.00 | 62.00 | 33.33% | 0.54% |
| 5 | 11 | 5/23/ 2025 | 6/6/ 2025 | 536 | 14.00 | 117.00 | 9/4/ 2025 | 9/24/ 2025 | 104.00 | 124.00 | 86.00 | 16.04% | 11/5/ 2025 | 66.00 | 62.00 | 23.26% | 0.38% |
| 평균값 | 15.20 | 128.80 | 131.20 | 139.00 | 54.00 | 13.17% | 29.40 | 95.80 | 46.65% | 0.48% |
표 1: 실험 케이지별 성체 생존 및 사망 역학. 5개의 반복 실험 케이지에 대한 성체 생존 결과. 각 케이지에 대해 케이지 설치 날짜 범위, 각 케이지 설치에 사용된 부화 개체 수(5개 중 2개 케이지), 성체까지의 부화 개체 생존율(5개 중 2개 케이지), 케이지 설치부터 성체 수 산정 시작 및 산란 시작까지의 시간, 성체 모니터링 기간, 시작 및 종료 시점의 성체 개체군 크기, 모니터링 기간 동안의 성체 사망률 및 일평균 사망률을 보고한다. 성체까지의 부화 개체 생존율은 시작 부화 개체 수가 확인된 케이지에 대해서만 계산되었다.
| 케이지 번호 | 알 수집 시작일 | 알 수집 종료일 | 알 수집 기간 [days] | 케이지당 총 알 수 | 일평균 산란 수 | 초기 성체 수 | 초기 성체당 총 알 수 | 초기 성체당 일평균 알 수 |
| 1 | 5/29/2025 | 10/8/ 2025 | 132.00 | 6721.00 | 50.92 | 61.00 | 110.18 | 0.83 |
| 2 | 7/4/2025 | 11/10/2025 | 129.00 | 7333.00 | 56.84 | 42.00 | 174.60 | 1.35 |
| 3 | 7/27/2025 | 11/10/2025 | 106.00 | 9198.00 | 86.77 | 45.00 | 204.40 | 1.93 |
| 4 | 9/13/2025 | 11/10/2025 | 58.00 | 2583.00 | 44.53 | 36.00 | 71.75 | 1.24 |
| 5 | 9/24/2025 | 11/10/2025 | 47.00 | 6104.00 | 129.87 | 86.00 | 70.98 | 1.51 |
| 평균 | 94.40 | 6387.80 | 73.79 | 54.00 | 126.38 | 1.37 |
표 2: 실험 케이지별 알 생산량. 성체 성숙 개체들이 포함된 5개의 반복 실험 케이지의 산란 결과입니다. 각 케이지에 대해 알 수집 시작일 및 종료일, 총 알 수집 기간, 케이지당 누적 알 생산량 및 일일 평균 산란 수를 보고합니다.
토론
여기에 상세히 기술된 사육 방법은 C. morosus의 실험실 집단을 유지하기 위한 간단하고 재현 가능한 프레임워크를 제공합니다. C. morosus는 오랫동안 실험실에서 사육되거나 반려동물로 길러져 왔으나, 실험실 연구를 위한 사육 프로토콜은 연구마다 차이가 있었습니다6,9,10,11,12. 일관된 환경 조건과 급여 관행을 보장하는 것은 C. morosus를 발달, 생리 및 진화 연구를 위한 신뢰할 수 있는 실험실 모델 생물로 만드는 데 중요합니다.
다른 모델 곤충과 비교한 C. morosus의 발달 시기
초파리 Drosophila melanogaster와 같은 완전변태 곤충과 비교하여, C. morosus는 더 느린 발달 속도와 더 연장된 유충기를 보입니다. D. melanogaster는 25 °C에서 약 24 h 만에 배아 발생을 마치고 10–12일 이내에 생식 성숙에 도달하는 반면13, 본 연구의 사육 조건에서 C. morosus는 배아 발생에 74–80일이 소요되며, 부화 후 생식 성숙에 이르기까지 약 135–139일이 걸려 23 °C에서 산란부터 생식 성숙까지 총 약 200일이 소요됩니다(데이터 미제시). 이러한 연장된 일정은 불완전변태 곤충과 완전변태 곤충 사이의 근본적인 생리학적 및 진화적 차이를 반영하며14,15, 대벌레목(Phasmatodea) 전반에서 반복적으로 발견되는 특성입니다16,17,18. 귀뚜라미 Gryllus bimaculatus와 같은 다른 불완전변태 곤충들은 더 짧은 기간 내에 배아 발생을 마치고 성적 성숙에 도달하지만(29 °C에서 각각 10일 및 6주19), C. morosus의 느린 발달 과정은 재현 가능한 연구와 배아 발생 및 유충 발달에 대한 세밀한 종단적 연구를 수행할 수 있는 독특한 기회를 제공합니다.
엽성 공급원 및 급이 관행
본 프로토콜에서는 연중 캠퍼스 내 동일한 장소에서 수집한 담쟁이덩굴(Hedera helix)을 C. morosus 군집의 주 먹이원으로 사용하는 방법을 보고합니다. 담쟁이덩굴을 모든 실험실에서 쉽게 구할 수는 없지만, 블랙베리류(Rubus spp), 쥐똥나무류(Ligustrum spp.), 피라칸타류(Pyracantha spp.), 장미류(Rosa spp.), 외꽃산가시나무(Crataegus monogyna), 참나무류(Quercus spp), 개암나무류(Corylus spp.)를 포함한 여러 대체 식물 먹이가 C. morosus 군집 유지에 적합한 것으로 보고되었습니다20. 외부에서 수집한 잎을 사용할 때 고려해야 할 중요한 점은, 표준화된 먹이를 사용하는 실험실 시스템(예: Drosophila melanogaster)보다 영양 성분의 제어가 어려워 영양학적 변동성이 발생할 가능성이 있다는 것입니다. 이를 제한하기 위해 우리는 모든 계절에 걸쳐 동일한 위치의 동일한 식물 종을 사용하였으며, 정기적인 케이지 관리 중에 일주일에 한 번 모든 케이지에 잎을 제공하였습니다. 먹이용으로 사용된 담쟁이덩굴 가지는 일반적으로 새잎과 성숙한 잎이 섞여 있었으며, 특정 잎 발달 단계의 가지를 따로 선택하지 않았습니다. 모든 잎은 케이지에 넣기 전에 세척하였습니다. 일관성을 유지하고 군집 규모를 관리하기 위해, 모든 잎을 제거하고 같은 날 새 잎으로 교체하는 주간 교체 일정을 시행하였습니다. 절단된 담쟁이덩굴 잎은 일주일 동안 수분을 유지할 수 있도록 케이지 내의 물이 담긴 용기에 보관하였습니다. 대부분의 경우 잎은 일주일 내내 좋은 상태를 유지했으나, 간혹 마르거나 소모되는 경우가 있었으며 이 경우 일주일이 되기 전에 잎을 교체하였습니다.
군락 크기, 생존율 및 성체 번식
적절한 콜로니 구성과 개체군 밀도의 세심한 관리는 개체군의 건강을 유지하는 데 핵심적이었습니다. 61 cm x 61 cm x 91.5 cm 크기의 사육장당 부화 개체 최대 약 500마리 또는 성체 50마리를 유지함으로써 안정적인 환경, 콜로니 유지 및 재현 가능한 발달 관찰이 가능했습니다.
케이지 내 창시 성체 수와 일일 평균 사망률을 비교한 결과(그림 4A 및 표 1), 이 두 매개변수 사이에 예측 가능한 관계는 나타나지 않았습니다. 마찬가지로, 창시 성체의 총 수와 총 산란 수 사이에도 강한 예측 관계는 없었습니다(그림 4B, 표 1 및 표 2). 대신, 일일 평균 성체 사망률이 낮은 케이지에서 일일 평균 산란 수가 더 높은 경향이 완만하게 나타났습니다(그림 4C). 그러나 케이지 간의 차이는 성체마다 산란 수에 변동이 있음을 시사하며(표 1 및 표 2), 이는 성체의 생존 외의 요인이 다산 패턴에 기여하며 개별 암컷이 매일 낳는 알의 수 또한 다를 수 있음을 의미합니다.
모든 모니터링 케이지의 산란량은 실험 과정 동안 전반적으로 감소했습니다(그림 2). 대부분의 케이지는 번식기 초기(첫 50일)에 일일 산란율이 가장 높았으며, 이후 생산량이 점진적으로 감소했습니다(그림 2). 이러한 패턴은 개체들이 일반적으로 부화 후 약 135일에 성성숙에 도달하여 산란을 시작하고, 약 90일 후(~부화 후 225일; 데이터 미제시)부터 폐사가 시작된다는 당사의 관찰 결과와 일치합니다.
부화의 타이밍 및 역학
모니터링한 알 배치 전반에서, 대부분의 부화는 첫 부화 개체가 나타난 후 12일이라는 일관된 기간 내에 발생했습니다(그림 3D). 마찬가지로, 배치 크기와 90% 부화 완료 시점 사이에는 상관관계가 없었으며(그림 3A), 대부분의 배치는 첫 부화 개체 출현 후 10일에서 14일 사이에 90% 부화 완료 단계에 도달했습니다(그림 3B). 이러한 예측 가능한 부화 기간은 C. morosus 군집 관리의 유용한 특징인데, 이는 부화 개체들을 비슷한 연령의 코호트로 그룹화할 수 있게 하여 발달 단계 설정을 개선하고 실험적 변동성을 줄여주기 때문입니다. 또한 대량 부화 시점을 알면 사육장 교체와 자원 할당을 더 효율적으로 계획할 수 있으며, 여기에는 사육장, 잎, 추적 재료의 적시 준비가 포함되는데, 이는 특히 대규모 또는 장기 연구에서 중요합니다. 유성 생식과 단성 생식을 하는 Phasmatodea 종들이 모두 연구되었지만, 생식 방식만으로 배아 발생 시점의 차이가 유발된다는 증거는 확인되지 않았습니다. 대신, 발달의 변이는 종 특이적이며 환경 조건의 영향을 받는 것으로 보고되었습니다2.
알 처리 및 기질 고려 사항
본 연구의 알 취급 방법은 사육장 바닥에서 알을 직접 수집하여 통기성이 있는 페트리 접시에서 배양하는 방식을 포함합니다. 이러한 접근 방식은 코코넛 섬유나 면 심지와 같은 기질에 알을 수집하는 귀뚜라미 시스템21과 달리 알을 쉽게 관찰할 수 있게 합니다. C. morosus 알의 단단한 외난막(exochorion)은 취급 과정 중의 보호 및 건조 방지 역할을 하여, 본 연구의 배양 조건 하에서 추가 기질 없이 페트리 접시 내에서 안전한 배양이 가능하도록 합니다. 종합하면, 이러한 표준화된 절차는 재현 가능한 발달, 행동, 유전 또는 생리학적 연구를 위해 건강한 C. morosus 집단을 유지하는 구조화된 접근 방식을 제공합니다. 일관된 환경 제어(23 °C, 70% RH, 12:12 LD), 정기적인 사육장 관리 및 예측 가능한 발달 일정 덕분에 C. morosus는 접근성이 높고 비용이 적게 드는 모델 시스템이 됩니다. 중요한 점은, 과밀, 동종 포식 또는 병원균 부하로 인해 군집이 빠르게 불안정해질 수 있는 일부 귀뚜라미 시스템22과 달리, C. morosus는 유지 관리가 쉬워 대규모 실험 및 여러 세대에 걸친 연구에 매우 적합합니다. C. morosus가 불완전 변태 모델 종으로 더 널리 채택됨에 따라, 표준화된 방법의 사용은 곤충 생물학의 여러 분야에 걸친 연구 간의 재현성과 비교 가능성을 높여줄 것입니다.
부화에서 성체까지의 생존율
본 연구에서의 부화 후 성충까지의 생존율(~13%)은 통제된 실험실 조건에서 C. morosus 약충의 생존을 다룬 다른 정량적 연구에서 보고된 수치보다 상당히 낮으며, 해당 연구에서는 칼로리 제한 시 68%, ab libitum 급여 시 최대 87%의 개체가 성충까지 생존하였습니다23. 이전 보고에 비해 본 연구의 군집에서 관찰된 생존율(~13%)이 낮은 이유는 동물 사육 방식의 차이 때문이며, 이는 결과적으로 본 연구의 배양 목적과 이전 연구의 목적이 서로 다르기 때문인 것으로 추측됩니다. 본 프로토콜은 개별 그룹의 생존을 극대화하기보다는, 크고 지속적으로 번식하는 군집을 유지하도록 설계되었습니다. 따라서 알에서 성충까지 개별 케이지에서 격리하여 사육한 이전 연구와 달리23, 본 연구에서는 동물을 상대적으로 높은 밀도로 유지하였습니다. 여기서 설명하는 고밀도 배양법은 특히 개체들이 밀집이나 경쟁에 더 민감할 수 있는 초기 약충 단계에서, 격리 사육에 비해 사망률을 높일 수 있다고 추측됩니다. 또한, 식물 잎을 일정한 크기의 디스크 형태로 잘라 급여한 개별 사육 방식과 비교했을 때23, 본 연구의 더 큰 케이지에서는 식물의 품질 차이가 영향을 미쳤을 가능성도 있습니다. 하지만 상대적으로 낮은 생존율에도 불구하고, 본 연구의 군집은 지속적으로 많은 수의 알을 생성했으며 시간이 지나도 안정적으로 유지되었습니다(그림 1, 그림 3, 표 1 및 표 2). 이는 여기서 설명하는 접근 방식이 장기적인 실험실 배양을 유지하는 데 효과적임을 시사합니다.
생존에 영향을 미치는 요인 및 프로토콜의 제한 사항
본 프로토콜의 여러 요인이 생존율에 영향을 미칠 가능성이 높으므로 주의 깊게 제어해야 합니다. 개체군 밀도는 중요한 매개변수이며, 특히 초기 령 단계에서 과밀 상태는 생존율을 낮출 수 있습니다. 생존에 영향을 주는 또 다른 매개변수는 적절한 수분 공급이며, 이 또한 초기 령 단계에서 특히 중요합니다. 프로토콜에 기술된 모든 절차와 타이밍은 본 연구에서 사용된 특정 환경 조건을 기준으로 합니다. 하지만 습도, 온도, 공기 흐름 또는 식물 종류의 변화는 분무 횟수, 잎 교체 주기, 알의 부화 시간 및 전반적인 생존율에 영향을 줄 수 있습니다. 예를 들어, 배양 조건이 더 건조한 경우에는 수분 유지를 위해 더 빈번한 분무와 식물 교체가 필요할 수 있습니다. 또한 식물 종에 따라 섭식과 발달이 달라질 수 있습니다. 이러한 요인들은 사육 조건과 실험 목적에 따라 조정되어야 합니다. 높은 유충 생존율, 개체별 추적 또는 행동 분석이 필요한 응용 분야에서는 초기 밀도를 낮게 설정하는 것이 바람직할 수 있습니다.
공개 사항
저자들은 선언할 이해관계 충돌이 없음을 밝힙니다.
감사의 글
본 프로젝트는 Howard Hughes Medical Institute의 연구원인 CGE에게 부여된 National Science Foundation Award IOS 22207477의 지원을 받았습니다. 우리는 Carausius morosus가 인도 타밀나두(Tamil Nadu) 지역이 원산지이며, 이 종의 실험실 배양 개체군이 적어도 1908년부터 인도 외부에서 유지되어 왔음을 인정합니다. 배양 개체군 설립에 사용된 초기 성충 그룹을 제공해 준 Stanislav Gorb와 Thies Büscher(Kiel 대학교)에게 진심으로 감사하며, 초기 콜로니를 구축한 이전 연구원 Upendra Bhattarai 박사(현재 소속: Brown 대학교)를 포함하여 Extavour 연구실의 모든 구성원들의 지원에 감사드립니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| 오토클레이브 가능 폴리프로필렌 백, 30.5 cm × 61 cm | VWR | 95042-554 | 곤충, 알 및 사육장 폐기물 처리용 |
| 생물학적 위험물 폐기함 | N/A | N/A | 냉동 후 폐기용 |
| 뭉툭한 플라스틱 핀셋 | Amazon | B07YZ5FB27 | 알 및 부화 유충 수집 및 취급용 |
| 항온실 또는 인큐베이터 | N/A | N/A | 23 °C, 70% RH 및 12:12시간 명암 주기 유지용 |
| 일회용 장갑 | N/A | N/A | 알 수집 및 폐기물 취급용 |
| 일회용 페트리 접시, 150 × 15 mm | VWR | 25384-326 | 알 수집용 |
| 일회용 페트리 접시, 60 × 15 mm | VWR | 25384-092 | 알 배양용 |
| 신선한 잎(아이비, 블랙베리 또는 장미 잎) | N/A | N/A | 살충제가 없는 먹이원 |
| 냉동고, -20 °C | N/A | N/A | 안락사/폐기 및 폐기 전 알 또는 폐기물 냉동용 |
| 메쉬 곤충 사육장 | Amazon | B09GS2CH1G | 곤충 사육용 |
| 분무기, 250 mL | Amazon | B000H88PCU | 메쉬 사육장 분무용 |
| 높은 유리 용기, 높이 18–23 cm | N/A | N/A | 물 및 식물 줄기 고정용 |
| 수돗물 | N/A | N/A | 분무 및 잎의 수분 유지용 |
| 흰색 분류 표면 또는 트레이 | N/A | N/A | 분류 시 알과 배설물을 구분하기 위한 용도 |
참고문헌
- Adamski Z, et al. Beetles as model organisms in physiological, biomedical and environmental studies: a review. Front Physiol. 2019;10:319.
- Schwander T, et al. On the repeated evolution of parthenogenesis in stick insects. Evolution. 2026;80(3):513-24.
- Arias AM. Drosophila melanogaster and the development of biology in the 20th century. Methods Mol Biol. 2008;420:1-25.
- Dürr V, König Y, Kittmann R. The antennal motor system of the stick insect Carausius morosus: anatomy and antennal movement pattern during walking. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. 2001;187(2):131-44.
- Roth HL. XIX. Observations on the growth and habits of the stick insect, Carausius morosus, Br.; intended as a contribution towards a knowledge of variation in an organism which reproduces itself by the parthenogenetic method. Trans R Entomol Soc Lond. 1917;64(3-4):345-86.
- Pijnacker LP. The maturation divisions of the parthenogenetic stick insect Carausius morosus Br. (Orthoptera, Phasmidae). Chromosoma. 1966;19(1):99-112.
- Browaeys-Poly E. Extracellular matrix of the regeneration chamber and plasma membranes of the epidermis during leg regeneration in an insect Carausius morosus. Tissue Cell. 1991;23(1):41-55.
- Di Cristina G, et al. Pioneering genome editing in parthenogenetic stick insects: CRISPR/Cas9-mediated gene knockout in Medauroidea extradentata. Sci Rep. 2025;15(1):2584.
- Cavallin M. [“Substitutive polyembryony” and the problem of germinal line origin in the phasma Carausius morosus Br]. C R Acad Hebd Seances Acad Sci D. 1971;272(3):462-5.
- Giorgi F, Cecchettini A, Masetti M. Changes in the patterns of proteins stored and synthesized by developing embryos of the stick insect Carausius morosus Br. Comp Biochem Physiol B. 1990;95(1):107-13.
- Pijnacker LP, Godeke J. Development of ovarian follicle cells of the stick insect, Carausius morosus Br. (Phasmatodea), in relation to their function. Int J Insect Morphol Embryol. 1984;13(1):21-8.
- Pijnacker LP. Effect of centrifugation of the eggs on the sex of Carausius morosus Br. Nature. 1966;210(5041):1184-5.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila model system. Genetics. 2015;201(3):815-42.
- Truman JW, Riddiford LM. The evolution of insect metamorphosis: a developmental and endocrine view. Philos Trans R Soc Lond B Biol Sci. 2019;374(1783):20190070.
- Truman JW, Riddiford LM. The origins of insect metamorphosis. Nature. 1999;401(6752):447-52.
- Bedford GO. Description and development of the eggs of two stick insects (Phasmatodea: Phasmatidae) from New Britain. Aust J Entomol. 1977;15(4):389-93.
- Kim MJ, et al. Development of a phenology model for egg hatching of walking-stick insect, Ramulus mikado (Phasmatodea: Phasmatidae) in Korea. Forests. 2023;14(9):1710.
- Lee J, et al. Temperature-dependent development and oviposition models of Ramulus irregulariterdentatus (Phasmida: Phasmatidae). J Asia Pac Entomol. 2018;21(3):903-13.
- Donoughe S, Extavour CG. Embryonic development of the cricket Gryllus bimaculatus. Dev Biol. 2016;411(1):140-56.
- Conle O, Hennemann F, Riquelme PV, Kneubühler B. Phasmatodea [Internet]. 2000. Available from: https://www.phasmatodea.com/
- Ventura MK, Stull VJ, Paskewitz SM. Maintaining laboratory cultures of Gryllus bimaculatus, a versatile orthopteran model for insect agriculture and invertebrate physiology. J Vis Exp. 2022; (184):e63277.
- de Miranda JR, et al. Virus diversity and loads in crickets reared for feed: implications for husbandry. Front Vet Sci. 2021;8:642085.
- Roark AM, Bjorndal KA. Bridging developmental boundaries: lifelong dietary patterns modulate life histories in a parthenogenetic insect. PLoS One. 2014;9(11):e111654.
재인쇄 및 허가
