본 프로토콜은 가스 교환 측정과 동시에 상처 유도 휘발성 물질 배출의 시작 시점, 정점 시간 및 역학을 분석하기 위한 표준화된 챔버 내 절단 방법을 제공합니다.
방법 논문
잎 상처 휘발성 물질의 실시간 정량 및 가스 교환 분석을 위한 챔버 내 절단법
31 조회수
⸱
2026년 9월 11일
이 논문에서
요약
초록
식물 잎에서 방출되는 휘발성 유기 화합물(VOCs)은 스트레스 신호 전달, 식물-대기 상호작용 및 식물 방어에서 핵심적인 역할을 합니다. 그중에서도 상처 유도 휘발성 유기 화합물(wVOCs)은 기계적 손상, 초식 작용 또는 환경적 교란이 발생한 후 수 초 내에 방출됩니다. 이러한 방출 역학은 조직 파괴의 시점, 심각도 및 방법에 크게 의존합니다. 그러나 기계적 아티팩트, 가변적인 노출 조건, 그리고 손상과 측정 사이의 지연 시간으로 인해 정확한 정량화는 여전히 어려운 과제로 남아 있습니다. 본 연구에서는 wVOCs 및 가스 교환의 실시간 모니터링을 위한 표준화된 챔버 내 잎 절단 프로토콜을 제시합니다. 안정적인 빛, 습도, CO2 및 온도 조건 하의 밀폐된 챔버 내에서 깨끗하고 제어된 절단이 가능하도록 휴대용 가스 교환 챔버에 외과용 커터를 통합하였습니다. 양성자 전이 반응 비행 시간 질량 분석기(PTR-TOF-MS)를 사용하여 챔버 배출구에서 휘발성 물질의 방출을 연속적으로 측정함으로써 지연과 신호 왜곡을 최소화했습니다. 이 설정을 통해 방출 시작 시점, 피크 시간, 최대 상승률 및 총 방출량을 높은 시간적 충실도로 분석할 수 있습니다. Quercus rubra, Acer platanoides 및 Gossypium hirsutum에 이 방법을 적용하여, 서로 다른 잎 유형 전반에 걸쳐 뚜렷한 상처 유도 방출 패턴을 구분할 수 있음을 입증하였습니다. 기존 샘플링과 관련된 지연을 제거함으로써, 이 방법은 상처 유도 방출의 전체 운동학적 궤적을 분석하고 이전 접근 방식의 주요 한계점을 극복합니다. 이는 식물 생리학, 생태 화학 및 식물-대기 상호작용 분야에서 신속한 스트레스 반응을 연구하기 위한 강력한 프레임워크를 제공합니다.
서론
식물은 빠르게 화학 신호를 방출하여 상처에 반응하지만, 해당 신호를 정확하게 포착하는 것은 기술적으로 여전히 어려운 과제입니다. 초식 동물에 의한 섭식, 바람으로 인한 손상 또는 기계적 자극이 발생한 후 수 초 이내에, 식물은 내부 방어 체계를 활성화하고 인접한 식물들을 준비시키는 일시적인 휘발성 유기 화합물(VOCs)의 급격한 방출을 일으킵니다1,2,3,4. 이러한 상처 유도 VOCs(wVOCs)에는 green leaf volatiles(GLVs), 메탄올, 단쇄 알코올 및 알데히드, 테르페노이드, 옥실리핀 유도체가 포함됩니다. 이들은 엽육 세포에서의 신규 합성 또는 수지 도관 및 트리콤과 같은 저장 구조의 파열을 통해 발생합니다. 즉각적인 스트레스 신호로서 wVOCs는 생리적 방어를 조절하고, 식물 간 통신을 매개하며, 대기 화학과 상호작용합니다1,5,6,7.
천연 초식 작용은 기계적 손상과 타액 및 미생물 유도물을 동시에 수반하므로, 실험적 연구에서는 물리적 손상에 대한 단독 반응을 분리하기 위해 모의 상처 처리를 사용합니다8. 하지만 wVOCs의 일시적인 특성으로 인해 이를 포착하는 것은 본질적으로 어렵습니다. 정적 헤드스페이스 샘플링과 가스 크로마토그래피-질량 분석법(GC-MS)을 결합한 기존 방식은 초기 방출 버스트를 놓치거나 그 동역학적 프로파일을 왜곡하는 경우가 많습니다9,10. 평형 도달 지연, 높은 배양 온도, 그리고 길어진 샘플링 라인은 체류 시간을 증가시키며, 특히 세스퀴터펜(sesquiterpenes)과 같은 반응성 화합물의 기록된 신호를 왜곡합니다9,11,12. 이러한 아티팩트들은 종합적으로 신호 강도를 감소시키고 상처로 유도된 휘발성 방출의 시간적 역동성을 흐리게 하여, 식물의 스트레스 반응 해석을 어렵게 만듭니다.
또한 많은 연구에서 챔버 외부의 잎에 상처를 입히기 위해 측정을 중단합니다. 이러한 중단은 가스 흐름을 불안정하게 만들고, 상처 생성 시점을 변화시키며, 절개 정밀도에 대한 제어력을 떨어뜨립니다.13,14,15그 결과, 부상 후 첫 몇 분 동안의 기억은 종종 소실되거나 왜곡됩니다.13, 정확히 방출률이 정점에 도달하고 특성 동역학 패턴이 나타나는 시점3,6,16,17일부 방법에서는 테플론 블레이드나 기계적 펀치를 사용하여 대용량 챔버 내부에서 잎 절제를 수행하였습니다.12,18,19하지만 이러한 설정은 커터의 이동이나 잎 강도의 차이로 인해 밀봉 불안정성, 불일치한 절단 길이, 그리고 불균일한 절개로 이어지는 경우가 많았습니다. 또한, 커다란 챔버 부피로 인해 공기 교체 시간이 지연되었고 휘발성 신호가 광범위해졌습니다.16종합적으로, 이러한 실험적 한계로 인해 안정적인 생리학적 조건 하에서 상처로 인해 유도되는 방출의 시간적 역학을 정확하게 특성화하는 것이 불가능합니다.
이러한 과제들을 해결하기 위해, 본 연구에서는 양성자 전이 반응 비행 시간 질량 분석법(PTR-TOF-MS)과 결합된 가스 교환 시스템에 외과용 커터를 통합한 실시간 챔버 내 상처 유도 프로토콜을 제시합니다. 이 프로토콜은 제어된 환경 조건에서 잎의 상처 유도와 휘발성 물질 검출을 동기화하는 동시에, 높은 시간 분해능으로 휘발성 물질의 플럭스와 가스 교환을 측정할 수 있게 합니다. 측정 챔버 내에서 잎 절단을 수행함으로써, 본 프로토콜은 기존 방식과 관련된 샘플링 지연을 최소화하고 빠르게 방출되는 상처 유도 휘발성 물질의 시간적 역동성을 보존하며, 서로 다른 기계적 특성을 가진 잎들에 적용 가능한 표준화된 절단 절차를 보여줍니다. 이러한 시간 분해능을 통해 상처 유도 휘발성 물질 방출의 시작 시점, 정점 도달 시간 및 종 특이적 역학을 직접적으로 특성화할 수 있습니다.
이 프로토콜은 다양한 잎 유형에 대한 적용 가능성을 입증하기 위해 해부학적 및 생리학적 특성이 서로 다른 세 가지 종(Quercus rubra, Acer platanoides, Gossypium hirsutum)을 사용하여 평가되었습니다. 모든 종에 동일한 측정 조건을 적용함으로써, 본 프로토콜이 실험적 변동성을 최소화하면서 광범위한 방출 패턴에 걸쳐 상처 유도 VOC 역동성을 분해할 수 있음을 보여줍니다. 이 접근 방식은 제어된 환경 조건 하에서 상처 유도 VOC의 고해상도 시간 측정 연구에 광범위하게 적용 가능합니다. 종합적으로, 이러한 특징들은 식물의 급격한 스트레스 반응을 조사하기 위한 표준화된 프레임워크를 제공하며, 다양한 종과 실험 시스템에 걸쳐 프로토콜을 적용하는 것을 용이하게 합니다.
프로토콜
모든 식물은 성장 챔버 내 제어 환경 조건에서 배양되었습니다. 사용된 시약 및 장비는 재료 표에 나열되어 있습니다.
1. 챔버 내 잎 절단기의 제작 및 설치
- 표준 측정 헤드의 내부 치수(4 cm × 2 cm)에 맞게 설계된 회전식 잎 절단기를 제작합니다.
- 기계적 안정성을 확보하기 위해 은납땜을 사용하여 스테인리스강 로드(직경 1 mm)에 면도날을 부착합니다.
주의: 면도날은 매우 날카롭습니다. 취급 시 베임 방지 장갑을 착용하십시오. 사용 후 면도날은 날카로운 물체에 대한 기관 실험실 안전 절차에 따라 폐기하십시오. 은납땜은 적절한 환기 시설 아래에서 수행하고 보호 안경을 착용하십시오. - 축 방향으로 자유롭게 회전할 수 있도록 날 고정 로드를 스테인리스강 주사기 바늘(외경 1.6 mm) 속에 삽입합니다.
- 회전 기능을 유지하면서 기밀 상태를 유지하기 위해 저방출 폴리테트라플루오로에틸렌(PTFE) 스토퍼를 사용하여 바늘의 양 끝을 밀봉합니다.
- 내부 절단기를 제어하여 회전시킬 수 있도록 로드의 근위단에 수동 회전 노브를 장착합니다.
- 절단기를 하단 챔버 절반에 고정하기 위해 스프링 황동판(두께 0.2 mm)으로 만든 두 개의 유연한 지지대를 바늘 외면에 부착합니다.
- 잎 표면과 접촉 없이 날을 삽입할 수 있도록 하단 챔버 가스켓에 삼각형 절개선을 만듭니다.
- 가스 누출을 방지하기 위해 저방출 밀봉 퍼티를 사용하여 삽입 지점을 밀봉합니다.
참고: 계속 진행하기 전에 절단기 설치로 인해 챔버 밀봉이 손상되지 않았는지 확인하십시오. 챔버가 완전히 닫히는지, 열전대가 잎 표면에 계속 접촉해 있는지, 그리고 가스 교환 시스템이 누출 징후 없이 안정적인 공기 흐름을 나타내는지 확인하십시오. 챔버 상태가 안정적인 것이 확인된 후에만 진행하십시오. 절단 길이가 약 10 mm가 되도록 날 길이를 선택하십시오. 통합 절단 메커니즘과 잎 챔버 내의 위치는 그림 1B에 나와 있습니다.
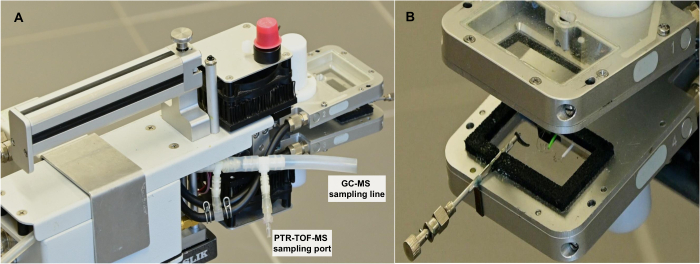
그림 1: 챔버 내 잎 절단기와 휘발성 물질 샘플링 라인이 통합된 수정된 가스 교환 시스템. (A) 수정된 가스 교환 시스템의 개요로, 휘발성 물질 수집을 위해 챔버 배출구 근처에 배치된 PTR-TOF-MS 샘플링 포트와 GC-MS 샘플링 라인을 보여준다. (B) 통합 절단 메커니즘과 상처 형성 중에 잎이 위치하는 영역을 보여주는 개방된 챔버의 확대도. 절단기는 챔버 내에 밀폐형으로 통합되어 있어, 측정 중에 인클로저를 열지 않고도 잎에 상처를 낼 수 있다. 이 구성은 제어된 환경 조건 하에서 휘발성 물질 배출과 가스 교환의 실시간 모니터링을 가능하게 한다. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
2. 휘발성 샘플링 경로의 구성
- 챔버와 휘발성 성분 분석기 사이의 튜빙 길이를 최소화하기 위해 챔버 배출구(그림 1A)에 Teflon T-piece(내경 1/16″ 또는 1/8″)를 설치합니다.
- 불활성 튜빙(예: FEP 또는 PTFE; 내경 1.6 mm)을 사용하여 배출구를 VOC 수집 시스템에 연결합니다. T-piece를 챔버 배출구 바로 옆에 설치하여 챔버와 휘발성 성분 분석기 사이의 튜빙을 가능한 한 짧게 유지함으로써, 내부 부피, 체류 시간 및 흡착 손실을 최소화합니다.
- 챔버 공기 흐름을 750 µmol s-1로 유지합니다.
참고: 짧은 불활성 튜빙은 반응성 화합물의 흡착과 체류 시간을 줄여줍니다.
3. 식물 재료의 준비
- Quercus rubra, Acer platanoides 및 Gossypium hirsutum을 제어 환경 챔버에서 낮 25 °C / 밤 20 °C, 상대 습도 60%, 광도 1000 µmol m-2 s-1, 광주기 16시간/8시간 조건으로 4개월 동안 재배합니다.
- 실험 전 과정 동안 식물을 주변 대기 CO2 농도(~430 ppm)에서 유지합니다.
- 모든 식물에 토양이 포장 용수량에 도달할 때까지 이틀마다 물을 줍니다.
- 발달 단계가 유사한 실험을 위해 완전히 확장된 비노화 잎을 선택합니다.
4. 잎 상처 유발 및 VOC 수집 실험
- 잎을 밀폐하고 환경 조건을 설정하십시오.
- 내부 커터가 장착된 큐벳에 완전히 확장된 부착 잎을 넣으십시오.
- 블록 온도를 다음으로 설정하십시오. 25 °C, 상대 습도를 60%로, 광화학 조도를 1000 µmol m-2 s-1 (90% 적색, 10% 청색), 그리고 다음으로 공기 흐름을 750 µmol s-1.
- 잎이 선택한 환경 조건 하에서 순 $\text{CO}_2$의 정상 상태 값에 도달할 때까지 적응하도록 둡니다.2 잎 밀폐 후 보통 20~30분 이내에 동화율, 기공 전도도 및 기저 VOC 신호가 안정 상태에 도달합니다.
- 가스 교환, 형광 및 VOC 모니터링 수행
- 1 Hz 해상도로 가스 교환과 VOC의 동시 측정을 시작하십시오.
- 가스 교환 측정을 완료한 후, 정상 상태의 형광 수율(Fs) 후 포화 펄스를 인가합니다 (8000 µmol m-2 s-1, 0.6초) ~를 통해 최대 형광 수율을 측정하기 위한 챔버 형광계(3055-FL) (Fm명적응 잎에서의 (′).
- 광합성 조명을 끄고 잎을 20분 동안 암적응시킨다.
- 잎의 암호흡을 측정하십시오.
- 초기 형광을 측정하십시오(F₀) 약한 변조 측정광을 사용하여 (0.03 µmol m-2 s-1), 그 후 암적응된 잎에서 최대 형광을 얻기 위해 포화 펄스를 가합니다 (Fm).
- 광합성 유효 방사(actinic light)를 다시 켭니다.
- 상처 유발 전 기저치가 안정될 때까지 동일한 환경 조건에서 VOC 및 가스 교환 측정을 계속하십시오.
참고: 상처를 내기 전에 선택한 환경 조건이 안정적으로 유지되고 있으며, 순 CO₂ 흡수량, 증산량 및 기저 VOC 신호가 정상 상태 값에 도달했는지 확인하십시오. 선택한 측정 설정 하에서 이러한 조건이 유지된 후에만 진행하십시오.
- 잎 상처 유도 및 VOC 수집
- 첫 번째 VOC 카트리지를 배출 라인에 삽입하고 이를 휴대용 정유량 공기 시료 채취 펌프에 연결하십시오. 200 mL min⁻¹의 일정 유량으로 카트리지를 통해 챔버 공기를 흡입하십시오.-1C3-C17 휘발성 물질 포집에 적합한 다층 스테인리스 스틸 흡착 카트리지(길이 10.5 cm, 내경 3 mm)를 사용하며, 여기에는 Carbotrap C 20/40 mesh(0.2 g), Carbopack B 40/60 mesh(0.1 g), Carbotrap X 20/40 mesh(0.1 g)가 채워져 있어야 하고, 시료 채취 방향을 따라 흡착 강도가 약한 것부터 강한 순으로 배열되어야 합니다.
참고: 샘플링 전, 200 mL/min의 속도로 고순도 헬륨을 카트리지에 통과시켜 카트리지를 컨디셔닝하십시오.-1 ~에서 3시간 동안 250 °C카트리지 샘플링을 통해 실험 목적에 따라 필요한 경우 화합물 식별을 위한 후속 오프라인 GC-MS 분석이 가능합니다. 카트리지 수집은 본 과정의 일부로 설명되어 있으나, 본 연구에서 제시된 대표 결과는 연속적인 PTR-TOF-MS 측정값으로부터 도출되었습니다. 대상 VOC의 휘발성 범위와 극성, 그리고 샘플링 조건에 맞는 흡착제를 선택하십시오. - 200 mL/min의 유량으로 15분 동안 상처 유도 전 VOC를 수집한다.-1.
- 카트리지를 교체하고 2분 동안 휘발성 유기화합물(VOCs)을 수집하십시오.
- 내부 커터를 회전시킵니다. 360° 챔버를 열지 않고 잎을 절제한 후 칼날을 초기 위치로 되돌리기 위함입니다.
참고: 챔버의 밀폐 상태를 유지하면서 닫힌 엽신 부위에 절개가 이루어지도록 잎의 위치를 잡으십시오. 잎의 크기와 형태가 허용하는 한, 주맥을 절단하는 것을 피하고 샘플 간에 절개 위치를 최대한 일정하게 유지하십시오. 주맥의 손상은 상처 유도 휘발성 물질의 방출을 상당히 증가시킬 수 있으므로, 일관된 상처 부위 설정은 실험의 재현성을 높여줍니다.5.
주의: 절단 전 챔버가 완전히 밀폐되었는지 확인하십시오. - 동일한 카트리지를 사용하여 13분 동안 휘발성 유기 화합물(VOC) 수집을 계속하십시오.
- 세 번째 카트리지를 삽입하고 15분 동안 VOCs를 포집하십시오.
- 실시간 검출을 위해 모든 기간 동안 PTR-TOF-MS를 연속적으로 작동시키십시오.
참고: 각 식물 측정 전후에 동일한 환경 조건에서 챔버가 비어 있는 상태의 배경 시료를 수집하십시오. 데이터 분석 시, 이러한 배경 측정값을 VOC 배출 데이터의 기선 보정에 사용하십시오.
- 첫 번째 VOC 카트리지를 배출 라인에 삽입하고 이를 휴대용 정유량 공기 시료 채취 펌프에 연결하십시오. 200 mL min⁻¹의 일정 유량으로 카트리지를 통해 챔버 공기를 흡입하십시오.-1C3-C17 휘발성 물질 포집에 적합한 다층 스테인리스 스틸 흡착 카트리지(길이 10.5 cm, 내경 3 mm)를 사용하며, 여기에는 Carbotrap C 20/40 mesh(0.2 g), Carbopack B 40/60 mesh(0.1 g), Carbotrap X 20/40 mesh(0.1 g)가 채워져 있어야 하고, 시료 채취 방향을 따라 흡착 강도가 약한 것부터 강한 순으로 배열되어야 합니다.
5. 휘발성 물질 검출 및 기기 작동
- PTR-TOF-MS의 입구 및 드리프트 튜브 온도를 80 °C, 입구 유량을 100 mL min-1, 수증기 유량을 4.0 mL min-1, 이온 전류를 4.0 mA, 드리프트 챔버 압력을 2.1 mbar, 드리프트 튜브 전계 밀도비를 115 Td, 그리고 TOF-MS 모듈 압력을 1.2 × 10⁻⁷ mbar로 설정한다.
- 400 ps 샘플 간격으로 1 Hz의 시간 분해능을 사용하여 휘발성 신호를 기록한다.
- 각 실험 전, 주요 식물 휘발성 물질군을 대표하는 VOC가 포함된 인증 표준 가스 혼합물을 사용하여 PTR-TOF-MS를 교정한다. 설명된 절차13,16에 따라 PTR-MS Viewer 소프트웨어를 사용하여 교정 데이터를 처리하고 VOC 농도를 계산한다.
6. 카트리지 샘플의 오프라인 GC-MS 분석
참고: 다음 절차는 위의 워크플로우 중에 수집된 카트리지 샘플의 오프라인 분석에 대해 설명합니다. GC-MS 분석은 상호 보완적인 화합물 식별 정보를 제공하며, 본 연구에서 제시된 대표 결과는 연속적인 PTR-TOF-MS 측정값을 기반으로 합니다.
- Kännaste 등20이 설명한 절차에 따라 GC-MS 시스템에 연결된 자동 열탈착 장치를 사용하여 카트리지를 열탈착합니다.
- 표준 물질 및 NIST 질량 분석 라이브러리와 비교하여 화합물을 확인합니다. 전자 충돌 이온화(70 eV)를 사용하여 질량 분석 검출을 수행하고, 가능한 경우 표준 물질과 머무름 시간 및 질량 분석 스펙트럼을 모두 대조하여 화합물 정체성을 확인합니다.
참고: 카트리지 샘플링은 C3–C17 휘발성 물질 포집을 위해 Kännaste 등20의 프로토콜을 수정하여 적용합니다.
7. 데이터 분석
- 분석 전 모든 방출 흔적에서 빈 챔버 배경값을 빼십시오. 모니터링된 각 질량에 대한 상처 형성 전 기선은 절단 직전의 고정된 시간 간격 동안의 평균 신호로 정의합니다.
- 모든 모니터링 질량의 공통 기준점으로 절단 시간을 사용하십시오. 잎 절단 후 기선 보정된 VOC 신호에서 처음으로 검출 가능한 증가가 나타나는 시점을 배출 시작 시점으로 결정하십시오.
참고: 방출 시작점은 상처 유도 전 기저선보다 높게 연속적으로 증가하여 방출 버스트의 상승기로 이어지는 첫 지점으로 정의하였으며, 이를 통해 기기 노이즈로 인한 일시적인 변동은 제외하였다. - 절단 시간과 최대 방출 신호 사이의 간격으로 피크 도달 시간을 계산하십시오. 인접한 데이터 포인트 간의 전방 및 후방 기울기의 평균을 사용하여, 베이스라인 보정된 신호의 1차 도함수로부터 방출 버스트의 최대 기울기를 계산하십시오.13피크 크기를 버스트 동안 관찰된 최대 방출 값으로 정의하십시오.
결과
휘발성 물질의 샘플링 위치가 신호 검출에 영향을 미치는지 평가하기 위해, 잎 챔버에 제어된 가스를 주입하여 두 가지 구성을 비교하였습니다. 한 설정에서는 수정된 가스 교환 챔버의 챔버 배출구에서 휘발성 물질을 직접 샘플링하였습니다(그림 1). 반면, 다른 설정에서는 공기가 검출기에 도달하기 전 가스 교환 분석기 튜브를 통과하도록 하였습니다. 두 신호를 동시에 기록함으로써 시간적 역동성을 직접 비교할 수 있었습니다.
순수 휘발성 화합물을 주입했을 때, 뚜렷한 방출 피크와 함께 빠른 검출기 반응이 나타났습니다(그림 2). 챔버 배출구에서 직접 샘플링했을 때, 신호는 주입 직후 즉시 상승하여 날카로운 최댓값에 도달한 후 빠르게 감소했습니다. 분석기 튜빙 이후에 샘플링했을 때, 동일한 화합물들이 지연되고 감쇠된 반응을 보였습니다.
이소프렌(m/z 69)의 경우, 샘플링 위치 간의 시간 지연은 미미했으며 피크 크기는 비슷하게 유지되었습니다(그림 2A). Z-3-hexen-1-ol(m/z 83)의 경우, 튜브를 통과하면서 직접 샘플링에 비해 피크 높이가 감소하고 감쇠 곡선이 넓어졌습니다(그림 2B). 이러한 효과는 α-pinene(m/z 137)에서 가장 강하게 나타났으며, 챔버 출구에서 직접 측정된 신호와 비교했을 때 튜브 통과 시 피크가 크게 감쇄되었습니다(그림 2C).
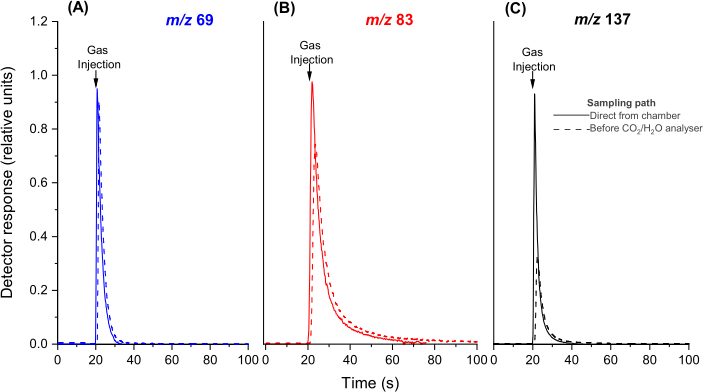
그림 2: 휘발성 물질 검출의 시간적 응답에 미치는 시료 채취 위치의 영향. 순수 (A) isoprene (m/z 69), (B) Z-3-hexen-1-ol(주로 파편 이온 m/z 83으로 검출됨), 그리고 (C) α-pinene (m/z 137)을 주입했을 때의 응답을 두 가지 시료 채취 위치에서 기록하였다. 실선은 챔버 배출구 직후의 시료 채취를 나타내며, 점선은 가스 교환 시스템 튜빙을 통과한 후 CO₂/H₂O 분석기 이전의 표준 시료 채취 위치를 나타낸다. 화살표는 가스 주입 시점을 표시한다. 응답 값은 챔버 옆의 PTR-QMS 시료 채취 시 검출된 최대 신호에 대해 정규화하였다. 응답 형태의 차이를 시각화하기 위해, 표준 시료 채취의 시간 경과 곡선을 직접 시료 채취 대비 0.9 s만큼 이동시켰다. 이 그림은 Rasulov 등.16의 자료를 수정하여 작성되었다. 여기를 클릭하여 이 그림의 확대 버전을 확인하십시오.
잎 절단은 모든 종(Quercus rubra, Acer platanoides, Gossypium hirsutum)에서 화합물 특이적인 휘발성 물질의 급격한 방출을 유도했으며, 시스템은 수 초 내에 이러한 방출을 감지했습니다. 챔버 내 설정으로 방출 시작 시점과 정점 도달 시간을 직접 분석할 수 있었으므로, 측정 중단 없이 화합물 특이적 역학의 정량화가 가능했습니다.
모든 종에서 상처 유발 PTR-TOF-MS 신호 중 m/z 99가 가장 지배적으로 검출되었으며, 이는 이전의 PTR-TOF-MS 연구를 바탕으로 LOX 유래 hexenal-형 화합물로 잠정적으로 지정되었다(그림 3, 그림 4 및 그림 5). 피크 배출량은 세 종에서 24–300 nmol m-2 s-1 범위로 나타났으며, 이는 본 프로토콜이 광범위한 배출 강도에 걸쳐 상처 유발 VOC 동태를 분해할 수 있음을 보여준다(그림 3, 그림 4 및 그림 5). 모든 경우에서 m/z 99는 절단 후 수 초 이내에 증가하여 ~39–57 s 이내에 정점에 도달했으며, 모니터링된 질량 성분 중 가장 가파른 상승 곡선을 보였다(표 1), 이를 통해 m/z 99가 상처로 인한 급격한 방출의 지배적인 급성 성분임을 확인하였다.
A. platanoides (그림 4B)와 G. hirsutum (그림 5B)에서 질량 69의 배출량은 절단 전까지 무시할 수 있는 수준으로 유지되었으며, 상처 처리 후에만 약간 증가했습니다. 이와 대조적으로, Q. rubra는 절단 전부터 상당한 기저 배출량을 보였고, 이후 일시적으로 완만하게 증가했다가 안정화되었으며, 이는 상처 반응에 더해진 구성적 이소프렌 방출과 일치합니다 (그림 3B).
모니터링된 다른 질량 분석 결과, 절단 후 명확한 시간적 순서가 나타났습니다. 여러 종에 걸쳐 m/z 43, 57, 69 및 99는 분출의 초기 단계를 정의한 반면, m/z 45와 83은 더 나중에 정점에 도달했습니다(그림 3, 그림 4 및 그림 5; 표 1). 이러한 패턴은 A. platanoides에서 가장 두드러졌는데, m/z 45는 절단 직후 상승하기 시작했으나 약 155 s 후에야 정점에 도달하여 초기 LOX 관련 단편들보다 더 느리고 지속적인 반응을 보였습니다(그림 4A; 표 1). 마찬가지로, m/z 83은 모든 종에서 초기 단편들보다 나중에 정점에 도달했으며, 특히 G. hirsutum에서는 약 223 s 후에야 최대치에 도달하여 지연된 양상을 보였습니다(그림 5A; 표 1).
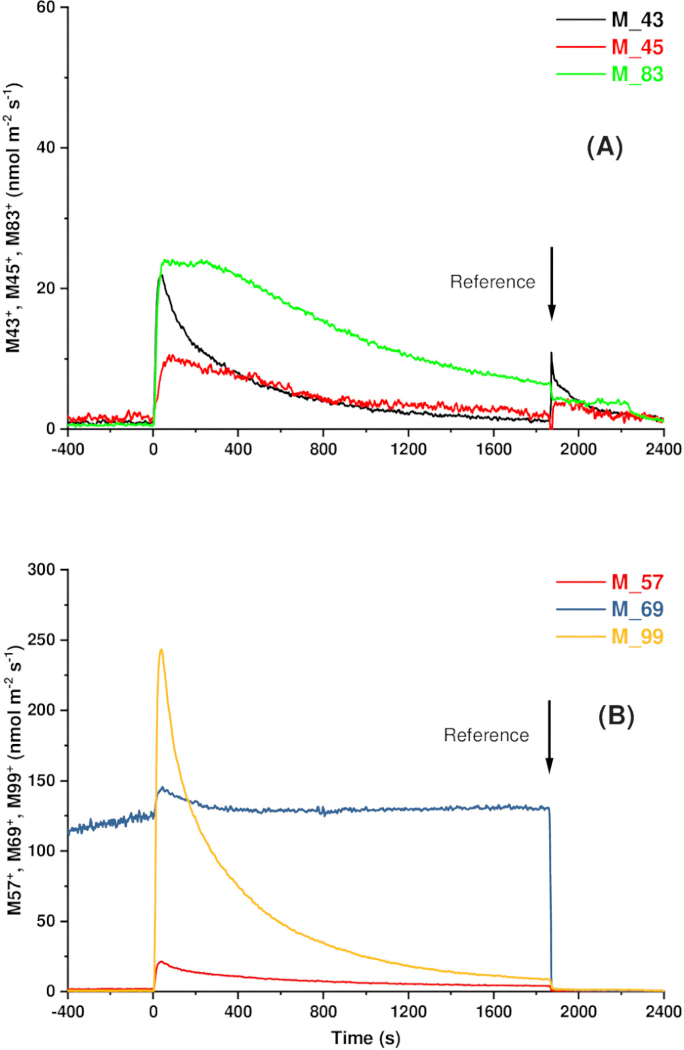
그림 3: Quercus rubra의 대표 잎에서 시간에 따른 상처 유도 휘발성 물질 배출. (A) m/z 43, 45, 및 83. (B) m/z 57, 69, 및 99. t = 0에서, 그림 1에 표시된 챔버 내 잎 절단기를 사용하여 잎을 절단하여 10 mm의 절개창을 만들었다. 휘발성 배출은 양성자 전이 반응 비행 시간형 질량 분석기(PTR-TOF-MS)로 지속적으로 모니터링하였으며, 가스 교환율은 Walz GFS-3000 시스템으로 측정하였다. 신호는 본 프로토콜로 달성 가능한 시간 분해능을 보여주는 대표적인 기선 보정 배출 프로파일로 표시되었다. 이러한 배출 프로파일에서 추출한 대표적인 역학 기술자는 표 1을 참조하십시오. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
이러한 공통된 특징에도 불구하고, 대표적인 측정 결과는 종에 따라 배출 궤적이 다를 수 있음을 보여줍니다. Q. rubra의 경우, m/z 43과 57은 빠르게 상승했으나 감소 단계에서 서로 갈라졌으며, m/z 57이 m/z 43보다 더 느리게 감소했습니다(그림 3A,B). A. platanoides에서는 이 패턴이 반대로 나타나 m/z 43이 후기 단계에서 더 느린 감소를 보였습니다(그림 4A). G. hirsutum의 경우 모든 신호의 크기가 더 낮았으며, 배출 프로파일은 초기의 빠른 피크와 더 점진적인 감소가 결합된 형태였습니다. 특히 m/z 45는 감소 단계 동안 작은 2차 증가를 나타냈습니다(그림 5A).
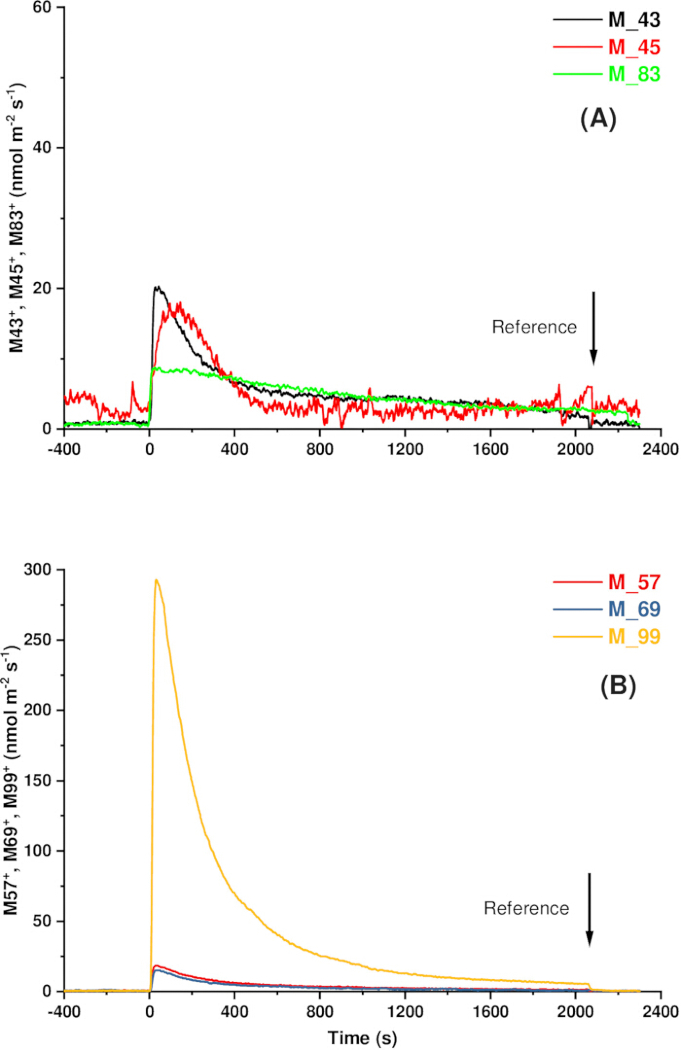
그림 4: Acer platanoides의 대표 잎에서 상처로 인해 유도된 휘발성 물질 방출의 시간 분해能 측정 결과. (A) m/z 43, 45, 83. (B) m/z 57, 69, 99. t = 0에서 챔버 내 커터를 사용하여 잎을 절단하였다(그림 1; 10 mm 절개). 휘발성 물질 방출은 양성자 전이 반응 비행 시간 질량 분석기(PTR-TOF-MS)로 연속 측정하였으며, 가스 교환은 Walz GFS-3000 시스템으로 측정하였다. 신호는 본 프로토콜로 달성 가능한 시간 분해능을 보여주는 대표적인 기선 보정 방출 프로필로 표시되었다. 이러한 방출 프로필에서 추출한 대표적인 역학 기술자는 표 1을 참조하십시오. 이 그림의 확대 버전을 보려면 여기를 클릭하십시오.
종합적으로 이러한 패턴은 상처로 인해 유도된 배출이 단일한 동기적 폭발이 아니라, 초기에는 급격한 성분이 나타나고 이후에는 더 넓은 범위의 지연된 반응이 뒤따르는 화합물 특이적 캐스케이드를 따른다는 것을 나타냅니다.
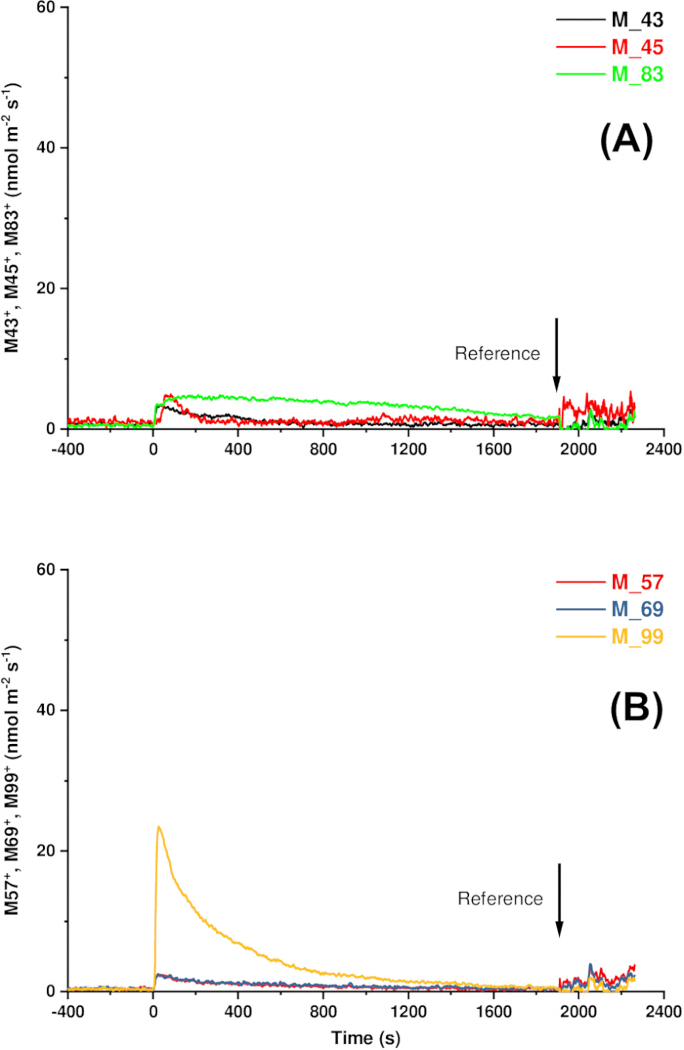
그림 5: Gossypium hirsutum의 대표적인 잎에서 나타난 시간에 따른 상처 유도 휘발성 물질 방출. (A) m/z 43, 45, 및 83. (B) m/z 57, 69, 및 99. t = 0에서 챔버 내 커터(그림 1; 10 mm 절개)를 사용하여 잎을 절단하였다. 휘발성 물질 방출은 양성자 전이 반응 비행 시간 질량 분석기(PTR-TOF-MS)로 지속적으로 측정하였으며, 가스 교환은 Walz GFS-3000 시스템으로 측정하였다. 신호는 본 프로토콜로 달성 가능한 시간 분해능을 보여주는 대표적인 기선 보정 방출 프로파일로 표시되었다. 이 방출 프로파일에서 추출한 대표적인 역학 기술자는 표 1을 참조하라. 이 그림의 더 큰 버전을 보려면 여기를 클릭하십시오.
토론
본 프로토콜은 제어된 실험 조건 하에서 상처 유도 휘발성 물질 배출의 고해상도 시간 분석을 가능하게 합니다. 절단 과정을 잎 챔버 내에서 직접 수행하고 휘발성 신호를 지속적으로 모니터링함으로써(그림 1), 시스템은 지연된 샘플링, 챔버 개방 또는 측정 설정 외부에서의 잎 조작으로 인해 발생하는 왜곡 없이 배출 반응을 포착합니다. 이러한 교란은 밀폐 기반 측정에서 배출 피크의 겉보기 타이밍과 크기 모두를 변화시킬 수 있습니다3,6,13,17. 상처 유도와 측정을 동일한 밀폐 공간에서 수행함으로써, 본 프로토콜은 배출 타임라인을 보존하고 스트레스 유도 휘발성 반응에 대한 신뢰할 수 있는 시간 분해 정량화를 가능하게 합니다.
| 종 | 양성자화 분자 질량 | 피크 크기 (nmol m-2 s-1) | 절단 후 시작 시간 (s) | 피크 시간 (s) | 최대 기울기 (nmol m-2 s-2) |
| Quercus rubra | 43 | 21.91 | ~0.0 | 55.6 | 1.49 |
| 45 | 10.52 | 7 | 111.4 | 0.29 | |
| 57 | 21.27 | 20 | 55.6 | 1.37 | |
| 69 | 145.6 | 25 | 61 | 1.44 | |
| 83 | 24.13 | 21 | 71.8 | 1.39 | |
| 99 | 243.16 | 21 | 57.4 | 18.17 | |
| Acer platanoides | 43 | 20.26 | 5.4 | 54 | 1.59 |
| 45 | 18.06 | 1.8 | 154.8 | 0.55 | |
| 57 | 18.65 | 10.8 | 41.4 | 1.55 | |
| 69 | 15.15 | 10.8 | 41.4 | 1.13 | |
| 83 | 8.78 | 7.2 | 57.6 | 0.76 | |
| 99 | 292.86 | 10.8 | 43.2 | 23.62 | |
| Gossypium hirsutum | 43 | 3.5 | 5.4 | 48.6 | 0.19 |
| 45 | 4.98 | 9 | 95.4 | 0.29 | |
| 57 | 2.48 | 10.8 | 36 | 0.18 | |
| 69 | 2.42 | 12.6 | 37.8 | 0.17 | |
| 83 | 4.83 | 14.4 | 223.2 | 0.3 | |
| 99 | 23.47 | 12.6 | 39.6 | 1.95 |
표 1: 잎 상처 처리 후 연속적인 PTR-TOF-MS 측정에서 추출한 피크 크기, 방출 시작 시점, 피크 도달 시간 및 최대 기울기의 대표값.값에는 피크 크기, 방출 시작 시점, 피크 도달 시간 및 최대 기울기가 포함됩니다. 이 값들은 본 프로토콜을 통해 생성된 역학 기술자의 유형을 보여주며, 종 간의 통계적 비교가 아닌 개념 증명 예시로 제공되었습니다. 방출 시작 시점은 절단 후 상처 전 기저선보다 감지 가능한 첫 번째 증가가 나타난 때로 정의하였고, 피크 도달 시간은 절단과 최대 신호 사이의 간격으로, 최대 기울기는 기저선 보정 신호의 최대 1차 도함수로 정의하였습니다.
샘플링 위치를 비교한 결과, 샘플링 구성이 기록된 신호에 현저한 영향을 미치는 것으로 나타났다(그림 2). 챔버 배출구에서 직접 샘플링했을 때는 빠른 피크 형성이 유지된 반면, 분석기 튜브 이후에 샘플링했을 때는 피크 형성이 지연되고 신호 강도가 감쇠되었다. 이러한 효과는 isoprene (m/z 69)에서는 무시할 만한 수준이었고, m/z 83에서는 중간 정도였으며, α-pinene (m/z 137)에서 가장 강하게 나타났다. 이는 분자량이 더 크거나 반응성이 더 높은 화합물일수록 수송 관련 왜곡이 증가한다는 점과 일치한다10,21. 튜브 표면으로의 흡착, 샘플링 라인을 통한 수송 지연, 수송 중의 화학적 상호작용은 배출 피크를 넓히거나 감쇠시킬 수 있으며, 이로 인해 휘발성 물질의 역학 해석이 달라질 수 있다9,12,21.
본 프로토콜의 핵심적인 장점은 상처로 인해 유도된 휘발성 물질 방출의 가장 초기 단계를 분해할 수 있다는 점입니다. 모든 종에서 이 초기 단계는 절단 후 수 초 이내에 나타났으며, 가장 높은 피크 크기와 가장 가파른 최대 기울기를 보인 m/z 99에서의 급증이 지배적이었습니다(그림 3, 그림 4, 및 그림 5; 표 1). 피크 최대치는 절단 후 ~40–57 s 이내에 발생했으며, 이는 이전 연구들에서 일반적으로 보고된 100–280 s보다 상당히 이른 수치입니다13,19,22. 이러한 변화는 챔버 내에서 상처 유도와 검출이 동기화되어 잎 취급 및 샘플링 라인 운송으로 인한 지연이 최소화되었음을 반영하는 것으로 보입니다.
동일한 챔버 내에서 상처 유도와 검출을 동기화함으로써, 본 프로토콜은 m/z 43 및 57이 절단 직후 즉각적으로 증가한 반면, m/z 45는 더 나중에 정점에 도달하고 더 넓은 감쇠 역학을 보인 fragment-level cascade를 규명하였습니다(그림 3, 그림 4, 및 그림 5; 표 1). 이러한 순서는 GC-MS와 비교했을 때 화합물 수준의 분리 능력이 부족함에도 불구하고, 초기 방출물은 lipoxygenase 유래 C6 알데하이드가 주를 이루고 이후 하위 알코올 및 관련 생성물이 뒤따른다는 이전의 PTR 기반 연구들과 일치합니다19,22. 이전의 PTR-TOF-MS 연구들과 일치하게, 지배적인 m/z 99 신호는 hexenal 유형의 화합물과 일치하며, m/z 81의 탈수 fragment는 주요 초기 신호로 확인된 반면, m/z 83은 hexenols 및 hexanal의 기여를 반영합니다22. 이러한 순서는 크기와 경로에 따른 계층 구조를 더욱 뒷받침하며, 여기서는 작고 빠르게 형성된 산소화 화합물이 더 크거나 복잡한 분자보다 더 일찍 방출됩니다13,23.
리폭시게네이즈 유래 파편 외에도, 잠정적으로 이소프렌으로 할당된 m/z 69의 신호는 대표적인 사례들 사이에서 뚜렷한 방출 궤적을 보였다(그림 3, 그림 4및 그림 5). Q. rubra 상당한 기저 배출량을 보였으나, 반면 A. platanoides 및 G. hirsutum 알려진 방출 특성과 일치하게 극미량만 생성되었다24,25종 간에 걸쳐, 이소프렌은 상처 입힘에 대해 약하게만 반응하였으며, 이는 이소프렌의 특성과 일치한다. 데 노보(de novo) 합성 ~을 통해 광합성 대사에 의존하며 따라서 기계적 손상에 의해 간접적으로만 영향을 받는 MEP 경로15.
이러한 빠른 동역학은 기계적 손상에 대한 잎의 잘 알려진 생화학적 반응을 반영합니다. 기계적 손상은 리폭시게나제 경로를 빠르게 활성화하며, 이는 막 지질 산화로부터 C6 휘발성 물질 및 관련 산소화 화합물의 일시적인 펄스를 생성합니다.5,7,17,22,23이러한 방출은 조직 파괴 후 급격한 상승과 뒤이은 완만한 감쇠 단계가 나타나는 강한 비대칭적 역학을 보입니다.16본 시스템의 이러한 비대칭 패턴은 요약된 대표적인 역학 기술자(kinetic descriptors)에서 알 수 있듯이 수 초에서 수 분의 시간 척도로 전개됩니다. 표 1반면, 챔버 외부에서 잎에 상처를 입힌 연구에서는 정점 도달 시간이 지연되는 것으로 보고되었다.13이러한 더 높은 시간 분해능은 신호의 시작 시점부터 캡처하여 시간적 스미어링(temporal smearing)을 줄이고, 상승 및 하강 단계 모두를 직접적으로 정량화할 수 있게 합니다. 이러한 동역학적 특성들은 함께 전체 방출 궤적을 정의하며, 이는 이산적 또는 지연 샘플링 방식으로는 흔히 과소평가되는 부분입니다.5,15.
챔버 내에서 절단 이벤트를 표준화하면 상처의 기하학적 구조와 심각성을 일정하게 유지함으로써 실험 재현성을 더욱 향상시킬 수 있으며, 이 두 요소는 절단 길이에 의해 결정되고 VOC 배출량에 직접적인 영향을 미칩니다5,18,22. 그럼에도 불구하고, 절단 칼날이 챔버 내의 고정된 위치에 있기 때문에, 절단 위치는 잎의 크기, 형태 및 기밀 유지를 위한 필요성에 의해 영향을 받습니다. 가능한 경우, 절단 부위는 중륵 및 기타 주요 잎맥을 피해 잎맥 사이의 엽신 내에 위치시켜야 합니다. 하지만 특히 좁거나 작은 잎의 경우 주요 잎맥을 완전히 피하는 것이 항상 보장되지는 않습니다. 주요 잎맥의 손상은 상처로 유도된 VOC 배출을 상당히 변화시킬 수 있으므로5, 동일한 실험 내의 샘플 간에 절단 위치를 최대한 일정하게 유지해야 합니다.
재현 가능한 상처 유도 VOC 측정을 얻기 위해서는 안정적인 환경 조건을 유지하는 것이 동일하게 중요합니다. VOC의 생성, 방출 및 수송은 환경 조건의 영향을 받으므로, 모든 측정 과정 동안 챔버 온도, 습도, 복사조도, CO2 농도 및 공기 흐름을 일정하게 유지하였습니다. 이러한 변수들을 표준화함으로써 실험적 변동성을 최소화하고 상처 유도 VOC 역학의 재현성을 높일 수 있습니다. 또한, 본 프로토콜은 가스 교환 측정과 동시에 수행하는 것이 완전히 가능하므로, 향후 응용 연구에서는 동일한 실험 조건 하에서 VOC 방출 역학과 광합성 및 증산 작용의 변화 사이의 직접적인 연관성을 분석할 수 있을 것입니다26. 이러한 측정은 VOC 생성의 생화학적 조절과, 상처 입은 조직으로부터 수용성 산소 화합물의 증발 촉진을 포함하여 휘발성 물질 방출에 영향을 미치는 물리적 과정을 구분하는 데 도움이 될 수 있습니다16. 따라서 처리군 간 또는 종 간의 차이는 환경 조건, 상처의 기하학적 구조, 그리고 잎의 발달 단계를 포함한 식물 재료가 실험 전반에 걸쳐 표준화되었을 때만 해석해야 합니다12.
이전의 챔버 내 측정 방식들은 실시간 상처 유발 VOC 측정의 가능성을 입증했지만, 중요한 기술적 한계 또한 드러냈습니다. 불규칙한 절단, 일관되지 않은 상처 크기, 그리고 챔버 밀폐의 교란 등이 측정값 간의 변동성을 유발했습니다18,19. 또한, 이러한 방식들은 대개 상대적으로 큰 챔버 부피에 의존하여 공기 교체 속도가 느려지고, 피크 형성 지연 및 휘발성 신호 프로파일의 확장이 나타났습니다22,27. 이러한 효과는 휘발성이 낮은 화합물에서 더 뚜렷하게 나타나며 온도에 따라 달라질 수 있습니다21. 반면, 본 프로토콜에서 사용된 더 작은 챔버(내부 부피 ~8 mL)는 공기 체류 시간을 줄여, 당사의 측정에서 관찰된 더 선명한 개시 시점을 구현하는 데 기여합니다(그림 1).
본 프로토콜은 산림 생태계의 직접적인 in situ 모니터링보다는 제어된 생리적 실험을 위해 개발되었습니다. 측정은 잘 정의된 환경 조건 하에서 부착된 잎을 대상으로 수행되며, 이를 통해 실험적 변동성을 최소화하고 상처로 유도된 VOC 역학의 정밀한 특성 분석을 가능하게 합니다. 현장 적용 여부는 휴대용 가스 교환 및 VOC 검출 시스템의 가용성에 따라 달라질 것입니다. 그럼에도 불구하고, 통합 절단 메커니즘은 약간의 수정만으로 다양한 챔버 구성에 적응시킬 수 있으므로, 이러한 기술이 보급됨에 따라 휴대용 가스 교환 플랫폼 및 기타 실험 플랫폼으로 쉽게 전이될 수 있을 것입니다. 이러한 유연성은 VOC 방출 역학의 정확한 특성 분석에 필요한 시간적 해상도를 유지하면서 신속한 식물 스트레스 반응을 조사할 수 있는 기회를 확대하며, 결과적으로 잎 손상에 따른 초기 생리적 및 생화학적 반응의 기전 연구를 촉진합니다.
공개 사항
저자들은 이해관계의 충돌이 없음을 선언합니다.
감사의 글
본 연구는 에스토니아 연구위원회(PRG2207)와 에스토니아 교육연구부(Center of Excellence Agro-CropFuture, “Agroecology and new crops in future climates”, TK200U1)의 연구비를 지원받아 수행되었습니다.
재료
| 이름 | 회사 | 카탈로그 번호 | 댓글 |
|---|---|---|---|
| TD-20 열탈착기가 장착된 GC-MS 시스템 | Shimadzu | GCMS-QP2010 Plus; TD-20 | TD-20 열탈착기가 장착된 GC-MS 시스템. www.shimadzu.com |
| GFS-3000 가스 교환 시스템 | Walz GmbH | GFS-3000 | 잎 가스 교환 측정. www.walz.com |
| 고순도 헬륨 (99.999%) | Local supplier | N/A | 흡착 카트리지 컨디셔닝 및 GC-MS 열탈착에 사용. www.airliquide.com (또는 동등한 공급업체). |
| 이소프렌 검정 표준물질 | Sigma-Aldrich Chemie GmbH | Custom | 맞춤형 이소프렌 검정 표준물질 (3.43 ppm). www.sigmaaldrich.com |
| 저방출 밀봉 퍼티 | Local supplier | N/A | 챔버 내 커터 삽입 지점의 밀봉에 사용. |
| 다층 스테인리스강 흡착 카트리지 | Supelco | Custom | 길이 10.5 cm × 내경 3 mm; Carbotrap C (0.2 g, 20–40 mesh), Carbopack B (0.1 g, 40–60 mesh), Carbotrap X (0.1 g, 20–40 mesh) 충전. VOC의 선택적 오프라인 GC-MS 확인에 사용. www.sigmaaldrich.com |
| 휴대용 정유량 공기 시료 채취 펌프 | SKC Inc. | 210-1003MTX | 휴대용 정유량 공기 시료 채취 펌프. |
| PTR-TOF 8000 질량 분석계 | Ionicon Analytik GmbH | PTR-TOF 8000 | VOC 검출. www.ionicon.com |
| 은납선 | Local supplier | N/A | 면도날을 스테인리스강 봉에 부착하는 데 사용. |
| 스프링 황동판 (두께 0.2 mm) | Local supplier | N/A | 커터를 고정하는 데 사용되는 유연한 지지대. |
| 스테인리스강 봉 (직경 1 mm) | Local supplier | N/A | 커터 지지봉. |
| 스테인리스강 주사바늘 (외경 1.6 mm) | Local supplier | N/A | 회전 커터 날의 하우징. |
| 테플론 마개 | Local supplier | N/A | 회전을 허용하면서 커터 하우징을 밀봉하는 데 사용. |
| 테플론 T-피스 커넥터 | Local supplier | N/A | 튜브 길이를 줄이기 위해 챔버 배출구 근처에 설치. |
| 테플론 튜브 (FEP 또는 PTFE) | Local supplier | N/A | 챔버와 검출기 사이의 VOC 시료 채취 라인. |
| VOC 검정 가스 혼합물 | Ionimed GmbH | Custom | N2 내 각 화합물 1 ppm; PTR-TOF-MS 검정에 사용. www.ionimed.com |
참고문헌
- Bergman ME, Huang XQ, Baudino S, Caissard JC, Dudareva N. Plant volatile organic compounds: emission and perception in a changing world. Curr Opin Plant Biol. 2025;85:102706.
- Luo R, Lun X, Gao R, Wang L, Yang Y, Su X, et al. A review of biogenic volatile organic compounds from plants: research progress and future prospects. Toxics. 2025;13(5):1-35.
- Molleman F, Mandal M, Sokół-Łętowska A, Walczak U, Volf M, Mallick S, et al. Simulated herbivory affects the volatile emissions of oak saplings, while neighbourhood affects flavan-3-ols content of their leaves. J Chem Ecol. 2024;50(5-6):250-261.
- Huang PC, Berg-Falloure KM, Gao X, Meeley R, Kolomiets MV. Pentyl leaf volatiles promote insect and pathogen resistance via enhancing ketol-mediated defense responses. Plant Physiol. 2025;197(2):1-18.
- Portillo-Estrada M, Niinemets Ü. Massive release of volatile organic compounds due to leaf midrib wounding in Populus tremula. Plant Ecol. 2018;219(9):1021-1028.
- Engelberth M, Engelberth J. Leaf developmental stages strongly modulate indole emissions in response to simulated insect herbivory. Plants (Basel). 2025;14:3761.
- Matsui K. How and why plants came to smell green: the origins, biosynthesis, and roles of green leaf volatiles. J Exp Bot. 2025;76:1-14.
- Waterman JM, Cazzonelli CI, Hartley SE, Johnson SN. Simulated herbivory: the key to disentangling plant defence responses. Trends Ecol Evol. 2019;34(5):447-458.
- Tholl D, Boland W, Hansel A, Loreto F, Röse USR, Schnitzler JP. Practical approaches to plant volatile analysis. Plant J. 2006;45(4):540-560.
- Ormeño E, Goldstein A, Niinemets Ü. Extracting and trapping biogenic volatile organic compounds stored in plant species. TrAC Trends Anal Chem. 2011;30(7):978-989.
- Chang YY, Huang YM, Chang HT. Using headspace gas chromatography-mass spectrometry to investigate the volatile terpenoids released from the Liquidambar formosana leaf and its essential oil. Forests. 2024;15(9):1-12.
- Niinemets Ü, Kuhn U, Harley PC, Staudt M, Arneth A, Cescatti A, et al. Estimations of isoprenoid emission capacity from enclosure studies: measurements, data processing, quality and standardized measurement protocols. Biogeosciences. 2011;8(8):2209-2246.
- Portillo-Estrada M, Kazantsev T, Talts E, Tosens T, Niinemets Ü. Emission timetable and quantitative patterns of wound-induced volatiles across different leaf damage treatments in aspen (Populus tremula). J Chem Ecol. 2015;41(12):1105-1117.
- Waterman JM, Cofer TM, Von Laue OM, Mateo P, Wang L, Erb M. Leaf size determines damage- and herbivore-induced volatile emissions in maize. Plant Cell Environ. 2025;48(5):3766-3777.
- Yuan Y, Mao Y, Yuan H, Guo M, Zhou G, Niinemets Ü, et al. Impacts of mechanical injury on volatile emission rate and composition in 45 subtropical woody broad-leaved storage and non-storage emitters. Plants (Basel). 2025;14(5):1-40.
- Rasulov B, Talts E, Niinemets Ü. A novel approach for real-time monitoring of leaf wounding responses demonstrates unprecedentedly fast and high emissions of volatiles from cut leaves. Plant Sci. 2019;283:256-265.
- Portillo-Estrada M, Okereke CN, Jiang Y, Talts E, Kaurilind E, Niinemets Ü. Wounding-induced VOC emissions in five tropical agricultural species. Molecules. 2021;26(9):1-20.
- Mithöfer A, Wanner G, Boland W. Effects of feeding Spodoptera littoralis on lima bean leaves. II. Continuous mechanical wounding resembling insect feeding is sufficient to elicit herbivory-related volatile emission. Plant Physiol. 2005;137(3):1160-1168.
- Brilli F, Ruuskanen TM, Schnitzhofer R, Müller M, Breitenlechner M, Bittner V, et al. Detection of plant volatiles after leaf wounding and darkening by proton transfer reaction time-of-flight mass spectrometry (PTR-TOF). PLoS One. 2011;6(5):e20419.
- Kännaste A, Copolovici L, Niinemets Ü. Gas chromatography-mass spectrometry method for determination of biogenic volatile organic compounds emitted by plants. In: Rodríguez-Concepción M, editor. Plant Isoprenoids Methods and Protocols. New York (NY): Humana Press; 2014. p. 161-169.
- Schaub A, Blande JD, Graus M, Oksanen E, Holopainen JK. Real-time monitoring of herbivore-induced volatile emissions in the field. Physiol Plant. 2010;138(2):123-133.
- Fall R, Karl T, Hansel A, Jordan A, Lindinger W. Volatile organic compounds emitted after leaf wounding: on-line analysis by proton-transfer-reaction mass spectrometry. J Geophys Res Atmos. 1999;104(D13):15963-15974.
- Kaur D, Schedl A, Lafleur C, Martinez Henao J, van Dam NM, Rivoal J, et al. Arabidopsis transcriptomics reveals the role of Lipoxygenase2 (AtLOX2) in wound-induced responses. Int J Mol Sci. 2024;25(11):5898.
- Gentner DR, Ormeño E, Fares S, Ford TB, Weber R, Park JH, et al. Emissions of terpenoids, benzenoids, and other biogenic gas-phase organic compounds from agricultural crops and their potential implications for air quality. Atmos Chem Phys. 2014;14(11):5393-5413.
- Harley P, Deem G, Flint S, Caldwell M. Effects of growth under elevated UV-B on photosynthesis and isoprene emission in Quercus gambelii and Mucuna pruriens. Glob Chang Biol. 1996;2(2):149-154.
- Lobo-do-Vale R, Schenk HJ, Kübert A, Lintunen A. Gas phase in plants: integrating physiology, ecology and environmental sciences. Tree Physiol. 2026;46(13):1-4.
- Niinemets Ü. Whole plant photosynthesis. In: Flexas J, Loreto F, Medrano H, editors. Terrestrial Photosynthesis in a Changing Environment A Molecular Physiological and Ecological Approach. Cambridge: Cambridge University Press; 2012. p. 399-423.
재인쇄 및 허가
이 논문이 게재되었습니다
동영상 곧 제공